本方案采用组织块消化法从成年小鼠心脏中分离单个心房心肌细胞。该方法可用于分离右心房或左心房心肌细胞,进而用于膜片钳实验中对心房心肌细胞电生理特性的表征研究。
本文内容
摘要
摘要
心房肌细胞的电生理特性对整体心脏功能具有重要影响。动作电位所依赖的离子电流发生改变时,可导致心律失常的促发基质,从而引发如心房颤动等心律失常,而这类心律失常在多种疾病状态中极为常见。通过分离成年小鼠心房心肌细胞并用于膜片钳实验,已显著推动了我们对健康心房心肌以及心房病理生理状态下细胞电生理机制的认识。此外,利用基因工程小鼠模型的研究已阐明了大量蛋白质在调控心房电生理中的作用。本文提供了一种详细的实验方案,用于从成年小鼠心耳组织中分离心肌细胞,该方法结合了酶消化与机械解离技术。该方法能够稳定、可靠地获得单个心房心肌细胞,可用于在多种实验条件下,通过膜片钳技术记录动作电位和离子电流,从而表征细胞的电生理特性。
引言
心房是心脏中壁薄、低压的腔室,接收来自上腔静脉、下腔静脉以及肺静脉的血液,在正常心脏生理功能中具有重要作用。与心脏其他区域一样,心房包含多种细胞类型,包括心肌细胞、成纤维细胞、内皮细胞、血管平滑肌细胞以及其他细胞。心房肌细胞是可兴奋的电活性细胞,在心脏电信号传导过程中发挥关键作用,从而确保每次心跳时心房的正常收缩1。心房的电功能异常可导致多种特异性心房心律失常,例如心房扑动和心房颤动2,3。这些心律失常发病率高但机制尚不明确,可导致显著的发病率和死亡率。心房颤动可由基因突变引起,也可与衰老相关,或发生在获得性心脏病(如高血压、心力衰竭和糖尿病)的背景下2,4,5,6。这些病理状态可改变心房肌细胞的电生理特性,从而形成有利于心律失常发生的基质1,2。
心房的正常电活动以及心房心律失常的发生,均显著受到心房肌细胞产生动作电位(AP)形态的影响。心房动作电位由多种离子电流共同作用形成,包括钠电流(INa,由Na携带V1.5通道)、L型钙电流(ICa,L,由Ca携带v1.2 和 CaV1.3 通道),以及包括超快速延迟整流钾电流(I库尔,由 K 携带V1.5通道)、瞬时外向钾电流(I到,由 K 携带V4.2 和 KV4.3通道)、稳态钾电流(IKss,由K携带V2.1通道)以及内向整流钾电流(IK1,由K携带ir2.1 通道)1,7,8尽管快速和缓慢延迟整流钾电流成分在小鼠心房中不起主要作用,+ 电流(IKr 我Ks在某些物种中,) 也参与动作电位的复极化过程7这些离子电流中一种或多种发生改变,可显著影响心房肌细胞的电学特性,从而导致心房心律失常。例如,INa 可通过对动作电位升支速度的抑制,减慢心房内的传导速度。另一方面,复极化钾电流的减少或任一ICa,L 或晚期 INa 可能导致后除极的产生,从而触发心房的自发性活动1,2,9.
需要注意的是,心房肌不同区域的动作电位形态存在差异,这很可能与这些区域离子通道的表达或调控差异有关。例如,右心房与左心房之间动作电位时程的差异与Ito电流密度的不同密切相关,这一点已有充分描述10,11,12,13。此外,我们最近的研究表明,在慢性高血压小鼠模型中,右心房和左心房表现出不同的电重构模式6,14。右心房后壁还包含窦房结,后者具有独特的动作电位形态和放电模式15。通过分离自这些不同区域的单个心肌细胞,可对各区域心肌细胞的独特电生理特性进行深入研究。
可用于分离心房肌细胞以进行膜片钳电生理研究的方法有多种16。其中一种方法是逆行灌注法,即通过主动脉插管向心脏输送酶。尽管该方法可行,但由于心房灌注不一致,可能导致心房肌细胞质量的差异。我们采用了一种“组织块”消化法来分离心房肌细胞,从而无需对心脏进行逆行灌注。该方法结合了酶消化与心房组织的机械解离,能够稳定且可靠地获得大量适用于膜片钳实验的心房肌细胞。尽管本文以心耳组织为例描述该方法,但研究者可根据需要将其应用于心房心肌的任何区域(如右心耳、左心耳、游离壁、后壁等)。该方法特别适用于转基因小鼠、心血管疾病小鼠模型中的心房肌细胞电生理研究,或用于研究药理学化合物的作用5,6,17,18,19。
方案
所有动物实验均经卡尔加里大学动物护理与使用委员会批准,并遵循加拿大动物护理委员会的指南进行。下文所述的心房肌细胞分离、图像及代表性结果均来自一只15周龄的雄性野生型C57Bl/6小鼠。我们常规使用该方案从野生型小鼠17,18、携带基因突变的小鼠19,20以及慢性高血压等疾病模型小鼠6,14中分离心房肌细胞。该方案同样适用于雄性和雌性小鼠。我们还采用过该分离方法的类似版本,用于从小鼠心脏中分离窦房结肌细胞17,21,22,23。本实验方案的流程图见图1。
1. 储备液和设备的准备
- 按照制造商说明,通过添加硅胶弹性体制备1个解剖皿。加入足量的硅胶弹性体化合物,使其覆盖10 cm培养皿底部,厚度达1 cm。待其固化后,在皿中插入6枚昆虫针。
注意:该硅胶解剖皿可重复使用数月,并在室温下保存。 - 制备3根经火焰抛光的巴斯德移液管,其开口直径分别为1 mm(小口径)、3 mm(中口径)或5 mm(大口径),如图2A所示。制作方法为:在巴斯德移液管上刻痕,沿刻痕折断,形成略大于目标口径的开口;使用金属锉刀修平表面,再用明火进行火焰抛光。
注意:此过程将产生表面光滑、边缘经火焰抛光且开口直径符合要求的移液管。确保开口无裂纹和粗糙表面至关重要。这些火焰抛光移液管可在室温下保存并重复使用数月。 - 按照表1列出的成分配制Tyrode’s pH 6.9溶液和Tyrode’s pH 7.4溶液的储备液。同时分别配制10 mL的1 M MgCl2、1 M CaCl2和100 mM CaCl2溶液。所有溶液均使用超纯水配制,4 °C保存,最长可保存2个月。
- 按照表2所示配制1 L改良Kraft-Brühe(KB)溶液。使用超纯水配制,将溶液分装为每份20 mL,-20 °C保存,最长可保存2个月。
2. 心房肌细胞分离所需溶液的配制及分离装置的准备
- 在125 mL锥形瓶中,按照表3所述配制50 mL pH 7.4的改良Tyrode溶液,使用1 M CaCl2和1 M MgCl2储备液。将锥形瓶置于35 °C水浴中备用,如图2B所示。
- 在50 mL离心管中,按照表4所述配制pH 6.9的改良Tyrode溶液,使用100 mM CaCl2储备液。将该溶液每管2.5 mL分装至三个5 mL圆底离心管中。将这些离心管置于放置于35 °C水浴中的金属架上备用,如图2B所示。
- 在14 mL圆底离心管中,按照表5所述配制酶溶液。配制蛋白酶溶液时,每100 μL超纯水中加入1 mg蛋白酶。将含有该酶溶液的离心管置于金属架中,并在35 °C水浴中孵育备用。
- 在35 °C水浴中解冻一份改良KB溶液。将KB溶液每管2.5 mL分装至三个5 mL圆底离心管中,并另取2.5 mL分装至一个14 mL圆底离心管中。将这些离心管置于金属架中,并在35 °C水浴中孵育备用,如图2B所示。
- 按图2B所示,准备好解剖板、解剖器械、巴斯德移液管以及火焰抛光移液管。
3. 小鼠心耳的解剖
- 通过腹腔注射向小鼠注射 0.2 mL 肝素(10 000 USP U/10 mL),并等待 5 分钟以使其吸收。
- 将小鼠放入诱导室中,通过吸入异氟烷(3-4%)进行麻醉。使用麻醉机输送异氟烷和氧气,并回收废气麻醉气体。当小鼠已麻醉且无脚趾夹捏反射时,通过快速颈椎脱位实施安乐死。将小鼠置于纸巾或软木板上,并用胶带固定四肢以保持其位置。
- 用 70% 乙醇润湿小鼠胸部。使用弯头剪刀去除覆盖胸部的毛发和皮肤。接着,用大鼠齿镊提起胸骨,然后沿肋骨边缘剪开膈肌。使用弯头剪刀移除整个胸腔以暴露心脏。
- 为切除心耳(右侧或左侧),使用精细解剖镊轻轻提起心耳,并用弹簧剪刀将其剪下。立即将心耳转移至含有 20 mL 预热改良Tyrode’s溶液(pH 7.4,见步骤 2.1)的硅胶包被解剖皿中。
- 在心耳开口的顶部和底部各放置一枚解剖针。使用移液管将预热的改良Tyrode’s溶液(pH 7.4)冲洗心房,以去除血液。沿心耳的上下边缘剪开以打开心耳。接着,将心耳的四个角向下固定,形成一块平坦的矩形组织,如图 3A所示。
4. 心房肌细胞的分离
注意:本节所有步骤均在 35 °C 下进行,将离心管浸入 35 °C 水浴中。在圆底试管之间转移组织条时需小心,确保仅转移组织本身(而非溶液)至下一试管中。
- 使用弹簧剪刀和精细镊子将心耳组织切成大约 8–10 个大小相等的条状(宽度约为 0.7 mm)。心房组织条的示例如图 3B所示。注意,这些条状组织一旦从主组织上被切下即会收缩。使用小口径火焰抛光移液管,将组织条转移至第一个含有步骤 2.2 中所述预热的改良 Tyrode’s 溶液(pH 6.9)的离心管中。静置 5 分钟。
- 使用中等口径火焰抛光移液管,将组织条依次转移至第二个和第三个装有步骤 2.2 中配制的改良 Tyrode’s 溶液(pH 6.9)的圆底离心管中进行洗涤。
- 洗涤时,盖紧 5 mL 圆底离心管,轻轻倒置管子 3 次。待组织条沉降至管底后,再使用中等口径火焰抛光移液管将组织条转移至下一管中。
- 使用中等口径火焰抛光移液管将组织条转移至步骤 2.3 中所述的酶解溶液中,孵育 30 分钟。每 3–5 分钟轻轻摇动管子一次,以防止组织条相互粘连。
注意:酶解开始时,摇动后组织条迅速沉降。约在酶解 20 分钟时,摇动后组织条开始在酶解液中漂浮。在此期间,随着酶解进行,心房组织条的颜色也由浅粉色逐渐变为白色。 - 酶解完成后,使用步骤 2.4 中准备的 5 mL 圆底离心管,以 2.5 mL KB 溶液进行三次洗涤。每次洗涤时,先轻轻倒置管子 3 次,然后使用中等口径火焰抛光移液管将组织条转移至下一管。最后一次洗涤后,将组织条转移至含有 2.5 mL KB 溶液的 14 mL 圆底离心管中。静置 5 分钟。
- 使用大口径火焰抛光移液管轻轻吹打组织 7.5 分钟。此操作将通过机械方式解离组织条,获得含有单个心房肌细胞的浑浊溶液。
注意:吹打过程中,组织逐渐变白,溶液变得浑浊。吹打力度应根据每次分离的具体情况调整,通过改变从大口径火焰抛光移液管中推出组织条的频率和速度来控制。若吹打过轻,则细胞得率较低;若吹打过强,则会导致大量细胞死亡。吹打过程中应避免产生气泡。 - 向含有吹打后组织条的 14 mL 圆底离心管中加入 KB 溶液,最终体积为 7–10 mL,具体体积根据实验所需细胞密度而定。将该管置于室温下静置 1 小时。孵育结束后,细胞可在接下来的 7 小时内用于多种实验。细胞也可在 4 °C 下保存最多 7 小时。
结果
采用本方案分离的心房肌细胞可用于通过膜片钳技术表征这些细胞的电生理特性。可将KB溶液中的心房肌细胞等分试样加入标准膜片钳装置的记录室,并用适合实验人员所需记录类型的溶液进行灌流。采用本方案分离的心房肌细胞最适合在分离后6-7小时内用于电生理研究。以下展示了本实验室的代表性膜片钳数据。
图4展示了使用上述方案制备的正常小鼠心房肌细胞分离示例。分离的心房肌细胞通常长约100 µm,宽约10 µm,具有清晰的横纹。分离心房肌细胞的电容通常为40–70 pF。
图5A 展示了使用穿孔膜片钳技术在电流钳模式下记录心房肌细胞动作电位(AP)的一个示例,该方法我们此前已有描述6,19,20。典型心房肌细胞AP参数的汇总数据见表6。具体而言,我们提供了静息膜电位(RMP)、最大上升速率(Vmax)、超射值(OS)以及复极化50%(APD50)、70%(APD70)和90%(APD90)时的动作电位持续时间的测量汇总数据(表6)。动作电位也可在全细胞记录构型下进行记录14。用于记录动作电位的灌流液和移液管液成分分别列于表7和表8。
图5B 展示了一类典型的 Na+ 电流(INa) 采用膜片钳技术的全细胞构型记录。这些电流的记录采用从-120 mV钳制电位出发,施加持续50 ms、范围从-100 mV至+10 mV的电压阶跃。我们已描述了记录INa 此前6,14,20. 摘要 INa IV 关系也已呈现于 图5B用于记录 I 的溶液Na 呈现在 表7 和 表8.
图 5C 展示了一类典型的Ca2+ 电流(ICa,L) 采用膜片钳全细胞构型记录。这些电流的记录采用从-70 mV的钳制电位出发,以250 ms的电压钳阶跃在-60至+80 mV范围内进行。可用于测量ICa,L 此前已有描述17,18,20. 摘要 ICa,L IV 关系也已呈现于 图 5C用于记录 I 的溶液Ca,L 可获取 表7 和 表8.
图5D 展示了一类典型的 K 家族+ 电流(IK在全细胞膜片钳技术构型下记录的电流。这些电流的记录采用我们此前描述过的方法,从-80 mV的保持电位出发,施加持续500 ms、范围从-120 mV至+80 mV的电压钳制阶跃。6,14总I的汇总IV关系K 也在此展示 图5D用于记录 I 的溶液K 可获取 表7 和 表8.
采用这些方法记录动作电位以及主要的离子电流家族,包括 Na+、Ca2+ 和 K+ 电流(如上图所示),可使研究人员在多种实验条件下严格探究心房肌细胞的电生理特性。本实验室 routinely 采用这些技术研究正常小鼠、心脏病小鼠模型以及基因修饰小鼠中心房肌细胞的电生理特性6,14,17,18,19,20。
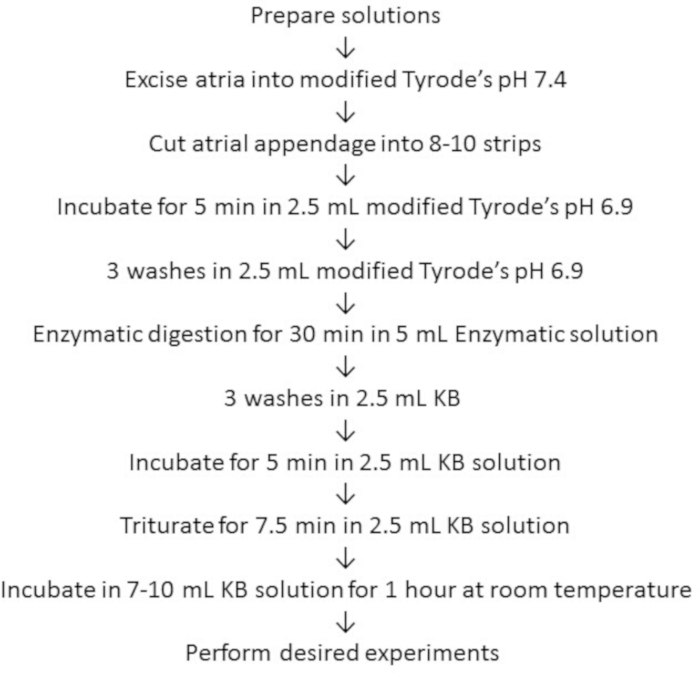
图1:心房肌细胞分离方案流程图。 本方案用于分离心房肌细胞的各步骤概要。请点击此处查看此图的放大版本。

图2:心房肌细胞分离的实验装置与解剖工具。(A)小口径火焰抛光移液管(左),开口直径为1 mm,用于解剖后组织的转移;中等口径火焰抛光移液管(中),开口直径为3 mm,用于分离过程中组织条的转移;大口径火焰抛光移液管(右),开口直径为5 mm,用于消化后心房组织的吹打分散。(B)心房肌细胞分离的实验装置。请点击此处查看该图的放大版本。
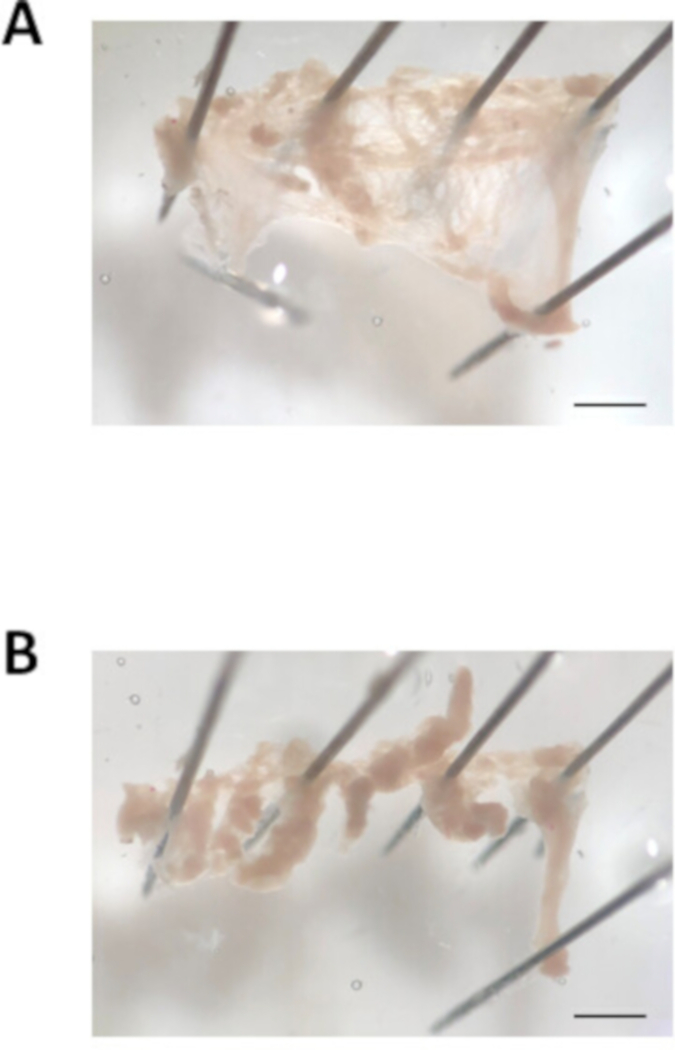
图3:心耳解剖图像。(A)将切除的心耳打开并固定后拍摄的代表性明场图像。(B)将心耳切割成宽度约为0.7 mm的组织条后的代表性明场图像。比例尺 = 1 mm。请点击此处查看该图的放大版本。
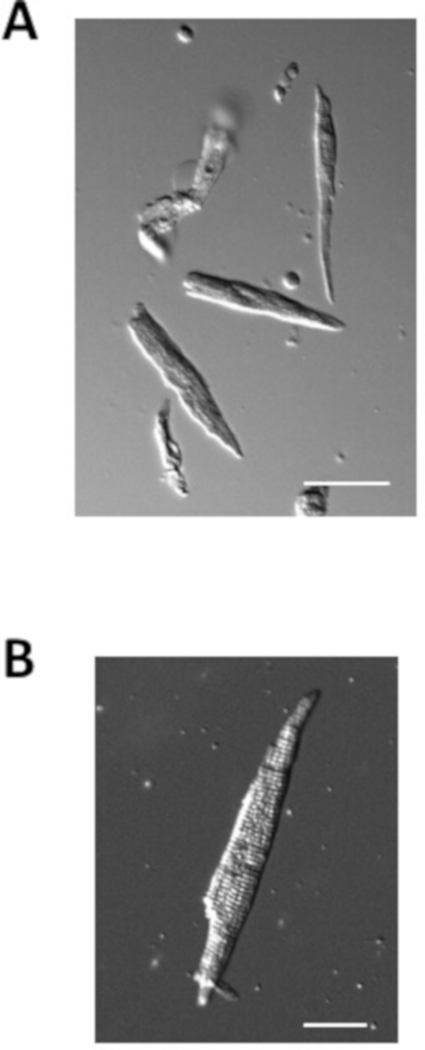
图4:分离的心房肌细胞图像。(A)分离后立即拍摄的心房肌细胞明场图像。比例尺 = 50 μm。(B)单个分离心房肌细胞的明场图像。比例尺 = 100 μm。请点击此处查看该图的放大版本。

图5:从分离的心房肌细胞获得的代表性膜片钳数据。(A)来自单个分离心房肌细胞的动作电位(AP)刺激记录。AP参数的汇总见表6。向移液管溶液中加入两性霉素B(200 μg/mL)以通透细胞膜。(B)来自单个分离心房肌细胞的代表性INa记录(左)及其汇总的INa电流-电压(IV)曲线(右)。记录INa时,在改良Tyrode溶液中加入硝苯地平(10 μM)以阻断ICa,L。(C)来自单个分离心房肌细胞的代表性ICa,L记录(左)及其汇总的ICa,L IV曲线(右)。(D)来自单个分离心房肌细胞的代表性IK记录(左)及其汇总的IK IV曲线(右)。用于记录上述各电流的溶液列于表7和表8中。汇总IV曲线数据来自一只15周龄雄性野生型C57Bl/6小鼠分离的10个心房肌细胞的平均测量值。请点击此处查看本图的放大版本。
| 储存用 Tyrode's 溶液 pH 6.9 | 储存用 Tyrode's 溶液 pH 7.4 | |
| 化学成分 | 单位:mM | 单位:mM |
| NaCl | 140 | 140 |
| KCl | 5.4 | 5.4 |
| KH2PO4 | 1.2 | 1.2 |
| HEPES | 5 | 5 |
| 终体积 | 500 mL | 1 L |
| 用 NaOH 调至最终 pH | 6.9 | 7.4 |
表1:储存用Tyrode’s溶液(pH 7.4)和储存用Tyrode’s溶液(pH 6.9)。 可预先配制并储存于4 °C、最长可保存2个月的储存用Tyrode’s溶液(pH 7.4和pH 6.9)的组成成分。
| 化学物质 | 浓度(mM) |
| K-glutamate | 100 |
| K-aspartate | 10 |
| KCl | 25 |
| KH2PO4 | 10 |
| MgSO4 | 2 |
| Taurine | 20 |
| Creatine | 5 |
| EGTA | 0.5 |
| Glucose | 20 |
| HEPES | 5 |
| BSA | 0.10% |
| 终体积 | 1 L |
| 用 KOH 调节至最终 pH | 7.2 |
表2:改良KB溶液。 改良KB溶液的配制方法,可预先配制,分装后于-20 °C保存,最多可保存2个月。
| 化学物质 | 用量 |
| 葡萄糖 | 5.55 mM |
| MgCl2 | 1 mM |
| CaCl2 | 1.8 mM |
| 储存液 Tyrode's 溶液,pH 7.4 | 50 mL |
| 肝素 | 250 μL |
表3:含葡萄糖、镁、钙和肝素的改良Tyrode’s溶液(pH 7.4)。用于心房组织解剖的改良Tyrode’s溶液(pH 7.4)的组成。该溶液应现配现用,并在使用前置于35 °C水浴中保温。
| 化学物质 | 用量 |
| 葡萄糖 | 18.5 mM |
| 牛磺酸 | 49.96 mM |
| BSA | 15 mg |
| CaCl2 | 0.066 mM |
| Stock Tyrode's pH 6.9 | 15 mL |
表4:含葡萄糖、牛磺酸、BSA 和低钙的改良 Tyrode's 溶液(pH 6.9)。用于心房肌细胞分离的改良 Tyrode's 溶液(pH 6.9)的成分。该溶液应现配现用,并在使用前置于 35 °C 水浴中保温。
| 化学物质 | 用量 |
| 胶原酶 | 1,064 U |
| 弹性蛋白酶 | 9 U |
| 蛋白酶溶液 | 65.2 μL |
| 改良Tyrode's液,pH 6.9 | 5 mL |
表5:酶解溶液。用于酶解消化心房组织条的酶解溶液成分。该溶液应现配现用,并在使用前置于35 °C水浴中保温。
| 参数 | 平均值 |
| RMP (mV) | -74.2 ± 0.7 |
| Vmax (V/s) | 144.6 ± 5.8 |
| OS (mV) | 71.9 ± 3.0 |
| APD50 (ms) | 11.1 ± 1.7 |
| APD70 (ms) | 23.0 ± 4.6 |
| APD90 (ms) | 54.7 ± 7.8 |
表6:分离的心房肌细胞动作电位参数汇总。 数据以均值 ± 标准误表示,n = 10,来源于一只15周龄雄性野生型C57Bl/6小鼠的心房肌细胞。
| 钾电流与动作电位 | 钠电流 | 钙电流 | |
| 化学物质 | 单位:mM | 单位:mM | 单位:mM |
| NaCl | 140 | 5 | |
| KCl | 5.4 | ||
| MgCl2 | 1 | 1 | 1 |
| CaCl2 | 1 | 1 | 2 |
| HEPES | 10 | 10 | 10 |
| Glucose | 5.5 | 5.5 | 5.5 |
| CsCl | 130 | ||
| TEA-Cl | 5.4 | 145.5 | |
| pH | 用 NaOH 调至 7.4 | 用 CsOH 调至 7.4 | 用 CsOH 调至 7.4 |
表7:膜片钳实验中使用的台氏液成分。 用于记录分离心房肌细胞动作电位(APs)、钠电流(INa)、L型钙电流(ICa,L)和钾电流(IK)的台氏液成分。
| 钾电流与动作电位 | 钠电流 | 钙电流 | |
| 化学成分 | 单位为 mM | 单位为 mM | 单位为 mM |
| NaCl | 5 | 5 | 5 |
| KCl | 140 | ||
| MgCl2 | 1 | 1 | 1 |
| CaCl2 | 0.2 | 0.2 | 0.2 |
| HEPES | 10 | 10 | 10 |
| EGTA | 5 | 5 | |
| Mg-ATP | 4 | 5 | 4 |
| Na-GTP | 0.3 | 0.3 | 0.3 |
| Na-phosphocreatine | 6.6 | 6.6 | |
| CsCl | 130 | 135 | |
| BAPTA | 5 | ||
| pH | 7.2(用 KOH 调节) | 7.2(用 CsOH 调节) | 7.2(用 CsOH 调节) |
表8:膜片钳实验中使用的细胞内电极内液成分。 用于记录分离的心房肌细胞动作电位、INa、ICa,L 和 IK 的电极填充液成分。
讨论
本实验室常规使用该方案分离小鼠心房肌细胞,用于膜片钳实验,以研究不同类型的心血管疾病、基因突变或药理化合物对心房肌细胞电生理特性的影响。尽管该方法具有高度可重复性,但从分离的心房肌细胞获得的数据质量仍取决于分离过程的质量。此外,在心房肌细胞分离后重新引入钙离子会导致部分细胞因钙超载悖论而死亡16。因此,采用此方法分离出具有活性且高质量的心房肌细胞需要在分离过程的多个环节进行实践和优化。一旦优化完成,采用该方法分离的全部心房肌细胞中,估计有70–90%既具备钙耐受性,又呈杆状形态。下文将讨论需要最多实践和优化的关键步骤。
解剖的速度和效率将直接影响分离细胞的质量。应留出足够时间,确保完全去除心房组织中的血液,并将组织切成大小相近的条状。切除心耳、将组织切成条状并转移至第一管pH 6.9的改良Tyrode液的过程应耗时约5分钟。然而,若此步骤耗时过长,组织质量可能受到影响。
在同一组织分离过程内以及不同心脏之间,将组织条切割成均匀的大小也非常重要。如果组织条过大或过小,或在同一分离过程中大小不一,则可能在酶消化和吹打过程中引发问题。这是因为较小的组织条会被更彻底地消化,而较大的组织条则消化不足。同时,还必须考虑所研究的基因型和疾病状态,因为不同动物之间的耳廓状心房 appendage 大小可能存在差异。例如,肥厚性心脏的心房耳状突较健康心脏更大,因此与正常大小的心脏相比,实验者可在肥厚性心脏中切割出更多的组织条。因此,优化切割后组织条的尺寸,并将这些尺寸标准一致地应用于每个个体的心房耳状突,将显著提高不同实验条件下心肌细胞分离的可重复性。
酶消化与机械解离之间的精细平衡是采用本方案成功分离心房肌细胞的关键。若在酶消化过程中组织未能充分涡旋震荡,则组织解离效果将受到影响。 消化过程中,单个组织条容易发生聚集和粘连,这会限制酶消化的效果。若振荡过于频繁或剧烈,可能损伤心房组织,导致分离出的细胞不可存活。在吹打过程中,从组织条中机械分离心房肌细胞是该方法分离心房肌细胞最关键的步骤,需要反复练习并优化。若吹打过于轻柔,细胞得率会较低;反之,若吹打过于剧烈,则会分离出大量不可存活的肌细胞,从而影响膜片钳实验所获数据的质量。此外,心房组织的组成也可能影响细胞分离效果。例如,若组织存在纤维化,可能需要对酶消化和吹打步骤进行调整。因此,有必要投入时间掌握吹打技术,以获得适用于膜片钳实验的高质量细胞。
与所有实验技术一样,该技术也存在局限性。该方法需要经过练习,才能可重复地分离出具有活性且高质量的心肌细胞,而细胞质量将直接影响后续使用这些细胞所开展实验的可行性。此外,该方法属于终末性操作,通过此方法分离得到的心房心肌细胞仅能在分离当天使用。本实验室通常在细胞分离后的6-7小时内使用这些细胞。
分离心房心肌细胞的这一方法具有多种应用。例如,该方法可经修改后用于从其他物种(包括人心房组织活检样本)中分离心房肌细胞(以及心脏成纤维细胞)。此外,与心脏逆行灌流法相比,采用这种组织块法分离心房肌细胞的一个优势在于,该方法可进一步调整以分离心脏其他区域的心肌细胞,例如窦房结或心房心肌的其他特定区域,甚至涵盖整个房室以上区域。本实验室利用心房心肌细胞进行膜片钳实验,以记录动作电位和离子电流,但该方法的应用并不局限于这一技术。例如,分离的肌细胞可用于在多种实验条件下研究钙瞬变和收缩力的变化。心房心肌细胞还可用于免疫荧光研究,以检测特定蛋白质或结构的定位。因此,该方法具有高度的灵活性和广泛的应用前景。
披露
作者无任何利益冲突需要披露。
致谢
本研究获得了加拿大卫生研究院(MOP 93718,142486)和加拿大心脏与中风基金会向 R.A. Rose 提供的运营资助。 H.J. Jansen 获得了基拉姆博士后奖学金。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1,2-双(2-氨基苯氧基)乙烷-N,N,N',N'-四乙酸 98% | Sigma | A4926-1G | |
| 腺苷-5'-三磷酸二钠盐水合物 BioXtra, > 99%,源自微生物 | Sigma | A7699-1G | |
| 腺苷-5'-三磷酸镁盐 > 95%,细菌 | Sigma | A9187-1G | |
| 来自链霉菌的两性霉素B ~80%(HPLC),粉末 | Sigma | A4888-500 MG | |
| 牛血清白蛋白 | Sigma | A3059-50G | |
| 氯化钙二水合物 | Sigma | 223506-500G | |
| 氯化铯 ReagentPlus, 99.9% | Sigma | 289329-100G | |
| 一水合氢氧化铯 > 99.5% 痕量金属基准 | Sigma | 562505-1KG | |
| 胶原酶 II | 沃辛顿生化公司 | LS004176 | |
| 无水肌酸 | Sigma | C0780 | |
| D-(+)-葡萄糖 | Sigma | G7021-1KG | |
| DL-天冬氨酸钾盐 | Sigma | A2025-100G | |
| 弹性蛋白酶悬浮液 | 沃辛顿生化公司 | LS002279 | |
| 乙二醇双(2-氨基乙基醚)四乙酸 >97.0% | Sigma | E4378-25G | |
| 鸟苷-5'-三磷酸钠盐水合物 > 95%(HPLC),粉末 | Sigma | G8877-250MG | |
| 肝素 10 000 USP U/10 mL | 山德士 | 10750 | |
| HEPES > 99.5%(滴定) | Sigma | H3375-500G | |
| L-谷氨酸钾盐一水合物 > 99%(HPLC),粉末 | Sigma | G1501-500G | |
| 硫酸镁 | Sigma | M2643-500G | |
| 硝苯地平 > 98%(HPLC),粉末 | Sigma | N7634-1G | |
| 磷酸肌酸二钠盐水合物(酶法),约98% | Sigma | P7936-5G | |
| 氯化钾 ACS 级试剂,99.0-100.5% | Sigma | P3911-500G | |
| 氢氧化钾 | EM Science | PX1480-1 | |
| 磷酸二氢钾 | EMD | PX1565-1 | |
| 灰链霉菌蛋白酶,XIV 型 >3.5 单位/毫克 固体,粉末 | Sigma | P5147-1G | |
| 氯化钠 ACS 级试剂, > 99.0% | Sigma | S9888-2.5KG | |
| 氢氧化钠,颗粒,97+%,ACS试剂 | Sigma | 221465-500G | |
| Sylgard 184 硅胶弹性体试剂盒 | World Precision Instruments Inc | SYLG184 | |
| 牛磺酸 | Sigma | T0625-100G | |
| 氯化四乙铵 > 98%(滴定) | Sigma | T2265-100G |
参考文献
- Bartos, D. C., Grandi, E., Ripplinger, C. M. Ion Channels in the Heart. Comprehensive Physiology. 5 (3), 1423-1464 (2015).
- Heijman, J., Voigt, N., Nattel, S., Dobrev, D. Cellular and molecular electrophysiology of atrial fibrillation initiation, maintenance, and progression. Circulation Research. 114 (9), 1483-1499 (2014).
- Jalife, J. Mechanisms of persistent atrial fibrillation. Current Opinion in Cardiology. 29 (1), 20-27 (2014).
- Nattel, S., Maguy, A., Le Bouter, S., Yeh, Y. H. Arrhythmogenic ion-channel remodeling in the heart: heart failure, myocardial infarction, and atrial fibrillation. Physiological Reviews. 87 (2), 425-456 (2007).
- Jansen, H. J., et al. Atrial structure, function and arrhythmogenesis in aged and frail mice. Scientific Reports. 7, 44336(2017).
- Jansen, H. J., et al. Distinct patterns of atrial electrical and structural remodeling in angiotensin II mediated atrial fibrillation. Journal of Molecular and Cellular Cardiology. 124, 12-25 (2018).
- Nerbonne, J. M., Kass, R. S. Molecular physiology of cardiac repolarization. Physiological Reviews. 85 (4), 1205-1253 (2005).
- Grant, A. O. Cardiac ion channels. Circulalation: Arrhythmia and Electrophysiology. 2 (2), 185-194 (2009).
- Schmitt, N., Grunnet, M., Olesen, S. P. Cardiac potassium channel subtypes: new roles in repolarization and arrhythmia. Physiological Reviews. 94 (2), 609-653 (2014).
- Lomax, A. E., Kondo, C. S., Giles, W. R. Comparison of time- and voltage-dependent K+ currents in myocytes from left and right atria of adult mice. American Journal of Physiology Heart and Circulatory Physiology. 285 (5), H1837-H1848 (2003).
- Li, D., Zhang, L., Kneller, J., Nattel, S. Potential ionic mechanism for repolarization differences between canine right and left atrium. Circ Res. 88 (11), 1168-1175 (2001).
- Wirth, K. J., Knobloch, K. Differential effects of dofetilide, amiodarone, and class lc drugs on left and right atrial refractoriness and left atrial vulnerability in pigs. Naunyn Schmiedebergs Archives of Pharmacology. 363 (2), 166-174 (2001).
- Qi, A., Yeung-Lai-Wah, J. A., Xiao, J., Kerr, C. R. Regional differences in rabbit atrial repolarization: importance of transient outward current. American Journal of Physiology. 266 (2 Pt 2), H643-H649 (1994).
- Jansen, H. J., et al. NPR-C (Natriuretic Peptide Receptor-C) Modulates the Progression of Angiotensin II-Mediated Atrial Fibrillation and Atrial Remodeling in Mice. Circulation: Arrhythmia and Electrophysiology. 12 (1), e006863(2019).
- Mangoni, M. E., Nargeot, J. Genesis and regulation of the heart automaticity. Physiological Reviews. 88 (3), 919-982 (2008).
- Voigt, N., Pearman, C. M., Dobrev, D., Dibb, K. M. Methods for isolating atrial cells from large mammals and humans. Journal of Molecular and Cellular Cardiology. 86, 187-198 (2015).
- Springer, J., et al. The natriuretic peptides BNP and CNP increase heart rate and electrical conduction by stimulating ionic currents in the sinoatrial node and atrial myocardium following activation of guanylyl cyclase-linked natriuretic peptide receptors. Journal of Molecular and Cellular Cardiology. 52 (5), 1122-1134 (2012).
- Hua, R., Adamczyk, A., Robbins, C., Ray, G., Rose, R. A. Distinct patterns of constitutive phosphodiesterase activity in mouse sinoatrial node and atrial myocardium. PLoS One. 7 (10), e47652(2012).
- Egom, E. E., et al. Impaired sinoatrial node function and increased susceptibility to atrial fibrillation in mice lacking natriuretic peptide receptor C. Journal of Physiology. 593 (5), 1127-1146 (2015).
- Hua, R., et al. Effects of Wild-Type and Mutant Forms of Atrial Natriuretic Peptide on Atrial Electrophysiology and Arrhythmogenesis. Circulation: Arrhythmia and Electrophysiology. 8 (5), 1240-1254 (2015).
- Krishnaswamy, P. S., et al. Altered parasympathetic nervous system regulation of the sinoatrial node in Akita diabetic mice. Journal of Molecular and Cellular Cardiology. 82, 125-135 (2015).
- Mackasey, M., et al. Natriuretic peptide receptor C (NPR-C) protects against angiotensin II mediated sinoatrial disease in mice. JACC Basic to Translational Science. , (2018).
- Azer, J., Hua, R., Vella, K., Rose, R. A. Natriuretic peptides regulate heart rate and sinoatrial node function by activating multiple natriuretic peptide receptors. Journal of Molecular and Cellular Cardiology. 53 (5), 715-724 (2012).
重印与许可
