本实验方案的目的是通过使用颜料改变跳蛛及其他微小节肢动物的体色图案,以研究与性选择、性食同类、捕食、警戒色或动物体色领域的其他相关科学问题。
本文内容
摘要
摘要
在行为生态学领域,许多实验旨在研究在性选择和捕食背景下,鲜艳性状的进化意义。研究方法多种多样,但大多涉及使用不同着色剂改变个体的色彩图案。这类技术已在多种脊椎动物类群中应用,尤其在鸟类中较为普遍,但由于难以有效地对小型生物的体色进行操控,该方法在无脊椎动物中的发展仍较为有限。为改变无脊椎动物的外观,科学家通常通过调节光照环境,滤除特定波长的光来实现。然而,这种方法不仅影响目标表型性状,还会改变个体及其周围环境的整体外观。本文通过将此前应用于色彩丰富的鸟类的技术进行微型化改进,提出了一种操控小型节肢动物颜色的方法,并以具有代表性但研究较少的物种——色彩鲜艳的跳蛛为例进行说明。
引言
动物通常具有复杂的色彩图案,用于求偶、争斗或抵御捕食。这些性状可能向接收者传递有关信号发出者的信息,例如作为配偶的个体质量1、作为竞争者的打斗能力2,或作为猎物的可食性3。为了理解鲜艳性状的适应性意义,研究人员设计了多种涉及颜色操控的实验。一些研究者在行为实验中向接收者呈现彩色诱饵刺激,如模型4,5,6,7,8、照片9或视频10,11,12。另一些研究者,尤其是使用无脊椎动物的研究者,通过操控光照环境来改变活体个体的颜色外观13,14,15,16,17。尽管这些操控方法颇具创意,但其缺点在于可能排除了重要的自然行为,和/或对目标性状以外的其他方面产生影响。在鸟类等大型脊椎动物中,研究人员通常直接在活体动物上进行颜色操控(参见Hill和McGraw,2006年的综述18)。个体羽毛或喙部曾被直接使用记号笔2,19,20,21,22,23,24、常用于染发剂的含过氧化氢染料25,26,27,或包括指甲油在内的各种涂料28进行着色。在无脊椎动物中,直接在活体动物上操控颜色图案的研究相对较少,但仍为理解颜色的功能与进化提供了重要见解29,30,31,32,33,34,35,36,37,38,39。甚至节肢动物的研究也倾向于偏向体型较大的类群,因其更易于操作和涂色,导致极小型物种的颜色图案研究相对不足。
本文介绍了一种针对体型极小动物类群开发的精细色彩操控技术。具体而言,该方法是在显微镜下对雄性跳蛛的面部颜色进行人为调控,以研究此类鲜艳特征在配偶选择和性食同类现象中的重要性。本研究以采集自美国亚利桑那州凤凰城的Habronattus pyrrithrix作为模式物种(图1)。我们此前已在其他文献中发表了部分采用此类技术的实验结果38,39,但本文对相关方法的描述较以往更为详尽,旨在为其他研究者重复或将其改进应用于其他微小型动物类群提供可操作的参考。此类实验方案有望为那些色彩可与最具代表性的鸟类相媲美却长期被忽视的动物类群开辟新的研究途径。
方案
1. 仪器设备准备
- 选择合适的颜料。
- 为了成功应用,应使用快干且能用稀释剂轻松调节质地的颜料。已成功使用的產品包括可用水稀释的非防水眼线笔,以及可用珐琅稀释剂稀释的珐琅漆(材料表)。
- 在为蜘蛛上色时,需注意大多数物种的头胸部具有坚硬的外骨骼,而柔软的腹部则常因摄食而伸展和收缩40。
- 珐琅漆会在着色表面形成坚固、硬化的涂层;因此,应将其应用于外骨骼的坚硬部位(例如头胸部、腿部、须肢)。这类珐琅涂层对蜘蛛腹部效果较差,因为当腹部因摄食而改变形状时,涂层会剥落。
- 相比之下,眼线笔不会形成硬化涂层,而是渗入体表的着色鳞片中;因此,可用于硬质和软质身体部位(包括蜘蛛腹部)。
注:在接下来的步骤中,将介绍一种最精细的技术,即 为蜘蛛的面部和须肢上色;此处使用珐琅漆,因其可选颜色多样,是适用性最广的方法。
- 在活体动物上测试颜料之前,如有可能,应先使用紫外-可见反射光谱仪测量颜料的光谱特性(将颜料简单涂于纸张或其他表面),以确保光谱中不存在人类不可见但研究物种可能可见的非预期紫外峰。
- 使用连接相机和计算机的解剖显微镜,以便更轻松地拍摄操作结果图像,用于记录并提高实验可重复性(材料表)。
- 打开显微镜、计算机以及处理相机输入信号的软件。
- 选择最终拍照时所需的放大倍数。
- 将一根昆虫装片针或小钉子(钉头朝外)插入一块非硬化油泥球中(大小约如葡萄)。(待上色的活体蜘蛛将在下一步3.1中临时固定在该针的钉头上)。将油泥球和针置于显微镜下,调整物镜,使其大致聚焦于针头位置(即蜘蛛将被固定的位置)。
- 确保物镜与操作者眼睛的距离合适,并且在绘画过程中相机不会遮挡视野(例如当相机安装在目镜之一时,可能会影响深度感知)。
- 将蜘蛛转移至一个干净的带扣盖塑料小瓶中(约12 dram,内部无蛛网或死亡猎物)。
- 准备固定和绘画设备。
- 另取一根极细的昆虫装片针插入一块非硬化油泥球中(除步骤1.2.3中使用的针外),并将其放置在显微镜左侧(适用于右利手者)。该针将在绘画过程中用于轻柔调整蜘蛛腿部和须肢的位置(视需要而定)。
- 准备一小块吸水纸(如纸巾)、一张白打印纸、待用颜料(此处为珐琅漆)、每种颜色专用的稀释剂容器(每种颜色一个,另备一个保持透明洁净的容器)、每种颜色专用的微型画笔(见材料表),以及一支仅用于清洁稀释剂的微型画笔,所有物品有序地放置在显微镜右侧(适用于右利手者)。
- 使用牙签,在一个敞口塑料皿(如小型培养皿或瓶盖)中滴加一滴颜料,并加入稀释剂(例如用小注射器添加)。用牙签将两者混合至合适稠度(颜料完全均质化但不过于稀薄),并通过微型画笔在白打印纸上试涂进行测试。
注:在某些情况下,若颜料干燥较快,可将其配制时液体比例略高于理想浓度,并将画笔浸泡在稀释剂容器中,待后续使用(步骤4)。 - 在打印纸的一角滴加一颗豌豆大小的水性胶水(见材料表)。
注:此步骤必须作为准备工作的最后一步,并且下一步需立即进行,以防胶水干燥。
2. 麻醉蜘蛛
- 将蜘蛛放入小瓶中,用手掌盖住瓶口以防其逃逸,缓慢加入 CO2 气体,直至蜘蛛的第三对步足伸展至 180 度。
- 根据物种的平均体型及个体差异,CO2 暴露时间约为 20 秒至 1.5 分钟。我们发现,在 H. pyrrithrix 中,第三对步足的伸展是判断麻醉程度是否合适的可靠指标,但这一指标可能因物种而异。若首次将这些技术应用于其他物种,应先在少量标本上测试麻醉效果,以评估其反应。
- 应使用尽可能少的 CO2 以达到所需的麻醉水平。尽管此处描述的短暂麻醉未导致任何死亡(且行为上与未麻醉蜘蛛无明显差异),但实验中所有个体(包括假处理对照组)应接受相同程度的麻醉。
- 加入 CO2 后应保持小瓶密闭,以维持蜘蛛的麻醉状态;因此,在计算蜘蛛暴露于 CO2 的总时间时,应包含此密闭时间。
- 一旦将蜘蛛从小瓶中取出并开始进行颜色操控,其完全麻醉状态可持续约 1 至 2 分钟;因此,应迅速完成以下步骤(第 3–6 节)。由于时间窗口有限,建议在尝试对活体蜘蛛进行染色前,先使用死亡标本练习该染色方法(用于熟练操作)。
3. 在显微镜下安装蜘蛛标本
- 在显微镜视野内已准备好的油泥上的固定针或钉子头部,涂上极少量的胶水。
注意:使用能够固定蜘蛛的最小胶量,以确保:i)胶水不会过多导致蜘蛛从针头滑落;ii)蜘蛛苏醒后能够自行挣脱。 - 将麻醉后的蜘蛛轻轻从样品瓶中滑出,使其仰面朝上置于桌面上。
注意:由于蜘蛛的腹部较为柔软,操作时应避免敲击或使蜘蛛掉落至桌面,以防造成损伤。 - 将带有胶水的针头轻轻按压在蜘蛛的胸板(即蜘蛛腿部与身体连接的中央区域),使蜘蛛在轻微压力下略微弹起并伸展其腿部。为更精确地控制施加的压力,可用双手握住油泥,并将双手稳固地贴紧桌面以保持稳定。
- 将油泥重新放置于显微镜下,调整位置使待涂绘区域朝上并处于焦点范围内。
4. 给蜘蛛上色
- 在将画笔接触蜘蛛之前,先评估油漆的稠度。
- 重新测试油漆的稠度(若刷子保存在稀释剂中,需用吸水纸擦拭),必要时再次调整,并始终先在打印纸上试涂,以控制刷毛所含油漆的用量。
- 用右手操作,并在显微镜下观察,将画笔笔尖移入视野范围内,再次确认笔毛上未沾有过多颜料;若颜料过多,需先在打印纸上擦拭掉部分。
- 在蜘蛛上测试油漆的稠度。
- 用画笔触碰蜘蛛,接触面积应为需要涂覆的最大区域。这将帮助绘画者判断油漆的稠度和用量是否合适(即.,当涂料缓慢且轻微地渗入蜘蛛的毛发/鳞片时)。
- 如果未涂上颜料,将刷子浸入颜料中,然后返回步骤4.1重复该操作。
- 如果油漆迅速渗入并溢出到不应涂漆的区域,且假设溢出量极少,个体仍可继续参与实验,则用刷子在吸水纸上擦拭干净,返回步骤4.1,重复该操作程序。
注意:此类液体泄漏无法修复。如果泄漏的液体接触到螯肢或眼睛,或其他可能对个体造成致命或毒性影响的部位,应考虑立即将蜘蛛放入冷冻机中实施安乐死,防止其苏醒,并将其排除在实验之外。
- 用画笔触碰蜘蛛,接触面积应为需要涂覆的最大区域。这将帮助绘画者判断油漆的稠度和用量是否合适(即.,当涂料缓慢且轻微地渗入蜘蛛的毛发/鳞片时)。
- 按照步骤 4.1 和 4.2 为所有需要着色的区域上色。
- 若需绘制蜘蛛的面部,应使用左手持超细针固定其前足和须肢(以避免妨碍画笔操作)。此操作最好在显微镜下进行,以防止损伤蜘蛛的附肢。此外,若绘制蜘蛛面部,且根据所用画笔的不同,可考虑先绘制面部两侧,再处理两眼之间的中央区域;可通过将画笔与蜘蛛面部保持平行,并利用毛细作用,使两侧已绘制区域自然连接。
注意:绘制蜘蛛面部时,应先绘制靠近惯用手的一侧,然后在显微镜下旋转黏土球(连同固定其上的蜘蛛),以绘制另一侧,最后绘制中间部分。 - 绘制须肢或步足时,若使用硬化型颜料(如珐琅漆),务必避免触碰任何关节,并确保不要将颜料涂到雄性个体的精子传递器官上(位于须肢远端节段的腹面)。
- 若需绘制蜘蛛的面部,应使用左手持超细针固定其前足和须肢(以避免妨碍画笔操作)。此操作最好在显微镜下进行,以防止损伤蜘蛛的附肢。此外,若绘制蜘蛛面部,且根据所用画笔的不同,可考虑先绘制面部两侧,再处理两眼之间的中央区域;可通过将画笔与蜘蛛面部保持平行,并利用毛细作用,使两侧已绘制区域自然连接。
5. 拍摄蜘蛛的照片
- 将物镜切换至相机模式。
- 使用计算机软件拍摄图像,确保所选的放大倍数与显微镜上设定的放大倍数一致,以便添加比例尺。
6. 将蜘蛛从大头针或钉子上释放
- 当蜘蛛开始移动时,握住金属丝,使蜘蛛的前腿接触其存放管。
- 让蜘蛛自行脱离,如有需要,可轻轻倾斜金属丝,帮助蜘蛛从干燥的胶水中挣脱。
- 如果蜘蛛在涂色完成前苏醒,应让其至少恢复15分钟后再进行一次麻醉。若进行了重复麻醉,需确保所有实验组接受相同程度的麻醉处理(包括假处理个体,如适用)。
注意:蜘蛛在操作后似乎能迅速恢复正常的活动行为(< 15分钟),但我们建议在将蜘蛛用于行为学实验前,统一静置休息12小时。
- 如果蜘蛛在涂色完成前苏醒,应让其至少恢复15分钟后再进行一次麻醉。若进行了重复麻醉,需确保所有实验组接受相同程度的麻醉处理(包括假处理个体,如适用)。
7. 蜘蛛行为的分析
- 比较未经处理、假处理和已处理个体的行为,以评估应用方法可能带来的毒性(毒性可能因特定颜料类型、颜色、施用区域和研究物种而异)。可比较的相关行为包括活动频率、活动类型、执行特定行为的成功率(例如捕食猎物)等。
- 在实验设计中使用假处理蜘蛛(例如将颜料施用于不可见区域,或在相同区域施用中性颜色的颜料),以便仅改变个体的颜色,同时控制其他因素(例如 操作时间、气味、表面质地等)。
注意:若对步足或须肢进行上色,需考虑此举可能干扰感觉毛(蜘蛛的步足和须肢上普遍存在感觉毛,参见 Foelix 201040);在此情况下,假处理雄性个体应在相同区域施用中性颜色颜料作为对照。 - 在开发新方法时,应将上色蜘蛛与未经处理的蜘蛛进行比较,以评估颜色处理后的个体是否仍表现正常行为。
- 在实验设计中使用假处理蜘蛛(例如将颜料施用于不可见区域,或在相同区域施用中性颜色的颜料),以便仅改变个体的颜色,同时控制其他因素(例如 操作时间、气味、表面质地等)。
8. 测量颜料处理后受试对象颜色操控的反射特性
- 在实施安乐死后(蜘蛛在实验结束后或专门为此目的实施安乐死,见下文注释),使用标准便携式紫外-可见分光光度计(材料表)测量颜色操控区域的光谱特性,尤其适用于直径大于1 mm的区域。
- 对于较小区域,建议使用定制的显微分光光度计(通过显微镜引导的紫外-可见分光光度计)进行更简便且精确的测量;但需注意显微镜的光学系统会滤除紫外光,因此测量范围仅限于人眼可见波长范围(参见Taylor等,201141)。
- 当颜色操控区域极小且需要获取紫外反射数据时 ,可使用市售的紫外-可见显微分光光度计,尽管此类设备成本较高(参见Taylor等,201442)。
注释:紫外-可见分光光度计的光源含有紫外线,可能对动物(包括人类)的眼睛造成伤害,因此光谱测量必须在动物安乐死后进行,而不能仅在麻醉状态下操作。对于使用珐琅漆涂装的蜘蛛,可在实验结束后进行测量,因为油漆不会脱落(见下文代表性结果)。对于水性漆,其颜色可能在数天或数周后逐渐褪色,因此可在此类蜘蛛参与实验的同时,牺牲一组相同处理的个体用于测量,以获取反映实验中实际颜色操控情况的数据。报告所用颜料的光谱特性,有助于其他研究人员在无法获得相同具体颜料产品的情况下,重复相同的颜色操控实验。
结果
颜色操控的有效性
使用这些技术,可实现不同程度的颜色操控,包括完全隐藏颜色或降低、增强其强度。这一点从光谱反射率的图像和测量结果中均可明显看出图2, 图3,以及 图4)。在此我们展示经过色彩处理的雄性 Habronattus pyrrithrix 与自然红脸雄性相比。使用紫外-可见分光光度计(见材料表)测量光谱特性,该仪器可精确测量直径小至1 mm的着色区域。测量时以漫反射白板标准参比(见材料表)。
在极少数情况下(108只使用黑色眼线笔1(见材料表)涂抹面部的雄性蜘蛛中有5只),水溶性眼线笔在蜘蛛面部一周或两周后开始脱落。这种情况未在另一种品牌的眼线笔(眼线笔2;见材料表)中观察到。在这两种情况下,蜘蛛的饲养笼每周均喷水三至五次。不同的饲养条件可能影响水性颜料的磨损情况。所有经过处理的雄性蜘蛛(n=221)所使用的珐琅质颜料均保持完整,即使存活超过6个月的个体亦如此。
颜色操控的潜在毒性
应避免将颜料涂到蜘蛛的眼睛上,以免遮挡其视线,同时也应避免涂到螯肢、口器及其他开口处,以及可能的其他柔软身体部位,以防其误食或中毒。还应注意不要将颜料涂到带有感觉毛的关节或部位(如腿部和须肢),以免限制其活动能力或损害感觉系统。然而,如果确有必要对这些身体区域进行染色处理,或对可能存在的细微负面影响存有疑虑,则最好将颜料应用于所有处理组的个体。这样可避免无意中对某些个体的感觉系统造成偏向某一处理组的干扰。例如,在一项使用经处理雄性的实验中 图4,目的是增加和减少雄性在求偶过程中显示的红色斑块数量。由于一些雄性的自然红色面部会被灰色指甲油涂料覆盖(以减少显示的红色量),因此对于需要保持红色面部的其他雄性,我们使用与灰色面部雄性相同的涂料将其天然红色面部重新涂成红色。类似地,由于我们希望在某些雄性的须肢上增加红色斑块以提高显示的红色斑块总量,因此使用灰色涂料覆盖其他雄性须肢,以确保所有雄性在这一敏感区域均被施加涂料(参见 图4)。尽管这种方法更理想,但并不总是可行。例如,在另一项实验中,使用黑色眼线笔去除了红色着色,使其具有与雄性个体下层表皮相同的光谱特性,同时保持雄性其他颜色的自然状态不变(图2)。对于自然外观的雄性个体,为控制产品可能产生的气味或整体毒性影响,在其头胸部背侧前中眼后方区域(该区域对雌性而言并不明显可见)涂抹了等量的眼线膏。然而,涂料涂抹位置的不同可能对蜘蛛产生不同的影响。因此,为评估涂料涂抹方式或位置对蜘蛛行为完整性可能产生的细微差异,我们比较了两种类型雄性个体在与研究假设相关的情境下(即与配偶选择和性食同类行为相关)的行为表现。将雄性两两一组置于雌性个体存在的情况下,利用线性混合效应模型(使用R软件包lme4中的lmer函数)比较它们开始活动的延迟时间、开始求偶的延迟时间以及求偶行为的总持续时间。43 在 R 3.5.2 版本中44 以雌性个体身份作为随机效应,并采用最大似然准则获取 p 值。在此情况下,所有比较均显示处理间无显著差异(见表1),因此得出结论:本研究未引入偏向任一处理类别的偏差。
无论何种情况,当处理组之间差异极小(图4),或仅使用假处理个体时(图2 和 图3),研究人员应评估所使用的颜料对模式物种的影响,并确保其行为仍保持相似且具有生态相关性。可通过记录数据尽可能评估可能的毒性效应,例如比较处理个体与未处理个体之间的活动速率。我们将在 图4 中使用珐琅颜料标记的蜘蛛与在其他条件完全相同情况下未处理的雄性个体进行了比较。具体而言,将雄性单独引入雌性笼中,比较其离开小瓶的延迟时间、求偶启动延迟时间以及求偶频率(均在交配前,且在被攻击或同类相食前)。结果未发现显著差异(采用与上述类似的线性混合效应模型),因此我们得出结论:经标记的雄性蜘蛛行为表现自然(表2)。
最后需要指出的是,在实验中(通常为雌性)捕食了经过体色 manipulation 的雄性个体的蜘蛛从未表现出任何不良影响。蜘蛛通过体外消化的方式分解猎物,通常会将表皮上被染色的区域残留下来。然而,若将此方法应用于其他会摄食经过体色 manipulation 动物的系统时,应评估其潜在的毒性风险。
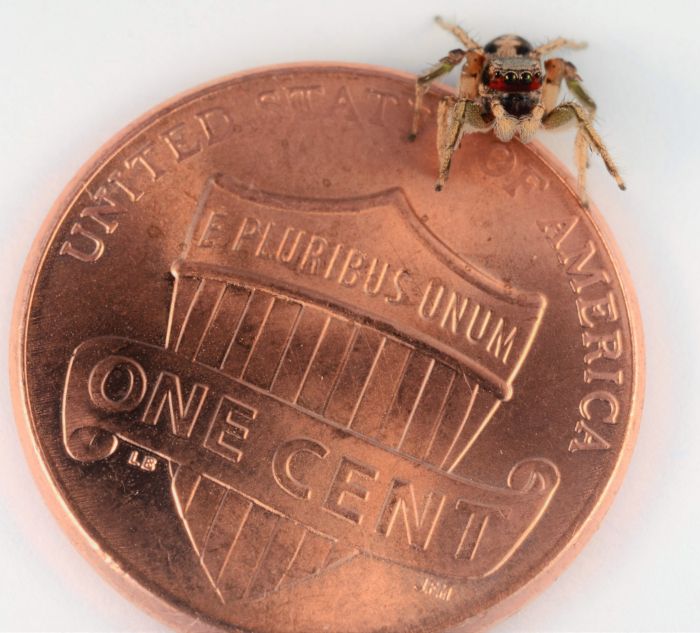
图 1.成年雄性Habronattus pyrrithrix,展示其有色体区的微小尺寸。 摄影:Lyle Buss。 请点击此处查看此图的放大版本。

图 2.用于遮盖Habronattus pyrrithrix红色面部色斑的实验性颜色操控。 (A)颜色操控前完整的天然红色面部色斑。(B)使用黑色眼线笔1遮盖天然红色色斑后,同一雄性个体的面部颜色表现。(C)天然红色面部、 underlying 天然黑色角质层以及用黑色眼线笔2涂抹后的红色面部的代表性反射光谱。修改自 Taylor 和 McGraw 201339。请点击此处查看此图的放大版本。

图 3. 用于减少雄性Habronattus pyrrithrix面部红色斑块大小和红度的实验性体色操控方法。 (A)体色操控前完整的红色面部斑块。(B)对同一雄性个体,在面部前部涂抹稀释的黑色眼线笔(Urban Decay),并在红色斑块边缘涂抹未稀释的黑色眼线笔,以减小红色区域的面积。(C)假处理对照组雄性(n = 21)与体色操控雄性(n = 21)的平均光谱曲线,与种群平均值(n = 57)以及先前研究中10只体色最暗淡雄性个体41的比较。图改编自 Taylor 等人 2014 年38。 请点击此处查看此图的放大版本。

图4. 用于修改雄性红色面部斑块颜色的实验性色彩操控 哈氏跳蛛(Habronattus pyrrithrix) 哈氏跳蛛(Habronattus pyrrithrix) 雄性涂抹有(A)红色,(B)红色和灰色,以及(C) 灰色搪瓷漆覆盖其天然的红色头部及天然乳白色的须肢。D未处理雄性个体(n = 9)与面部涂覆红色珐琅漆的雄性个体(n = 9)的平均光谱曲线。通过在蜘蛛面部涂抹更亮的红色,我们有效增强了其面部红色色度。由于珐琅漆完全覆盖了底层鳞片,颜色亦可被彻底改变,灰色珐琅漆即为一例。E) 在本实验中,选择红色和灰色的搪瓷漆进行总亮度(这些蜘蛛可见波长范围内的总反射率)匹配。D 和 E 图中 Y 轴刻度的差异是由于测量纸张上颜色样本时采用了不同的技术(如样品距离和测量区域大小)。E)与蜘蛛体表颜色的直接测量结果对比D). 请点击此处以查看此图的放大版本。
| N | 因变量 | p | t | 红脸 | ±SE | 黑脸 | ±SE | nFID |
| 202b | 雄性离开食盘的延迟时间 | 0.35 | -0.93 | 140.0 | 23.9 | 109.8 | 23.9 | 102 |
| 179c | 雄性求偶延迟时间 | 0.74 | 0.33 | 983.4 | 127.1 | 1031.0 | 126.5 | 95 |
| 204a | 雄性求偶努力程度 | 0.52 | 0.63 | 181.2 | 24.4 | 203.0 | 24.4 | 102 |
| 204a | 首次攻击前的雄性求偶努力程度 | 0.41 | 0.68 | 89.0 | 15.7 | 97.5 | 15.7 | 102 |
表1. 雄性面部颜色处理对行为的影响(使用黑色眼线笔绘制 vs. 假处理)(图2)。列出各模型结构,以及每组处理的平均估计值(秒,±标准误)。N = 雄性数量,p 和 t = 雄性处理的 p 值与 t 值,nFID = 随机效应“雌性个体身份”的水平数。a在进行的104次雄性实验中,成功记录了102次,共观察到204只独特的雄性个体。b2只雄性在尚未离开培养皿前即被雌性捕食。c25只雄性在尚未开始求偶前即被雌性捕食。
| N | 因变量 | p | t | 未处理 | ±SE | 染色处理 | ±SE |
| 32a | 雄性离开培养皿的延迟时间 | 0.87 | -0.17 | 380.8 | 143.1 | 345.4 | 152.4 |
| 31b | 雄性求偶延迟时间 | 0.93 | -0.09 | 502.6 | 105.8 | 488.1 | 116.6 |
| 31b | 雄性求偶努力程度 | 0.74 | -0.33 | 2324.3 | 455.0 | 2102.1 | 484.4 |
| 31b | 首次攻击前的雄性求偶努力程度 | 0.68 | 0.42 | 1495.1 | 450.8 | 1770.1 | 479.9 |
表2. 红色或灰色搪瓷漆涂抹雄性面部颜色对行为的影响(n = 15, 图4) 与 未处理的雄性个体(n = 17)。列出各模型结构,以及每种处理组的平均估计值(秒,±标准误)。N = 雄性个体数量,p 和 t = 雄性处理的 p 值和 t 值。 a17只未处理的雄性个体与实验中所有染色雄性个体的一个子集(n = 221)进行比较。具体而言,它们与15只染色雄性个体进行比较(5只红色(图 2A),5个红色和灰色(图2B)和5个灰色(图2C)在相同情境(存在雌性个体的情况下)和相同时段内进行测试。这一点至关重要,因为未经处理的雄性个体是在实验后期(2018年8月和9月)接受测试的,此时正值其自然繁殖季节的末期,雄性个体通常活动性较低。保持其他所有变量一致,使我们能够在排除其他干扰因素的前提下,比较不同涂色处理之间的差异。 b一只雄性(全灰色)在尚未向雌性求偶前即被同类相食。
讨论
本文展示了可以使用化妆品和瓷漆等染料有效调控节肢动物微小身体部位的颜色。
实现这种精细操作的首要关键步骤是能够固定小型动物,因为这些动物通常无法用手固定。在此,为了能够对跳蛛的面部等敏感区域进行涂绘,我们使用 CO2 对个体进行麻醉,并将其固定在一根细针的针头上。这种方法使得操作者可以在靠近跳蛛眼睛的区域进行工作,相比蜘蛛在清醒状态下(在涂绘过程中显微镜光源会照射到其面部)所可能经历的情况,其所受的应激更小。
该方法还需要准备高质量的微型画笔,以及最关键的——合适的着色物质。在不产生溢出的同时实现良好覆盖度,其最关键的步骤在于获得合适的稠度。因此,着色物质应易于用稀释剂稀释,并可通过干燥实现增稠。可使用不同类型的颜料;本文展示的结果采用水溶性(非防水型)眼线笔和珐琅漆。非防水型眼线笔的优势在于与水混合后容易液化。但其缺点是颜料浓度会被稀释(这种稀释可能符合或不符合实验需求,参见图3)。珐琅漆的稠度可通过添加珐琅稀释剂轻松调节,同时仍能提供完全覆盖。然而,这一特性可能不利于保留被涂覆部位(如毛发或鳞片)的原有结构。此外,珐琅漆具有持久性。其缺点是,在使用过程中以及干燥前,珐琅漆及其稀释剂会释放出强烈的气味。关于着色物质的另一个难点是,难以找到具有合适色调和光谱特性的产品。例如,很难获得可用于与黑色眼线笔并用的红色眼线笔,因为市售眼线笔通常偏粉而非正红。同样,也很难找到不含闪粉的化妆粉(或颜料)(闪粉有时仅在显微镜下才可见)。许多化妆品还会反射紫外光,虽然实验人员无法察觉,但对所研究的动物而言可能非常明显。
与其他方法相比,通过将着色剂直接涂抹到节肢动物体表来操控其体色,具有一定的优势和局限性。该方法的主要局限在于,无法完全排除某些细微毒性的可能性。然而,可以通过对所有处理组别均施加颜料处理,避免对某一处理组引入偏差;或者通过实验验证颜料涂抹是否干扰了目标行为。根据本文所展示的方法,我们已收集到充分证据表明,颜料处理所导致的负面影响可忽略不计甚至不存在(表1 和 表2)。该方法的主要优势在于,能够针对微小的色斑进行精确操控,使其颜色“消失”(见 图2)、变暗淡(图3)或更明亮(图4),且该操作独立于个体整体体色及其所处环境。这与最常见的替代方法形成对比,后者通常通过改变光照条件来调整整个个体及其周围环境的视觉外观。事实上,即使并未刻意操控光照条件,若光照环境不合适,也可能成功操控颜色却观察不到或仅观察到有限的行为效应39。因此,测量并考虑实验所处的光环境(即测量辐照度)至关重要,并应确保其尽可能接近自然光照条件(例如在圈养条件下使用模拟自然光的全光谱灯泡)。总体而言,借助微型画笔和显微镜,本实验方案可实现比以往大多数用于无脊椎动物的直接着色方法更为精确的微小色斑操控。以往大多数研究使用的实验动物其色斑相对跳蛛的面部而言较大(例如,操控蝴蝶翅膀颜色29,34,35、成年半翅目昆虫(“真虫”)30,36 和蝗虫31 的身体,或体型相对较大的狼蛛腿部32,33,37)。本文所述方法为研究那些因体型微小而长期被忽视的分类群中丰富多样的色斑提供了新的可能性。
类似的技术也可应用于其他能够被固定或麻醉的节肢动物,并且适用于油漆不会影响个体活动能力或健康的部位(即应排除关节、用于正常运动的结构如刚毛或跗节吸盘、口器,以及其他孔隙如呼吸结构等区域)。这些技术还可进一步扩展,以包括更广泛的染料、颜料和化妆品,这些材料在市场上广泛可得。
最后,这些精细的技术不仅可以用于操控小型生物的颜色,还可以用于操控相对较大生物体的图案(例如条纹)。这将有利于众多研究人员,他们可将我们的方法应用于自身关于性选择、通讯、警戒性猎物信号以及其他动物利用颜色的情境的研究中。
披露
作者无任何利益冲突需要披露。
致谢
本研究得到了美国国家科学基金会(IOS-1557867,授予LAT)、佛罗里达自然历史博物馆以及佛罗里达大学昆虫学与线虫学系的资金支持。 本文的出版费用部分由佛罗里达大学开放获取出版基金资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| CO2 钢瓶 | AirGas (Radnor, PA) | #CD 50 | 用于麻醉蜘蛛 |
| 瓷漆稀释剂 | Testors (Vernon Hills, IL) | 75611792569 | 用于稀释瓷漆 |
| 哑光瓷漆 | Testors (Vernon Hills, IL) | 红色:075611115009,黑色:075611114903,白色:075611116808 | 可用瓷漆稀释剂稀释 |
| 体视显微镜 | Zeiss (Jena, Germany) | stemi 508 | 用于精确涂绘小面积区域 |
| 显微镜相机 | Zeiss (Jena, Germany) | Axiocam 105 color | 用于记录操作前后的图像 |
| 显微镜相机软件 | Zeiss (Jena, Germany) | Zen 2 blue edition | 用于处理操作前后拍摄的图像 |
| 液体眼线笔,色号 “Perversion” | Urban Decay (Costa Mesa, CA) | (已停产) | 非防水眼线笔,可用水稀释;眼线笔 2 |
| MegaLiner 液体眼线笔,黑色 | WetnWild (Los Angeles, CA) | SKU# 871A | 非防水眼线笔,可用水稀释;眼线笔 1 |
| 微型画笔 | MicroMark (Berkeley Heights, NJ) | #84648 | 用于精确涂绘小面积区域 |
| 不固化油泥 | Van Aken International Claytoon (North Charleston, SC) | 18165 | 用于插入小钉或昆虫针,并灵活调整其角度 |
| 小型钉子或昆虫固定针 | BioQuip (Rancho Dominguez, CA) | #1208B7 | 用于粘附蜘蛛,以及在涂绘区域前方移动蜘蛛’的附肢 |
| 小型塑料容器,例如带盖昆虫采集管的管盖 | BioQuip (Rancho Dominguez, CA) | #8912 | 用于将颜料与稀释剂混合至合适稠度 |
| 小型注射器 | Fisher Scientific | 1482910F | 用于转移少量瓷漆稀释剂 |
| 光谱纯白色标准板 | Labsphere Inc. (North Sutton, NH) | WS-1-SL | 用于测量颜色的光谱特性 |
| 紫外-可见分光光度计 | Ocean Optics (Dunedin, FL) | USB 2000(分光光度计)配 PX-2(光源) | 用于测量颜色的光谱特性 |
| 水溶性学生胶水 | Elmer's (High Point, NC) | #E304 | 用于将蜘蛛固定在钉子或针上 |
| 木制牙签 | Up&Up, Target Corporation (Minneapolis, MN) | #253-05-0125 | 用于转移瓷漆液滴 |
参考文献
- Baeta, R., Faivre, B., Motreuil, S., Gaillard, M., Moreau, J. Carotenoid trade-off between parasitic resistance and sexual display: an experimental study in the blackbird (Turdus merula). Proceedings of the Royal Society B: Biological Sciences. 275 (1633), 427-434 (2008).
- Ninnes, C. E., Webb, S. L., Andersson, S. Are red bishops red enough? On the persistence of a generalized receiver bias in Euplectes. Behavioral Ecology. 28 (1), 117-122 (2017).
- Mappes, J., Marples, N., Endler, J. A. The complex business of survival by aposematism. Trends in Ecology & Evolution. 20 (11), 598-603 (2005).
- Clark, D. L., Macedonia, J. M., Rowe, J. W., Kamp, K., Valle, C. A. Responses of Galápagos Lava Lizards (Microlophus bivittatus) to Manipulation of Female Nuptial Coloration on Lizard Robots. Herpetologica. 73, (2017).
- Finkbeiner, S. D., Briscoe, A. D., Reed, R. D. Warning signals are seductive: Relative contributions of color and pattern to predator avoidance and mate attraction in Heliconius butterflies. Evolution. 68 (12), 3410-3420 (2014).
- Moore, M. P., Martin, R. A. Intrasexual selection favours an immune-correlated colour ornament in a dragonfly. Journal of Evolutionary Biology. 29 (11), 2256-2265 (2016).
- Nokelainen, O., Valkonen, J., Lindstedt, C., Mappes, J. Changes in predator community structure shifts the efficacy of two warning signals in Arctiid moths. Journal of Animal Ecology. 83 (3), 598-605 (2014).
- Yewers, M. S. C., Pryke, S., Stuart-Fox, D. Behavioural differences across contexts may indicate morph-specific strategies in the lizard Ctenophorus decresii. Animal Behaviour. 111, 329-339 (2016).
- Baldwin, J., Johnsen, S. The male blue crab, Callinectes sapidus, uses both chromatic and achromatic cues during mate choice. The Journal of Experimental Biology. 215 (7), 1184(2012).
- Künzler, R., Bakker, T. C. M. Female preferences for single and combined traits in computer animated stickleback males. Behavioral Ecology. 12 (6), 681-685 (2001).
- Landmann, K., Parzefall, J., Schlupp, I. A sexual preference in the Amazon molly, Poecilia formosa. Environmental Biology of Fishes. 56 (3), 325-331 (1999).
- Nelson, X. J., Jackson, R. R. A predator from East Africa that chooses malaria vectors as preferred prey. PLoS ONE. 1 (1), e132(2006).
- Bajer, K., Molnár, O., Török, J., Herczeg, G. Female European green lizards (Lacerta viridis) prefer males with high ultraviolet throat reflectance. Behavioral Ecology and Sociobiology. 64 (12), 2007-2014 (2010).
- Gerlach, T., Sprenger, D., Michiels, N. K. Fairy wrasses perceive and respond to their deep red fluorescent coloration. Proceedings of the Royal Society B: Biological Sciences. 281 (1787), 20140787(2014).
- Girard, M. B., Elias, D. O., Kasumovic, M. M. The role of red coloration and song in peacock spider courtship: insights into complex signaling systems. Behavioral Ecology. 29 (6), 1234-1244 (2018).
- Lim, M. L. M., Land, M. F., Li, D. Sex-specific UV and fluorescence signals in jumping spiders. Science. 315 (5811), 481(2007).
- Xu, M., Fincke, O. M. Ultraviolet wing signal affects territorial contest outcome in a sexually dimorphic damselfly. Animal Behaviour. 101, 67-74 (2015).
- Hill, G. E., McGraw, K. J. Bird coloration: function and evolution. 2, Harvard University Press. 137-200 (2006).
- Chaine, A. S., Roth, A. M., Shizuka, D., Lyon, B. E. Experimental confirmation that avian plumage traits function as multiple status signals in winter contests. Animal Behaviour. 86 (2), 409-415 (2013).
- Hasegawa, M., Arai, E. Experimentally reduced male ornamentation increased paternal care in the Barn Swallow. Journal of Ornithology. 156 (3), 795-804 (2015).
- Lawes, M. J., Pryke, S. R., Andersson, S., Piper, S. E. Carotenoid status signaling in captive and wild red-collared widowbirds: independent effects of badge size and color. Behavioral Ecology. 13 (5), 622-631 (2002).
- Quesada, J., et al. Plumage coloration of the blue grosbeak has no dual function - A test of the armament-ornament model of sexual selection. The Condor. 115 (4), 902-909 (2013).
- Safran, R. J., et al. The maintenance of phenotypic divergence through sexual selection: An experimental study in barn swallows Hirundo rustica. Evolution. 70 (9), 2074-2084 (2016).
- Tringali, A., Bowman, R. Plumage reflectance signals dominance in Florida scrub-jay, Aphelocoma coerulescens, juveniles. Animal Behaviour. 84 (6), 1517-1522 (2012).
- Jerónimo, S., et al. Plumage color manipulation has no effect on social dominance or fitness in zebra finches. Behavioral Ecology. 29 (2), 459-467 (2018).
- Hill, G. E. Plumage coloration is a sexually selected indicator of male quality. Nature. 350 (6316), 337-339 (1991).
- Wolfenbarger, L. L. Female mate choice in northern cardinals: is there a preference for redder males? The Wilson Bulletin. 111 (1), 76-83 (1999).
- ten Cate, C., Verzijden, M. N., Etman, E. Sexual imprinting can induce sexual preferences for exaggerated parental traits. Current Biology. 16 (11), 1128-1132 (2006).
- Davis, A. K., Cope, N., Smith, A., Solensky, M. J. Wing color predicts future mating success in male monarch butterflies. Annals of the Entomological Society of America. 100 (2), 339-344 (2007).
- Exnerová, A., et al. Avoidance of aposematic prey in European tits (Paridae): learned or innate? Behavioral Ecology. 18 (1), 148-156 (2006).
- Forsman, A., Appelqvist, S. Visual predators impose correlational selection on prey color pattern and behavior. Behavioral Ecology. 9 (4), 409-413 (1998).
- Hebets, E. A. Subadult experience influences adult mate choice in an arthropod: exposed female wolf spiders prefer males of a familiar phenotype. Proceedings of the National Academy of Sciences. 100 (23), 13390(2003).
- Hebets, E. A., Cuasay, K., Rivlin, P. K. The role of visual ornamentation in female choice of a multimodal male courtship display. Ethology. 112 (11), 1062-1070 (2006).
- Kingsolver, J. G. Experimental manipulation of wing pigment pattern and survival in western white butterflies. The American Naturalist. 147 (2), 296-306 (1996).
- Morehouse, N. I., Rutowski, R. L. In the eyes of the beholders: Female choice and avian predation risk associated with an exaggerated male butterfly color. The American Naturalist. 176 (6), 768-784 (2010).
- Prudic, K. L., Skemp, A. K., Papaj, D. R. Aposematic coloration, luminance contrast, and the benefits of conspicuousness. Behavioral Ecology. 18 (1), 41-46 (2006).
- Rutledge, J. M., Miller, A., Uetz, G. W. Exposure to multiple sensory cues as a juvenile affects adult female mate preferences in wolf spiders. Animal Behaviour. 80 (3), 419-426 (2010).
- Taylor, L. A., Clark, D. L., McGraw, K. J. Natural variation in condition-dependent display colour does not predict male courtship success in a jumping spider. Animal Behaviour. 93, 267-278 (2014).
- Taylor, L. A., McGraw, K. J. Male ornamental coloration improves courtship success in a jumping spider, but only in the sun. Behavioral Ecology. 24 (4), 955-967 (2013).
- Foelix, R. Biology of spiders. Third edn. , Oxford University Press. (2010).
- Taylor, L. A., Clark, D. L., McGraw, K. J. Condition dependence of male display coloration in a jumping spider (Habronattus pyrrithrix). Behavioral Ecology and Sociobiology. 65 (5), 1133-1146 (2011).
- Taylor, L. A., Maier, E. B., Byrne, K. J., Amin, Z., Morehouse, N. I. Colour use by tiny predators: jumping spiders show colour biases during foraging. Animal Behaviour. 90, 149-157 (2014).
- Bates, D., Maechler, M., Bolker, B., Walker, S. Fitting Linear Mixed-Effects Models Using lme4. Journal of Statistical Software. 67 (1), 1-48 (2015).
- R Core Team. R: A language and environment for statistical computing. , R Foundation for Statistical Computing. Vienna, Austria. https://www.R-project.org (2018).
重印与许可
