本文提供了一种研究不同肽和蛋白质的天然形式、前纤维状结构及成熟淀粉样纤维与来自不同组织及脑区的分离线粒体之间相互作用的实验方案。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
方法文章
淀粉样纤维与脑线粒体的相互作用及其对线粒体膜的通透化作用
* These authors contributed equally
本文内容
摘要
摘要
越来越多的证据表明,膜通透化(包括线粒体等内部膜结构)是神经退行性疾病中淀粉样蛋白聚集体诱导毒性的常见特征和主要机制。然而,目前大多数关于膜破坏机制的研究均基于磷脂模型系统,直接针对生物膜水平上发生的事件的研究仍较为罕见。本文介绍了一种用于研究淀粉样蛋白在膜水平毒性机制的模型。在分离线粒体时,采用密度梯度介质以获得髓鞘污染最少的线粒体样品。在确认线粒体膜完整性后,利用大鼠脑线粒体作为体外生物模型,研究源自α-突触核蛋白、牛胰岛素和鸡卵清溶菌酶(HEWL)的淀粉样纤维与其相互作用。结果表明,纤维状组装体处理脑线粒体可导致不同程度的膜通透化及活性氧(ROS)含量升高。这提示淀粉样纤维与线粒体膜之间的相互作用具有结构依赖性。研究表明,淀粉样纤维的生物物理特性及其与线粒体膜的特异性结合可能为上述现象提供部分解释。
引言
与淀粉样蛋白相关的疾病,称为淀粉样变性疾病,是一大类由不溶性蛋白质沉积物出现在不同组织和器官中所定义的疾病1,2。其中,神经退行性疾病是最常见的类型,其特征是蛋白质聚集体出现在中枢或周围神经系统中2。尽管已有多种机制被提出参与淀粉样蛋白聚集体的毒性作用3,但越来越多的证据表明,细胞膜的破坏和通透化是淀粉样蛋白病变的主要机制4,5。除了质膜外,细胞内细胞器(例如线粒体)也可能受到影响。
有趣的是,越来越多的证据表明,线粒体功能障碍在包括阿尔茨海默病和帕金森病在内的神经退行性疾病的发病机制中起着关键作用6,7。与此相关,大量研究报告指出,淀粉样β肽、α-突触核蛋白、亨廷顿蛋白以及与肌萎缩侧索硬化症相关的突变SOD1蛋白会结合并在线粒体上聚集8,9,10,11。目前认为,淀粉样蛋白聚集体引起膜通透化的机制可能是通过形成离散的通道(孔道),或通过类似去垢剂的非特异性机制实现的5,12,13。值得注意的是,这些结论大多基于使用磷脂模型体系的研究报告,而直接针对生物膜中发生事件的研究则较为罕见。显然,这些人工脂双层并不一定能够反映生物膜的内在特性 ,包括线粒体膜在内的生物膜均为结构异质性体系,由多种多样的磷脂和蛋白质组成。
在本研究中,采用从大鼠脑组织中分离的线粒体作为体外生物学模型,用于检测由α-突触核蛋白(作为一种淀粉样变性蛋白)、牛胰岛素(作为与注射部位局部淀粉样变性相关的天然人胰岛素具有显著结构同源性的模型肽)以及鸡卵清溶菌酶(HEWL;作为研究淀粉样聚集的常用模型蛋白)所形成的淀粉样纤维的破坏作用。通过观察线粒体基质中苹果酸脱氢酶(MDH)的释放以及线粒体活性氧(ROS)水平的升高,进一步研究淀粉样纤维与线粒体膜之间的相互作用及其可能造成的膜损伤。
访问受限。请登录或开始试用以查看此内容。
方案
所有动物实验均按照德黑兰大学医学科学机构动物护理与使用委员会(IACUC)的规定进行。为尽量减少对大鼠的痛苦和不良影响,实验中通过 sharpening guillotine 刀片并采用坚定而迅速的切割动作来实现。
1. 脑组织匀浆与线粒体分离
注意:线粒体分离所用的所有试剂均按照 Sims 和 Anderson14 的方法配制。
- 线粒体分离缓冲液的制备
- 配制 100 mM Tris-HCl 溶液:称取 0.605 g Tris-HCl,加入约 40 mL 去离子水(DW)于烧杯中溶解。将溶液转移至 50 mL 容量瓶中,加去离子水定容至 50 mL。
- 配制 10 mM EDTA 溶液:称取 0.202 g EDTA,加入约 40 mL 去离子水于烧杯中溶解。将溶液转移至 50 mL 容量瓶中,加去离子水定容至 50 mL。
注意:两种溶液均可在 4 °C 下保存至少 4 周。 - 配制 Tris-HCl/EDTA/蔗糖储备液:在烧杯中加入 30 mL 100 mM Tris-HCl 溶液和 30 mL 10 mM EDTA 溶液。称取 32.86 g 蔗糖,在磁力搅拌下加入烧杯中。待蔗糖完全溶解后,将溶液转移至 100 mL 容量瓶中,加去离子水定容至 100 mL。
注意:该溶液可在 4 °C 下保存最多 3 天。 - 配制分离缓冲液(IB):将 100 mL Tris-HCl/EDTA/蔗糖储备液加入约 150 mL 去离子水中。滴加 0.1 M HCl 调节 pH 至 7.4,再加去离子水定容至 300 mL。
- 用分离缓冲液配制 15%(v/v)密度梯度介质:将 1.5 mL 密度梯度介质加入 8.5 mL 冷的分离缓冲液中。
- 配制 10 mg/mL 牛血清白蛋白(BSA)溶液:称取 20 mg 无脂肪酸 BSA,溶于约 1.5 mL 去离子水中(2 mL 离心管中),再加去离子水定容至 2 mL,冰上保存备用。
注意:步骤 1.1.4–1.1.6 中的溶液需在进行线粒体分离当天新鲜配制,并全程冰上保存。
- 大鼠脑组织的获取
注意:雄性大鼠(150–200 g)的断头与脑组织取出操作参照 Sims 和 Anderson14 的方法进行。- 将一个 30 mL 烧杯置于冰桶中,并向其中加入 10 mL 冷的分离缓冲液(IB)。
- 使用小型动物断头器断头,并在断头后 1 分钟内取出脑组织,以尽量减少线粒体特性的退化。
- 迅速将脑组织转移至含有冷分离缓冲液的烧杯中。
- 脑组织匀浆与线粒体制备
注意:线粒体组分的分离参照 Sims 和 Anderson14 所述方法,并结合先前报道的若干修改15。操作过程中需迅速进行,并始终将所有材料置于冰上。- 用 30 mL 分离缓冲液(IB)清洗组织 2 次,转移至含有冷分离缓冲液的烧杯中,用剪刀将脑组织精细剪碎。
- 加入 10 倍体积的预冷分离缓冲液(每只大鼠脑组织约 10 mL IB)。
- 将组织悬液转移至 20 mL 冷的 Dounce 匀浆器中。
- 使用电动研杵进行 9 次上下匀浆。
注意:每完成 3 次匀浆后,将混合物置于冰上静置约 30 秒,以确保匀浆液保持低温。 - 将匀浆液转移至预冷的 10 mL 离心管中,在 4 °C 条件下以 1,300×g 离心 3 分钟。
- 小心弃去上清液,将上清液转移至另一预冷的 10 mL 离心管中,在 4 °C 条件下以 21,000×g 离心 10 分钟。
- 弃去上清液,用移液枪轻轻搅拌,将沉淀重悬于冷的 15% 密度梯度介质溶液中(每只脑组织 5 mL)。
- 在固定角转子中,以 30,700×g、4 °C 离心 5 分钟,采用慢加速(从 0 rpm 升至 500 rpm 用时 45 秒,随后正常加速)和无刹车减速。此步骤应形成两个明显的条带(图 1A,左图)。
- 使用巴斯德移液管移除梯度顶部聚集的清晰条带(主要含髓鞘)。然后尽可能移除覆盖在条带 2 上方的密度梯度介质溶液,避免损失条带 2 中富集的线粒体组分。
注意:条带 2 含有突触和非突触来源的线粒体。 - 在轻轻搅拌下向线粒体组分中加入 8 mL 分离缓冲液(IB)。
- 在 4 °C 条件下以 16,700×g 离心 10 分钟,小心弃去上清液,保留底部松散的沉淀。
- 用移液枪尖端轻轻搅拌,向离心管中加入 1 mL 10 mg/mL 无脂肪酸 BSA 溶液,再用分离缓冲液定容至每只脑组织 5 mL。
- 在 4 °C 条件下以 6,900×g 离心 10 分钟,应形成致密沉淀(图 1A,右图)。
- 弃去上清液,将线粒体沉淀轻轻重悬于分离缓冲液中,分装至 0.5 mL 离心管中,液氮中保存备用。
2. 蛋白质浓度测定
注意:蛋白质浓度采用 Lowry 等人16所述方法测定。
- Lowry 法测定所需溶液的配制
- 配制溶液 A:称取 0.4 g NaOH 和 2 g Na2CO3,溶于 80 mL 去离子水(DW)中,然后将溶液转移至 100 mL 容量瓶中,加去离子水定容至 100 mL。
- 配制溶液 B:称取 0.1 g 酒石酸钠钾和 0.05 g CuSO4,溶于 8 mL 去离子水(DW)中,然后将溶液转移至 10 mL 容量瓶中,加去离子水定容至 10 mL。
注:溶液 A 和溶液 B 在 4 °C 下可稳定保存长达 6 个月。 - 配制溶液 C:将 0.5 mL 福林酚试剂加入 7.5 mL 去离子水(DW)中。
注:溶液 C 需现用现配,并避光保存直至使用。 - 通过将 0、20、40、60、80、100 和 120 µL 的 1 mg/mL BSA 溶液分别与适量去离子水(DW)混合,配制成终体积为 1000 µL、终浓度分别为 0、20、40、60、80、100 和 120 µg/mL 的 BSA 标准品。
- 蛋白质浓度测定
注:为提高准确性,建议本步骤设三个重复。- 向 96 孔板的每个孔中加入 50 µL 标准品溶液或线粒体匀浆液,随后加入 45 µL 溶液 A。然后将酶标板置于 50 °C 水浴中孵育 10 分钟。
- 加入 5 µL 溶液 B,并在室温(RT)下避光孵育 10 分钟。
- 加入 150 µL 溶液 C,并将酶标板置于 50 °C 水浴中孵育 10 分钟。
- 将酶标板放入酶标仪中,于 650 nm 波长处测定各标准品和线粒体悬液的吸光度值。随后根据标准曲线计算线粒体样品中的蛋白质含量。
3. 线粒体膜完整性测定
注意:通过在加入Triton X-100破坏膜结构前后测定分离线粒体中苹果酸脱氢酶(MDH)的活性,来确认线粒体膜的完整性。
- 用预冷的IB缓冲液将线粒体匀浆稀释至1 mg/mL,并分装到两个1.5 mL离心管中(通常每管195 μL线粒体)。
- 向其中一管加入5 µL 20% (v/v) Triton X-100(用去离子水稀释),作为酶最大活性的阳性对照;向另一管加入5 µL去离子水作为对照,随后用搅拌器混匀。
- 将离心管置于30 °C的恒温水浴中孵育10分钟。
- 在4 °C条件下,使用固定角转子以16,000 × g 离心15分钟,使线粒体沉淀。
- 小心收集上清液,用于后续采用标准分光光度法测定线粒体苹果酸脱氢酶(MDH)活性,具体方法见下节描述。
- 按下式计算线粒体膜完整性:
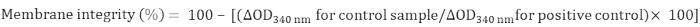
4. MDH 活性测定
注意:MDH 活性测定采用 Sottocasa 等人所述的分光光度法进行17。
- MDH 活性测定所需溶液的制备
- 制备 50 mM Tris-HCl 溶液(pH = 7.5):在去离子水中配制 7.9 mg/mL 的 Tris-HCl 溶液,并在 25 °C 下用 1.0 M NaOH 将 pH 调至 7.5。
- 制备 50 mM 草酰乙酸溶液:使用草酰乙酸在 Tris-HCl 中配制 6.6 mg/mL 的溶液。
注意:该溶液在溶解后不稳定,应于使用前立即配制。 - 制备 10 mM β-NADH 溶液:使用 β-NADH 在 Tris-HCl 中配制 7.81 mg/mL 的溶液。
- MDH 活性测定
注意:1.0 mL 反应体系中的最终测定浓度为 50 mM Tris-HCl、5 mM 草酰乙酸和 0.1 mM β-NADH。- 将分光光度计设定为 25 °C 和 340 nm。向空白比色皿中加入 890 µL Tris-HCl 缓冲液、100 µL 草酰乙酸溶液和 10 µL NADH 溶液;向样品比色皿中加入 880 µL Tris-HCl 缓冲液、100 µL 草酰乙酸溶液和 10 µL NADH 溶液。
- 将比色皿在分光光度计中孵育 3–4 分钟,并以空白对照调零。
- 然后向样品比色皿中加入 10 µL 线粒体匀浆液(1 mg/mL),立即颠倒混匀,并记录 340 nm 处因 NADH 氧化引起的吸光度在 1 分钟内的下降值。
5. 体外α-突触核蛋白、牛胰岛素和HEWL纤维形成
- 蛋白质制备
- α-突触核蛋白:
注意:重组α-突触核蛋白的表达与纯化参照Hoyer等人的方法18并稍作修改,α-突触核蛋白的纯度通过SDS-PAGE确认。- 将纯化的α-突触核蛋白在磷酸盐缓冲液(PBS)中透析过夜。
- 使用275 nm处的消光系数5600 M-1 cm-1测定蛋白浓度19。
- 将蛋白分装至1.5 mL离心管中,-80 °C保存备用。
- 牛胰岛素与HEWL:
- 提供牛胰岛素和HEWL。
- 将每种蛋白溶解于50 mM甘氨酸缓冲液(pH = 1.6;用HCl调节pH)中。
- 使用276 nm和280 nm处的消光系数分别为1.0和2.63(对应1.0 mg/mL)测定牛胰岛素和HEWL的浓度20,21。
- α-突触核蛋白:
- 淀粉样纤维化诱导
- 淀粉样纤维化溶液的制备:
- 制备硫磺素T(ThT)缓冲液:称取0.3 g NaH2PO4,溶于80 mL去离子水(DW)中,调节pH至6.5,再加去离子水定容至100 mL。
- 制备ThT储存液(5 mM):称取1.6 mg ThT,溶于1 mL ThT缓冲液中,经0.22 μm滤膜过滤,避光4 °C保存备用。
注意:该溶液可在4 °C保存最多4周。 - 制备ThT工作液(1 mM):将200 µL ThT储存液(5 mM)加入800 µL ThT缓冲液中。
注意:该溶液可在4 °C保存最多1周。
- 体外α-突触核蛋白淀粉样纤维形成:
- 向1.5 mL离心管中加入294 µL蛋白溶液(200 μM)和6 µL ThT工作液(1 mM),随后进行搅拌。
- 将离心管置于恒温混匀仪中,37 °C、800 rpm持续搅拌孵育4天。
- 在固定时间间隔取10 µL孵育样品,加入490 µL ThT缓冲液,充分混匀后室温孵育5分钟。
- 设定荧光分光光度计的激发和发射狭缝宽度分别为5 nm和10 nm,激发波长为440 nm,发射波长为485 nm,测定ThT荧光强度。
- 体外牛胰岛素淀粉样纤维形成:
- 向1.5 mL离心管中加入637 µL蛋白溶液(250 µM),随后加入13 µL ThT工作液(1 mM),并进行搅拌。
- 向透明底96孔板的每孔中加入含20 µM ThT的蛋白溶液(250 µM)200 µL,并用透明封口膜密封。
- 将96孔板放入荧光酶标仪中,57 °C孵育,不进行震荡。
- 每30分钟测定一次ThT荧光,激发波长440 nm,发射波长485 nm,持续12小时。
注意:每次测定前震荡5秒。
- 体外HEWL淀粉样纤维形成:
- 向透明底96孔板的每孔中加入含20 µM ThT的蛋白溶液(1 mM)200 µL,并用透明封口膜密封。
- 将96孔板放入荧光酶标仪中,57 °C孵育,不进行震荡。
- 每2小时测定一次ThT荧光,激发波长440 nm,发射波长485 nm,持续4天。
注意:对于上述三种蛋白,淀粉样纤维的形成均通过原子力显微镜确认(图2B)。
- 淀粉样纤维化溶液的制备:
6. 使用淀粉样纤维处理线粒体、MDH释放检测及ROS测定
- 分离线粒体与淀粉样纤维共孵育
- 开启离心机和水浴锅,并设定至 4 °C 和 30 °C分别。
- 使用IF将线粒体匀浆稀释至终浓度为1 mg/mL。
- 准备两组含有线粒体匀浆的1.5 mL离心管(一组用于MDH释放检测,另一组用于线粒体ROS测定)。
- 加入新鲜或淀粉样纤维形式的α-突触核蛋白、牛胰岛素或溶菌酶(终浓度为 5 µM, 10 µM, 20 µM,以及 25 µM;使用PBS或甘氨酸缓冲液作为对照)加入线粒体匀浆中(终体积 = 200 µL)(参见 表1, 表2,以及 表3)随后用移液管轻轻搅拌溶液。
注意:在MDH释放实验中,使用Triton X-100(终浓度为0.5% [v/v])作为阳性对照,以检测最大酶释放量。 - 将含有线粒体悬液的试管置于设定为温水浴的环境中孵育 30 分钟 30 °C.
- 按照第6.2和6.3节所述,检测线粒体MDH的释放及ROS含量。
- 线粒体MDH释放实验
- 将孵育后的线粒体匀浆在16,000 x g条件下离心 g 孵育15分钟,然后小心收集上清液,用于按照第4节所述方法检测线粒体MDH的活性。
- 按下式计算MDH释放量占最大效应(Triton X-100)的百分比:
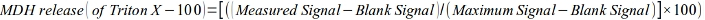
- 线粒体活性氧检测
注意:线粒体活性氧含量使用对氧化敏感的荧光前体二氢二氯羧基荧光素二乙酸酯(DCFDA)进行测定22。- 准备用于线粒体活性氧检测的溶液。将DCFDA溶于甲醇中配制成50 µM溶液(现配现用),并将琥珀酸溶于去离子水(DW)中配制成200 mM溶液。
- 取191 µL已孵育的线粒体匀浆液加入96孔板的每个孔中,随后加入4 µL的50 µM DCFDA溶液(终浓度为1 µM)和5 µL的200 mM琥珀酸溶液(终浓度为5 mM)。
- 将96孔板置于30 °C的恒温水浴中孵育30分钟,并轻轻搅拌。
- 将96孔板放入荧光酶标仪中,设置激发波长为485 nm,发射波长为530 nm,测定荧光强度。
7. 统计分析
- 所有实验至少重复 2 到 3 次,每次设三个复孔,并进行适当的统计学检验。本研究结果以均值 ± 标准差表示,采用配对 Student's t-检验计算统计学显著性。*p < 0.05;**p < 0.01 表示差异具有统计学意义(P 值小于 0.01 和 0.05)。
访问受限。请登录或开始试用以查看此内容。
结果
本方案描述了一种体外生物学模型,用于研究淀粉样纤维与大鼠脑线粒体之间的相互作用。在线粒体制备过程中,使用15%(v/v)密度梯度介质去除脑组织中的主要污染物——髓鞘14。如图1A所示,在30,700 × g 条件下离心后出现两条明显条带:第一条带主要成分为髓鞘(即条带1),第二条带则富含线粒体组分。
通过修改 Sims 和 Anderson14描述的方案,制备了含有突触和非突触线粒体的线粒体悬液。为制备纯化的非突触线粒体,Sims 和 Anderson 之前已详细阐述了该方案14。在离心的最后一步,加入10 mg/mL 无脂肪酸牛血清白蛋白(fatty acid-free BSA),以获得致密的线粒体沉淀(图 1A)。通过在使用 ...
访问受限。请登录或开始试用以查看此内容。
讨论
大量实验结果支持以下假说:纤维状聚集体的细胞毒性与其同生物膜相互作用并使其通透的能力密切相关4,5。然而,大多数数据基于人工脂质双层膜,而人工膜未必能反映生物膜的内在特性,因为生物膜是包含多种磷脂和蛋白质的异质性结构。本文以脑线粒体作为体外生物膜模型,描述了一种在膜水平上研究纤维状聚集体细胞毒性的方法。
实验过程中,需迅速操作并将所有物品保持在冰上,以制备膜结构完整的功能活性线粒体。此外,线粒体浓度(基于总蛋白测定)是影响膜与淀粉样纤维相互作用的重要因素,因此在整个实验方案中必须保持恒定。本研究中所用的线粒体制剂包含突触和非突触来源的线粒体。若需制备纯化的非突触线粒体,应使用40%、23%和15%(v/v)的密度梯度培养基 ,具体方法如Sims和Anderson14所述。由于线粒体是一种膜结构明确的细胞器,可作为研究淀粉样蛋白在膜水平诱导细胞毒性机制(特别是与神经退行性疾病相关)的极具价值的生物模型系统。本实...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
本工作得到了伊朗赞詹基础科学高等研究院(IASBS)研究委员会资助项目的资助。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 2′,7′二氯二氢荧光素二乙酸酯 | Sigma | 35845 | |
| 硫酸铵 | 默克 | 1012171000 | |
| 黑色96孔板 | 康宁 | ||
| 黑色透明底96孔板 | 康宁 | ||
| 牛胰岛素 | Sigma | I6634 | |
| 牛血清白蛋白(BSA) | Sigma | A2153 | |
| 基本不含脂肪酸的BSA | Sigma | A6003 | |
| 离心 | Sigma | ||
| 晶莹透明封口胶带 | 康宁 | ||
| CuSO₄ | Sigma | 451657 | |
| 透析袋(截留分子量 2 KDa) | Sigma | D2272 | |
| 邓氏匀浆器 | 波特-埃尔维耶姆 | ||
| EDTA | Sigma | E9884 | |
| 荧光酶标仪 | BioTek | ||
| 荧光分光光度计 | Cary Eclipse VARIAN | ||
| 福林 | 默克 | F9252 | |
| 甘氨酸 | Sigma | G7126 | |
| 断头台 | 伊朗制造 | ||
| HCl | 默克 | H1758 | |
| 鸡卵清溶菌酶(HEWL) | Sigma | L6876 | |
| Na2CO3 | Sigma | S7795 | |
| NaH2PO4 | Sigma | S7907 | |
| NaOH | 默克 | S8045 | |
| 草酰乙酸 | Sigma | O4126 | |
| Percoll | GE Healthcare | ||
| 磷酸盐缓冲液(PBS) | Sigma | CS0030 | |
| PMSF | Sigma | P7626 | |
| 酒石酸钾钠 | Sigma | 217255 | |
| 石英比色皿 | Sigma | ||
| 分光光度计 | analytik jena | SPEKOL 2000 型号 | |
| 琥珀酸 | Sigma | S2378 | |
| 蔗糖 | 默克 | 1076871000 | |
| 恒温混匀仪 | Eppendorph | ||
| 硫黄素T | Sigma | T3516 | |
| Tris-HCl | 默克 | 1082191000 | |
| Triton X-100 | Sigma | T9284 | |
| 胰蛋白胨 | QUELAB | ||
| 水浴锅 | Memmert | ||
| 酵母提取物 | QUELAB | ||
| β-NADH | Sigma | N8129 |
参考文献
- Merlini, G., Bellotti, V. Molecular mechanisms of amyloidosis. New England Journal of Medicine. 349, 583-596 (2003).
- Berg, I. Modeling amyloid disease in Drosophila melanogaster, Linköping Studies in Science and Technology Dissertation No. 1320. , Linköping University. Linköping Institute of Technology, Department of Physics, Chemistry and Biology (2010).
- Kagan, B. L. Protein aggregation, ion channel formation, and membrane damage. Protein Misfolding, Aggregation, and Conformational Diseases. Uversky, V. N., Fink, A. L. , Springer US. New York. 223-236 (2006).
- Demuro, A., et al. Calcium dysregulation and membrane disruption as a ubiquitous neurotoxic mechanism of soluble amyloid oligomers. The Journal of Biological Chemistry. 280, 17294-17300 (2005).
- Kayed, R., et al. Permeabilization of lipid bilayers is a common conformation-dependent activity of soluble amyloid oligomers in protein misfolding diseases. The Journal of Biological Chemistry. 279, 46363-46366 (2004).
- Manczak, M., Park, B. S., Jung, Y., Reddy, P. H. Differential expression of oxidative phosphorylation genes in patients with Alzheimer's disease: implications for early mitochondrial dysfunction and oxidative damage. Neuromolecular Medicine. 5, 147-162 (2004).
- Vila, M., Ramonet, D., Perier, C. Mitochondrial alterations in Parkinson's disease: new clues. Journal of Neurochemistry. 107, 317-328 (2008).
- Petersen, C. A. H., et al. The amyloid β-peptide is imported into mitochondria via the TOM import machinery and localized to mitochondrial cristae. Proceedings of the National Academy of Sciences of the United States of America. 105, 13145-13150 (2008).
- Devi, L., Raghavendran, V., Prabhu, B. M., Avadhani, N. G., Anandatheerthavarada, H. K. Mitochondrial import and accumulation of α-synuclein impair complex I in human dopaminergic neuronal cultures and Parkinson disease brain. The Journal of Biological Chemistry. 283, 9089-9100 (2008).
- Costa, V., Scorrano, L. Shaping the role of mitochondria in the pathogenesis of Huntington's disease. EMBO Journal. 31, 1853-1864 (2012).
- Vande Velde, C., Miller, T. M., Cashman, N. R., Cleveland, D. W. Selective association of misfolded ALS-linked mutant SOD1 with the cytoplasmic face of mitochondria. Proceedings of the National Academy of Sciences of the United States of America. 105, 4022-4027 (2008).
- Kagan, B. L., Azimov, R., Azimova, R. Amyloid peptide channels. The Journal of Membrane Biology. 202, 1-10 (2004).
- Lashuel, H. A., Hartley, D., Petre, B. M., Walz, T., Lansbury, P. T. Neurodegenerative disease: amyloid pores from pathogenic mutations. Nature. 418, 291(2002).
- Sims, N. R., Anderson, M. F. Isolation of mitochondria from rat brain using Percoll density gradient centrifugation. Nature Protocols. 3, 1228-1239 (2008).
- Ghobeh, M., et al. Interaction of Aβ (25-35) Fibrillation Products with Mitochondria: Effect of Small-Molecule Natural Products. Peptide Science. 102, 473-486 (2014).
- Lowry, O. H., Rosebrough, N. J., Farr, A. L., Randall, R. J. Protein measurement with the folin phenol reagent. The Journal of Biological Chemistry. 193, 265-275 (1951).
- Sottocasa, G. L., Kuylenstierna, B., Ernester, L., Bergstrand, A. Separation and some enzymatic properties of the inner and outer membrane of rat liver mitochondria. Methods in Enzymology. 10, 448-463 (1967).
- Hoyer, W., et al. Dependence of a-Synuclein Aggregate Morphology on Solution Conditions. Journal of Molecular Biology. 322, 383-393 (2002).
- Weinreb, P. H., et al. NACP, a protein implicated in Alzheimer's disease and learning, is natively unfolded. Biochemistry. 35, 13709-13715 (1996).
- Porter, R. R. Partition chromatography of insulin and other proteins. The Biochemical Journal. 53, 320-328 (1953).
- Goldberg, M. E., Rudolph, R., Jaenicke, R. A kinetic study of the competition between renaturation and aggregation during the refolding of denatured reduced egg white lysozyme. Biochemistry. 30, 2790-2797 (1991).
- Young, T. A., Cunningham, C. C., Bailey, S. M. Reactive oxygen species production by the mitochondrial respiratory chain in isolated rat hepatocytes and liver mitochondria: studies using myxothiazol. Archives of Biochemistry and Biophysics. 405, 65-72 (2002).
- Meratan, A. A., Ghasemi, A., Nemat-Gorgani, M. Membrane integrity and amyloid cytotoxicity: a model study involving mitochondria and lysozyme fibrillation products. Journal of Molecular Biology. 409, 826-838 (2011).
- Katebi, B., Mahdavimehr, M., Meratan, A. A., Ghasemi, A., Nemat-Gorgani, M. Protective effects of silibinin on insulin amyloid fibrillation, cytotoxicity and mitochondrial membrane damage. Archives of Biochemistry and Biophysics. 659, 22-32 (2018).
- Fink, A. L. The aggregation and fibrillation of alpha-synuclein. Accounts of Chemical Research. 39, 628-634 (2006).
- Diraviyam, K., Stahelin, R. V., Cho, W., Murray, D. Computer modeling of the membrane interaction of FYVE domains. Journal of Molecular Biology. 328, 721-736 (2003).
- Van Rooijen, B. D., Claessens, M., Subramaniam, V. Lipid bilayer disruption by oligomeric α-synuclein depends on bilayer charge and accessibility of the hydrophobic core. Biochimica et Biophysica Acta. 1788, 1271-1278 (2009).
- Kourie, J. I., Henry, C. L. Ion channel formation and membrane-linked pathologies of misfolded hydrophobic proteins: the role of dangerous unchaperoned molecules. Clinical and Experimental Pharmacology & Physiology. 29, 741-753 (2002).
- Bucciantini, M., et al. Inherent toxicity of aggregates implies a common mechanism for protein misfolding diseases. Nature. 416, 507-511 (2002).
- Bolognesi, B., et al. ANS binding reveals common features of cytotoxic amyloid species. ACS Chemical Biology. 5, 735-740 (2010).
- Posse, E., De Arcuri, B. F., Morero, R. D. Lysozyme interactions with phospholipid vesicles: relationships with fusion and release of aqueous content. Biochimica et Biophysica Acta. 1193, 101-106 (1994).
- Roqanian, S., et al. Polyphenols protect mitochondrial membrane against permeabilization induced by HEWL oligomers: possible mechanism of action. International Journal of Biological Macromolecules. 103, 709-720 (2017).
- Ulmer, T. S., Bax, A., Cole, N. B., Nussbaum, R. L. Structure and dynamics of micelle-bound human alphasynuclein. The Journal of Biological Chemistry. 280, 9595-9603 (2005).
- Stockl, M., Fischer, P., Wanker, E., Herrmann, A. Alpha-synuclein selectively binds to anionic phospholipids embedded in liquid-disordered domains. Journal of Molecular Biology. 375, 1394-1404 (2008).
- Devi, L., et al. Mitochondrial import and accumulation of α-synuclein impair complex I in human dopaminergic neuronal cultures and Parkinson disease brain. The Journal of Biological Chemistry. 283, 9089-9100 (2008).
- Ghio, S., Kamp, F., Cauchi, R., Giese, A., Vassallo, N. Interaction of α-synuclein with biomembranes in Parkinson's disease-role of cardiolipin. Progress in Lipid Research. 61, 73-82 (2016).
- Petersen, C. A. H., et al. The amyloid β-peptide is imported into mitochondria via the TOM import machinery and localized to mitochondrial cristae. Proceedings of National Academy of Sciences of the United States of America. 105, 13145-13150 (2008).
- Costa, V., Scorrano, L. Shaping the role of mitochondria in the pathogenesis of Huntington's disease. EMBO Journal. 31, 1853-1864 (2012).
- Vande Velde, C., Miller, T. M., Cashman, N. R., Cleveland, D. W. Selective association of misfolded ALS-linked mutant SOD1 with the cytoplasmic face of mitochondria. Proceedings of National Academy of Sciences of the United States of America. 105, 4022-4027 (2008).
- Oladzad Abbasabadi, A., et al. Disruption of mitochondrial membrane integrity induced by amyloid aggregates arising from variants of SOD1. International Journal of Biological Macromolecules. 61, 212-217 (2013).
访问受限。请登录或开始试用以查看此内容。
重印与许可
