本文介绍了一种对海洋软体动物Aplysia californica摄食器官固有肌肉进行微创手术损毁的实验方案,旨在研究这些肌肉在摄食行为中的作用。
本文内容
摘要
摘要
Aplysia californica 是研究学习与行为神经调控的模式系统。该动物具有半开放的循环系统,使得在不造成显著损伤的情况下即可接触其多种内部结构。许多操作均可在体内和体外轻松进行,使其成为行为与神经环路分析中极为适用的模型。为了更深入地理解摄食钳(feeding grasper)中肌肉的功能,我们开发了一种无需打开动物主体腔或损伤摄食器官外层结构(即口球,buccal mass)即可对肌肉进行损毁的技术。在该技术中,摄食钳被部分外翻,从而可直接接触其肌肉组织。该操作使动物能够快速且可靠地恢复。该方法使我们能够损毁 I7 肌肉及亚基膜纤维(sub-radular fibers),并由此证明这两种肌肉均对体内开口运动具有显著贡献。
引言
Aplysia californica 的摄食系统长期以来被用作研究学习与记忆1、动机行为2,3,以及摄食过程中行为、生物力学与神经控制之间相互作用的模型系统4。该系统具有高度可及的神经环路,仅包含相对少量的大而易于识别的神经元。该动物具有半开放的循环系统,使得在不造成显著损伤的情况下即可接触其多种内部结构。此外,它在体内和体外均能耐受多种操作,因此是研究行为与神经环路的极具可行性的模型。
为了理解产生摄食行为的神经模式,有必要描述构成摄食器官——颚器(buccal mass)这一软组织结构的内在力学机制4。尽管已有研究对构成颚器的外部肌肉进行了表征5,6,但控制颚器表面攫取结构——齿舌囊(odontophore)的深层内部肌肉,由于难以接近,长期以来无法在活体动物中进行实验研究。尽管已有部分关于这些肌肉功能的体外研究7,8,但由于无法直接接触这些肌肉,其在完整且具有自然行为的动物个体中的作用仍难以探究。
在对海兔属(Aplysia)或类似软体动物物种进行电极植入或产生损毁的大多数技术中,均需切开体壁9,10,11,12。切开体壁会造成上皮组织损伤,且切口必须严密封闭,以防止血淋巴外漏。当试图到达海兔颚器(grasper)内部肌肉(即齿舌表面下方或颚舌内肌肉)时,会面临更为严重的问题:即使已进入主要体腔,仍需穿过部分口球肌肉壁才能接触到内部结构(图1A)。由于累积的组织损伤以及进入难度较大,传统方法的应用受到限制,因为动物术后恢复情况不佳(在完全外翻的动物中,仅有17%恢复了摄食能力,N = 12;而在未外翻的动物中,约85%恢复了摄食能力,N = 84)。
I7 肌肉已被定性为齿舌开启肌8,其位置深埋于齿舌突本身内部,进一步增加了操作难度。该肌肉通过齿舌突内的一个管腔,连接齿舌柄基部(图 1C)与齿舌表面的下侧(图 1C)。I7 肌肉的三面被肌肉壁包围,第四面则为齿舌柄。在生物力学研究中,上述任一结构若受到严重损伤,均会破坏摄食器官的正常功能。我们开发了一种创新方法:将齿舌突从颚部逐步推出,并通过在薄而具软骨性质的齿舌表面做切口进行手术,从而实现了对 I7 肌肉以及位于齿舌表面下方新近描述的细小肌纤维(我们称之为齿舌下纤维)的损毁操作(图 1C)。

图 1:解剖结构概览。 (A)Aplysia 体内口球的位置。(B)齿舌囊的外部解剖结构。齿舌和齿舌囊表面呈黄色;构成齿舌囊的肌肉以红色显示,颜色依据其实际色泽。(C)齿舌囊的矢状切面,显示齿舌下纤维(粉红色曲线)和 I7 肌肉(粉红色直线)的位置。I6 肌肉的横切面以深红色显示。请点击此处查看该图的放大版本。
方案
Aplysia 是无脊椎动物,因此无需接受机构动物使用委员会(IAUC)的审批。为尽量减少动物的不适,在实施下述手术技术前,应确保动物已完全麻醉。
1. 动物选择与麻醉
- 通过提供海藻并确认其咬食间隔不超过3至5秒,选择一只活跃的动物。
- 使用60 mL注射器连接18 G针头,在动物头部附近注射0.333 mol/L氯化镁(见表1),使其麻醉剂在口器团周围达到最高浓度。
- 注意用针头穿透外层上皮和内层组织。确保注射位置大致位于嗅角下方,介于嗅角与足部中间处,针头应倾斜刺入,方向朝向颚部。
- 10分钟后,轻轻尝试将针插入鳃和嗅角,确认其不再回缩,以确保麻醉充分。
- 确保蛞蝓的唇部和下颌放松,以便暴露齿舌。
注意: 嘴唇上的褶皱 图2A 表明动物的嘴唇和下颌尚未充分放松,无法在不造成损伤的情况下进行手术操作。放松且平滑的嘴唇 图2B 表明下颌已完全放松。
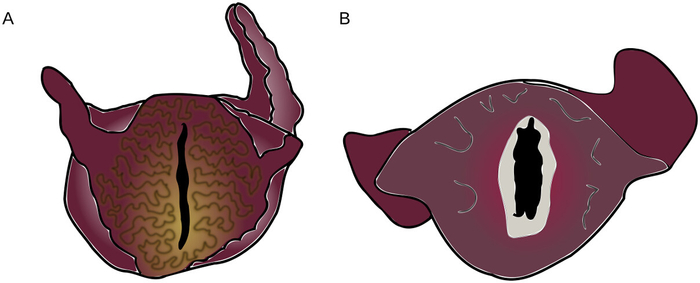
图2:麻醉状态下 Aplysia 口器的紧张与松弛状态。(A)Aplysia 唇部周围肌肉紧张程度较高,与此对应的下颌紧张状态表明不宜进行手术操作。(B)唇部松弛的 Aplysia,可见下颌内部结构(浅灰色),颜色与动物体内实际观察到的一致。请点击此处查看该图的高清版本。
- 如果动物的唇部未放松,再注射 30 mL 氯化镁,等待另外 5 分钟。如果仍未达到唇部放松的效果,则将其放回具有良好水流的独立容器中使其恢复(参见步骤 4),并换用其他动物继续实验。
2. 暴露齿舌表面
- 将蛞蝓放置成头部朝下的位置,使口咽部自然下垂并紧贴下颌。
- 用拇指和食指施加压力,将口咽部推向下颌,并固定住口咽部的位置。
- 旋转下颌使其可见,同时保持对口咽部的压力,使口咽部的前端通过下颌清晰可见。(图3)
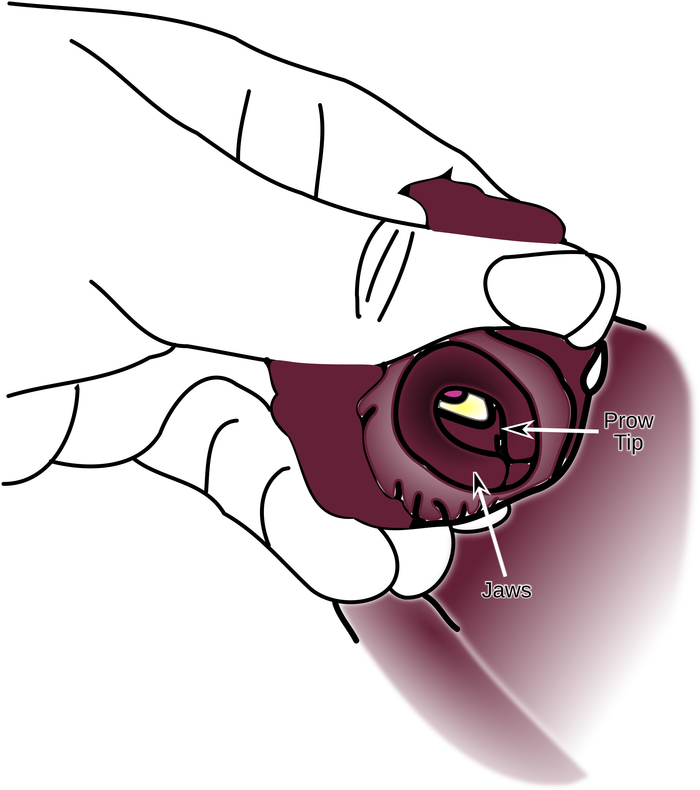
图 3:支撑口球部紧贴颚部内侧。 手指支撑被推至颚部内侧边缘的口球部,直至可见船首状尖端的顶端。请点击此处查看此图的放大版本。
- 用钝头镊子轻轻插入齿舌囊的裂隙中,并利用镊子将齿舌表面从颚中撬出。如果颚部未充分松弛,可用镊子轻轻夹住裂隙边缘以辅助此操作。
注意:施加压力可能会增加对动物的损伤风险。 - 一旦暴露表面,应将颚完全从齿舌表面前部周围移开,以减少齿舌囊回缩的可能性(图4)。确保暴露的齿舌囊壁不超过其壁厚的一半。
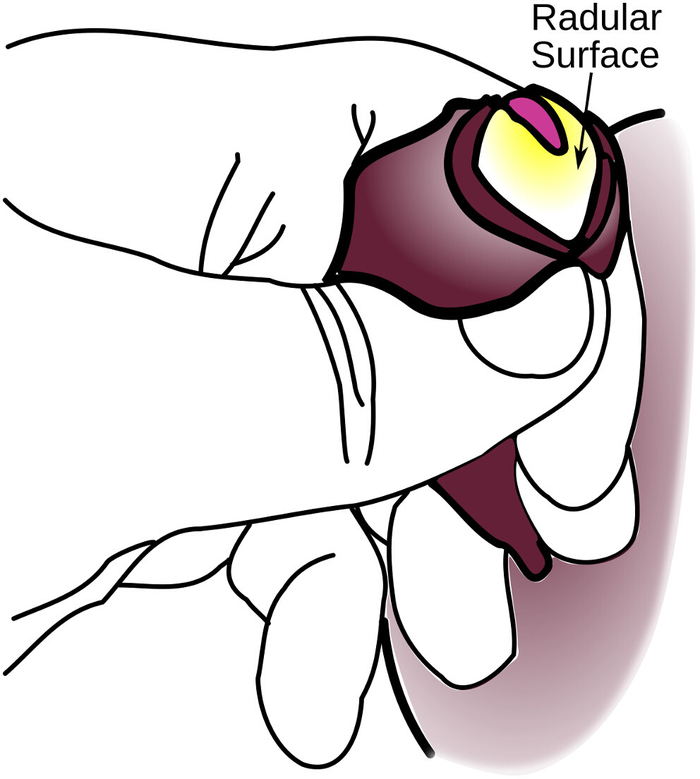
图 4:齿舌囊部分外翻。齿舌表面已完全暴露,但齿舌囊的侧面尚未完全展开,因此仅为部分外翻。进一步外翻可能会对动物造成损伤。请点击此处查看此图的放大版本。
注意:齿舌膜的完全外翻将导致严重的肌肉损伤,动物从这种损伤中恢复得非常缓慢。
3. 外科切口
- 当齿舌表面完全暴露后,将蛞蝓置于解剖显微镜下进行手术。
- 也可使用宽橡皮筋和第三只手辅助固定颚部及齿舌表面,以利于手术操作,尤其是在学习阶段。然而,这种方法会延长操作时间并增加组织损伤,长期来看并不理想。
- 将齿舌表面摆放,使裂口侧朝向操作者。
- 轻柔地夹住靠近齿舌基部的齿舌表面,使其形成一个与解剖皱襞垂直的横向褶皱。使用精细剪刀穿过该褶皱,沿解剖皱襞进行切开(图5)。
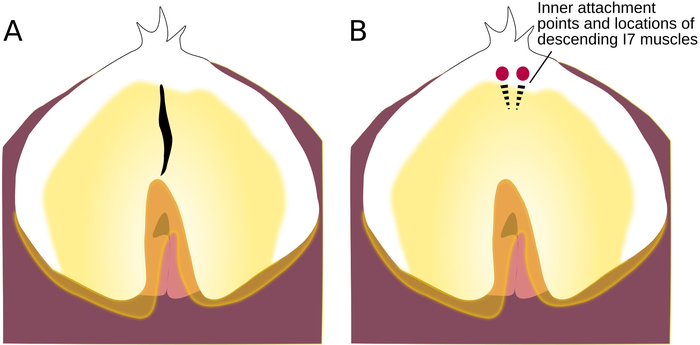
图5:齿舌表面切口位置。(A)齿舌表面,带有切口。(B)齿舌表面,圆圈标示双侧 I7 肌肉纤维的附着位置;虚线表示位于齿舌表面下方的降行肌肉的位置。请点击此处查看该图的高清版本。
- 将此初始切口延长至 3-5 cm,以进入齿舌囊内部。
- 调整光源,使其直接通过切口向后照射。
- 分开切口边缘,使齿舌囊腔的后壁以及 I7 肌肉的细垂直纤维清晰可见。(图 6)
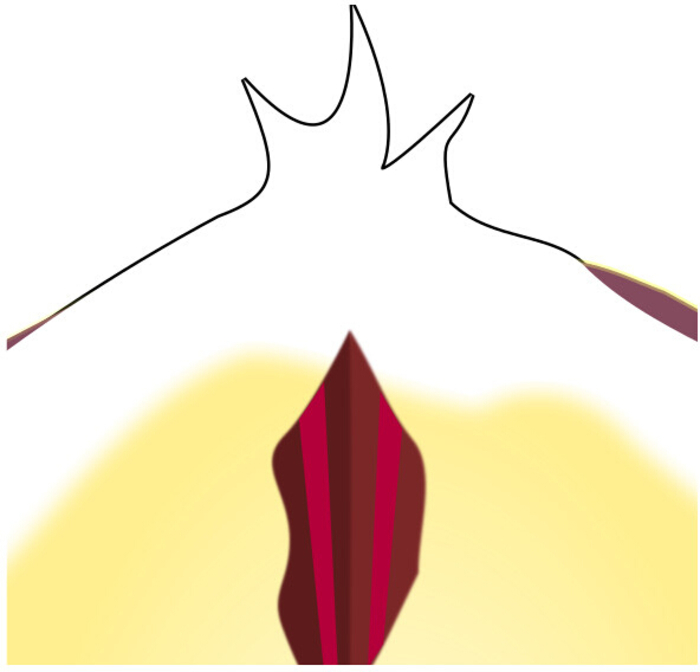
图6:通过齿舌表面切口观察I7的位置。 通过切口可见,I7的两束纤维均位于I4内表面之间。请点击此处查看该图的高清版本。
- 通过切口伸入,抓住 I7 的两股肌束,并将其向上拉出切口,尽可能多地切除肌肉组织(图7)。
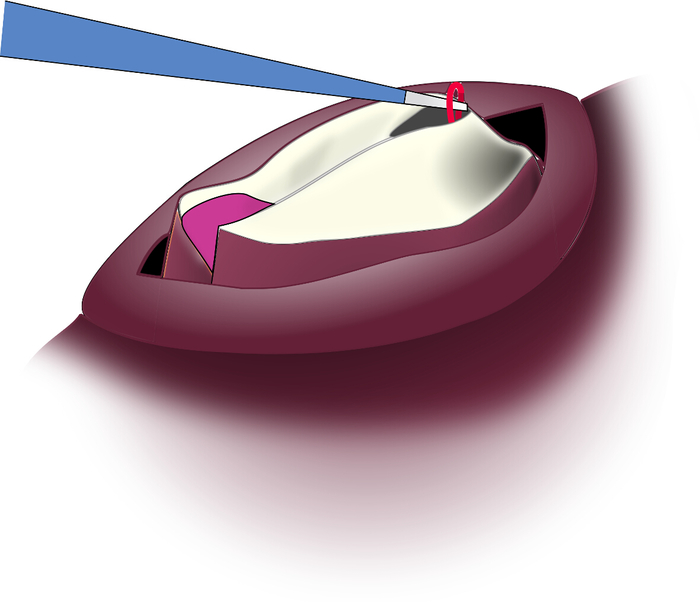
图 7:将 I7 肌肉束从切口处拉出。 I7 肌肉具有高度弹性,可通过切口向上拉出以进行移除。请点击此处查看该图的放大版本。
注意:通过练习,通常通过触感定位 I7 比通过视觉更有效。
4. 术后护理
- 完成损伤操作后,抓住前端触手,向下按压齿舌表面,使蛞蝓恢复至原始形态。
- 将术后动物置于具有良好水流的受保护环境中。增加氧气供应可加快恢复速度。确保动物在术后第二天表现出警觉和反应能力。若未达到此状态,则可认为其无法恢复。
注意:动物通常在术后第一或第二天开始进食。即使动物咬合存在困难,也应提供海藻,因为根据我们的经验观察,动物尝试进食有助于其恢复。
5. 亚基底纤维束损伤
- 按照 1.1 至 3.5 步骤操作
- 将小型直头解剖刀片(#11 或类似型号)的刀尖通过切口插入,刀刃锋利边缘朝上。轻轻刮除齿舌腹面的细小肌纤维。(图 8)
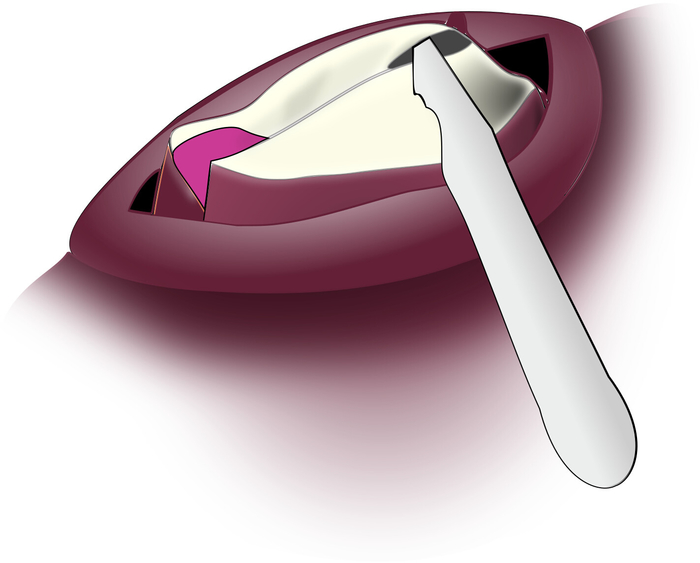
图8:损毁齿下纤维。 将手术刀刀刃通过切口向上倾斜至齿状面下方,以便轻柔刮除齿下纤维。请点击此处查看该图的放大版本。
- 返回步骤 4.1。
结果
先前的研究表明,I7 肌肉可能参与了颚器的张开过程8。我们自身的解剖学研究提示,颚下纤维也可能参与颚器的张开。为了验证这些假设,我们在动物接受手术操作前后均诱导其产生咬合动作。假手术组动物接受了全部手术步骤,包括在颚面区域做切口,但未切除任何内部肌肉。I7 肌肉损毁组动物的双侧 I7 肌肉均被切除。颚下纤维损毁组动物在切口正下方约 25% 的颚下纤维被切除。假手术对咬合峰值时的开口宽度无显著影响,而 I7 肌肉损毁和颚下纤维损毁均显著降低了咬合开口的宽度(图 9)。
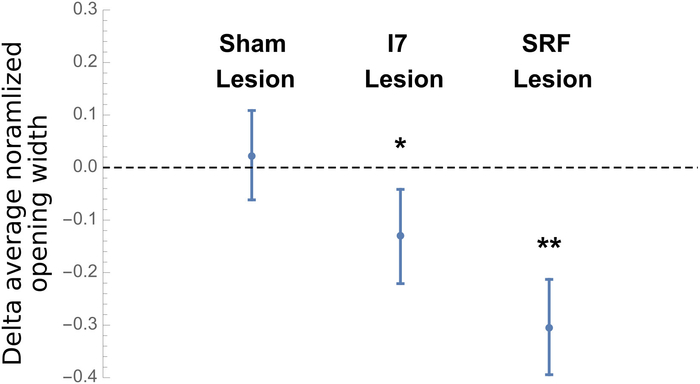
图9:损伤对咬合峰值期间开口宽度的影响结果。 数据显示了三组动物(每组5只,分别为假手术组、I7 损伤组或 SRF 损伤组)在手术前后齿舌平均归一化开口宽度的差异,每只动物均作为自身的对照。通过取手术前5次咬合和手术后5次咬合的平均值,计算出平均归一化差异。开口宽度定义为在齿舌最大前伸时,从齿舌中心到齿舌边缘的距离,并以齿舌基部内表面到齿舌表面裂侧边缘的距离进行归一化处理。差异值以均值±标准差表示。在确认差异数据呈正态分布后,采用配对t检验对每个独立组进行分析,以确定损伤无效应的概率(即检验零假设:手术处理的平均效应为零)。结果显示,假手术组无显著影响,而 I7 肌肉损伤或亚齿舌纤维(SRF)损伤对齿舌开口具有显著影响(I7 损伤组 p < 0.031,以单个星号表示;SRF 损伤组 p < 0.002,以双星号表示)。请点击此处查看该图的放大版本。
| 体重 | 氯化镁剂量 |
| <200 g | ½ bodyweight |
| 200-350 g | 1/3 bodyweight |
| 350-450 g | ¼ bodyweight |
表1:根据体重计算的氯化镁剂量。
讨论
该方案中最关键的步骤是确保动物完全麻醉,以及翻转口球的程度应恰到好处,以便能够接触到其下方的肌肉。这些步骤可能需要一定练习才能掌握,但一旦熟练,手术的成功率在所有实验中可能超过85%。正确修改和优化该方案最重要的方法是花时间进行口球的解剖,使研究者完全清楚内部肌肉的分布位置。由于建议在齿舌表面进行的切口不可避免地会对下方的齿下纤维造成一定损伤,因此可能需要调整切口的具体位置,以避开这些纤维的特定区域。
该手术技术的一个局限性在于,它可能对摄食反应产生非特异性影响,例如前伸动作的强度。克服这一局限性的方法之一是让动物自身作为对照。此外,设立假性损伤组至关重要,该组动物需接受完整的手术操作流程,但不切除特定肌肉(即 I7 或 SRFs)。通过遵循这些建议,研究者将能够减少动物间变异的影响,并获得手术非特异性效应的内在评估指标。
既往研究曾采用穿过体壁的方法对神经13,14或肌肉15,16,17进行损伤或记录。在本实验室,我们曾非正式观察到,体壁切口常伴随大量血淋巴流失,从而导致体液容量显著减少。动物通常需要数天时间才能恢复;若体壁损伤未被仔细缝合,动物可能无法恢复。此外,动物尸检结果显示切口周围存在明显瘢痕组织及强烈的免疫反应(基于非正式观察)。相比之下,在接受本文所述方案处理并恢复后,动物未出现血淋巴流失或体液容量变化(基于96只动物的观察结果)。
该技术的未来应用可能会将其扩展至摄食器官中的其他肌肉 Aplysia 以及其他动物。我们重点介绍了I7肌肉及齿下纤维的切除方法。这些通用的外科技术同样可用于进入齿舌囊的大部分其他肌肉。其中一些肌肉,例如I5肌肉的内部区域,最好通过齿舌面进行操作;而另一些结构,如I4肌肉的内侧瓣,则通过齿舌囊的外部上皮可能更易到达。我们已进行初步尝试,在部分外翻的齿舌囊的齿槽下方做切口,使锐利的钩针得以插入,并用于损毁齿舌囊内的另一块肌肉——I8肌肉。8由于此处描述的手术方案不涉及打开主要体腔,因此无需缝合。
我们所描述的方案可能对其他研究软组织结构的研究人员具有普遍参考价值,这些结构通常难以操作,例如其他软体动物的摄食器官。更广泛而言,本方案可为舌、鼻、触手等软组织的分析提供新的外科手术思路18。
披露
作者无任何利益冲突需要披露。
致谢
我们感谢Sherry Niggel、Sisi Lu和Joey Wu在改进和验证这些实验方案过程中所付出的辛勤努力。本工作得到了美国国家科学基金会(NSF)IOS 1754869号基金的资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 钝头镊子 | Fine Science Tools | 11210-10 | 2 对 |
| 手术刀片(#11) | Fine Science Tools | 10011-00 | |
| 弹簧剪 | Fine Science Tools | 15024-10 | |
| 网络摄像头 | Logitech | c920 | 用于记录数据 |
参考文献
- Pinsker, H., Kupfermann, I., Castellucci, V., Kandel, E. Habituation and Dishabituation of the GM-Withdrawal Reflex in Aplysia. Science. 167, 1740-1742 (1970).
- Kupfermann, I. Feeding Behavior in Aplysia: A Simple System for the Study of Motivation. Behavioral Biology. 10, 1-26 (1974).
- Susswein, A. J., Chiel, H. J. Nitric oxide as a regulator of behavior: New ideas from Aplysia feeding. Progress in Neurobiology. 97, 304-317 (2012).
- Chiel, H. J. Aplysia feeding biomechanics. Scholarpedia. 2, 4165(2007).
- Neustadter, D. M., Drushel, R. F., Chiel, H. J. Kinematics of the buccal mass during swallowing based on magnetic resonance imaging in intact, behaving Aplysia californica. Journal of Experimental Biology. 205, 939-958 (2002).
- Neustadter, D. M., Herman, R. L., Drushel, R. F., Chestek, D. W., Chiel, H. J. The kinematics of multifunctionality: comparisons of biting and swallowing in Aplysia californica. Journal of Experimental Biology. 210, 238-260 (2007).
- Brezina, V., Evans, C. G., Weiss, K. R. Characterization of the membrane ion currents of a model molluscan muscle, the accessory radula closer muscle of Aplysia california. I. Hyperpolarization-activated currents. Journal of Neurophysiology. 71, 2093-2112 (1994).
- Evans, C. G., Rosen, S., Kupfermann, I., Weiss, K. R., Cropper, E. C. Characterization of a Radula Opener Neuromuscular System in Aplysia. Journal of Neurophysiology. 76 (2), 1267-1281 (1996).
- Cullins, M. J., Chiel, H. J. Electrode Fabrication and Implantation in Aplysia californica for Multi-channel Neural and Muscular Recordings in Intact, Freely Behaving Animals. Journal of Visualized Experiment. (40), 1791(2010).
- Dudek, F. E., Cobbs, J. S., Pinsker, H. M. Bag cell electrical activity underlying spontaneous egg laying in freely behaving Aplysia brasiliana. Journal of Neurophysiology. 42, 804-817 (1979).
- Hermann, P., Maat, A., Jansen, R. The Neural Control of Egg-Laying Behaviour in the Pond Snail Lymnaea Stagnalis: Motor Control of Shell Turning. Journal of Experimental Biology. 197, 79-99 (1994).
- Jansen, R. F., Pieneman, A. W., Ater Maat, Pattern Generation in the Buccal System of Freely Behaving Lymnaea stagnalis. Journal of Neurophysiology. 82, 3378-3391 (1999).
- Kupfermann, I. Dissociation of the appetitive and consummatory phases of feeding behavior in Aplysia: a lesion study. Behavioral Biology. 10, 89-97 (1974).
- Scott, M. L., Kirk, M. D. Recovery of consummatory feeding behavior after bilateral lesions of the cerebral-buccal connectives in Aplysia california. Brain Research. 585, 272-274 (1992).
- de Boer, P. A., Jansen, R. F., ter Maat, A., van Straalen, N. M., Koene, J. M. The distinction between retractor and protractor muscles of the freshwater snail’s male organ has no physiological basis. Journal of Experimental Biology. 213, 40-44 (2010).
- Chiel, H. J., Weiss, K. R., Kupfermann, I. An identified histaminergic neuron modulates feeding motor circuitry in Aplysia. Journal of Neuroscience. 6, 2427-2450 (1986).
- Hurwitz, I., Neustadter, D., Morton, D. W., Chiel, H. J., Susswein, A. J. Activity patterns of the B31/B32 pattern initiators innervating the I2 muscle of the buccal mass during normal feeding movements in Aplysia californica. Journal of Neurophysiology. 75, 1309-1326 (1996).
- Kier, W. M. The diversity of hydrostatic skeletons. Journal of Experimental Biology. 215, 1247-1257 (2012).
重印与许可
