本文提供了一种详细的方法,用于自组装蛋白纳米颗粒(SAPNs)的纯化、复性及表征,以应用于疫苗开发。
本文内容
摘要
摘要
自组装蛋白纳米颗粒(SAPNs)可作为重复性抗原展示平台,可用于开发针对多种传染病的疫苗。本文介绍了一种制备包含六螺旋束(SHB)组装结构的SAPN核心的方法,该结构能够以三聚体构象呈递抗原。我们描述了在大肠杆菌(E. coli)系统中表达SHB-SAPN蛋白的过程,以及必要的蛋白纯化步骤。我们加入异丙醇洗涤步骤以减少残留的细菌脂多糖。通过Western blot分析,该蛋白能与已知的单克隆抗体发生反应,表明其蛋白身份和纯度。复性后,颗粒大小处于预期范围(20至100 nm),并通过动态光散射、纳米颗粒追踪分析和透射电子显微镜加以确认。本文所述方法针对SHB-SAPN进行了优化,但仅需稍作修改即可适用于其他SAPN构建体。该方法 также易于扩展至大规模生产,适用于人用疫苗的GMP制造。
引言
尽管传统疫苗研发主要集中在灭活或减毒的病原体上,现代疫苗的研究重点已转向亚单位疫苗1。这种方法可引发更具针对性的免疫反应,并可能产生更有效的疫苗候选物。然而,其主要缺点之一在于,亚单位疫苗并非像完整生物体那样的颗粒状结构,可能导致免疫原性降低2。而纳米颗粒作为一种重复性抗原展示系统,可兼具靶向性亚单位疫苗策略的优势以及完整生物体所具有的颗粒特性1,3。
在现有的纳米疫苗类型中,经过合理设计的蛋白质组装体可用于设计和开发能够以类似天然构象呈递多个抗原拷贝的候选疫苗1,4,5,6。这类蛋白质组装体的一个实例是自组装蛋白质纳米颗粒(SAPNs)7。SAPNs基于卷曲螺旋结构域,传统上在Escherichia coli中表达8。针对多种疾病(如疟疾、SARS、流感、弓形虫病和HIV-1)均已开发出SAPN候选疫苗9,10,11,12,13,14,15,16,17,18,19。每种SAPN候选疫苗的设计均针对特定目标病原体,但其生产、纯化和复性技术通常具有广泛的适用性。
我们目前的研究兴趣之一是开发一种有效的HIV-1疫苗。在RV144试验中——这是唯一一项显示具有适度保护效果的HIV-1疫苗III期临床试验——感染风险的降低与针对包膜蛋白V1V2环的IgG抗体水平相关20,21。该区域的天然样三聚体构象被认为对产生保护性免疫原性至关重要22。为了尽可能以接近天然构象的方式呈现V1V2环,我们开发了一种原理验证性的SAPN疫苗候选物,该候选物包含HIV-1包膜蛋白融合后六螺旋束(SHB),以将V1V2环引导至正确的空间构象9。该候选疫苗可被已知的抗HIV-1包膜蛋白单克隆抗体识别。用V1V2-SHB-SAPN免疫的小鼠产生了针对V1V2的特异性抗体,更重要的是,这些抗体能够结合gp70 V1V2,即正确构象的表位9。SHB-SAPN核心除了作为HIV-1 V1V2环的载体外,还可能具有其他功能。本文详细描述了SHB-SAPN核心的表达、纯化、复性和验证的实验方法。序列选择、纳米颗粒设计、分子克隆及E. coli转化等步骤此前已有报道9。
方案
1. SHB-SAPN 蛋白的表达 E. coli BL21(DE3)
- 根据制造商说明(见材料表),在2 L无菌玻璃锥形瓶中混合95 mL培养基组分A和5 mL组分B。加入氨苄青霉素至终浓度为100 μg/mL。
- 用先前建立的甘油菌种接种E. coli。在30 °C、200转/分钟(rpm)振荡条件下培养48小时。
注:所用E. coli BL21 (DE3) 菌种含有氨苄青霉素抗性表达载体23,其中携带SHB-SAPN基因。尽管培养基的一般操作建议为37 °C培养24小时,但30 °C培养48小时可获得更高的SHB-SAPN表达量。 - 将菌液转移至两个50 mL锥形管中。在4 °C条件下,使用固定角转子以4,000 x g离心10分钟。弃去上清液,保留沉淀以收集细胞。
注:细胞沉淀可立即进行后续处理,也可在-80 °C冷冻保存至使用。
2. 裂解 E. coli BL21(DE3) 超声破碎法
注意:使用无热原的塑料和玻璃器皿,并在 250 °C 下烘烤至少 30 分钟。三(2-羧乙基)膦(TCEP)作为还原剂,可断裂蛋白质内部及蛋白质之间的二硫键。如果目标抗原含有 S-S 键,则本实验方案所用缓冲液中必须添加 TCEP。仅针对 SHB-SAPN 核心时,缓冲液中可不添加 TCEP。
- 配制不含咪唑的缓冲液(8 M 尿素,50 mM 一碱磷酸钠,20 mM Tris 碱,5 mM TCEP),用 5 N NaOH 调节 pH 至 8.0,并使用 0.22 µm 真空瓶过滤装置过滤。
- 将已收集的细胞沉淀(来自步骤 1.3)用 40 mL 不含咪唑的缓冲液在一支 50 mL 锥形管中重悬。在冰上使用探头式超声仪对重悬细胞进行超声处理,总时长 5 分钟(超声 4 秒,间歇 6 秒),超声输出功率为 150 W。
- 将细胞裂解液(40 mL)在 4 °C 条件下,以 29,000 × g 离心 25 分钟(使用固定角转子),以获得澄清的上清液。将上清液转移至一个 150 mL 无菌烧瓶中,并弃去沉淀。用不含咪唑的缓冲液将上清液稀释至 100 mL(在后续实验步骤中称为“样品”)。
注意:此稀释步骤是为了防止裂解液上柱时 FPLC 系统压力过高。
3. 使用 His 柱进行蛋白质纯化
注意:本实验方案使用FPLC仪器进行,但也可调整为重力流方法。
- 配制以下缓冲液,并使用 0.22 µm 真空瓶过滤装置进行过滤:(i) 不含咪唑的缓冲液“缓冲液 A”(8 M 尿素,50 mM 一碱磷酸钠,20 mM Tris 碱,5 mM TCEP),pH 8.0;(ii) 500 mM 咪唑缓冲液“缓冲液 B”(8 M 尿素,50 mM 一碱磷酸钠,20 mM Tris 碱,5 mM TCEP,500 mM 咪唑),pH 8.0;以及 (iii) 异丙醇洗涤液(20 mM Tris,60% 异丙醇),pH 8.0。
注意:每种缓冲液的 pH 值均使用 5 N NaOH 调节。 - 平衡 His 柱。
注意:对于实验室规模的制备,本方案使用 5 mL 预装 His 柱,但也可使用任何更大规格的柱子。- 打开 FPLC 软件,点击 新建方法 选项。界面将立即跳转至 方法设置 菜单。在柱位下拉菜单中选择 C1 3 号端口。
- 在 按技术显示 的下拉菜单中选择 亲和层析。在 柱类型 下拉菜单中选择 其他,Histrap HP,5 mL。柱体积和压力框将自动设置为相应数值。
- 点击 方法流程 按钮。从 阶段库 弹出菜单中依次将以下按钮拖拽至箭头右侧: 平衡、上样、柱洗涤 和 洗脱,顺序必须准确。关闭 阶段库 菜单。
- 点击 平衡 按钮。表中列出的数值应为“初始缓冲液 B”(4%),“最终缓冲液 B”(4%),“体积(CV)”为 5。
- 点击 上样 框。在样品加载框中,选中 使用样品泵将样品注入柱中 的单选按钮。确保在“使用系统泵进行样品注入”框中,使用方法设置中的流速 选项已被勾选。在屏幕右侧的体积框旁,将数值更改为 20 mL。
- 点击 柱洗涤 按钮。表中列出的数值应为“初始缓冲液 B”(4%),“最终缓冲液 B”(4%),“体积(CV)”为 5。在馏分收集方案旁,取消勾选 启用框。
- 点击 洗脱 按钮。表中列出的数值应为“初始缓冲液 B” 0%,“最终缓冲液 B” 100%,“体积(CV)”为 5。在馏分收集方案旁,点击 启用 框。取消勾选 使用方法设置中的馏分大小,并在下方输入框中将馏分大小调整为 4 mL。
- 点击软件顶部的 另存为 按钮。将文件命名为“平衡”。
- 将 5 mL 预装 His 柱连接至 FPLC 的对应柱位 3 号端口。泵 A 和泵 B 的管路以及样品泵管路均应置于 0.22 µm 过滤的去离子水中。运行平衡程序。
- 将泵 A、泵 B 以及样品泵的管路均移入不含咪唑的缓冲液(缓冲液 A)中,再次运行平衡程序。
- 将样品结合至柱上并纯化蛋白。
- 打开 FPLC 软件,点击 新建方法 选项。界面将立即跳转至 方法设置 菜单。在 柱位 下拉菜单中选择 C1 3 号端口。在 按技术显示 下拉菜单中选择 亲和层析。在柱类型下拉菜单中选择 其他,Histrap HP,5 mL。柱体积和压力框将自动设置为相应数值。
- 点击 方法流程 按钮。从 阶段库 弹出菜单中依次将以下按钮拖拽至箭头右侧: 平衡、上样、柱洗涤(洗涤 1)、柱洗涤(洗涤 2)、柱洗涤(洗涤 3)和 洗脱,顺序必须准确。关闭 阶段库 菜单。
- 点击 平衡 按钮。表中列出的数值应为“初始缓冲液 B” 4%,“最终缓冲液 B” 4%,“体积(CV)”为 5。
- 点击 上样 框。在样品加载框中,选中 使用样品泵将样品注入柱中 的单选按钮。确保在“使用系统泵进行样品注入”框中,使用方法设置中的流速 选项已被勾选。
- 在屏幕右侧的体积框旁,将数值更改为 100 mL。在馏分收集方案旁,点击 启用 按钮。取消勾选 使用方法设置中的馏分大小 框,然后将馏分大小更改为 4 mL。
- 点击第一个柱洗涤按钮(洗涤 1)。表中列出的数值应为“初始缓冲液 B” 4%,“最终缓冲液 B” 4%,“体积(CV)”为 10。在馏分收集方案旁,点击 启用 框。取消勾选 使用方法设置中的馏分大小,然后将馏分大小更改为 4 mL。
- 点击第二个柱洗涤按钮(洗涤 2)。表中列出的数值应为“初始缓冲液 B” 0%,“最终缓冲液 B” 0%,“体积(CV)”为 5。在馏分收集方案旁,点击 启用 框。取消勾选 使用方法设置中的馏分大小,然后将馏分大小更改为 4 mL。
- 点击第三个柱洗涤按钮(洗涤 3)。表中列出的数值应为“初始缓冲液 B” 0%,“最终缓冲液 B” 0%,“体积(CV)”为 5。在馏分收集方案旁,点击 启用。取消勾选 使用方法设置中的馏分大小 框,然后将馏分大小更改为 4 mL。
- 点击 洗脱 按钮。在表格中右键点击所列信息,在弹出菜单中选择 删除步骤。将等度梯度按钮拖拽至表格中两次,使表格中出现两个条目。
- 第一个条目的数值应为“初始缓冲液 B” 30%,“最终缓冲液 B” 30%,“体积(CV)”为 10。第二个条目的数值应为“初始缓冲液 B” 100%,“最终缓冲液 B” 100%,“体积(CV)”为 10。在馏分收集方案旁,点击 启用 按钮。勾选 使用方法设置中的馏分大小 旁边的框。
- 点击软件顶部的 另存为 按钮。将文件命名为“纯化”。FPLC 的泵 A 管路应置于不含咪唑的洗涤缓冲液中,泵 B 管路应置于 500 mM 咪唑缓冲液中。样品泵管路应置于 100 mL 样品中。
- 运行“纯化”程序,并等待需要 60% 异丙醇的步骤(洗涤 2)到来。暂停程序,将泵 A 管路从不含咪唑的洗涤缓冲液中移至 60% 异丙醇洗涤液中。重新启动程序。
- 异丙醇步骤完成后,再次暂停程序,将泵 A 管路移回不含咪唑的洗涤缓冲液中。重新启动纯化程序(后续步骤为自动运行)。
4. 通过SDS-PAGE进行纯度评估和蛋白质鉴定
- 分别将对应于(i)穿流液(未结合到 His 柱上的细胞裂解液)、(ii)洗涤液 1、(iii)洗涤液 3(60% 异丙醇洗涤)和(iv)洗涤液 3 的所有组分收集至不同的 50 mL 圆底离心管中。不要合并洗脱步骤中的 2 mL 组分。
- 取每种混合组分以及所有洗脱组分各 15 µL,与 2x Laemmli 上样缓冲液在 0.5 mL 微量离心管中混合,并在 95 °C 下变性 10 分钟。
- 在蛋白质变性的同时,使用 3 块 4–20% 的预制无染 Stain-Free 聚丙烯酰胺凝胶,在 1x Tris-甘氨酸 SDS-PAGE 电泳缓冲液中安装好凝胶电泳装置。
- 在第一孔中加入 8 µL 分子量标准品,其余各孔加入 30 µL 变性样品。以 200 V 电压电泳,直至染料前沿迁移至凝胶底部(约 30 分钟)。将凝胶从装置中取出,用去离子水短暂漂洗,并立即使用无染成像系统对凝胶成像。
- 鉴定含有正确大小蛋白条带(18.07 kDa)的组分,并合并所有这些组分。
5. 通过蛋白质印迹法鉴定蛋白质
- 使用 His 特异性抗体(抗 6x HisTag)和 SHB 特异性抗体(167-D-IV)进行 Western 印迹,以鉴定纯化的全长蛋白。抗 6x HisTag 抗体识别蛋白的 N 末端,167-D-IV 抗体识别 C 末端,从而证实全长蛋白的存在。
- 使用分光光度计在 280 nm 吸光度下测定(i)流穿组分、(ii)洗涤 1、(iii)洗涤 2(60% 异丙醇洗涤)、(iv)洗涤 3 以及所有洗脱组分的蛋白浓度。为每组样品制备含有 100 ng 蛋白的 15 µL 无咪唑缓冲液稀释液。
- 向每份 15 µL 样品中加入 15 µL 2x Laemmli 上样缓冲液,并按步骤 4.1 进行变性。变性完成后离心管体,以确保所有蛋白均可转移。
- 将样品和预染蛋白 Marker 加入无染色 4–20% 预制聚丙烯酰胺凝胶中。以 200 V 电压进行电泳,直至染料前沿迁移至凝胶底部。
- 在电泳过程中,配制 1 L TBS-T(20 mM Tris、150 mM NaCl 和 0.1% Tween 20)以及 200 mL 含 5% 脱脂奶粉的 TBS-T。
- 使用 Western 印迹转膜系统将蛋白转移至硝酸纤维素膜。使用预组装的转膜夹层结构并将凝胶置于其中。设置系统在 25 V 条件下运行 7 分钟。检查硝酸纤维素膜上预染蛋白 Marker 的存在,以确认转膜完全。
注意:后续所有步骤均在室温(RT)下、以 100 rpm 转速的摇床上进行。 - 转膜完成后,用 TBS-T 洗涤印迹膜两次,每次 10 分钟。
- 用含 5% 脱脂奶粉的 TBS-T 封闭硝酸纤维素膜(印迹膜)至少 1 小时。随后用 TBS-T 洗涤印迹膜两次,每次 10 分钟。
- 将 167-D-IV 和抗 6x HisTag 一抗分别用 TBS-T 稀释至 1 mg/mL(储存抗体)。将 167-D-IV 储存抗体稀释 10,000 倍,抗 6x HisTag 储存抗体稀释 5,000 倍:分别取 2 µL 167-D-IV 储存抗体和 4 µL 抗 6x HisTag 储存抗体,加入两个不同的含有 20 mL TBS-T 的离心管中。将总共 20 mL 的一抗溶液分别加入各自的印迹膜中,孵育 1 小时。随后用 TBS-T 洗涤印迹膜两次,每次 10 分钟。
- 将 4 µL 浓度为 1 mg/mL 的碱性磷酸酶标记的小鼠抗人二抗加入 20 mL TBS-T 中稀释(1:5,000 稀释)。将 4 µL 浓度为 1 mg/mL 的碱性磷酸酶标记的山羊抗小鼠二抗加入 20 mL TBS-T 中稀释(1:5,000 稀释)。将相应的二抗分别加入对应的印迹膜中。
注意:抗人二抗结合 167-D-IV,抗小鼠二抗结合抗 6x HisTag。用 TBS-T 洗涤印迹膜两次,每次 10 分钟。 - 加入足量的 BCIP/NBT 碱性磷酸酶底物覆盖印迹膜。显色约 10 分钟,直至条带出现。用冷水冲洗印迹膜,干燥后使用平板扫描仪扫描。
6. SHB-SAPN 的复性
- 将汇集的蛋白质(总体积10‒20 mL)加入10 kDa分子量截留透析盒中,于含8 M尿素、20 mM Tris、5%甘油、5 mM TCEP、pH 8.5的透析缓冲液中,在室温(18‒26 °C)下透析过夜。
- 通过每2小时逐步降低2 M尿素浓度的方式,缓慢去除样品中的尿素。当尿素浓度降至2 M时,将透析装置转移至4 °C(此步骤起透析缓冲液中不再使用TCEP)。最后在4 °C下,将样品于含120 mM尿素、20 mM Tris、5%甘油、pH 8.5的缓冲液中透析过夜,完成复性过程。
- 从透析盒中取出复性后的蛋白(SHB-SAPN)。使用0.22 µm聚偏二氟乙烯(PVDF)注射器滤器过滤SHB-SAPN。将SHB-SAPN分装至无菌管中,于-80 °C冷冻保存,并在室温下至少保留100 µL用于后续分析。
7. 通过大小和外观验证颗粒
- 动态光散射(DLS)
- 使用以下参数测量 SHB-SAPN 的平均粒径:选择蛋白质作为材料,配制含有 120 mM 尿素、20 mM Tris、5% 甘油的复合缓冲液,温度设为 25 °C,选择一次性比色皿进行分析,选择自动测量模式,设置重复 5 次。
- 将 45 µL SHB-SAPN 加入一次性比色皿中,点击绿色箭头运行软件。选择以体积百分比作为读数结果。
- 纳米颗粒追踪分析(NTA)
- 用复性缓冲液将样品按 1:20 比例稀释,制备 10 mL 稀释后的样品。
- 使用 3 mL 注射器,先用复性缓冲液冲洗 NTA 仪器,然后注入约 1.5 mL 样品以平衡仪器。其余样品用于后续分析。
- 在 NTA 软件中点击 SOP 标签创建新的标准操作程序。在该标签下,将捕获次数更改为 3 次,捕获时间更改为 30 秒。点击屏幕左侧的 autofocus 按钮使样品进入焦点,再使用仪器侧面的手动调焦旋钮精细调节焦点。
- 运行所创建的 SOP,当系统提示时,用注射器加载少量样品。系统完成所有捕获后将自动进入分析界面。滑动检测阈值条,使所有真实颗粒均被红色十字标记。点击“运行分析”按钮,系统将自动开始分析。
- 透射电子显微镜(TEM)
- 对 400 目铜网载有 Formvar/碳膜的支撑膜进行辉光放电处理。
- 将浓度为 0.075 mg/mL 的样品 3 µL 加至载网,孵育 30 秒,用滤纸吸去液体。
- 用 3 µL 去离子水洗涤载网三次,每次均用滤纸吸去水分。
- 向支撑膜上加入 3 µL 0.5% 醋酸铀酰溶液,静置 30 秒。吸去大部分醋酸铀酰溶液,但保留表面一层薄液膜。待样品干燥后,再置于透射电子显微镜下成像。
- 在透射电子显微镜上以 80 kV 电压对样品进行成像。
8. 使用动态鲎试剂变形细胞溶解物(LAL)检测法测定样品中的内毒素水平
- 从冰箱中取出试剂盒和样品,并使其平衡至室温。
- 进行本检测需要使用带有加热模块的酶标仪,并能够在37 °C条件下于405 nm波长下对样品进行40次读数。编写程序模板,使每150秒读取一次各孔,以确定起始时间点(即吸光度较第一次读数增加0.2时)。
- 用PBS将样品稀释至免疫剂量浓度。
注意:复性缓冲液的pH值超出LAL检测的适用范围。将样品用PBS稀释可使pH值调整至检测可接受的范围内。 - 根据分析证书确定的体积,用无内毒素的LAL级水重悬对照内毒素,配制成50 EU/mL的溶液。剧烈涡旋振荡小瓶15分钟,以确保内毒素完全重悬。
- 在玻璃小瓶中用10倍系列稀释法配制内毒素标准曲线,浓度范围为50 EU至0.005 EU/mL。每次稀释时,将0.1 mL前一浓度稀释液加入0.9 mL LAL级水中。混合后剧烈涡旋振荡1分钟。
- 将标准曲线各稀释液和SHB-SAPN样品分别以双复孔形式加入96孔板中。同时以LAL级水作阴性对照,也设双复孔。将板在37 °C预孵育15分钟。
- 在孵育接近结束时,用2.6 mL LAL级水重悬检测试剂小瓶。用移液管轻轻吹打混匀内容物。
- 向96孔板的每孔中加入100 µL检测试剂。迅速将板转移至酶标仪,并运行第8.2步中编写的程序模板。
- 程序运行结束后,以对照品的对数值与起始时间的对数值绘制标准曲线。利用该曲线生成的公式计算样品中的内毒素浓度。
结果
此处所示的完全组装的 SHB-SAPN 基于蛋白质序列构建(图1A)预测可折叠形成包含60个单体拷贝的颗粒(图1B). 图2 概述了SHB-SAPN核心的制备、纯化及鉴定方法。 E. coli 从含有携带SHB-SAPN核心基因序列的pPep-T表达载体的甘油菌中诱导BL21 (DE3) E. coli 细菌细胞在变性与还原条件下成功培养并裂解。
采用全细胞裂解液,通过Ni2+柱亲和层析(FPLC)纯化SHB-SAPN单体(图3A)。FPLC洗脱图谱显示,蛋白在150 mM和500 mM咪唑浓度下均有洗脱(图3A)。色谱图中还可见另外两个峰,分别对应总体积185 mL和210 mL处的异丙醇洗涤峰和无咪唑洗涤峰。通过梯度SDS-PAGE凝胶分析各组分及重组蛋白纯度(图3B)。目标蛋白主要存在于第68–79组分(总体积278–300 mL)中。将这些组分合并用于后续分析。使用抗His抗体(N端)和167-D-IV抗体(C端)进行的Western blot检测表明,合并的组分确为目标蛋白(图4A,B)。这些印迹结果同时显示了SHB-SAPN多聚体的存在。较早的洗涤组分和洗脱组分中多聚化蛋白浓度较高,因此被排除。
含有目标蛋白单体的样品通过透析折叠形成完全组装的SHB-SAPN。通过动态光散射(DLS)和纳米颗粒追踪分析确定了颗粒的尺寸分布(图5A,B)。DLS测得颗粒的Z平均流体力学直径为67 nm,而NTA系统测得的平均粒径为81 nm。这种微小的尺寸差异源于不同的颗粒尺寸测定技术,但两种分析方法所得结果均处于预期的20‒100 nm范围内8,24,25。通过透射电子显微镜(TEM)观察SHB-SAPN,图像显示颗粒形态完整,且尺寸分布与上述两种颗粒测定技术的结果一致(图5C)。
在蛋白纯化过程中,使用异丙醇洗涤层析柱,以降低最终SHB-SAPN产物中的LPS污染。为验证内毒素水平是否达到可用于免疫的可接受标准,采用动力学LAL法检测了经异丙醇洗涤步骤纯化与未经该步骤纯化的SHB-SAPN样品中的LPS浓度。结果表明,异丙醇洗涤可将内毒素水平从>0.25 EU/µg降低至0.010 EU/µg SHB-SAPN蛋白(表1)。
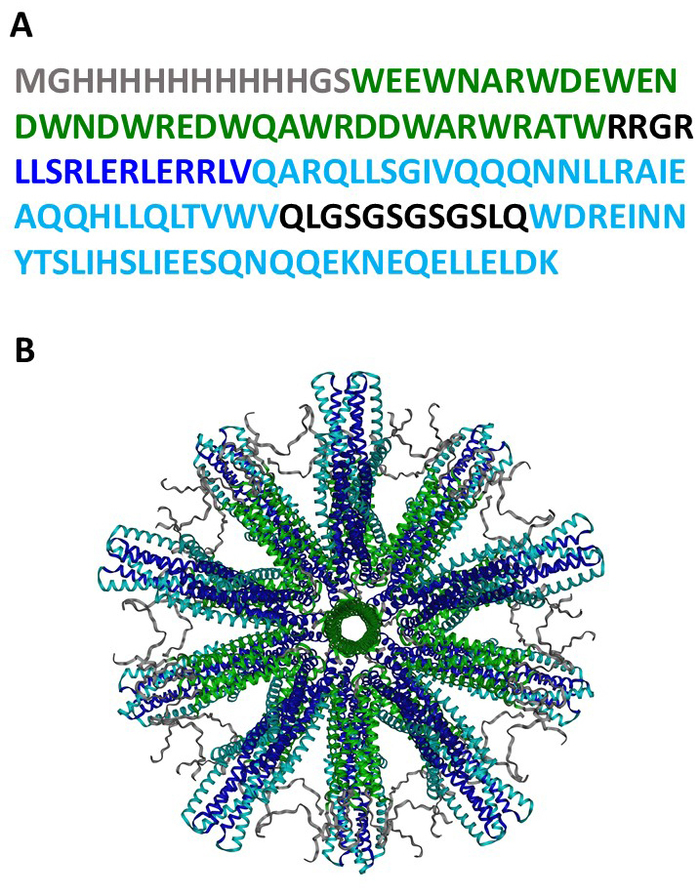
图 1:SHB-SAPN 蛋白质序列与结构。(A)SHB-SAPN 单体的氨基酸序列。(B)由 60 个蛋白质单体完全组装而成的 SHB-SAPN 核心结构的计算机模型。氨基酸序列着色方案:灰色 = HisTag;绿色 = 五聚体;深蓝色 = 从头设计的三聚体;浅蓝色 = 六螺旋束。请点击此处查看该图的放大版本。

图2:SHB-SAPN制备方案的流程图。颜色说明:黑色 = 在E. coli中表达蛋白单体;深灰色 = 单体纯化;中灰色 = 单体鉴定;浅灰色 = 复性与表征;白色 = 完全组装的SHB-SAPN产物。在标记为深灰和中灰色的步骤中,蛋白处于变性与还原条件下。请点击此处查看该图的放大版本。

图3:SHB-SAPN单体蛋白的纯化。(A)FPLC纯化过程的层析图。层析图上方的绿色线条表示纯化步骤。层析图中的蓝色线条代表各组分在280 nm波长下的光密度值。黑色线条显示在纯化各阶段所使用的缓冲液B(8 M 尿素,20 mM Tris,50 mM 一碱性磷酸钠,5 mM TCEP,500 mM 咪唑,pH 8.5)的百分比。(B)来自裂解液(L)、穿流组分(FT)、第一次洗涤(W1)、异丙醇洗涤(W2)、第三次洗涤(W3),以及纯化过程中150 mM 咪唑(E150)和500 mM 咪唑(E500)洗脱步骤的各个组分的SDS-PAGE凝胶图。第一道(M)中的分子量标记物可识别10至250 kDa之间的蛋白条带。目标蛋白由黑色箭头指示。请点击此处查看该图的放大版本。

图 4:通过 Western 印迹鉴定蛋白质。 所有泳道均上样 100 ng 蛋白质。(A)使用抗 6x HisTag 抗体进行 Western 印迹的结果。(B)使用 167-D-IV HIV-1 单克隆抗体进行 Western 印迹的结果。泳道标注如下:M = 分子量标记物;1 = 裂解液;2 = 流穿组分;3 = 第一次洗涤组分;4 = 异丙醇洗涤(第二次洗涤);5 = 第三次洗涤;6 = 合并的第 56–61 管体积组分(第一个洗脱峰);7 = 合并的第 62–67 管体积组分(两个峰之间);8 = 合并的第 68–78 管体积组分(第二个洗脱峰)。黑色箭头指示预期大小为 18.07 kDa 的目标蛋白,即单体 SHB-SAPN 条带。泳道 7 和 8 中额外出现的条带为 SHB-SAPN 的二聚体、三聚体及多聚体(红色箭头)。请点击此处查看该图的放大版本。

图 5:重折叠 SHB-SAPN 的表征。(A)通过动态光散射(DLS)测定的颗粒尺寸分布。(B)通过纳米颗粒追踪分析系统测定的颗粒尺寸。(C)透射电子显微镜(TEM)观察 SHB-SAPN 颗粒的形貌。请点击此处查看该图的高清版本。
| 样品 | 内毒素 (EU/mL) | 内毒素 (EU/µg 蛋白质) |
| SAPN 经异丙醇洗涤 | 2.02 | 0.01 |
| SAPN 未经异丙醇洗涤 | >50 | >0.25 |
| 阴性对照 | 低于检测限 | N/A |
表1:重折叠SHB-SAPNs的内毒素水平。 SHB-SAPN 样品经异丙醇洗涤或未洗涤纯化后的内毒素水平,分别以每毫升内毒素单位和每微克内毒素单位表示µg SHB-SAPN蛋白
讨论
纳米技术为亚单位疫苗的开发提供了诸多优势和解决方案。纳米疫苗能够以颗粒形式反复向宿主免疫系统呈递抗原,从而增强免疫原性26。尽管存在多种不同类型的纳米疫苗,但我们认为,由从头设计的蛋白质组成的疫苗是疫苗开发中最具有前景的方法1。这类疫苗可在无宿主蛋白序列同源性的前提下进行工程化改造,以接近天然构象的形式呈递目标抗原,同时具备生产成本低和产物产量高的优点。这一策略的典型范例是自组装蛋白纳米颗粒(SAPN)技术,我们已将其应用于多种传染病疫苗的研发7。针对HIV-1疫苗开发中的难题,我们设计了一种独特的SHB-SAPN核心结构,可有效以类似天然的三聚体构象呈递V1V2抗原9。许多疫苗靶点,尤其是病毒性疾病的相关靶点,天然状态下均以三聚体形式存在27。这一现象表明,我们的SAPN设计在亚单位疫苗开发中具有广泛的应用前景。
在本方法中,我们展示了如何在大肠杆菌(E. coli)表达系统中制备SHB-SAPN。我们获得了较高产量的蛋白(约每100 mL培养液6 mg)。该蛋白含有10个组氨酸残基,可利用Ni2+固定化金属亲和层析柱轻松纯化。该长度的His标签被确定为获得最高蛋白产量的最优条件。纯化后的蛋白包含完整长度的设计蛋白,N端His标签和C端七肽重复序列的存在证实了这一点。我们采用了广泛认可的技术,并对其进行了优化,以适用于SHB-SAPN核心的表达、制备和表征。在含有新蛋白表位的SAPN开发过程中,若未能产生全长蛋白,则可能表明该基因在宿主细胞中的表达存在问题。若出现此情况,必须重新设计基因和表达系统,并适配至本方案所述的流程。调整超声处理的时间或强度也可能提高预期全长蛋白的浓度。
通过动态光散射(DLS)和纳米颗粒追踪分析测定,复性后的颗粒大小处于预期范围(20 至 100 nm)8,24,25。这些结果进一步通过透射电子显微镜(TEM)得到了验证。如果此步骤出现问题,通常源于复性缓冲液的 pH 或离子强度不当。当粒径检测技术发现颗粒尺寸过大时,表明发生了聚集,可通过提高复性缓冲液的 pH 值来避免。若 DLS 无法检测到颗粒,应验证蛋白质浓度并检查缓冲液的 pH。进行 DLS 检测时,蛋白质终浓度应至少达到 100 µg/mL。若浓度并非问题所在,则提示存在大量较小且未完全形成的颗粒,可通过降低 pH 值来减少其含量。此外,也可调节氯化钠浓度至最佳范围,以最大限度减少尺寸不符合要求的颗粒出现。
最后,通过在纯化过程中加入异丙醇洗涤步骤,我们能够减少宿主中污染的LPS E. coli 至0.01 EU/µg SAPN,低于美国食品药品监督管理局(FDA)对注射类产品的限值(5 EU/kg体重)28此水平还可通过使用阴离子交换柱(也称为Q柱)进一步降低。如果内毒素水平仍然较高,请检查用于缓冲液配制的所有材料。务必在本方法中仅使用去热原玻璃器皿和无内毒素塑料制品。
这些结果表明,我们已成功开发出一种可用于临床前免疫研究的SHB-SAPN核心的制备方法。该方法即使需要修改,也仅需轻微调整,即可应用于添加了目标抗原的SHB-SAPN的纯化。以此方法为起点,其中一项主要变化在于洗脱步骤:不同蛋白质在不同浓度的咪唑中洗脱,其具体浓度必须通过实验确定。另一项主要差异可能是复性缓冲液的组成,其优化需要测试不同的pH条件以及离子强度。
考虑到未来的研究工作,只需进行两项轻微修改,即可将 SHB-SAPN 应用于人类。第一项修改是由于人类对氨苄青霉素存在过敏反应,需要将表达载体中的筛选标记更换为卡那霉素抗性标记29。蛋白质生产用于人体的另一项主要要求是在无动物源成分的培养基中制备 SHB-SAPN。已有小规模研究表明,在植物来源的培养基中可获得较为合理的蛋白产量。本文所展示的工作易于放大,可最终实现符合药品生产质量管理规范(GMP)的生产,这一点已在疟疾疫苗候选物 FMP014 的研究中得到证实16。大规模 FMP014-SAPN 生产过程包含了阴离子交换和阳离子交换步骤,以进一步降低最终产品中的脂多糖(LPS)和 Ni2+ 含量。这种由细菌表达的 SAPN 已经完成放大生产,将用于即将开展的 1 期/2a 期临床试验。
披露
观点仅代表作者个人,不应被解释为代表美国陆军或国防部的立场。Peter Burkhard 对一家名为 Alpha-O Peptides AG 的公司拥有权益,并拥有该技术的相关专利。其他作者均未与任何对本文所述主题具有经济利益的公司存在隶属关系或财务往来。
致谢
本研究工作得到了亨利·M·杰克逊军事医学促进基金会与美国国防部之间签订的合作协议(W81XWH-11-2-0174)的支持。抗HIV-1 gp41单克隆抗体167-D IV由Susan Zolla-Pazner博士通过美国国立卫生研究院(NIH)艾滋病试剂项目提供。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 10x Tris/甘氨酸/SDS | BioRad | 1610732 | 1 L |
| 2-巯基乙醇 | BioRad | 1610710 | 25 mL |
| 2-丙醇 | Fisher | BP26181 | 4 L |
| 2x Laemmli 上样缓冲液 | BioRad | 1610737 | 30 mL |
| 40 µl 比色皿,每包100个,带塞 | Malvern Panalytical | ZEN0040 | 100 个/包 |
| 4–20% Mini-PROTEAN TGX 预制蛋白凝胶,10孔,30 µl | BioRad | 4561093 | 10 个/包 |
| 氨苄青霉素 | Fisher | BP1760-25 | 25 g |
| 抗6X His标签抗体 [HIS.H8] | AbCam | ab18184 | 100 mg |
| 抗HIV-1 gp41 单克隆抗体 (167-D IV) | AIDS Reagent Repository | 11681 | 100 mg |
| BCIP/NBT 底物溶液 | Southern Biotech | 0302-01 | 100 mL |
| Corning 一次性真空过滤/储存系统 | Fisher | 09-761-108 | 多种规格 |
| Formvar/碳膜铜网,400目,网格孔径约:42µm | Ted Pella, Inc | 01754-F | 25 个/包 |
| GE Healthcare 5 mL HisTrap HP 预装柱 | GE HealthCare | 45-000-325 | 5 个/包 |
| 甘油 | Fisher | BP229-4 | 4 L |
| 山羊抗小鼠IgG H&L(碱性磷酸酶) | ABCam | ab97020 | 1 mg |
| 咪唑 | Fisher | O3196-500 | 500 g |
| 速溶脱脂奶粉 | Quality Biological | A614-1003 | 10 包 |
| Kinetic-QCL 动态显色LAL检测法 | Lonza Walkersville | 50650U | 192 次检测试剂盒 |
| LAL试剂级多孔板 | Lonza Walkersville | 25-340 | 1 块 |
| Magic MediaE. coli 表达培养基 | ThermoFisher | K6803 | 1 L |
| MilliporeSigma Millex 无菌注射式 0.22 mm 滤器 | Millipore | SLGV033RB | 250 个/包 |
| 小鼠抗人IgG Fc-AP | Southern Biotech | 9040-04 | 1.0 mL |
| One Shot BL21 Star (DE3) 化学感受态 E. coli | ThermoFisher | C601003 | 20 瓶 |
| Precision Plus Protein 未标记蛋白标准品,Strep标签重组蛋白 | BioRad | 1610363 | 1 mL |
| Slide-A-Lyzer 透析夹,10K MWCO,12 mL | ThermoFisher | 66810 | 8 个/包 |
| 氯化钠 | Fisher | BP358-212 | 2.5 kg |
| 磷酸二氢钠 | Fisher | BP329-500 | 500 g |
| Tris碱 | Fisher | BP152-1 | 1 kg |
| 三(2-羧乙基)膦盐酸盐 | Biosynth International | C-1818 | 100 g |
| 醋酸铀,试剂级,A.C.S | Electron Microscopy Services | 541-09-3 | 25 g |
| 尿素 | Fisher | BP169-500 | 2.5 kg |
| Whatman 定性滤纸 | Sigma Aldrich | WHA10010155 | 500 张/包 |
| 名称 | 公司 | 货号 | 备注 |
| 设备 | |||
| ChromLab 软件 v4 | BioRad | 12009390 | 软件 |
| Epoch 2 微孔板分光光度计 | BioTek | EPOCH2 | 酶标仪 |
| Fiberlite F14-14 x 50cy 固定角转子 | ThermoFisher | 096-145075 | 转子 |
| Gel Doc EZ 凝胶成像系统 | BioRad | 1708270 | 用于免染凝胶成像 |
| JEOL 透射电子显微镜 | JEOL | 1400 | 透射电子显微镜 |
| Mini-PROTEAN Tetra 垂直电泳槽(用于小型预制凝胶) | BioRad | 1658004 | 用于跑胶 |
| NanoDrop One 微量紫外-可见分光光度计 | ThermoFisher | ND-ONE-W | 用于蛋白浓度测定 |
| NanoSight NS300 | Malvern Panalytical | 粒径分析 | |
| NanoSight NTA 软件 | Malvern Panalytical | 粒径分析 | |
| New Brunswick Innova 44/44R | Eppendorf | M1282-0000 | 培养箱/摇床 |
| NGC Quest 10 层析系统 | BioRad | 7880001 | 用于辅助蛋白纯化的FPLC系统 |
| PELCO easiGlow 电晕放电清洗系统 | Ted Pella, INC | 91000S | 用于清洗载网 |
| PowerPac Universal 通用电源 | BioRad | 1645070 | 用于跑胶 |
| 摇床振荡器 | Daigger | EF5536A | 用于Western blot |
| Sonifer 450 | Branson | 也称为 096-145075 | 超声破碎仪 |
| Thermo Scientific Sorvall LYNX 4000 超高速离心机 | ThermoFisher | 75-006-580 | 离心机 |
| Trans-Blot Turbo Mini 硝酸纤维素转膜试剂盒 | BioRad | 1704158 | 用于Western blot |
| Trans-Blot Turbo 转膜系统 | BioRad | 1704150 | 用于Western blot |
| Vortex-Genie 2 涡旋振荡器 | Daigger | EF3030A | 涡旋振荡器 |
| Zetasizer Nano ZS | Malvern Panalytical | 粒径分析 | |
| Zetasizer 软件 | Malvern Panalytical | 粒径分析 |
参考文献
- Karch, C. P., Burkhard, P. Vaccine technologies: From whole organisms to rationally designed protein assemblies. Biochemical Pharmacology. 120, 1-14 (2016).
- Snapper, C. M. Distinct Immunologic Properties of Soluble Versus Particulate Antigens. Frontiers in Immunology. 9, 598(2018).
- Kelly, H. G., Kent, S. J., Wheatley, A. K. Immunological basis for enhanced immunity of nanoparticle vaccines. Expert Review of Vaccines. , 1-12 (2019).
- Yeates, T. O. Geometric Principles for Designing Highly Symmetric Self-Assembling Protein Nanomaterials. Annual Review of Biophysics. 46, 23-42 (2017).
- Marcandalli, J., et al. Induction of Potent Neutralizing Antibody Responses by a Designed Protein Nanoparticle Vaccine for Respiratory Syncytial Virus. Cell. 176 (6), 1420-1431 (2019).
- Ross, J. F., et al. Decorating Self-Assembled Peptide Cages with Proteins. ACS Nano. 11 (8), 7901-7914 (2017).
- Karch, C. P., Matyas, G. R., Burkhard, P., Beck, Z. Self-Assembling Protein Nanoparticles: implications for HIV-1 vaccine development. Nanomedicine (Lond). 13 (17), 2121-2125 (2018).
- Raman, S., Machaidze, G., Lustig, A., Aebi, U., Burkhard, P. Structure-based design of peptides that self-assemble into regular polyhedral nanoparticles). Nanomedicine. 2 (2), 95-102 (2006).
- Karch, C. P., et al. Design and characterization of a self-assembling protein nanoparticle displaying HIV-1 Env V1V2 loop in a native-like trimeric conformation as vaccine antigen. Nanomedicine. , (2018).
- Karch, C. P., et al. The use of a P. falciparum specific coiled-coil domain to construct a self-assembling protein nanoparticle vaccine to prevent malaria. Journal of Nanobiotechnology. 15 (1), 62(2017).
- Li, J., et al. A self-adjuvanted nanoparticle based vaccine against infectious bronchitis virus. PLoS One. 13 (9), e0203771(2018).
- Wahome, N., et al. Conformation-specific display of 4E10 and 2F5 epitopes on self-assembling protein nanoparticles as a potential HIV vaccine. Chemical Biology & Drug Design. 80 (3), 349-357 (2012).
- El Bissati, K., et al. Effectiveness of a novel immunogenic nanoparticle platform for Toxoplasma peptide vaccine in HLA transgenic mice. Vaccine. 32 (26), 3243-3248 (2014).
- Kaba, S. A., et al. A nonadjuvanted polypeptide nanoparticle vaccine confers long-lasting protection against rodent malaria. Journal of Immunology. 183 (11), 7268-7277 (2009).
- Kaba, S. A., et al. Protective antibody and CD8+ T-cell responses to the Plasmodium falciparum circumsporozoite protein induced by a nanoparticle vaccine. PLoS One. 7 (10), e48304(2012).
- Seth, L., et al. Development of a self-assembling protein nanoparticle vaccine targeting Plasmodium falciparum Circumsporozoite Protein delivered in three Army Liposome Formulation adjuvants. Vaccine. 35 (41), 5448-5454 (2017).
- Kaba, S. A., et al. Self-assembling protein nanoparticles with built-in flagellin domains increases protective efficacy of a Plasmodium falciparum based vaccine. Vaccine. 36 (6), 906-914 (2018).
- El Bissati, K., et al. Protein nanovaccine confers robust immunity against Toxoplasma. NPJ Vaccines. 2, 24(2017).
- Karch, C. P., et al. Vaccination with self-adjuvanted protein nanoparticles provides protection against lethal influenza challenge. Nanomedicine. 13 (1), 241-251 (2017).
- Haynes, B. F., et al. Immune-correlates analysis of an HIV-1 vaccine efficacy trial. New England Journal of Medicine. 366 (14), 1275-1286 (2012).
- Rerks-Ngarm, S., et al. Vaccination with ALVAC and AIDSVAX to prevent HIV-1 infection in Thailand. New England Journal of Medicine. 361 (23), 2209-2220 (2009).
- O' Connell, R. J., Kim, J. H., Excler, J. L. The HIV-1 gp120 V1V2 loop: structure, function and importance for vaccine development. Expert Review of Vaccines. 13 (12), 1489-1500 (2014).
- Babapoor, S., et al. A Novel Vaccine Using Nanoparticle Platform to Present Immunogenic M2e against Avian Influenza Infection. Influenza Research and Treatment. 2011, 126794(2011).
- Indelicato, G., Burkhard, P., Twarock, R. Classification of self-assembling protein nanoparticle architectures for applications in vaccine design. Royal Society Open Science. 4 (4), 161092(2017).
- Indelicato, G., et al. Principles Governing the Self-Assembly of Coiled-Coil Protein Nanoparticles. Biophysical Journal. 110 (3), 646-660 (2016).
- Doll, T. A., Raman, S., Dey, R., Burkhard, P. Nanoscale assemblies and their biomedical applications. Journal of the Royal Society Interface. 10 (80), 20120740(2013).
- Rey, F. A., Lok, S. M. Common Features of Enveloped Viruses and Implications for Immunogen Design for Next-Generation Vaccines. Cell. 172 (6), 1319-1334 (2018).
- Bacterial Endotoxins. United States Pharmacopeia (USP). , Ch. 85 (2011).
- Points to Consider (PTC) in the Characterization of Cell Lines Used to Produce Biologicals. , Food and Drug Adminstration. Maryland. Available from: https://www.fda.gov/media/76255/download (1993).
重印与许可
