由于专性厌氧生物在接触氧气时无法生长,因此必须采用厌氧培养技术。本文展示了一种简单有效的方法,用于培养来自沼气厂的混合菌群,内容涵盖从培养基制备到气体和挥发性脂肪酸定量的全过程。
本文内容
摘要
摘要
与好氧生物不同,严格厌氧微生物需要在无氧环境及通常较低的氧化还原电位下才能启动生长。由于氧气在空气中无处不在,维持培养体系中氧气的缺失2在整个培养过程的所有步骤中维持无氧条件具有挑战性,但这是厌氧培养的先决条件。本文所述方案展示了一种利用简单且低成本的方法,成功培养源自沼气厂的厌氧混合菌群的技术。方案详细描述了整个无氧培养流程,包括培养基制备、培养瓶的灌装、添加氧化还原指示剂和还原剂以实现低氧化还原电位,以及更换顶空气体以确保培养基不含氧气。此外,还提供了无菌接种气密性血清瓶(使用无菌注射器和针头)及适宜培养条件的详细说明。本方案还涵盖了气体和液体取样方法,用于后续通过气相色谱法(GC)分析气体组成,以及通过高效液相色谱法(HPLC)测定挥发性脂肪酸浓度,并结合理想气体定律计算沼气和甲烷产量。
引言
在地球上,分子氧在与大气直接接触的区域或在产氧光合生物存在的环境中以显著浓度存在。缺乏氧气的环境称为厌氧环境。然而,在厌氧条件下仍可通过两种不同的代谢过程实现能量转换,即发酵和厌氧呼吸1。
在进行有氧呼吸的生物体中,氧气作为末端电子受体,而无氧呼吸则需要硝酸盐或硫酸盐等替代性电子受体2。在所谓的“电子塔”中,氧化还原电对按照其氧化还原电位排列,电位最负的位于顶部(电子供体),而具有正氧化还原电位的最强氧化剂则位于底部(电子受体)。电子在供体与受体之间的传递通过所谓的呼吸链实现能量守恒,电子可被不同层级的电子受体“捕获”——沿用该比喻——即电子塔的不同“楼层”。因此,电子在电子塔中下落的高度越高,相应反应所能守恒的能量就越多。因此,即使在无氧环境中,呼吸作用仍可进行,例如利用包含NO3-/NO2-、延胡索酸/琥珀酸、SO32-/H2S、S°/H2S、Mn(IV)/Mn(II)、Fe(III)/Fe(II)等氧化还原电对的系统2,3。首先,所产生的能量以膜电位形式储存,随后通过电子传递磷酸化过程,由膜结合的ATP合酶用于合成三磷酸腺苷(ATP)。与有氧呼吸相比,无氧呼吸所能守恒的能量可能显著减少;然而,大多数无氧呼吸的能量产出仍高于发酵——后者是在缺乏氧气及其他末端电子受体的生境中进行的一种无氧能量守恒途径2。
在发酵过程中,富含能量的有机底物被降解为多种发酵产物,这些产物通常决定了整个过程的名称,例如酒精发酵。与呼吸过程不同,发酵过程中的ATP生成仅限于底物水平磷酸化,即从富含能量的磷酸化底物向二磷酸腺苷(ADP)转移一个磷酸基团2。发酵微生物在有机物的厌氧降解中起着核心作用,是底物分解的关键参与者。初级发酵产物(如有机酸、醇类、CO2 和 H2)可被次级发酵微生物进一步利用,生成乙酸、CO2 和 H2。常见的发酵产物包括乳酸、多种挥发性脂肪酸(甲酸、乙酸、丙酸、丁酸、戊酸)、正丁醇、2,3-丁二醇、丙酮和乙醇。
在严格厌氧条件下培养微生物所需的方法和设备与好氧微生物的培养截然不同。尽管耐氧微生物通常可在琼脂平板上进行培养,即所谓的表面培养,但严格厌氧微生物几乎无法采用这种方法(仅少数例外)。因此,严格厌氧微生物的富集培养主要在液体培养基中进行,使用带有气密隔膜密封的培养容器,以确保顶空环境无氧4,6,7。
本实验方案将提供从厌氧沼气池中获得的混合微生物群落中目标微生物的适宜培养方法。纯培养物的分离与培养更具挑战性,但不在本研究范围之内。
本文展示了一种基于厌氧消化含蛋白质底物过程中苯基酸形成研究的厌氧微生物群落培养方法8。该微生物群落包含厌氧消化四个阶段的成员:水解、酸化、产乙酸和产甲烷阶段。采用添加碳源、氧化还原指示剂、维生素和微量元素溶液以及还原剂的矿物盐培养基9,并在培养基中加入相应的含蛋白质的苯基酸前体底物8。
方案
1. 培养基的制备
- 制备氧化还原指示剂储备液(0.1 g刃天青/100 mL水溶液)。
- 制备维生素溶液(表1)。
- 制备微量元素溶液(表2)。
注意:添加顺序至关重要;请参考表2及相关操作步骤。 - 制备还原剂储备液(60 g Na2S/L水溶液)。
- 在适当的烧瓶中称取培养基成分(矿物盐培养基,表3)(例如,1 L螺口实验室烧瓶)。
注意:根据实验设置,可能需要额外添加碳源。 - 加入一半体积的蒸馏水(表3),并溶解各成分。
- 根据表3加入1 mL氧化还原指示剂溶液。
- 根据表3加入维生素溶液和微量元素溶液。
- 根据表3中培养基或目标生物的要求调节pH值。
注意:氧化还原指示剂的颜色受pH影响,可能需要一定时间才能稳定。 - 用蒸馏水定容至终体积1 L。
注意:维生素和微量元素溶液也可在高压灭菌后,通过无菌操作将过滤除菌的等分试样(稀释溶液,滤膜孔径 < 0.2 µm)加入预先密封并已灭菌的血清瓶中。但此方法污染风险较高。
2. 培养瓶的灌装
- 彻底清洁并干燥 120 mL 血清瓶。
注意:血清瓶有不同体积规格(例如 20、60、120、250 mL)。 - 彻底清洁并干燥丁基橡胶隔垫。
- 在培养瓶中称量额外的培养基组分(例如苯酸前体底物)。
注意:额外组分取决于实验设计和假设。 - 向血清瓶中加入 50 mL 培养基。
3. 液相中氧气的还原/去除
- 准备一个约 100 °C 的水浴。
- 将装满的血清瓶放入水浴中,孵育约 20–30 分钟,以降低液相中 O2 的溶解度。
- 立即用 N2 气体或其它气体(如 N2/CO2 混合气体)冲洗顶空部分。
警告:确保实验场所通风良好。 - 用丁基橡胶隔垫密封血清瓶,并用铝盖固定。
注意:在插入隔垫时,向瓶口滴加一滴水或培养基可使其更贴合瓶口。 - 向每瓶含 50 mL 培养基的血清瓶中加入 0.1 mL 还原剂(储备液),以进一步降低氧化还原电位(每 50 mL 培养基加入 0.1 mL 还原剂)。
- 在 121 °C 下高压灭菌 20 分钟。
警告:必须使用经认证可用于密闭容器灭菌的高压灭菌锅。否则,因温度升高产生的过压可能导致血清瓶爆炸。
4. 培养基接种
- 从厌氧消化器中制备接种物。
- 将400 mL蒸馏水加入烧瓶中并加热至沸腾。
- 冷却< 30 °C) 同时用 N 持续吹扫顶空部分2.
- 加入约 100 g 来自厌氧消化池的污泥。
注意:避免污泥与氧气过度接触。 - 记录所添加污泥的精确质量,以准确确定稀释倍数。
- 更换烧瓶中的顶空气体为N2 并用丁基橡胶隔垫密封。
- 以120 rpm振荡培养瓶30分钟。
- 使用注射器和套管移除5 mL接种物,并按照步骤1-3所述将其注入已准备好的血清瓶中。
5. 培养、取样与分析
- 将接种后的血清瓶置于适合相应实验的温度下孵育。
注意:孵育温度取决于实验设置和所用接种物。- 当血清瓶中的液体已达到孵育温度(约15–30分钟,具体时间取决于孵育温度)时,使用注射器和套管释放因温度升高引起的过压。
警告:根据所使用的底物种类、其浓度、温度、孵育时间、接种物类型及浓度的不同,瓶内压力可能升高多达 > 2 bar 的压力可能导致血清瓶爆炸。因此,必须使用压力计监测超压,并通过套管及时释放超压。
- 当血清瓶中的液体已达到孵育温度(约15–30分钟,具体时间取决于孵育温度)时,使用注射器和套管释放因温度升高引起的过压。
- 在孵育期间评估沼气产量和组分
注意:孵育期可持续数天至数周。- 记录当前大气压。
- 制备一个压力计,并评估由微生物活动在烧瓶内产生的压力。
- 摇动烧瓶。
- 使用注射器和套管移除1 mL顶空气体,并测量H2,O2, CH4,和/或 CO2 通过气相色谱法测定浓度。
注意:对于 H 的定性与定量分析2,O2, CH4,和 CO2, 使用气相色谱仪,操作温度设定为 160 °C (柱温箱), 100 °C (注射器),以及 180 °C (热导检测器,TCD)。N2 作为载气使用。详情请参见以往研究10.
- 监测挥发性脂肪酸(VFA)和苯基酸的浓度。进行VFA和苯基酸分析时,使用配备紫外检测器(220 nm)的高效液相色谱系统,流动相为5 mM H2SO4 作为流动相。有关该方法的详细信息及样品保存的附加说明,请参阅先前的研究。11.
注意:挥发性脂肪酸(VFA)的分析方法可作为许多其他理化分析或显微观察的代表性示例。此外,还可利用所述实验流程,开展针对特定微生物丰度和/或微生物群落组成分析的分子生物学方法。- 用注射器和套管移除1 mL液体。
注意:样品可冷冻(-20 °C实验结束时立即在撤出后进行分析11. - 在15,000–20,000 x g下离心 g 并通过 0.2 µm 再生纤维素(RC)滤膜
- 注射5-20 µL 上样至高效液相色谱系统,分析挥发性脂肪酸的组成以及苯酚类酸的浓度。
- 用注射器和套管移除1 mL液体。
- 使用套管释放烧瓶中的过压。
注意:在确定压力和气体组成并采集任何必要样品后,将培养瓶放回相应的温度环境中,并在液体达到孵育温度前不得释放超压。 - 计算沼气和甲烷产量 VCH4N 考虑理想气体状态方程,见公式 1-3。另请参见 表4.
公式 1: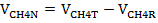
从而
公式 2: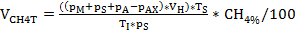
和
公式 3: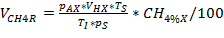
注意:在计算总生物气产量时,CH₄ 的量4% 和 CH4%X 在方程2和3中必须设为100。NmL:标准条件下归一化的气体体积(0 °C,1 atm),在此条件下,摩尔气体体积为 22.414 NmL/mmol。
结果
根据上述方案,在厌氧条件下向培养瓶中加入培养基,并检查其颜色是否合适(图1),随后将其用作进行厌氧消化的小型分批式生物反应器。向其中添加可能引起苯酸生成的底物,并以厌氧消化池污泥作为接种物进行培养(图2)。色氨酸、酪氨酸和苯丙氨酸,以及复杂的蛋白前体——肉浸膏和酪蛋白,分别以两种和三种不同浓度添加。对照组不额外添加底物。不同底物浓度旨在模拟不同程度的超负荷状态。培养瓶在37 °C(中温条件)下培养4周。
通过气相色谱法(GC TCD)10 和顶空气压测定,定期监测沼气产量及其组成(H2、CH4、CO2)。图3 展示了在4周厌氧培养期间,不同浓度底物消化后累积甲烷产量的差异。此外,通过照射产甲烷过程中的电子载体辅酶F420,可对产甲烷菌进行可视化观察,该辅酶在420 nm处具有最大吸收峰,并呈现蓝绿色荧光(图4)。
在进行气体分析的同时,采集样品用于通过高效液相色谱法(HPLC)测定挥发性脂肪酸(VFA)和苯基酸浓度11,样品采集后冷冻保存,直至进一步处理。图5展示了不同过载阶段的影响,以乙酸为例,显示在严重过载样品中其浓度的累积情况。图6展示了在培养期间苯基乙酸浓度的动态变化。
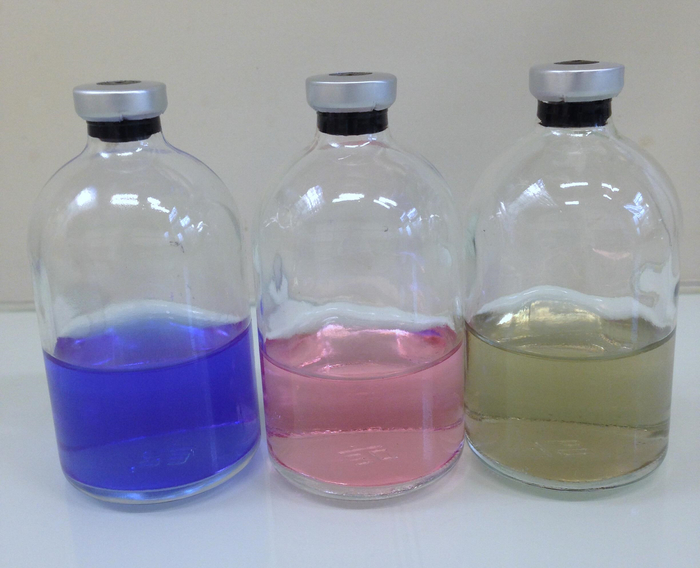
图 1:氧化还原指示剂。 通过添加氧化还原指示剂,可控制培养瓶中的正确氧化还原电位。 请点击此处查看此图的放大版本。
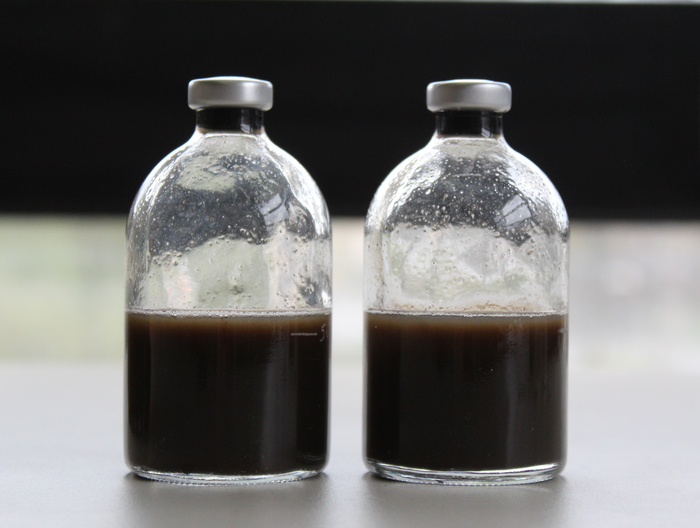
图 2:微型批次生物反应器。 在 120 mL 培养瓶中制备的微型批次生物反应器,用于厌氧消化实验。培养瓶中加入培养基,并接种稀释后的消化池污泥。反应器使用丁基橡胶塞和铝盖进行气密密封。请点击此处查看该图的放大版本。
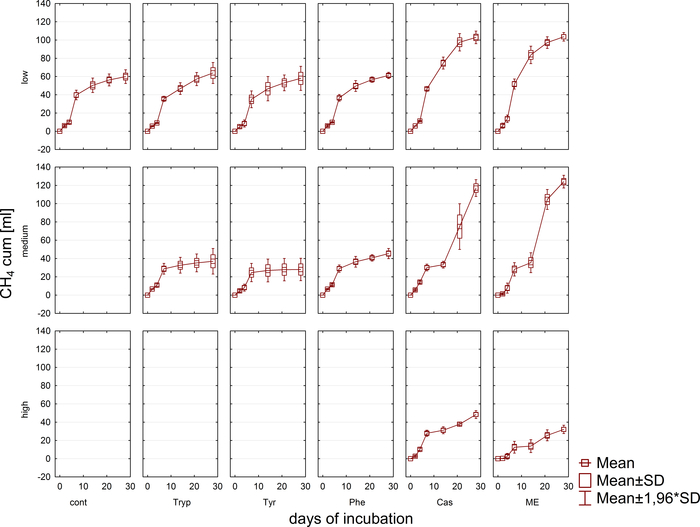
图3:甲烷产量。 在28天的中温培养期间,反映不同过载条件(低、中、高)的反应器中的累积甲烷产量。Cont:对照组;Tryp:色氨酸;Tyr:酪氨酸;Phe:苯丙氨酸;ME:肉浸膏;Cas:酪蛋白。此图为改编自先前研究的示意图8。请点击此处查看该图的放大版本。
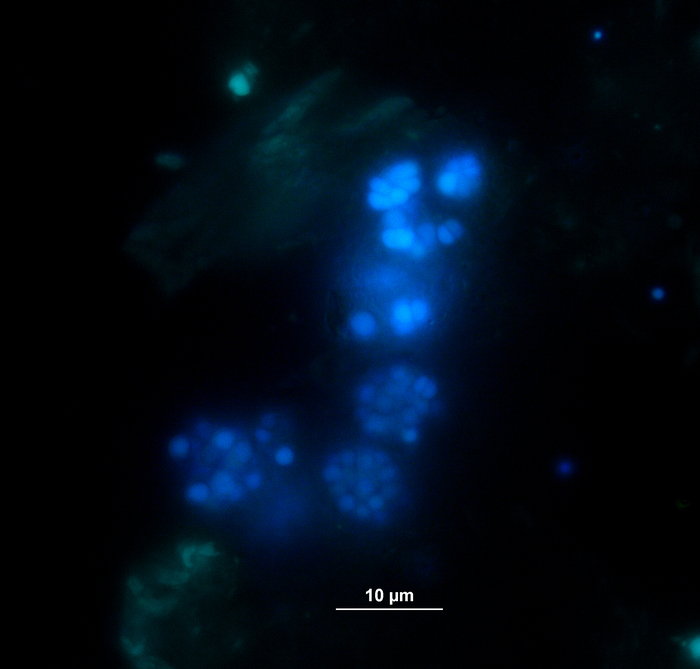
图4:发光的产甲烷菌。 产甲烷菌在紫外光激发下会发出偏蓝色的光。此处,产甲烷菌附着在植物颗粒(浅绿色)上。样品取自批次反应器,经稀释后立即用于显微镜观察和分析。请点击此处查看该图的放大版本。
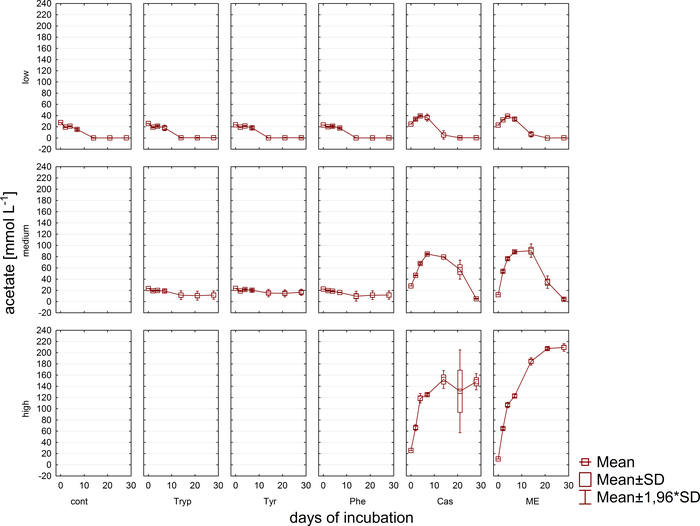
图 5:乙酸浓度。 在不同过载条件(低、中、高)的反应器中,经过28天中温培养期间的乙酸浓度变化。Cont:对照组;Tryp:色氨酸;Tyr:酪氨酸;Phe:苯丙氨酸;ME:肉浸膏;Cas:酪蛋白。此图为改编自先前研究的图示8。请点击此处查看该图的放大版本。
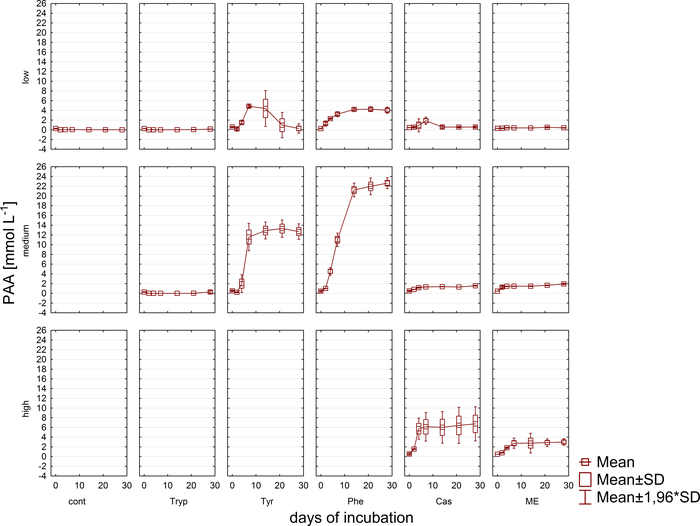
图6:苯乙酸浓度。 在反映不同过载条件(低、中、高)的反应器中,经过28天中温孵育期间的苯乙酸浓度变化。Cont:对照组;Tryp:色氨酸;Tyr:酪氨酸;Phe:苯丙氨酸;ME:肉浸膏;Cas:酪蛋白。此图为改编自早期研究的示意图8。请点击此处查看该图的放大版本。

图7:刃天青反应。 蓝色的刃天青根据Uzarski等人的研究发生不可逆还原反应生成粉红色的试卤灵,并进一步发生可逆还原反应生成无色的二氢试卤灵12。 请点击此处查看该图的放大版本。
| 氰钴胺 | 0.050 g |
| 4-氨基苯甲酸 | 0.050 g |
| D-生物素 | 0.010 g |
| 烟酸 | 0.100 g |
| 吡哆醇 | 0.250 g |
| D-泛酸 | 0.025 g |
| 硫胺素盐酸盐 HCl | 0.18 g |
| 蒸馏水 | 1000 mL |
表1:维生素溶液。
| 25% (w/v) HCl | 10.0 mL |
| FeCl2 x 4 H2O | 1.50 g |
| ZnCl2 | 0.070 g |
| MnCl2 x 4 H2O | 0.100 g |
| H3BO3 | 0.006 g |
| CoCl2 x 6 H2O | 0.190 g |
| CuCl2 x 2 H2O | 0.002 g |
| NiCl2 x 6 H2O | 0.024 g |
| Na2MoO4 x 2 H2O | 0.036 g |
| 蒸馏水 | 990.0 mL |
| 配制建议 | 加入 HCl 并溶解 FeCl2,加入 100 mL 蒸馏水,溶解其他成分,最后定容至 1000 mL。 |
表2:微量元素溶液。
| NaCl | 1.0 g |
| MgCl2 x 6 H2O | 0.4 g |
| KH2PO4 | 0.2 g |
| KCl | 0.5 g |
| CaCl2 x 2 H2O | 0.15 g |
| L-半胱氨酸 | 0.5 g |
| 酵母提取物 | 1.0 g |
| 刃天青溶液 | 1 mL |
| 维生素溶液 | 1 mL |
| 微量元素溶液 | 1 mL |
| 蒸馏水 | 1000 mL |
| pH | 7.2 |
表3:最低盐培养基。
| 变量 | 单位 | 描述 |
| tY | [d] | 测量时间点 |
| tX | [d] | 前一次测量的时间点 |
| pM | [mbar] | 在 tY 时刻测得的过压 |
| pA | [mbar] | 在 tY 时刻的环境压力 |
| pAX | [mbar] | 在 tX 时刻的环境压力 |
| pS | [mbar] | 标准压力,1013.25 mbar,依据 DIN 1343 |
| TI | [K] | 培养温度 |
| TS | [K] | 标准温度,273.15 K(相当于 0°C),依据 DIN 1343 |
| VH | [ml] | 在 tY 时刻的顶空体积 |
| VHX | [ml] | 在 tX 时刻的顶空体积 |
| CH4% | [vol%] | 根据 tY 时刻气相色谱(GC)测量得到的甲烷浓度 |
| CH4%X | [vol%] | 根据 tX 时刻气相色谱(GC)测量得到的甲烷浓度 |
| VCH4T | [Nml] | 在 tY 时刻血清瓶中的甲烷总量 |
| VCH4R | [Nml] | 在 tX 时刻顶空中残留的甲烷量 |
| VCH4N | [Nml] | 从 tX 到 tY 新生成的甲烷量 |
表4:方程1-3中变量的说明。
讨论
培养厌氧微生物最重要且最关键的步骤是确保培养基和培养瓶顶空中无氧气。可以使用刃天青等指示剂间接检测培养瓶内厌氧环境是否正确建立。刃天青是一种常用的氧化还原染料,因其价格低廉、无毒,且在低剂量和短时间孵育条件下即有效而被广泛使用12。当加入培养基后,蓝色的刃天青首先经历不可逆的还原反应生成粉红色的试卤灵(在中性pH值下呈粉红色)。该第一步反应可能在培养基加热过程中即发生 13。随后,试卤灵通过可逆的第二步反应被还原为无色的二氢试卤灵(图7)12。试卤灵/二氢试卤灵氧化还原体系在标准氧化还原电位约为Eh = -110 mV时完全变为无色,当氧化还原电位高于-51 mV时则转变为粉红色13。
为了进一步降低氧化还原电位,例如促进已知需要低于 -200 mV14 条件的产甲烷微生物的生长,可添加 Na2S 溶液。此外,也可常用半胱氨酸盐酸盐(cysteine-HCl)、硫代乙醇酸钠(sodium-thioglycolate)或连二亚硫酸钠(sodium dithionite)。然而,具体应选用哪种还原剂取决于相应的实验条件,可能需要特别注意。例如,硫代乙醇酸钠需要通过温度激活(如高压灭菌)。
通过气相色谱法测定培养瓶顶空气体的组成,可进一步评估由多种细菌和古菌属组成的结构良好的微生物群落以及高效运行的厌氧降解级联过程。在处理来自不同前体的苯基酸类化合物时,对顶空气体的分析是快速检测产甲烷过程的一种有效方法8。在培养结束时,对照组中顶空气体的CH4浓度约为50–60%,表明所添加的营养物质得到了有效利用,从而证实了在厌氧条件下有机物的 矿化作用。根据底物的元素分析结果,或通过估算底物中碳水化合物、蛋白质和脂肪的含量,可依据Buswell-Boyle方程在消化过程开始前(ex ante)计算出理论甲烷产量及预期的甲烷浓度。根据VDI 4630 15,碳水化合物的理论沼气产量可达750 L kg-1 VSS(50% CH4 和 50% CO2),蛋白质为800 L kg-1 VSS(72% CH4 和 28% CO2),而脂肪则可达1,390 L kg-1 VSS(60% CH4 和 40% CO2)。
此外,还监测了挥发性脂肪酸(VFAs)和苯基酸的形成及其可能的后续降解过程。通过分析不同时间点的VFA浓度(如乙酸、丙酸),可评估降解过程。短链脂肪酸(如乙酸和/或丙酸)的积累可能表明产甲烷菌群组成出现紊乱以及反应器整体超负荷。然而,一个平衡良好的微生物降解级联过程甚至能够耐受极高的VFA和乙酸浓度9。此外,乙酸/丙酸比例可能进一步反映反应器的整体运行状况16。然而,有许多可用于过程监测的参数,需根据拟定的实验假设进行选择。在本示例中,目标变量为苯基酸浓度(图6)。
披露
作者无任何利益冲突需要披露。
致谢
本研究由奥地利科学基金(FWF)资助:项目编号 P 29360 和 P 29143。 出版由因斯布鲁克大学出版基金(Publikationsfonds der Universität Innsbruck)支持。我们非常感谢 EIG。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 培养瓶(120 mL,N20) | Ochs, 德国 | 102046 | |
| 丁基橡胶隔垫(N20) | Ochs, 德国 | 102049 | |
| 铝盖(N20) | Ochs, 德国 | 102050 | |
| N2 气体 | Messer, 奥地利 | 纯度 5.0 | |
| 注射器 + 套管 | 多种品牌 | ||
| 压盖器 | Ochs, 德国 | 102051 | |
| 去盖器 | Ochs, 德国 | 102052 | |
| GC2010 | Shimadzu | ||
| Shin-carbon GC 色谱柱 | Restek | 用于 H2、O2、CH4 和 CO2 的色谱分离 | |
| HPLC Prominence | Shimadzu | ||
| Fast Fruit HPLC 色谱柱 | Phenomenex | 用于挥发性脂肪酸、苯基酸等的色谱分离 |
参考文献
- Wiebe, W. J., et al. Anaerobic Respiration and Fermentation. The Ecology of a Salt Marsh. Pomeroy, L. R., Wiegert, R. G. , Springer New York. New York, NY. 137-159 (1981).
- Kim, B. H., Gadd, G. M. Anaerobic fermentation. Bacterial physiology and metabolism. Kim, B. H., Gadd, G. M. , Cambridge University Press. Cambridge. 252-297 (2008).
- Stolz, J. F., Oremland, R. S. Bacterial respiration of arsenic and selenium). FEMS Microbiology Reviews. 23 (5), 615-627 (1999).
- Lackner, N., Hintersonnleitner, A., Wagner, A. O., Illmer, P. Hydrogenotrophic Methanogenesis and Autotrophic Growth of Methanosarcina thermophila. Archaea. 2018 (5), 1-7 (2018).
- Mutschlechner, M., Praeg, N., Illmer, P. The ecological importance of grazing to methane fluxes and engaged microbial communities in alpine forest soils. FEMS Microbiology Ecology. , (2018).
- Prem, E. M., Reitschuler, C., Illmer, P. Livestock grazing on alpine soils causes changes in abiotic and biotic soil properties and thus in abundance and activity of microorganisms engaged in the methane cycle. European Journal of Soil Biology. 62, 22-29 (2014).
- Praeg, N., Wagner, A. O., Illmer, P. Effects of fertilisation, temperature and water content on microbial properties and methane production and methane oxidation in subalpine soils. European Journal of Soil Biology. 65, 96-106 (2014).
- Wagner, A. O., Prem, E. M., Markt, R., Kaufmann, R., Illmer, P. Formation of phenylacetic acid and phenylpropionic acid under different overload conditions during mesophilic and thermophilic anaerobic digestion. Biotechnology for Biofuels. 12 (1), 359(2019).
- Lins, P., Malin, C., Wagner, A. O., Illmer, P. Reduction of accumulated volatile fatty acids by an acetate-degrading enrichment culture. FEMS Microbiology Ecology. 71 (3), 469-478 (2010).
- Wagner, A. O., Hohlbrugger, P., Lins, P., Illmer, P. Effects of different nitrogen sources on the biogas production - a lab-scale investigation. Microbiological research. 167 (10), 630-636 (2012).
- Wagner, A. O., et al. Sample preparation, preservation, and storage for volatile fatty acid quantification in biogas plants. Engineering in Life Sciences. 17 (2), 132-139 (2017).
- Uzarski, J. S., DiVito, M. D., Wertheim, J. A., Miller, W. M. Essential design considerations for the resazurin reduction assay to noninvasively quantify cell expansion within perfused extracellular matrix scaffolds. Biomaterials. 129, 163-175 (2017).
- Costilow, R. N., Breznak, J. A., et al. Physicochemical Factors in Growth. Methods for General and Molecular Microbiology. Marzluf, G. A. , Third Edition, 309-329 (2007).
- Le Mer, J., Roger, P. Production, oxidation, emission and consumption of methane by soils: a review. European Journal of Soil Biology. 37 (1), 25-50 (2001).
- Verein deutscher Ingenieure VDI 4630: Fermentation of organic material. VDI Richtlinien. , (2006).
- Wagner, A. O., Reitschuler, C., Illmer, P. Effect of different acetate: Propionate ratios on the methanogenic community during thermophilic anaerobic digestion in batch experiments. Biochemical Engineering Journal. 90, 154-161 (2014).
重印与许可
