本方案概述了用于研究的小鼠模型的建立方法 马拉色菌皮肤中宿主与微生物的相互作用。该方法描述了微生物的培养 马拉色菌 体外,小鼠皮肤的感染 马拉色菌属以及对皮肤组织中炎症反应和真菌载量的后续分析。
本文内容
摘要
摘要
动物模型在传染病研究中至关重要。它们为分析微生物与宿主在体内以组织特异性方式发生的全部相互作用提供了重要基础。致病性真菌日益被视为对人类健康的严重威胁,而利用此类感染模型极大地增进了我们对真菌致病性的理解。属于该属的物种 马拉色菌 是人体皮肤微生物群中最丰富的真菌,也与脂溢性皮炎和特应性皮炎等严重炎症性皮肤病的发生相关。然而,其与 马拉色菌 疾病发病机制仍不明确,这一情况可归因于对复杂信号通路间相互作用的认知不足 马拉色菌 与皮肤免疫系统。本方案描述了一种实验性小鼠模型的建立方法,可用于研究两者之间的相互作用 马拉色菌 与活体哺乳动物皮肤相一致。它概述了培养的方法 马拉色菌 spp. 在实验室条件下,如何感染小鼠皮肤 马拉色菌 spp.,以及如何通过皮肤炎症和真菌负荷分析来评估感染结果。本文所述模型适用于完全免疫健全的动物,无需对动物进行免疫抑制或抗生素预处理。此外,该模型几乎可适用于所有基因修饰小鼠品系,并可与其他皮肤疾病模型联合使用。这些特点使该感染模型成为深入研究宿主对病原体先天性和适应性免疫反应的有力工具 马拉色菌 在活体皮肤中。
引言
皮肤上定植着多种多样的微生物。皮肤持续暴露于微生物群,有助于塑造和训练宿主的免疫系统。真菌 increasingly 被认为是微生物群的重要组成部分,其在宿主生理和免疫中发挥着与细菌和病毒类似的重要作用。1属的物种 马拉色菌 迄今为止,它们是定植于温血脊椎动物皮肤上最丰富的真菌,占人类皮肤真菌组的90%以上2,318 种不同的物种 马拉色菌 迄今为止已从人类和动物皮肤中鉴定出4.
皮肤的多种病理状况被认为至少部分源于微生物群组成失衡。菌群失调可能导致具有致病潜力的物种过度增殖,从而引发机会性感染和疾病5。越来越多的证据一致表明,Malassezia除作为共生菌存在外,还参与了多种皮肤病理过程的发展,范围从头皮屑和花斑癣到更严重的炎症性疾病,如脂溢性皮炎和特应性皮炎4,6。尽管Malassezia与花斑癣之间的因果关系已被确立,但该真菌在更严重皮肤病理中的病理生理作用仍 largely 未知。
明确马拉色菌在皮肤稳态及疾病中的作用,需要更深入地了解该真菌与皮肤及其皮肤免疫系统之间的相互作用。值得注意的是,与其他人源性致病真菌(例如白色念珠菌或烟曲霉)相比,针对马拉色菌的研究仍处于起步阶段。这主要归因于在实验室条件下培养马拉色菌存在困难,以及缺乏合适的实验模型来研究该真菌在体内与宿主接触时的相互作用。既往使用体外培养的分离细胞所进行的实验表明,马拉色菌与多种免疫和非免疫细胞之间存在广泛的直接和间接相互作用7。然而,这些体外实验仅能部分模拟体内复杂皮肤环境中的真实情况,因为在体内,真菌与多种细胞类型之间会同时发生大量细胞和分子层面的相互作用。
本文概述了一种我们近期建立的小鼠Malassezia皮肤感染实验模型的操作方案,用于在体内研究真菌与宿主之间的相互作用7。该方案包括以下步骤:(1)体外成功培养Malassezia,(2)将Malassezia经表皮接种至小鼠耳部皮肤,以及(3)分析Malassezia诱导的皮肤炎症反应和感染皮肤中真菌负荷的技术细节。重要的是,该模型在感染前无需对小鼠进行免疫抑制(例如使用皮质类固醇)或抗生素处理,而这些操作在其他真菌感染小鼠模型中较为常见8,9。因此,该模型可用于研究正常皮肤中针对Malassezia的先天性和适应性免疫应答的完整谱系。值得注意的是,在特定病原体-free(SPF)条件下饲养的近交系野生型小鼠不会自然定植Malassezia,因此其接触该真菌后不会形成持续定植,真菌通常在约1.5周内被宿主清除。然而,该模型可用于研究抗真菌宿主应答启动与调控的机制,而这些机制正是免疫记忆形成的基础。该模型具有良好的通用性,可轻松应用于多种基因修饰小鼠品系,并可与其他已有的皮肤疾病模型(如皮肤屏障缺陷模型)联合使用,以研究在病理性和炎症性皮肤条件下Malassezia的影响7。因此,所述的小鼠Malassezia皮肤感染实验模型为研究真菌在稳态和疾病状态下与皮肤免疫系统的相互作用提供了高度的灵活性。
本方案描述了小鼠皮肤感染的实验方法 马拉色菌 spp. 由于其具有致病潜力, 马拉色菌 某些国家(包括瑞士)将 spp. 列为生物安全等级2(BSL2)病原体。请查阅当地指南,并遵守当地主管部门的相关规定。BSL2级别的生物体应由经过培训的人员在经认证的BSL2生物安全柜(BSC)中操作。被BSL2级别生物体污染的生物废弃物,以及感染此类生物体的小鼠尸体,均须在处理前进行高压灭菌。涉及小鼠的实验应严格遵循3R原则(替代、优化、减少),尽一切努力减轻动物痛苦,确保符合最高的伦理与人道标准。10本方案中所述实验均在 M. pachydermatis (ATCC 14522) M. furfur (ATCC 14521)和 M. sympodialis (ATCC 42132)7.
方案
本协议中描述的所有操作均按照瑞士联邦环境办公室《封闭系统中生物体操作条例》(www.bafu.admin.ch)的规定进行。小鼠实验严格遵循瑞士动物保护法指南,并在苏黎世州兽医办公室批准的协议下进行(许可证号 168/2018)。
1. 实验室条件下 Malassezia 的培养
注意:除非另有说明,本方案中使用的所有试剂和培养基均应储存在室温(RT,20 – 25 °C),因为较低温度可能抑制真菌生长。
- 制备改良 Dixon(mDixon)液体培养基 马拉色菌 生长。制备500 mL液体mDixon培养基时,将18 g麦芽提取物、10 g干燥牛胆汁、5 mL吐温-40、3 g蛋白胨、1 mL甘油和1 mL油酸溶解于500 mL蒸馏H₂O中2O (dH2O). 用 HCl 将培养基 pH 调至 6,然后高压灭菌。在室温下保存培养基。
- 在灭菌前,将7.5 g琼脂加入500 mL mDixon培养基中,制备mDixon琼脂平板。灭菌后,使用搅拌棒和磁力加热板缓慢冷却mDixon琼脂,以避免冷却过程中培养基局部凝固。
- 琼脂冷却至 50 – 60 °C,在超净台中将液体分装至培养皿中,室温下静置过夜使其干燥。
注意:琼脂平板可在 4 °包裹后倒置保存数周,以避免蒸发。 - 获取 马拉色菌 分离并复苏冻干保存的菌种 马拉色菌 按照供应商提供的说明进行操作。
- 在无菌的 100 mL 三角烧瓶中,加入 10 mL 液体 mDixon 培养基,并接种复苏后的 马拉色菌 悬液,具体操作按照试剂提供方的说明进行。将培养物置于30℃摇床培养箱中孵育 °C 和 180 rpm。
- 观察生长情况 马拉色菌 定期通过观察培养物是否呈现乳白色及浑浊度来检查培养情况。生长动力学因马拉色菌的物种和菌株而异。 马拉色菌 并且在某些情况下可能特别缓慢 马拉色菌 由冻干菌种新鲜复苏。图1A).
- 通过将3份高密度培养的菌液与1份甘油混合制备甘油菌种保存液 马拉色菌 在 mDixon 培养基中加入1份无菌99%甘油进行培养。分装 马拉色菌将甘油混合物分装至无菌螺旋盖管中,并于 -80 ℃ 保存 °C.
- 用于体外扩增,接种平板 马拉色菌 从 mDixon 液体培养物或冻存的甘油菌种(从 4°C 取出并升至室温)接种至 mDixon 琼脂平板上 ˚C)使用接种环。
注意:将 mDixon 琼脂平板从 4 ℃转移至室温 °使用前需将 mDixon 琼脂预热至室温,因为低温的 mDixon 琼脂会抑制真菌生长。 - 将琼脂平板置于 马拉色菌 在30℃的(非摇动)培养箱中倒置培养 °C. 观察生长情况 马拉色菌 菌落定期。
注意: 马拉色菌 mDixon 琼脂平板上的菌落于 3 - 5 天内出现,呈乳白色、无光泽、表面光滑,凸起状图1B). - 储存 马拉色菌 在室温下培养 mDixon 琼脂平板上的菌落约 2 周。之后,通过划线接种制备新的 mDixon 琼脂平板 马拉色菌 从冻存的甘油菌种中复苏,具体步骤如1.7所述。
2. 实验用接种物的制备 马拉色菌 小鼠感染
- 在无菌的100 mL锥形瓶中,将3–5个单菌落接种至10 mL液体mDixon培养基中 马拉色菌 来自 mDixon 琼脂平板的菌落(参见步骤 1, 图1B).
- 孵育 马拉色菌 在 30 ℃ 培养约 48 至 96 小时 °C 且 180 rpm 振荡培养,直至培养物呈乳白色并浑浊(图1A).
注意:完成所需的时间 马拉色菌 生长依赖于 马拉色菌 物种、菌株及接种所用真菌的数量 - 转移2 mL的 马拉色菌 将培养物转移至无菌的 2 mL 微量离心管中,在 10,000 × g 条件下离心 1 分钟 x g.
- 弃去上清液,加入1 mL磷酸盐缓冲盐溶液(PBS)重悬沉淀,混匀后再次于10,000 × g离心1 min x g.
- 洗涤后,通过剧烈吹打将沉淀重悬于 1 mL PBS 中,并在 600 nm 处测定溶液的光密度(ODA600)使用分光光度计。稀释 马拉色菌 用 PBS 将悬液稀释 20–50 倍,用于 OD 测定,以确保读数在 0.1 至 1 之间。
注意:3天培养物的密度 马拉色菌 通常在15至30 OD之间变化A600,取决于 马拉色菌 物种和菌株以及用于接种培养物的酵母细胞数量(步骤 2.1) 马拉色菌 tends to 形成聚集体,因此必须进行剧烈的移液操作以确保悬液的均匀性。 - 分装一定体积的 马拉色菌 在PBS中的悬液,其密度相当于4个ODA600 转移到无菌的2 mL离心管中。每只待感染动物准备1管。
- 离心含有 马拉色菌 10,000 × g 离心 1 分钟。
- 弃去上清液,并重悬沉淀 马拉色菌 200离心沉淀 µL 原生橄榄油(相当于 2 OD)A600 酵母细胞/100 µ橄榄油).
注:橄榄油被发现是用于经皮感染的合适载体 马拉色菌,作为 马拉色菌 是一种嗜脂且依赖脂质的酵母。与PBS相比,橄榄油更易被皮肤吸收。但需注意,悬浮操作并不容易 马拉色菌 在橄榄油中。改善 马拉色菌通过涡旋振荡制备橄榄油悬浮液。将悬浮液于室温保存,直至用于感染实验。 - 为对照组动物的模拟感染准备仅含橄榄油的试管。
3. 用马拉色菌感染小鼠 马拉色菌
- 订购6至8周龄的雌性C57BL/6小鼠,并在实验动物设施中适应至少一周。每组准备3至5只小鼠,包括未感染的对照组。
- 配制含有1.3 mg/mL 赛拉嗪(Xylazine)和6.5 mg/mL 氯胺酮(Ketamine)的无菌麻醉混合液,溶剂为PBS。5 mL麻醉混合液足以麻醉20只动物。根据需麻醉的动物数量调整混合液的用量。
- 通过注射10 µ按每克体重注射麻醉混合液,剂量为 65 mg Ketamine 和 13 mg Xylazine 每千克体重,腹腔注射,并将麻醉后的动物置于 37 ℃ 加热垫上 °C.
注:在指定剂量下,动物通常保持麻醉状态约 30 - 60 分钟。
- 通过注射10 µ按每克体重注射麻醉混合液,剂量为 65 mg Ketamine 和 13 mg Xylazine 每千克体重,腹腔注射,并将麻醉后的动物置于 37 ℃ 加热垫上 °C.
- 用镊子夹捏动物后肢足部以检查反射,确保动物已完全麻醉。
- 在麻醉期间,涂抹眼霜以防止眼睛脱水。
- 可选地,使用千分尺(0 - 5 mm 量程)测量双耳的耳部厚度。每只耳测量两个不同区域,计算每只耳的平均耳厚度。
注意:测量耳部厚度为可选步骤,取决于具体研究问题。然而,若将耳部厚度作为皮肤炎症的检测指标,则必须在感染前测量基础耳部厚度(见步骤4)。 - 可选地,通过轻微胶带剥离破坏耳背皮肤的表皮屏障:将一小片胶带手动贴附于皮肤后撕下,每轮使用新的胶带,重复此过程共5个连续轮次。
注意: 马拉色菌 在皮肤屏障受损的皮肤中比在未受干扰的皮肤中诱导出更明显的皮肤炎症(图2A)7. - 局部涂抹100 µL (2 ODA600的 马拉色菌使用无菌移液管将橄榄油悬液滴加至每只耳朵的背部。设立对照组动物,仅用橄榄油处理(溶剂对照组)。
注意:涡旋混合 马拉色菌/橄榄油悬液,剧烈振荡以确保均匀 马拉色菌 应用前立即制备悬浮液。 - 将麻醉后的动物置于加热垫上以避免低体温,直至其出现恢复迹象(如胡须运动、呼吸频率增加等)。
- 注射 200 µ皮下注射1 L无菌预温的2%葡萄糖溶液至颈背部皱褶处,以支持其代谢和再水化。
注意:配制无菌的2%葡萄糖溶液时,将1 mg葡萄糖溶于50 mL PBS中,并使用0.2 μm滤器过滤。 µm 滤膜。溶液可在 4℃ 保存 °C. - 将动物转移回其笼中。
4. 分析 马拉色菌诱导的皮肤炎症
注意:本实验方案描述了感染期间由马拉色菌(Malassezia)诱导的耳部肿胀分析,该指标可作为皮肤炎症的参数。分析真菌诱导耳部肿胀的前提是在胶带剥离和/或感染前(步骤 3.5)测量耳部基础厚度。
- 为感染 Malassezia 的动物及对照动物的短期麻醉准备异氟烷麻醉舱。
- 每次将一只动物转移至麻醉舱内,等待其完全麻醉。
注意:适当的麻醉状态表现为身体完全放松以及缓慢而深的侧腹呼吸。需密切监测麻醉过程,因长时间暴露于异氟烷可能致命。 - 将动物从麻醉舱中取出,并放置于组织纸或垫料上。
- 使用千分尺(量程 0 - 5 mm)测量耳朵的厚度。每只耳朵测量两个不同区域,并计算每只耳朵的平均厚度(参见步骤 3.5)。
- 将动物放回笼中。
注意:异氟烷麻醉作用时间极短,动物在离开麻醉舱后约 30 秒内即可恢复。 - 通过从感染后各时间点测得的平均耳厚中减去感染前(即胶带剥离和/或感染前)测得的基线平均耳厚,计算耳厚的增加量。
- 将计算所得数值绘制成耳厚增加量随时间变化的曲线,或 alternatively 绘制每只动物或每组动物的总耳厚随时间变化的曲线(图 2B)。
5. 感染皮肤中真菌载量的分析
- 为每只待采集的耳朵准备一个无菌的 2 mL 微量离心管,管内含有 0.5 mL 无菌的 0.05% NP40 溶液(溶于 dH2O)和一个已灭菌的钢珠(直径 5 mm)。
- 使用精密天平称量各管,并记录精确重量。
- 通过 CO2 窒息法处死小鼠。
- 从基部切除耳朵,并转移至含有 0.5 mL 无菌 0.05% NP40 溶液(溶于 dH2O)的管中,操作如步骤 5.1 - 5.2 所述。
- 称量含有耳组织的管子,并通过从含组织的管重减去不含组织的管重,计算每个样本的实际重量。
- 使用组织匀浆器在 25 Hz 条件下匀浆耳组织 6 分钟,确保组织充分匀浆。
- 取每个样本的 100 µL(相当于每份匀浆液的 1/5,稀释倍数 = 5)接种至 mDixon 琼脂平板上,将平板倒置于 30°C 培养箱中培养。
注意:接种的匀浆液体积应根据预期的真菌载量进行调整。确保接种足够体积的匀浆液,使每个平板长出至少 10 个但不超过 250 个菌落,以便于准确计数。可选:每个样本可接种多个不同稀释度的平板。 - 定期观察 Malassezia 菌落的生长情况。
注意:Malassezia 菌落通常在 2 - 3 天后可见。菌落生长所需时间取决于 Malassezia 的物种和菌株。 - 计数每个平板上的菌落数。
- 使用以下公式计算每克组织中的 CFU 数:
CFU/g 组织 =(每平板菌落数)×(稀释倍数)/(皮肤样本重量,单位为 g)。
注意:可使用以下公式评估近似最低检测限:最低检测限 =(每平板 1 个菌落)×(稀释倍数)/(所有皮肤样本的平均重量,单位为 g)。 - 真菌载量通常以对数尺度作图(图 2C)。
结果
体外 培养 马拉色菌
与其他更常用的真菌模式病原体相比,例如 C. albicans 或 A. fumigatus, 马拉色菌 在体外培养更为困难,这可能归因于以下事实: 马拉色菌 由于无法合成脂肪酸,其营养需求依赖于外源性脂质来源11mDixon 培养基适用于培养多种 马拉色菌 物种包括 M. pachydermatis, M. furfur, M. sympodialis, M. slooffiae, M. globosa 和 M. yamatoensis 体外7,12. 图1 显示菌落生长的代表性图像 M. sympodialis 在 mDixon 液体培养基和 mDixon 琼脂平板中培养,具体步骤如步骤 1 和步骤 2 所述。
皮肤炎症和真菌负荷分析 马拉色菌 皮肤炎症
暴露于 马拉色菌 在感染前通过胶带剥离破坏皮肤屏障后,小鼠耳部皮肤出现炎症加剧,表现为表皮和真皮增生以及水肿形成7第4步和第5步概述了分析方法 马拉色菌诱导的耳部肿胀及皮肤真菌载量。这两个参数是监测感染进程的关键检测指标。 图2A 说明在之后可观察到的耳部厚度增加 M. furfur 与野生型C57BL/6小鼠未受干扰的皮肤相比,屏障功能受损皮肤的暴露情况。 图2B 显示耳部厚度随时间增加的代表性汇总图。 图2C 显示感染后第2天耳部皮肤中的真菌载量 M. pachydermatis.
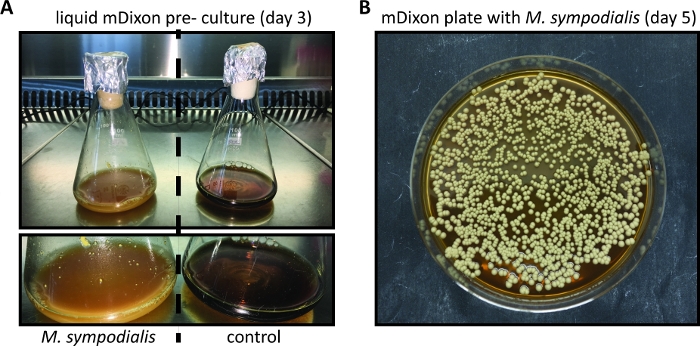
图1:马拉色菌的体外培养。
(A) M. sympodialis 菌株 ATCC 42132 在30 °C、180 rpm条件下于液体mDixon培养基中培养3天(左侧),右侧为未接种的mDixon培养基对照锥形瓶。(B) M. sympodialis 菌株 ATCC 42132 在mDixon琼脂平板上于30 °C培养5天后的菌落形态。请点击此处查看该图的放大版本。
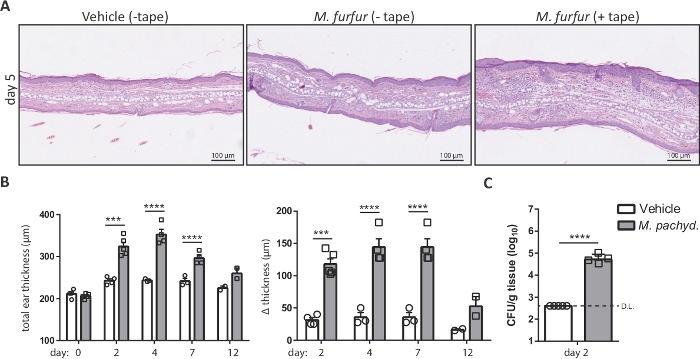
图 2:基于耳部厚度和真菌负荷分析马拉色菌皮肤感染情况。
(A) 来自C57BL/6小鼠的耳部组织切片的组织学图像,小鼠分别用橄榄油(对照,左侧)处理或接种M. furfur菌株JPLK23感染5天(中间和右侧)。右侧样本在感染前进行了胶带剥离处理。切片采用苏木精和伊红(H&E)染色。(B) 汇总图表显示C57BL/6小鼠在暴露于马拉色菌或未感染(对照)后耳部厚度随时间的变化。左侧显示在各时间点,暴露于M. pachydermatis菌株ATCC 14522或经橄榄油处理(对照)的耳部皮肤的绝对厚度;右侧显示在指定时间点相对于第0天基线的耳部厚度增加量。(C) 感染M. pachydermatis菌株ATCC 14522或以橄榄油处理作为对照(对照)的C57BL/6小鼠皮肤中的真菌负荷。两种情况下皮肤均进行了胶带剥离处理。汇总图B和C中的每个符号代表一只动物。组间差异的统计学显著性通过单因素方差分析(B)或学生t检验(C)计算。***p <0.001,****p <0.0001,D.L.:检测限 请点击此处查看该图的放大版本。
讨论
本方案描述了利用常用的近交系小鼠 C57BL/6 建立 Malassezia spp. 皮肤感染的方法。将本方案应用于其他具有不同遗传背景的小鼠品系(例如 Balb/c)或基因改造小鼠品系时,可能需要调整感染剂量、分析时间点等参数。为确保实验可重复性,小鼠分组时应始终保持相同的年龄和性别。小鼠来源应保持稳定,因为不同供应商之间,甚至同一繁殖设施的不同单元之间,其遗传背景和微生物群的细微差异都可能对感染进程产生不可预测的影响。在建立本方案所述的 Malassezia 感染模型时,建议先开展预实验,密切监测感染进程,包括定植程度、真菌清除动力学,以及可能诱发的炎症和病理变化程度(例如,若在感染前破坏耳部皮肤屏障),以确定最佳的实验条件。
为确保实验结果的可重复性并可靠地检测实验组之间的差异,每组所需使用的动物数量必须基于统计学分析进行计算。样本量的计算应依据效应量、误差率和检验效能,以考虑生物学和实验中的变异(例如由免疫系统差异所导致的变异)。出于伦理考虑,应避免使用不必要的过多动物。关于 马拉色菌 皮肤感染不建议仅用真菌处理同一只小鼠的一只耳朵而将另一只耳朵作为对照,因为小鼠在理毛时可能将真菌传播至双耳。然而,使用 ½ 对于不同的方法学检测,如真菌载量测定、免疫细胞分离或组织学分析,通常只需取耳组织即可,这能显著减少实验所用动物数量。
18 个不同物种的 马拉色菌 迄今为止已描述了该属内的种间和种内变异。 马拉色菌 可能影响与宿主的相互作用,这一点我们也是从对其他人致病性真菌的研究中了解到的13. 不同 马拉色菌 物种和菌株的来源不同(例如, M. pachydermatis 是从动物中分离出的最常见物种,而 M. restricta, M. globosa 以及 M. sympodialis 是人类皮肤真菌微生物组中最主要的成员,这些物种在不同皮肤区域的分布存在差异。某些物种被认为与共生关系相关,而另一些则可能更具致病性,尽管目前详细的证据仍然相对有限。重要的是,某些物种和菌株本质上比其他物种更难培养。因此,选择用于感染的物种/菌株应基于具体的研究问题。
某些微生物(如Candida albicans或Staphylococcus aureus)对小鼠皮肤的实验性感染通常需要在感染前破坏表皮屏障,例如使用砂纸摩擦14,15,16。相比之下,本文所述的Malassezia感染模型在是否存在屏障破坏的情况下均具有同等感染效率7。然而,若在感染前对皮肤进行胶带剥离处理,则真菌诱导的炎症程度会显著增强7。因此,是否在接种Malassezia前对皮肤进行预处理,应根据具体的研究问题而定。目前已有多种急性和慢性皮肤炎症模型(例如迟发型超敏反应(DTH)和接触性超敏反应(CHS)模型)以及皮肤屏障缺陷模型,这些模型可能有助于研究共生酵母在皮肤病理过程中的作用。
据我们所知,在特定无病原体(SPF)条件下饲养的近交系小鼠不会自然定植Malassezia。因此,将Malassezia实验性地接种于小鼠耳部皮肤,代表宿主首次接触该真菌,从而引发急性免疫反应,并在1至2周内实现真菌清除7。尽管本方案所述模型仅部分模拟了免疫功能正常的人类或其他宿主生物(其皮肤长期定植Malassezia)的情况,但该实验性感染为研究抗真菌免疫反应及其潜在的细胞与分子机制提供了充足的时间窗口。此外,该模型还允许在不同实验条件(例如,皮肤屏障是否受损)下,探究不同Malassezia物种和菌株所引发免疫反应的差异。
过去,对Malassezia与宿主相互作用的研究仅限于体外培养中分离细胞类型的实验(例如角质形成细胞系、外周血单个核细胞)。尽管这些研究揭示了影响Malassezia与宿主相互作用的真菌和宿主因素17,但无法全面理解真菌与宿主在皮肤复杂环境中的相互作用。皮肤环境涉及多种持续相互交流的细胞类型,如角质形成细胞、成纤维细胞和组织驻留免疫细胞,还包括仅在皮肤接触微生物后才浸润组织的白细胞群体。这种多细胞网络无法在体外模型中完全重现,即使使用最先进的类器官系统也难以实现。因此,小鼠实验性感染仍是免疫学和传染病研究的金标准,而本文所述模型的建立标志着Malassezia研究领域的一项重大突破。重要的是,该模型依赖于将Malassezia外用于结构完整的小鼠耳部皮肤,而非如先前研究所报道的通过注射方式(如皮下或腹腔内注射)接种真菌18,后者与自然定植宿主的情况差异较大。
将本方案中所述的马拉色菌感染模型与其他现有的小鼠模型相结合的可能性,极大地拓展了该模型的应用范围与灵活性。后者包括多种特定皮肤疾病模型,例如模拟特应性皮炎重要特征的皮肤屏障缺陷模型——该疾病在人类和犬类中均与马拉色菌相关。此外,马拉色菌的经皮感染可轻松应用于宿主目标基因存在遗传缺陷的小鼠,或特定细胞类型被基因敲除或可通过药物手段清除的小鼠(例如,通过白喉毒素受体表达小鼠中给予白喉毒素实现细胞清除)。此类模型是解析宿主对共生及致病微生物(包括马拉色菌)免疫应答的不可或缺工具,可用于评估这些基因及细胞类型在真菌-宿主相互作用中的作用。对马拉色菌与宿主皮肤相互作用的分析可远超本方案所描述的内容,包括组织学分析(例如,评估皮肤病变程度或真菌诱导的表皮增厚)、使用针对特定细胞标志物或其他目标分子的抗体对组织切片进行免疫组织化学或免疫荧光染色分析。此外,还可从感染的皮肤组织中分离细胞(例如,组织驻留或组织浸润的白细胞亚群),以深入研究宿主对马拉色菌免疫应答的极化、调控及动态变化。
披露
作者无任何利益冲突需要披露。
致谢
本工作由瑞士苏黎世大学资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 琼脂 | Sigma-Aldrich | A1296-1KG | |
| 异氟烷(Attane Isoflurane) | Piramal Healthcare | - | |
| 生物安全柜(BSC)Faster Ultra Safe | DASIT GROUP | TEC 5594 | BSL2 认证 |
| 离心机 | Eppendorf | 5415D | 兼容 2 ml Eppendorf 离心管 |
| 脱水牛胆汁 | Sigma-Aldrich | 70168-100G | |
| Eppendorf 离心管(2 ml) | Eppendorf | 0030 120.094 | |
| 葡萄糖 | Sigma-Aldrich | 49159-5KG | |
| 甘油(99 %) | Honeywell | 10314830 | |
| 加热垫 | Eickenmeyer | 648048 | |
| 培养箱 Heraeus B20 | Heraeus | 412047753 | BSL2 认证 |
| 氯胺酮(Ketasol,100 mg) | Graeub AG | 6680416 | |
| 磁力加热板 MR Hei-Standard | Heidolph Instruments | 442-1355 | |
| Malassezia spp. | ATCC | 14522, 14521, 42132 | |
| 麦芽提取物 | Sigma-Aldrich | 70167-500G | |
| 多联生物样本管(200 µl) | Sarstedt AG | 7084211 | Safelock |
| 初榨橄榄油 | - | - | 市售可得 |
| Nonidet P40 | Axon Lab | A1694,0250 | |
| Oditest 测量装置 | Kroeplin | S0247 | 量程 0–5 mm |
| 油酸 | Sigma-Aldrich | 75090-5ML | |
| 蛋白胨 | Oxoid | LP0037 | |
| 培养皿 | Sarstedt AG | 82.1473 | |
| 磷酸盐缓冲液(PBS, 1x) | Amimed/Bioconcept | 3-05F39 | |
| 隆朋(Rompun,2 %) | Bayer | KP0BFHR | |
| 摇床培养箱 Infors Minitron | Infors | - | BSL2 认证 |
| 分光光度计 | Jenway | 20308 | 600 nm 处测定光密度 |
| 分光光度计比色皿 | Greiner Bio-One | 613101 | |
| 不锈钢珠(5 mm) | ABF | KU.5G80 1.3541 | |
| 1 ml 皮下注射器 | BD Bioscience | 305501 | |
| Tissue Lyzer II 组织研磨仪 | Qiagen | 85300 | |
| 透气性低致敏胶带(Transpore Hypoallergic Tape) | 3M | 1527-1 | |
| 吐温 40 | Sigma-Aldrich | P1504-100ML | |
| 维生素 A 棕榈酸视黄酯眼霜 | BAUSCH & LOMB | 市售可得 |
参考文献
- Iliev, I. D., Leonardi, I. Fungal dysbiosis: immunity and interactions at mucosal barriers. Nature Reviews Immunology. 17 (10), 635-646 (2017).
- Findley, K., et al. Topographic diversity of fungal and bacterial communities in human skin. Nature. 498 (7454), 367-370 (2013).
- Gemmer, C. M., DeAngelis, Y. M., Theelen, B., Boekhout, T., Dawson, T. L. Fast, noninvasive method for molecular detection and differentiation of Malassezia yeast species on human skin and application of the method to dandruff microbiology. Journal of Clinical Microbiology. 40 (9), 3350-3357 (2002).
- Theelen, B., et al. Malassezia ecology, pathophysiology, and treatment. Medical Mycology. 56, suppl_1 10-25 (2018).
- Williams, M. R., Gallo, R. L. The role of the skin microbiome in atopic dermatitis. Current Allergy and Asthma Reports. 15 (11), 65(2015).
- Malassezia and the Skin. , Springer. (2010).
- Sparber, F., et al. The Skin Commensal Yeast Malassezia Triggers a Type 17 Response that Coordinates Anti-fungal Immunity and Exacerbates Skin Inflammation. Cell Host Microbe. 25 (3), 389-403 (2019).
- Koh, A. Y. Murine models of Candida gastrointestinal colonization and dissemination. Eukaryotic Cell. 12 (11), 1416-1422 (2013).
- Solis, N. V., Filler, S. G. Mouse model of oropharyngeal candidiasis. Nature Protocols. 7 (4), 637-642 (2012).
- Russel, W. M. S., Burch, R. L. The Principles of Humane Experimental Technique. , Methuen & Co. London. (1959).
- Wu, G., et al. Genus-Wide Comparative Genomics of Malassezia Delineates Its Phylogeny, Physiology, and Niche Adaptation on Human Skin. PLoS Genetics. 11 (11), 1005614(2015).
- Leong, C., Buttafuoco, A., Glatz, M., Bosshard, P. P. Antifungal Susceptibility Testing of Malassezia spp. with an Optimized Colorimetric Broth Microdilution Method. Journal of Clinical Microbiology. 55 (6), 1883-1893 (2017).
- Schonherr, F. A., et al. The intraspecies diversity of C. albicans triggers qualitatively and temporally distinct host responses that determine the balance between commensalism and pathogenicity. Mucosal Immunology. 10 (5), 1335-1350 (2017).
- Igyarto, B. Z., et al. Skin-resident murine dendritic cell subsets promote distinct and opposing antigen-specific T helper cell responses. Immunity. 35 (2), 260-272 (2011).
- Liu, H., et al. Staphylococcus aureus Epicutaneous Exposure Drives Skin Inflammation via IL-36-Mediated T Cell Responses. Cell Host Microbe. 22 (5), 653-666 (2017).
- Nakagawa, S., et al. Staphylococcus aureus Virulent PSMalpha Peptides Induce Keratinocyte Alarmin Release to Orchestrate IL-17-Dependent Skin Inflammation. Cell Host Microbe. 22 (5), 667-677 (2017).
- Sparber, F., LeibundGut-Landmann, S. Host Responses to Malassezia spp. in the Mammalian Skin. Frontiers in Immunology. 8, 1614(2017).
- Yamasaki, S., et al. C-type lectin Mincle is an activating receptor for pathogenic fungus, Malassezia. Proceedings of the National Academy of Sciences of the United States of America. 106 (6), 1897-1902 (2009).
重印与许可
