本方案描述了用于研究幼儿午睡期间依赖睡眠的记忆巩固神经机制的方法。该方案包括考察睡眠对行为记忆表现影响的实验步骤,以及多导睡眠图和活动记录仪的应用与记录方法。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
方法文章
测量学龄前儿童午睡期间依赖睡眠的记忆巩固相关的神经机制
* These authors contributed equally
本文内容
摘要
摘要
睡眠对日常功能至关重要。睡眠的一个重要功能是记忆巩固,这一过程可增强记忆并使其更不易受到干扰。可通过多导睡眠图(polysomnography, PSG)研究睡眠促进记忆的神经机制。PSG结合了多种生理信号记录,包括脑电(EEG)、眼电(EOG)和肌电(EMG),用于睡眠阶段的分类。在本实验方案中,我们描述了如何将PSG与行为记忆评估、活动记录仪(actigraphy)及家长报告相结合,以研究依赖睡眠的记忆巩固过程。本方案重点关注早期童年阶段,这一时期具有重要意义,因为儿童正从双相睡眠(包含午睡和夜间睡眠)过渡到单相睡眠(仅夜间睡眠)。通过在睡眠和清醒静息期间进行视觉空间记忆评估,测量睡眠对记忆表现的影响。结合使用活动记录仪和家长报告,用于评估睡眠节律(即判断儿童是否为习惯性午睡者)。最后,利用PSG对午睡期间的睡眠阶段及其质量特征(如频率和睡眠纺锤波的存在)进行表征。PSG的优势在于,它是目前唯一可用于评估睡眠质量和睡眠结构的工具,能够揭示支持记忆巩固的相关脑状态。PSG的主要局限性在于安装记录电极所需时间较长,且记录通常仅覆盖一次睡眠周期。这些局限性可通过在电极安装期间为年幼儿童安排分散注意力的任务,并将PSG与活动记录仪及自我/家长报告测量相结合以表征睡眠周期来克服。这一独特的方法组合共同支持对 如何 小睡有助于学龄前儿童的学习。
引言
鉴于睡眠在我们日常生活中极为普遍,了解其功能显得尤为重要。实现这一目标的研究需要对睡眠进行精确测量。多导睡眠图(PSG)是睡眠测量的金标准。PSG 能够以高时间分辨率对睡眠进行客观、定量的评估,适用于科研和临床目的。PSG 是多种生理信号记录的组合。最基本的 PSG 记录组合至少包括以下几项指标:脑电图(EEG)、眼电图(EOG)和肌电图(EMG)。这些指标分别用于评估来自大脑、眼睛和肌肉的电位变化,从而实现对睡眠阶段的分类(见图1)。此外,还可加入其他指标,如心电图(ECG)、呼吸监测和脉搏血氧测定,以识别是否存在睡眠障碍。
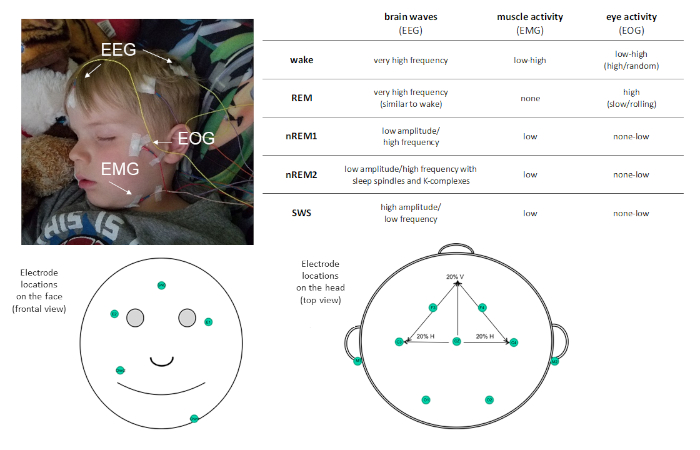
图1:多导睡眠图(PSG)记录的示例电极放置及活动描述。 请点击此处查看本图的放大版本。
多导睡眠图(PSG)可将睡眠分为四个不同的睡眠阶段:非快速眼动(non-REM)第1期(nREM1;4−7 Hz)、非快速眼动第2期(nREM2;12−15 Hz)、非快速眼动第3期(更常被称为慢波睡眠[SWS];0.5−4 Hz),以及快速眼动(REM)睡眠。nREM1标志着睡眠的开始,其特征是肌电图(EMG)记录中肌肉张力降低,以及相对于静息清醒状态下的α波,脑电图(EEG)出现混合振幅的振荡。随后进入nREM2期,该阶段可通过脑电图中出现睡眠纺锤波(σ频段活动的短暂爆发;11−16 Hz)和K复合波(从周围活动中突出的单个慢波)加以识别。SWS的特征是明显的低频高幅脑电振荡。REM睡眠则表现为快速、低幅的脑电活动,与清醒状态下的脑电活动非常相似。然而,REM睡眠与清醒状态的区别在于,它同时伴有阵发性的快速眼球运动(因此得名REM)和肌肉失张力。在一个睡眠周期中,睡眠阶段以大约每90分钟一个周期的频率周期性地交替出现。
睡眠也遵循昼夜节律,以24小时为周期发生睡眠事件。睡眠的时间和规律性可能影响睡眠功能,因此对其进行评估也十分重要。尽管多导睡眠图(PSG)对于表征睡眠阶段是必需的,但其应用耗时较长,因此不适合用于评估多次睡眠事件(例如多个晚上的睡眠、午睡以及夜间睡眠)。在这方面,活动记录仪具有优势。活动记录仪使用三轴加速度计,通常佩戴在手腕上,通过检测无运动状态来估计睡眠。尽管活动记录仪不能用于表征睡眠阶段,但研究已证明其在检测入睡时间与觉醒时间(包括睡眠片段化或入睡后觉醒)方面具有可靠性,适用于从婴儿1到老年人2的多种人群。无论是PSG还是活动记录仪,均优于自我报告或家长报告的测量方法。自我报告或家长报告方法易于实施且相对经济,但容易受到偏倚和依从性差的影响。最后值得指出的是,这些方法可结合使用,以发挥各自的优势。例如,可将PSG与活动记录仪和/或自我报告/家长报告相结合,从而同时获得夜间睡眠质量信息以及睡眠量或睡眠-觉醒周期的验证,尤其是在较长时间段内(如数周或数月)的监测中。
睡眠的一个备受关注的功能是依赖睡眠的记忆巩固,即记忆在睡眠中得到加工,从而变得更加牢固且不易受到干扰3。尽管在儿童4和成人5中,记忆巩固也可在清醒状态下发生,但已有大量证据表明,睡眠期间的记忆巩固效果更佳。以往的研究通过比较睡眠时段(例如,晚上8点至次日早上8点)与等长清醒时段(例如,早上8点至晚上8点)后记忆表现的变化,提供了依赖睡眠的记忆巩固的行为学例证。在成人中,经过一段睡眠后,记忆得以保持6甚至增强7,而在等长的清醒时段内,记忆通常会衰退。已有研究采用控制条件以排除昼夜节律的影响8,9,10。例如,在比较午间小睡与等长的午间清醒时段后的表现时,同样观察到睡眠带来的类似益处9。
尽管睡眠曾被认为仅反映一种被动过程,即单纯保护记忆免于衰退或干扰,但现代理论认为睡眠发挥着更为主动的作用,实际上通过再激活促进记忆11,12,13。这一观点的支持证据来自睡眠期间记忆巩固的行为学测量(睡眠后与睡眠前记忆回忆的变化)与特定睡眠生理特征之间的观察相关性。对于许多陈述性记忆任务而言,记忆巩固与非快速眼动睡眠(non-REM sleep)的某些特征相关,特别是慢波睡眠(SWS)或在nREM2和SWS中出现的睡眠纺锤波指标。如果睡眠的作用仅仅是被动地防止干扰,则不应预期出现此类相关性;相反,应预期睡眠时间(无论睡眠阶段)与行为表现之间存在相关性,因为更长的睡眠时间将提供更强的抗干扰保护14。
SWS 在记忆巩固中的主动作用,还可通过靶向记忆再激活研究得到进一步支持。在这些研究中,个体在某种感知线索(例如一种气味)的背景下学习一段记忆,若在睡眠期间(尤其是慢波睡眠阶段)重新呈现该线索,则记忆的回忆效果会更好15。尽管其潜在机制尚存争议16,17,但其中一种重要理论——系统巩固理论认为,海马体内编码的记忆通过海马-新皮层之间的交互对话在大脑皮层中得以稳定。具体而言,皮层慢波和睡眠纺锤波与海马尖波涟漪(与记忆再激活相关)协同发生,共同支持记忆从海马向皮层的转移过程3。
睡眠在发育过程中对记忆巩固的作用尚不明确。幼儿期尤其值得关注,因为儿童在此阶段开始从双相睡眠模式(包含午间小睡和夜间连续睡眠)向单相睡眠模式过渡。最近的研究表明,这种转变可能反映了大脑的成熟过程18。这一观点与实证数据一致,即夜间睡眠的发育变化(例如慢波活动的拓扑分布)与大脑皮层的成熟过程相吻合19。
尽管已有若干行为学研究证明儿童20,21和婴儿22存在依赖夜间睡眠的记忆巩固现象,但关于午间睡眠在记忆巩固中神经机制的研究尚处于起步阶段。在开创性研究中,研究者考察了午间小睡对学龄前儿童记忆的影响,发现小睡有助于保护新近学习信息的记忆,而当儿童在本应小睡的时间段保持清醒时,记忆则会下降(约降低12%)23。这种“小睡益处”在习惯性小睡的儿童中最为显著(即通过体动记录法测量的每周小睡5次或以上的儿童),且不受年龄影响。通过在小睡期间记录多导睡眠图(PSG),发现小睡期间记忆表现的变化与睡眠纺锤波密度(即每分钟非快速眼动睡眠中的睡眠纺锤波数量)密切相关,提示小睡的质量(而非时长)是促进记忆保持的关键因素(参见代表性结果部分)。
本研究强调了多导睡眠图(PSG)在探索发育过程中睡眠与记忆关系方面的重要性。研究指出,表征午睡期间的睡眠宏观结构(睡眠阶段)和微观结构(如各阶段的频率特征及纺锤波出现情况)对于记忆巩固具有重要意义。同时强调了评估睡眠节律(将儿童区分为习惯性午睡者与非习惯性午睡者)的重要性。尽管我们的工作已阐明午睡在视觉空间学习中的作用(以及近期在情绪24和程序性25学习中的作用),但仍有许多问题有待解答。例如,有必要检验其他陈述性记忆任务,以评估这些发现的普适性,并考察学龄前教室中常用的任务,以明确生态效度高的任务中特定参数(如午睡益处相对于学习量的程度)。此外,还需进一步研究清醒状态在何种情况下足以支持记忆巩固。因此,我们的目标是阐明在儿童中测量睡眠及依赖睡眠的记忆巩固过程。我们提供了实用建议,介绍如何利用计算机化的视觉空间记忆任务,评估午后午睡对典型发育学龄前儿童(约3至4岁)陈述性记忆的益处;同时提供使用活动记录仪、家长报告以及PSG评估午睡习惯性和午睡生理的方法。尽管这些方法最初是为不同频率午睡的学龄前儿童开发的,但也可根据需要调整应用于任何年龄组。
访问受限。请登录或开始试用以查看此内容。
方案
在开始任何研究程序之前,应从儿童的家长处获得书面同意,并从儿童本人处获得口头同意,以确保所有研究程序的参与均获得知情同意。
注意:有关操作流程的概述,请参见图2。
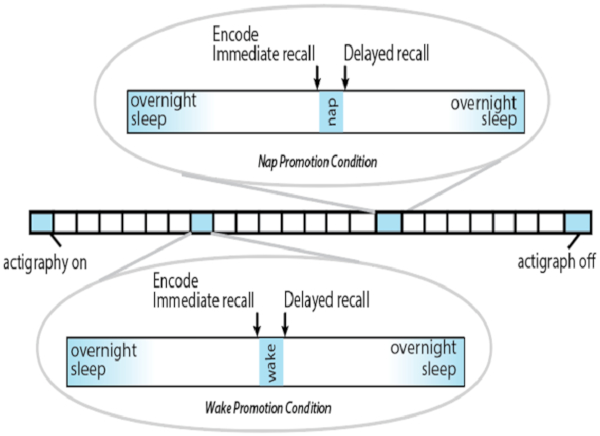
图 2:实验方案概览。每个方框代表一天。 请点击此处查看该图的放大版本。
1. 促进 Nap 的条件
- 确保在参与者之间,小睡促进条件与清醒促进条件的安排按照下文所述进行交叉平衡。
- 将小睡促进条件的开始时间安排在儿童通常小睡时间前约一小时,以便留出时间安装多导睡眠图(PSG)设备并执行视空间记忆任务。确保即时回忆与延迟回忆之间的时间间隔在清醒促进条件和小睡促进条件中保持一致。
- 使用适合年龄的材料向儿童及其家长解释本环节的流程。
注意:适合年龄的材料包括故事书或另一名儿童接受相同流程的短视频。 - 安装多导睡眠图设备(参见第3节)。
- 执行视空间记忆任务的编码阶段及即时记忆评估(参见第4节)。
- 让儿童如厕,然后开始其典型的小睡前常规程序。
- 允许家长/照护者以他们通常的方式哄儿童入睡。尽可能减少干预,因为大多数儿童在遵循其常规程序时入睡更快。
- 允许儿童在其惯常的小睡地点进行小睡。
- 仅在必要时使用小睡促进技术,因为在家庭环境中,若这些方法与其常规程序差异过大,则成功率较低。
注意:小睡促进技术包括使用加重毯子、轻抚受试者背部、用毯子包裹儿童(类似于襁褓)、渐进性肌肉放松以及播放舒缓音乐。
- 确保儿童在小睡促进条件下的睡眠时长与其在清醒促进条件下的活动时长相匹配。
注意:若先进行小睡促进条件,允许儿童自然醒来,并以此持续时间设定清醒阶段的时长;若先进行清醒促进条件,则以此持续时间确定小睡的时长。若小睡时间超过该时长,应尽可能自然地唤醒儿童,例如打开房门、在卧室外走动、并逐渐提高说话音量。 - 在儿童醒来后约15−30分钟进行视空间记忆任务的延迟回忆评估,以避免睡眠惯性影响。
- 收集儿童和实验人员对视觉困倦量表(VSS)26和视觉情绪量表(VMS)27的评分。
- 移除PSG电极。
2. 觉醒促进条件
- 确保清醒促进条件与上述小睡促进条件进行交叉平衡。
- 安排清醒促进条件在儿童通常小睡时间前约一小时开始,以使不同条件下的时间点保持一致。确保即时回忆与延迟回忆之间的时间间隔在清醒促进和小睡促进条件下大致相同。
- 使用适合年龄的材料向儿童及其家长解释本环节的流程。
- 安放多导睡眠图(PSG)电极(参见第3节),以使清醒和小睡促进条件保持一致。
注:尽管不预期发生睡眠,但此步骤可使条件等效,并可在存疑时用于确认无睡眠发生。 - 进行视觉空间记忆任务的编码及即时记忆评估(参见第4节)。
- 让儿童如厕后前往其通常小睡的地点。
- 不允许儿童小睡,而是让其在通常小睡的同一地点安静地玩耍,玩具应为非刺激性玩具。
注:可接受的非刺激性玩具包括蜡棒等小型感觉运动玩具以及适合年龄的互锁塑料积木。 - 让儿童玩耍的时间应等于其通常小睡的时长,或等于其在小睡促进条件下实际睡眠的时间(更多信息参见步骤1.7)。
- 记录任何异常活动,例如说话、离开房间或玩未提供的玩具。
- 不允许儿童小睡,而是让其在通常小睡的同一地点安静地玩耍,玩具应为非刺激性玩具。
- 确保儿童在小睡促进条件下的睡眠时长与其在清醒促进条件下的玩耍时长一致。
- 在儿童结束玩耍后约15−30分钟进行视觉空间记忆任务的延迟回忆评估,以保持不同条件之间的延迟时间相似。
- 收集儿童和实验人员对VSS26和VMS27的评分。
- 移除PSG电极。
3. 多导睡眠图(PSG)
- 准备
- 通过让孩子参与安静的活动(如读书、玩橡皮泥、饥饿时吃点零食或观看短片)来促进多导睡眠图(PSG)电极的安放。
注意:如果使用影片,应确保内容适合儿童年龄,且不会引起孩子兴奋或吵闹(例如,流行的儿童友好型动画电影或节目)。 - 无需家长或监护人始终在场。但对于害羞或犹豫的孩子,应确保有其信任的照护者在场。
注意:少数孩子可能因父母或监护人在场而分心而非受益。若出现这种情况,请询问家长是否愿意暂时离开孩子的视线范围。
- 通过让孩子参与安静的活动(如读书、玩橡皮泥、饥饿时吃点零食或观看短片)来促进多导睡眠图(PSG)电极的安放。
- 采集头部测量数据。
- 使用软尺和陶瓷标记笔标记后续电极安放的位置。
- 测量枕外隆凸(inion)至鼻根(nasion)的距离,并在中点处做标记;测量一侧耳前切迹至对侧耳前切迹的距离,并在其中点处做另一标记。这两个标记的交点即为“参考点”(CZ)。
- 从枕外隆凸向上测量枕外隆凸至鼻根距离的10%。从此点向头部两侧各延伸耳前切迹间距离的10%,并做两个标记,每侧一个(O3 和 O4)。
- 从参考点向头部两侧各延伸耳前切迹间距离的20%,并做两个标记,每侧一个(C3 和 C4)。
- 从参考点向上测量枕外隆凸至鼻根距离的20%。从此点向两侧各延伸耳前切迹间距离的20%,并做两个标记,每侧一个(F3 和 F4)。
- 依次准备每个待安放的电极。
- 使用酒精棉片清洁每个电极位置,用轻微研磨性凝胶去角质,然后清除残留的清洁物质。
- 使用导电膏填充每个电极。
- 对于安放在有头发区域的电极,额外滴一滴导电膏到纱布方块上,并将其贴在电极背面。
- 对于安放在面部的电极,使用医用胶带将其固定在皮肤上。
- 在每个对应的 EEG、EOG 和 EMG 位置安放电极。
- 在头皮上每个已标记的位置安放电极(CZ、O3、O4、C3、C4、F3 和 F4)。
- 在每个乳突(耳后的小骨性突起)处安放一个电极,并在前额中心安放一个电极。
- 在每只眼睛附近安放一个 EOG 电极。其中一个电极置于右眼外侧稍上方(称为 ROC),另一个置于左眼外侧稍下方(称为 LOC)。
- 在下颌区域安放两个 EMG 电极。一个电极置于右脸颊微笑线稍上方;另一个置于左侧下颌与颈部交界处、靠近食管的位置。通过让受试者大声说出“milk”一词,同时触摸颈部和下颌区域,找到肌肉收缩最明显的位置,以确定第二个电极的位置。
- 将电极连接至记录设备并开始记录。
- 记录所有电极的阻抗读数,确保所有电极均通过阻抗测试。
注意:某些设备可能显示“通过”或“未通过”,而其他设备可能提供具体数值。在后者情况下,阻抗低于 25 kΩ 即可接受。若某电极阻抗未通过或过高,先更换电池;若问题仍未解决,则重新安放该电极。 - 每种条件记录结束后,移除 PSG 电极。
- 对于安放在头发中的电极,使用水性喷雾浸湿电极位置,静置约一分钟后再移除电极。
注意:去打结护发喷雾在移除头皮电极方面效果显著。 - 对于使用胶带固定的电极(通常位于面部和乳突),使用浸有婴儿油的棉片充分浸润胶带。当胶带完全被婴儿油覆盖后,从角落轻轻将其揭起。
- 对于安放在头发中的电极,使用水性喷雾浸湿电极位置,静置约一分钟后再移除电极。
4. 视觉空间记忆任务
- 向年龄小于44个月的儿童呈现以3×3矩阵排列的9个待记忆刺激;向年龄大于44个月的儿童呈现以3×4矩阵排列的12个待记忆刺激。
注意:若分配至12项矩阵的儿童感到任务过于困难,可改用9项矩阵。同样,若明显发现9项矩阵过于简单,可改用12项矩阵以避免天花板效应。这种调整是合理的,因为研究关注的变量是被试内准确率,而非原始得分。刺激材料通常为卡通风格的常见图像(如熊、汽车、剪刀),以矩阵形式排列并呈现在笔记本电脑屏幕上。共有两套不同的刺激材料,以便在两种条件(即 nap 与 wake promotion)之间进行任务的平衡设计,确保儿童在两种条件下不会看到相同的图片。 - 任务分为三个阶段进行:编码阶段、即时回忆阶段和延迟回忆阶段。每个阶段均允许儿童以自己的节奏回答问题。
注意:各阶段的典型持续时间分别为:编码阶段6分钟,即时回忆阶段2分钟,延迟回忆阶段2分钟。- 在编码阶段,指导儿童逐一说出每个图像的名称,然后要求其记住每个项目在网格中的位置。编码完成后,将卡片替换为“空白”图像,儿童需回忆并指出每个图像的原始位置,直至其编码得分为≥75%。
注意:选择75%作为阈值是基于年轻成年人的研究28,29,30,该阈值反映了学习已明确达成但尚未达到天花板的水平。- 在此阶段,被试每次作答后会从任务系统中获得视觉反馈。儿童选择某一图像位置后,系统将显示对应图像,告知其选择的位置是否正确。
- 给予儿童口头反馈以激励其参与,但需确保在两种条件下反馈量保持一致。当儿童成功定位图像时,使用诸如“太棒了,你答对了!”之类的语言;当儿童失败时,使用强调其努力的语句(例如,“哎呀!没答对,但做得很好!看看下一个能不能答对。”)。
- 对于分配至12项矩阵的儿童,若在4轮编码后仍无法通过,可允许其休息、做跳跃运动或活动约5分钟。若再进行2轮后仍无法通过,则重新以9项矩阵开始编码。
- 对于分配至9项矩阵的儿童,若其在第一轮即获得100%的编码得分,则给予其尝试12项矩阵编码任务的机会。若其未完成所有必要步骤而退回9项矩阵,则在后续两个阶段使用12项矩阵。
- 在即时回忆阶段,再次逐一呈现图像,要求儿童回忆其对应的位置。此阶段不提供视觉或口头反馈,每个项目仅探测一次。但可对努力程度给予反馈(例如,“很好,你已经尽力了”)。
- 在清醒或睡眠干预条件结束后立即进行延迟回忆阶段。
注意:此阶段与即时回忆阶段完全相同。- 有时儿童在延迟回忆阶段会变得烦躁。若发生此情况,可通过奖励或在PSG设备拆除期间允许其多观看一段时间电影来鼓励其完成任务。在此期间,必须确保儿童在完成记忆任务前不得玩玩具或从事其他活动。
- 在编码阶段,指导儿童逐一说出每个图像的名称,然后要求其记住每个项目在网格中的位置。编码完成后,将卡片替换为“空白”图像,儿童需回忆并指出每个图像的原始位置,直至其编码得分为≥75%。
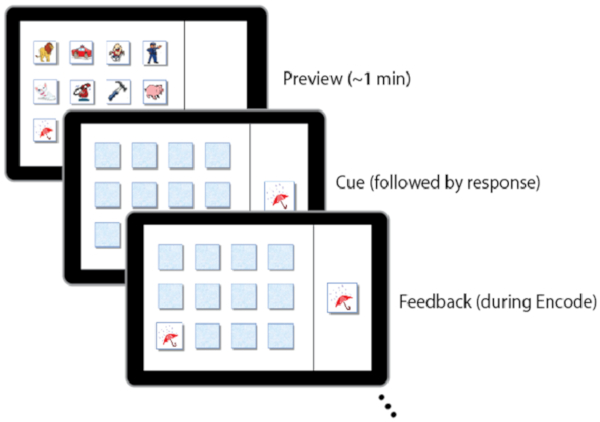
图3:视觉空间记忆任务中的屏幕显示示例。 请点击此处查看该图的放大版本。
5. 体动记录法
- 设置活动监测手表。
注:活动监测手表的采样频率为 32 Hz,灵敏度为 <0.01 g。活动数据以 15 秒为一个时间段进行存储。 - 为每位参与者提供一个预先设置好的活动监测手表及使用说明。告知家长该手表应始终佩戴。强调手表具有防水功能,因此无需取下。
- 指导儿童持续将手表佩戴在非优势手上。
- 指导家长每次儿童准备入睡时按下表盘侧面的按钮,并在儿童醒来时再次按下。
注:这将在数据中生成一个事件标记,有助于体动记录仪数据的判读。
- 向家长提供一份睡眠日记(类似于日志或电子表格),用于记录睡眠时间和手表取下情况。
注:这也有助于体动记录仪数据的判读。- 在睡眠日记中,请家长完整记录儿童佩戴活动监测手表期间每一天的所有睡眠情况,包括儿童上床时间和醒来时间。家长应同时提供日间小睡和夜间常规睡眠的信息。此外,请家长记录任何取下手表的时间。
6. 数据分析
- 视空间记忆任务
- 将每次回忆阶段的回忆项目百分比计算为准确率。
- 计算 nap 和清醒时间段内回忆能力的变化,方法如下。
- 计算回忆正确率的变化小睡 通过从延迟回忆准确率(午睡后)中减去即时回忆准确率(午睡前)来计算。
- 计算回忆准确率的变化清醒 通过从延迟回忆准确率(清醒后)中减去即时回忆准确率(清醒前)来计算。
- PSG
- 根据标准评分标准对睡眠阶段进行分期(例如,《AASM 睡眠及相关事件评分手册》v. 2.5)。
- 使用专用软件在C3处检测睡眠纺锤波,并标记纺锤波的起始点和偏移点。
- 与第二位经过培训的研究人员共同确认睡眠阶段以及纺锤波的起始和终止时间。若评分结果不一致,由第三位经过培训的评分者做出最终共识决定。
- 使用基于前期研究的专用软件和实验室自编的 MATLAB 代码分析纺锤体密度31简而言之,将脑电图(EEG)数据进行0.5−35 Hz的滤波。将识别出的纺锤波起始点与终止点之间的最大电压定义为纺锤波峰值振幅。对每个纺锤波进行快速傅里叶变换,以确定9−15 Hz范围内的峰值谱频率。24,32.
- 活动记录仪
- 使用专用软件按照标准化方案对活动腕表数据进行评分20.
注意:需要多个白天和夜晚的数据以确保数据的可靠性。参与者至少需要三天三夜的活动记录仪数据(白天和夜晚无需连续);然而,当这些数据为主要关注点时,建议至少采集五个夜晚的数据。33. - 利用睡眠日记信息和事件标记(按钮按下)来验证睡眠起始和终止时间。
注意:为了记录休息间隔的开始和结束时间,这两项操作必须在 20 分钟内完成。- 如果参与者的睡眠日记信息、事件标记缺失,或日记与事件标记的时间相差超过20分钟,则需手动确定睡眠起始和终止时间32通过连续睡眠的前3分钟确定睡眠起始33 并通过连续睡眠的最后五分钟确定睡眠结束时间34.
- 使用专用软件按照标准化方案对活动腕表数据进行评分20.
访问受限。请登录或开始试用以查看此内容。
结果
通过采用此处所述的实验程序,Kurdziel 及其同事23研究了学龄前儿童在午睡期间依赖睡眠的记忆巩固过程。结果显示,儿童在午睡后进行视觉空间记忆任务的回忆准确率高于在保持清醒状态下经过相似时间段后的回忆准确率(即表现出“午睡益处”,图4)。此外,在前一天处于清醒状态的儿童,其记忆在夜间睡眠中并未得到恢复。最后,研究人员利用活动记录仪和家长报告的睡眠测量数据,分析了习惯性午睡者与非习惯性午睡者是否均表现出午睡益处。研究发现表明,午睡益处仅在那些有规律午睡习惯的儿童中具有显著性(即习惯性午睡者,图5)。
访问受限。请登录或开始试用以查看此内容。
讨论
本文介绍了如何在幼儿午睡期间研究睡眠依赖性的陈述性记忆巩固过程。研究方法包括在午睡和清醒条件下对记忆进行行为评估,采用活动记录仪和家长报告评估睡眠周期,以及使用多导睡眠图(PSG)评估睡眠结构。这种独特的方法组合对于评估记忆表现、刻画睡眠周期以及探究睡眠促进记忆的神经机制至关重要。代表性结果表明,学习与记忆效果依赖于午间的睡眠,尤其在有规律午睡习惯的儿童中更为显著。具体而言,有规律午睡习惯的儿童在午睡后表现出比保持清醒更大的记忆优势(即午睡获益分数)。此外,在所有儿童中,午睡期间更好的记忆保持(即午睡变化分数)与非快速眼动睡眠第二阶段(nREM2)期间记录到的睡眠纺锤波数量相关:午睡期间记忆保持越好,睡眠纺锤波数量越多。尽管上述方法的结合对于全面刻画睡眠对记忆的影响至关重要,但该方法最重要的方面或许是通过PSG识别与该效应相关的潜在神经机制。目前,PSG是唯一能够通过睡眠阶段测量来表征睡眠质量的方法学工具,因此也是唯一能够揭示睡眠依赖性效应(如记忆巩固)背后神经生物学机制的研究手段。
PSG 的主要优势在于其无创性,并能够对四种睡眠阶段进行表征,包括非快速眼动睡眠(nREM)1−3...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
作者感谢马里兰大学帕克分校的神经认知发展实验室以及马萨诸塞大学阿默斯特分校的Somneuro实验室在本项目中提供的协助。本研究由美国国立卫生研究院(NIH HD094758)和美国国家科学基金会(NSF BCS 1749280)向TR和RS提供资助。代表性成果由美国国立卫生研究院(NIH HL111695)资助。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| Actiwatch Spectrum Plus 起始套装 | Philips Respironics | 1109516 | 包含:Actiwatch Spectrum Plus 设备、Actiware 软件许可证及使用手册 |
| Actiware 软件 | Philips Respironics | 1114828 | 可提供替代产品。 |
| Brain Analyzer | Brain Products | BV-BP-170-1000 | 可提供替代产品。 |
| Dell Latitude 5580 笔记本电脑 | Dell | X5580T [210-AKJR] | 用于运行 MatLab、Actiware 和 RemLogic 软件,以及存储/上传数据 |
| EC2 奶油导电膏 | Grass | 12643 | 可能的替代品包括 Ten20 糊剂和 Lic2 电极膏 |
| Embla REMLogic 软件 | Natus Medical Inc. | 21475 | 可提供替代产品。 |
| Embletta MPR PG 系统 - XR - US | Natus Medical Inc. | 12077 | 用于 PSG 记录的 Embletta 系统 |
| Embletta MPR ST + Proxy 套件 | Natus Medical Inc. | 12696 | 连接至 Embletta 以记录 PSG 传感器信号 |
| Nuprep 清洁液 | Natus Medical Inc. | 12643 | 可能有替代品可用。 |
| Embletta MPR ST/ST + Proxy 睡眠监测起始套装 | Natus Medical Inc. | 12643 | 睡眠监测起始套装,包含纱布、EC2 奶油导电膏、NuPrep 清洁液、棉签等。 |
参考文献
- Sadeh, A., Acebo, C., Seifer, R., Aytur, S., Carskadon, M. A. Activity-based assessment of sleep-wake patterns during the 1st year of life. Infant Behavioral Development. 18 (3), 329-337 (1998).
- Sadeh, A., Urbach, D., Lavie, P. Actigraphically-based automatic bedtime sleep-wake scoring: Validity and clinical applications. Journal Ambulatory Monitoring. 2 (3), 209-216 (1989).
- Rasch, B., Born, J. About sleep's role in memory. Physiological Reviews. 93, 681-766 (2013).
- Werchan, D. M., Gómez, R. L. Wakefulness (not sleep) promotes generalization of word learning in 2.5-year-old children. Child Development. 85 (2), 429-436 (2014).
- Wang, J. Y., Weber, F. D., Zinke, K., Inostroza, M., Born, J. More effective consolidation of episodic long-term memory in children than adults-unrelated to sleep. Child Development. 89 (5), 1720-1734 (2018).
- Sonni, A., Spencer, R. M. C. Sleep protects memories from interference in older adults. Neurobiology of Aging. 36 (7), 2272-2281 (2015).
- Marshall, L., Helgadóttir, H., Mölle, M., Born, J. Boosting slow oscillations during sleep potentiates memory. Nature. 444 (7119), 610-613 (2006).
- Baran, B., Wilson, J., Spencer, R. M. C. REM-dependent repair of competitive memory suppression. Experimental Brain Research. 203 (2), 471-477 (2010).
- Diekelmann, S., Born, J. The memory function of sleep. Nature Reviews Neuroscience. 11 (2), 114-126 (2010).
- Stickgold, R. Sleep dependent memory consolidation. Nature. 437 (27), 1272-1278 (2005).
- Dudai, Y., Karni, A., Born, J. The consolidation and transformation of memory. Neuron. 88 (1), 20-32 (2010).
- Feld, G. B., Born, J. Sculpting memory during sleep: concurrent consolidation and forgetting. Current Opinion in Neurobiology. 44, 20-27 (2017).
- Staresina, B. P., et al. Hierarchical nesting of slow oscillations, spindles and ripples in the human hippocampus during sleep. Nature Neuroscience. 18 (11), 1679-1686 (2015).
- Ellenbogen, J. M., Payne, J. D., Stickgold, R. The role of sleep in declarative memory consolidation: passive, permissive, active or none? Current Opinion Neurobiology. 16 (6), 716-722 (2006).
- Oudiette, D., Paller, K. A. Upgrading the sleeping brain with targeted memory reactivation. Trends in Cognitive Sciences. 17 (3), 142-149 (2013).
- Yonelinas, A. P., Ranganath, C., Ekstrom, A. D., Wiltgen, B. J. A contextual binding theory of episodic memory: systems consolidation reconsidered. Nature Reviews Neuroscience. 20, 364-375 (2019).
- Antony, J. W., Schapiro, A. C. Active and effective replay: systems consolidation reconsidered again. Nature Reviews Neuroscience. , (2019).
- Lam, J., Mahone, E. M., Mason, T., Scharf, S. M. The effects of napping on cognitive function in preschoolers. Journal of Developmental & Behavioral Pediatrics. 32 (2), 90-97 (2011).
- Kurth, S., Ringli, M., Geiger, A., Lebourgeois, M., Jenni, O. G., Huber, R. High-density sleep electroencephalogram study. Journal of Neuroscience. 30 (40), 13211-13219 (2010).
- Backhaus, J., Hoeckesfeld, R., Born, J., Hohagen, F., Junghanns, K. Immediate as well as delayed post learning sleep but not wakefulness enhances declarative memory consolidation in children. Neurobiology of Learning and Memory. 89 (1), 76-80 (2008).
- Wilhelm, I., Diekelmann, S., Born, J. Sleep in children improves memory performance on declarative but not procedural tasks TT - Bei Kindern verbessert Schlaf die Gedächtnisleistung für deklarative aber nicht für prozedurale Aufgaben. Learning and Memory. 15 (5), 373-377 (2008).
- Seehagen, S., Konrad, C., Herbert, J. S., Schneider, S. Timely sleep facilitates declarative memory consolidation in infants. Proceedings of the National Academy of Sciences. 112 (5), 1625-1629 (2015).
- Kurdziel, L., Duclos, K., Spencer, R. M. C. Sleep spindles in midday naps enhance learning in preschool children. Proceedings of the National Academy of the Sciences of the United States of America. 110 (43), 17267-17272 (2013).
- Kurdziel, L. B. F., Kent, J., Spencer, R. M. C. Sleep-dependent enhancement of emotional memory in early childhood. Scientific Reports. 8 (12609), 1-10 (2018).
- Desrochers, P. C., Kurdziel, L. B. F., Spencer, R. M. C. Delayed benefit of naps on motor learning in preschool children. Experimental Brain Research. 234 (3), 763-772 (2016).
- Maldonado, C. C., Bentley, A. J., Mitchell, D. A pictorial sleepiness scale based on cartoon faces. Sleep. 27 (3), 541-548 (2004).
- Stern, R. A., Arruda, J. E., Hooper, C. R., Wolfner, G. D., Morey, C. E. Visual analogue mood scales to measure internal mood state in neurologically impaired patients: Description and initial validity evidence. Aphasiology. 11 (1), 59-71 (1997).
- Plihal, W., Born, J. Effects of early and late nocturnal sleep on indicators of procedural and declarative memory. Journal of Cognitive Neuroscience. 9 (4), 534-547 (1997).
- Donohue, K. C., Spencer, R. M. C. Continuous re-exposure to environmental sound cues during sleep does not improve memory for semantically unrelated word pairs. Journal of Cognitive Education and Psychology. 10 (2), 167-177 (2015).
- Wilson, J. K., Baran, B., Pace-Schott, E. F., Ivry, R. B., Spencer, R. M. C. Sleep modulates word-pair learning but not motor sequence learning in healthy older adults. Neurobiology of Aging. 33 (5), 991-1000 (2012).
- Wamsley, E. J., et al. Reduced sleep spindles and spindle coherence in schizophrenia: Mechanisms of impaired memory consolidation? Biological Psychiatry. 71 (2), 154-161 (2012).
- Mölle, M., Bergmann, T. O., Marshall, L., Born, J. Fast and slow spindles during the sleep slow oscillation: Disparate coalescence and engagement in memory processing. Sleep. 34 (10), 1411-1421 (2011).
- Acebo, C., et al. Sleep/wake patterns derived from activity monitoring and maternal report for healthy 1- to 5-year-old children. Sleep. 28 (12), 1568-1577 (2005).
- Acebo, C., et al. Estimating sleep patterns with activity monitoring in children and adolescents: How many nights are necessary for reliable measures? Sleep. 22 (1), 95-103 (1999).
- Geiger, A., et al. The sleep EEG as a marker of intellectual ability in school age children. Sleep. 34 (2), 181-189 (2011).
- Wagner, U., Gais, S., Born, J. Emotional memory formation is enhanced across sleep intervals with high amounts of rapid eye movement sleep. Learning and Memory. 8, 112-119 (2001).
- Gómez, R. L., Bootzin, R. R., Nadel, L. Naps promote abstraction in language-learning infants. Psychological Science. 17 (8), 670-674 (2006).
- Konrad, C., Herbert, J. S., Schneider, S., Seehagen, S. Gist extraction and sleep in 12-month-old infants. Neurobiology of Learning and Memory. 134, 216-220 (2016).
访问受限。请登录或开始试用以查看此内容。
重印与许可
