我们概述了一项为期9天的实验方案,用于转导并扩增恒河猴外周血单个核细胞,可获得数量充足、目的基因共表达效果优良的细胞,适用于细胞疗效输注研究。
本文内容
摘要
摘要
用于治疗传染病和癌症的新兴免疫疗法通常涉及将编码靶向疾病蛋白的基因转导至细胞群体中。例如,用于治疗癌症和病毒感染的嵌合抗原受体(CAR)-T细胞,即通过将编码CAR分子的人工合成基因转导至T细胞中实现。CAR分子使T细胞能够特异性识别并杀伤癌细胞或病毒感染细胞。此外,细胞也可同时转导其他目的基因。例如,可将编码靶向特定组织部位蛋白的基因与目的基因共同转导。本文介绍一种将编码病毒特异性CAR分子以及B细胞滤泡归巢分子——趋化因子受体5型(CXCR5)的基因转导至原代外周血单个核细胞(PBMCs)的实验方案。该流程耗时九天,最终获得的转导T细胞群体可维持中枢记忆表型。研究表明,保持中枢记忆或低分化表型与细胞回输后的长期存续能力相关。此外,采用本方法制备的细胞具有高存活率、两种转导基因的高共表达水平,且细胞产量足以满足免疫治疗回输的需求。该九天方案可广泛适用于CAR-T细胞及其他T细胞免疫治疗策略。本文所述方法基于我们先前发表的研究成果。
引言
细胞免疫疗法正作为一种治疗癌症和传染病等疾病的新手段而兴起。这些免疫疗法通常涉及对治疗性细胞进行基因改造,使其表达特定分子。例如,嵌合抗原受体(CAR)T细胞经过工程化改造,可表达一种CAR分子,该分子具有可特异性结合病变细胞表面分子的胞外结构域,以及可触发免疫细胞杀伤病变细胞的信号传导结构域。CAR T细胞已在癌症免疫治疗中取得成功,尤其在治疗B细胞白血病方面效果显著1,2,3。目前也在开发用于治疗HIV等病毒感染的CAR-T细胞。针对HIV的CAR可靶向病毒感染细胞表面的包膜蛋白4。此外,还可对免疫治疗细胞进行工程化改造,使其表达归巢分子,从而将治疗细胞靶向至特定组织部位。我们已开发出可同时转导病毒特异性CAR和淋巴滤泡归巢分子CXCR5的载体5。
某些病毒(包括人类免疫缺陷病毒(HIV)和猴免疫缺陷病毒(SIV))的病毒复制主要集中于次级淋巴组织中的B细胞滤泡内6。B细胞滤泡属于一定程度上的免疫豁免区域,在这些区域中,病毒特异性细胞毒性T淋巴细胞(CTL)水平较低,从而允许病毒持续复制7,8。基于这些原因,通过表达CXCR5将HIV/SIV特异性T细胞靶向导入滤泡,成为清除感染病毒的滤泡储存库的一种策略9,10。具体而言,我们正通过共表达CXCR5,将SIV特异性CAR T细胞靶向至B细胞滤泡。
在本方案中,我们描述了一种转导CAR/CXCR5并扩增外周血单个核细胞(PBMCs)的方法,以产生足够数量用于治疗性输注的CAR/CXCR5 T细胞。采用这些方法转导的细胞可维持中枢记忆表型。研究表明,相较于分化程度更高的细胞,表型更不成熟的细胞(如中枢记忆T细胞和记忆性T干细胞)具有更强的体内持久性11,12。此外,许多用于制备过继性转输细胞的方案培养周期相对较长,导致细胞分化程度升高,持久性降低13。进一步研究发现,在恒河猴模型中,经过长时间培养的过继性转输细胞主要积聚于肺部,而非靶向的淋巴组织14,15。在本文所描述并展示的方法中,我们实现了恒河猴PBMC的快速转导与扩增,所获得的转导T细胞能够维持中枢记忆表型。
我们的免疫治疗策略中同时包含CD4和CD8 T细胞。选择这种混合细胞群体的原因在于,在临床试验中,若CD8+ T细胞产品中缺乏CD4+ T细胞,则输注的CD8+ T细胞难以长期存活16。本文所述方法首先使用抗CD3和抗CD28抗体激活外周血单个核细胞(PBMCs),这两种抗体可强烈刺激T细胞受体,并提供共刺激信号,以避免克隆失能17,18。
激活后,细胞被转导携带编码病毒特异性CAR和淋巴细胞归巢分子CXCR5的γ逆转录病毒载体。转导后的细胞随后在专为非贴壁细胞扩增设计的培养板中进行扩增,此类培养板底部具有透气膜。该膜可实现孔底部的气体交换,从而提高细胞存活率并改善营养供应19。采用这些方法,可在9天内产生足量的功能性细胞,用于体内输注研究。尽管本方案旨在用于恒河猴T细胞的转导与扩增,但通过略微调整物种特异性激活抗体,也可适用于其他物种的细胞。这些方法基于我们先前已发表的研究9,20。
方案
注意:该恒河猴外周血单个核细胞(PBMC)转导方案需使用γ-逆转录病毒载体。请注意,γ-逆转录病毒可在实验室自行制备,也可外包给病毒生产公司。实验室制备可按照步骤1所述方案进行,病毒滴度测定方法见步骤2。无论病毒是在现场制备还是由生产公司提供,均应针对每批新制备的病毒及目标细胞,按照步骤3所述方法确定感染复数(MOI,即感染性病毒颗粒与培养细胞数量的比值)。
警告:操作γ-逆转录病毒载体或其他逆转录病毒载体时,必须采取适当的安全防护措施,例如穿戴实验服并佩戴双层手套。所有病毒操作均须在生物安全柜中进行。所有移液管应使用含10%次氯酸钠的溶液去污染30分钟。所有液体感染性废物应使用终浓度为10%的次氯酸钠溶液进行去污染处理。离心操作必须使用带有密封装置的二级容器,以防止微生物气溶胶释放。
1. 产生γ-逆转录病毒载体
- 为转染接种293T细胞。完整的病毒制备需要12个T75培养瓶,每瓶接种4.5 × 10⁶个细胞,使用含10%胎牛血清(FBS)的杜尔贝科改良伊格尔培养基(DMEM),不添加抗生素。
- 将细胞在37 °C培养过夜,然后进行转染。
- 将60 μL转染试剂溶于1.5 mL低血清培养基中。每个培养瓶准备一个离心管。室温孵育5分钟。
- 为每个培养瓶准备一个含有1.5 mL低血清培养基的离心管,并加入以下质粒:9.0 μg含有目的基因的转移质粒、3 μg RD114和1.2 μg VSV-G(包膜质粒),以及3 µg gag/pol。
注意:逆转录病毒包装需要包膜基因和gag/pol基因。在我们的逆转录病毒生产中,同时加入RD114包膜和少量VSV-G包膜以增强稳定性。 - 将稀释后的质粒(步骤1.4)加入稀释后的转染试剂(步骤1.3)中,轻轻混匀。室温孵育20分钟。
- 每瓶加入5 mL新鲜完全培养基,并将3 mL转染试剂/质粒混合物逐滴加入每个培养瓶中,于37 °C孵育5–6小时。
- 向培养瓶中额外加入5 mL新鲜培养基,于37 °C继续孵育42–43小时。
- 转染总时长达到48小时后,收集培养上清液,在4 °C条件下以1282 × g离心3分钟,去除细胞碎片。
- 分装成适当体积以便后续使用,将病毒在乙醇/干冰浴中快速冷冻,储存于-80 °C。
2. 慢病毒滴度测定
注意:可能需要多种病毒稀释度才能获得有效的滴度。
- 将293T细胞以每孔600,000个细胞的密度接种于6孔板中,并在37 °C下培养24小时。
- 移除细胞培养基,向293T细胞中加入所需量的DMEM + 10% FBS(病毒总体积为2 mL)。
- 将病毒加入对应的孔中,轻轻摇晃混匀。例如,分别向4个孔中加入200 µL、100 µL、50 µL和25 µL。设置一个不加病毒的孔作为流式细胞术对照(模拟感染样本)。
- 在37 °C下继续培养48小时。
- 加入0.5 mL胰蛋白酶-EDTA溶液消化293T细胞,在37 °C下孵育4分钟。加入1.5 mL DMEM + 10% FBS终止消化反应。使用自动细胞计数仪或血细胞计数板对细胞进行计数并测定细胞活力。
- 若使用细胞计数仪,取10 µL细胞悬液与10 µL台盼蓝混合,混匀后加载至计数板腔室,插入仪器中。按下"capture"按钮进行细胞计数。
- 收集0.5–1 × 10⁶个细胞,通过流式细胞术检测CAR和CXCR5的表达水平(参见步骤9.5)。CD4或MBL与CXCR5的共表达可用于鉴定同时表达CAR和CXCR5的转导293T细胞。参见步骤9.5.1中的反应性抗体。
- 计算病毒滴度。
注意:选择转导效率为20%或更低的样本用于滴度计算。- 使用以下公式计算病毒滴度:
转导单位/mL = (培养细胞数)×(转导细胞百分比)/ 加入培养物的病毒体积
- 使用以下公式计算病毒滴度:
3. 确定新制备病毒原液及其靶细胞的最佳感染复数(MOI)
- 使用原代外周血单个核细胞(PBMCs)和两倍梯度稀释的γ-逆转录病毒制备物,按照转导实验方案(第4–9节)进行操作。
- 通过流式细胞术评估目的基因的表达水平(步骤9.5)。
- 选择一种病毒浓度,以实现最大转导效率,同时不导致细胞活力下降。
4. 通过包被抗CD3抗体准备T细胞激活用培养板
- 用磷酸盐缓冲液(PBS)将抗食蟹猴 CD3 抗体(FN18)稀释至 10 µg/mL,配制工作液。
- 每孔加入 2 mL,分装至 6 孔板中。37 °C 孵育 2 小时;或可选择在 4 °C 过夜孵育。
- 吸尽 PBS 及未结合的抗体,用 2 mL PBS 洗涤各孔两次,随后立即用于接种 PBMCs。
5. 使用包被平板的抗CD3抗体和可溶性抗CD28抗体刺激恒河猴外周血单个核细胞
- 在37 °C水浴中轻柔振荡,解冻原代恒河猴PBMCs,直至仅剩少量冰晶。
- 在通风橱中,用移液器轻柔地将细胞转移至一个锥形管中。用1 mL基础培养基冲洗冻存管,并将冲洗液缓慢加入细胞中。随后,缓慢向细胞中再加入9 mL温热的基础培养基。
注意:此步骤可进行放大操作,但每次解冻的冻存管不得超过4支。 - 以 600 x g 离心 g 在22 °C下离心5分钟以沉淀细胞。吸除上清液,然后将沉淀物重悬于少量培养基中。选择适当的体积,使细胞浓度超过2 x 10⁶ 此时细胞浓度应为 2 x 10⁶ 个细胞/mL,因为最终浓度需达到 2 x 10⁶ 个细胞/mL6 cells/mL
- 用台盼蓝染色细胞并计数,以确定活细胞数量。
注意:可使用标准血细胞计数板或自动细胞计数仪完成此步骤。我们采用自动细胞计数仪,该仪器可显示细胞活力及活细胞数量。- 使用计数器时,取10 µL细胞悬液加入10 µL台盼蓝溶液中,混匀后将混合液加载至计数板腔室,插入计数器。按下 "捕获" 按钮用于计数细胞。
- 通过将细胞浓度乘以体积来计算细胞总数,然后将细胞稀释至 2 x 10⁶ 细胞/mL 的培养基中。铺板前,加入抗-CD28 至终浓度为 5 µg/mL,以提供 T 细胞活化所必需的共刺激信号。
- 将细胞用移液器加入抗CD3包被的培养板中。加入3–6 x 10⁶ 每孔细胞数(理想目标为 4 x 10⁶ 每孔加入2 mL培养基中的细胞,于37 °C、5% CO₂条件下培养2天2.
6. 准备纤维连接蛋白包被的培养板
注意:PBMC 和 T 细胞表达整合素受体 VLA-4 或 VLA-5,是纤连蛋白介导转导的良好靶标。
- 包被培养板之前,先将纤连蛋白试剂用无菌 PBS 按 1:100 稀释,制备纤连蛋白工作液。
- 将 2 mL 无菌纤连蛋白溶液加入 6 孔板的每个孔中,在室温下轻轻摇动孵育 2 小时。
注意:此步骤应使用未经处理的细胞培养级组织培养板或培养皿。 - 用移液器吸除纤连蛋白溶液,然后每孔加入 1 mL 无菌的含 2% 牛血清白蛋白(BSA,V 组分)的 PBS 溶液进行封闭,在室温下摇动孵育 30 分钟。
- 吸除 BSA 溶液,用 2 mL PBS 洗板一次。吸除 PBS 后,可将包被好的纤连蛋白板用封口膜密封,于 4 °C 保存最多一周。
注意:我们通常在转导前一天准备包被板。
7. 活化恒河猴外周血单个核细胞的转导
警告:操作病毒载体或恒河猴外周血单个核细胞(PBMCs)时,必须采取适当的安全防护措施,例如穿戴实验服和双层手套。所有病毒和细胞的操作必须在生物安全柜中进行。所有移液管应使用含10%次氯酸钠的溶液消毒30分钟。所有液体感染性废物应使用终浓度为10%的次氯酸钠进行消毒。离心操作必须使用带有密封装置的二级容器,以防止微生物气溶胶释放。
- 将γ逆转录病毒转导载体连接至纤维连接蛋白包被的孔中。
- 通过在2000 × g 条件下运行约30分钟,将离心机预热至32 °C。
- 将无血清培养基和生长培养基在37 °C水浴中预热。
- 在冰上或轻轻将病毒小瓶在37 °C水浴中涡旋,直至仅剩少量冰晶。为避免病毒制剂降解,请勿让内容物升温至完全融化。
- 将逆转录病毒用无血清培养基稀释至预先确定的最佳感染复数(MOI)。
注:使用我们的γ逆转录病毒和恒河猴外周血单个核细胞(PBMC),我们发现MOI为0.5时效果最佳。- 稀释示例:若需用病毒包被4个孔,并每孔加入1.5 × 10⁶ 个细胞,则所需病毒量为 (4)(1.5 × 10⁶)(0.5) = 3 × 10⁶ TU。若病毒滴度为1.1 TU/mL,则使用2.7 mL病毒加入5.3 mL培养基,总体积为8 mL。
- 向每个纤维连接蛋白包被的孔中加入2 mL稀释后的逆转录病毒。
- 对于阴性对照的模拟转导细胞,在纤维连接蛋白包被的孔中仅加入培养基。
- 将培养板放入预热至32 °C的离心机中,置于带生物安全盖的微孔板架内,在2000 × g 条件下离心2小时。
注:包被病毒的培养板可立即使用,或在4 °C避光保存过夜(含病毒)。 - 如需立即使用,吸除孔中的病毒液,每孔加入2 mL生长培养基。注意保持包被病毒的孔不干燥。
- 接种活化的PBMCs。
- 使用倒置显微镜观察细胞。细胞应呈现健康状态,即形态圆润、透亮并具有折光性,同时可见成簇聚集现象,表明细胞已被活化。
- 收集目标细胞并转移至50 mL锥形管中。用1 mL生长培养基冲洗孔壁一次,并将冲洗液加入锥形管中。使用自动细胞计数仪计数活细胞数量,方法同步骤5.4。
注:活化后的细胞会成簇,这种聚集可能导致细胞计数不准确。 - 在32 °C条件下,以600 × g 离心5分钟使细胞沉淀。吸除上清培养基,将细胞重悬于生长培养基中,调整浓度为1.5 × 10⁶ 个细胞/mL。
- 向每个已包被病毒的孔(按步骤7.1制备)中加入1 mL细胞悬液,使每孔总细胞数为1.5 × 10⁶ 个/3 mL。注意每个孔中已含有2 mL生长培养基。对模拟转导细胞进行相同操作,但将其接种至未加病毒的纤维连接蛋白包被孔中。
- 将培养板在32 °C条件下,以1000 × g 离心10分钟。
- 将培养板置于37 °C、5% CO2 条件下孵育48小时。
8. 转导细胞的扩增
- 使用5 mL移液管将孔中的内容物上下吹打,以重悬细胞,然后转移至50 mL锥形管中。
- 向每个孔中加入1 mL培养基,并用无菌移液管上下吹打,以去除贴壁细胞。
- 使用自动细胞计数仪对细胞进行计数,以确定总细胞数和细胞活力,方法同步骤5.4。
- 如需要,可取1 × 10⁶个细胞用于流式细胞术,以检测基因表达和表型。推荐的抗体和设门策略详见步骤9.5.1及材料表。
- 在25 °C下以600 × g离心10分钟。
- 吸除上清液,并将细胞重悬于扩增培养基中,调整细胞浓度至1 × 10⁶个细胞/mL。每孔加入5 mL细胞悬液接种至6孔板的透气孔中,然后小心地在每孔中再覆盖25 mL扩增培养基。
注意:我们先以较小体积加入细胞,再覆盖剩余培养基,以确保细胞保持在孔底。 - 将细胞置于37 °C、5% CO2培养箱中静置培养4天。
9. 扩增细胞的收集及转导细胞群体表型的评估
- 从透气性培养孔中收集细胞时,移除并弃去20 mL培养基,注意避免扰动细胞。
注意:细胞仅扩增4天,此时即收集细胞。然而,如果需要延长培养时间,则在不干扰细胞的情况下移除20 mL培养基,并加入20 mL新鲜扩增培养基。 - 用移液器将剩余的培养基上下吹打,以悬浮细胞。如果细胞生长良好,培养基应变得非常浑浊。
- 使用无菌移液管,每孔加入3 mL培养基冲洗,以收集残留细胞。
- 使用自动细胞计数器或血细胞计数板对细胞进行计数,以检测细胞活力和细胞数量。
- 通过流式细胞术检测转导基因的表达及细胞表型。
- 在此示例中,使用针对 CD4(M-T477)的抗体确定恒河猴外周血单个核细胞(PBMC)表型,该克隆可识别内源性 rhCD4 和 rhCD4-MBL CAR;使用针对 CD3(SP34-2)和 CD8(RPA-T8)的抗体分别标记总 T 细胞和 CD8+ T 细胞;使用针对死亡受体 CD95(DX2)和共刺激分子 CD28(CD28.2)的抗体以确定细胞的记忆表型;以及使用针对 CXCR5(MU5UBEE)和 MBL(3E7)的抗体检测转导细胞上的 CXCR5 和 CD4-MBL CAR。
- 使用可固定的活细胞染料评估细胞活力。
- 准备细胞用于流式细胞术。
- 为所有试管配制一份抗体混合液。用 PBS 补充至总体积。
- 将细胞加入流式管中。加入 0.5–1 x 10⁶ 每管细胞。应包括阴性对照,如未染色细胞以及染色的假转导细胞。
- 向细胞中加入 2 mL PBS,于 400 x g 室温(RT)孵育5分钟,然后倾去上清。
- 向各管中加入 100 µL 抗体混合液,在室温下孵育 30 分钟。
- 加入 2 mL PBS,以 400 x g 室温下静置5分钟,然后倾倒除去上清液。
- 加入300 µL 1%多聚甲醛,孵育15分钟。
- 400 x g 离心 g 室温下静置5分钟,倾去上清液。加入300 µL PBS,混匀。
- 在流式细胞仪上,每份样本采集 150,000 个事件。
- 使用流式分析软件分析数据。
注意:该门控策略此前已发表20.- 为鉴定转导细胞,对淋巴细胞、单细胞、活细胞、CD3+ 及 MBL+CXCR5+ 细胞设门。
- 用于鉴定中央记忆细胞群,对淋巴细胞门控,选择单细胞、活细胞、CD3+、CD8+、CD28+、CD95+细胞。
- 根据需要使用细胞。细胞可用于 体外 功能检测,例如Transwell迁移实验9 或体外细胞杀伤实验5,9细胞可用于注入动物体内。或者,将剩余细胞用含10%二甲基亚砜(DMSO)的90%胎牛血清(FBS)冷冻保存,以备后续使用或分析
注意:虽然目前尚未确定向恒河猴输注过继转移细胞的靶剂量,但已发表的非人灵长类动物过继转移研究中使用的剂量为 0.6 至 1.2 x 10⁷ 细胞/千克21,1至5×108 细胞/千克22 以及 1.4 至 8 × 10⁸ 细胞/千克10以此范围为指导,采用该9天方案可制备足量用于输注的细胞。
结果
细胞扩增
本研究所呈现的结果与我们先前发表的工作9,20相似。采用本方案,预计在第5天至第9天之间细胞至少可扩增8倍(中位数为11.1倍,范围为8.7–13倍)。气体可渗透培养板的孔中初始接种密度为5 × 10⁶个细胞,经过4天培养后,每孔细胞中位密度达到55.6 × 10⁶个(范围为43.5–64.8 × 10⁶)(图1A)。通过台盼蓝染色排除法进行细胞计数显示,细胞在整个实验过程中保持较高的活力(第9天中位数为85.8%,范围为83–95%)(图1B)。我们发现不同动物来源的细胞扩增能力存在个体差异;然而,若在第1天起始细胞数量为50–100 × 106个,则本方案足以制备出用于恒河猴输注的细胞剂量,即1–2 × 10⁸个细胞/kg。
通过流式细胞术监测转导基因的共表达情况(图2A)。在该扩增方案的第5天至第9天期间,转导细胞表面CAR和CXCR5的表达相对稳定。在第5天,中位有42.8%(范围为36.5–46.9%)的细胞同时转导了CD4-MBL CAR和CXCR5;而在第9天,经过单次转导后,中位表达率为47.6%(范围为44.5–64.5%)(图2B)。尽管某些方案建议进行第二轮转导,但在本方案结束时,我们并未观察到在总转导细胞数量方面有明显提升(数据未显示)。
细胞表型
通过流式细胞术分析转导后的细胞,以监测其记忆表型。在转导和扩增之前,可识别出初始T细胞、中央记忆T细胞和效应记忆T细胞亚群(数据未显示);但随着培养进行,初始T细胞亚群逐渐消失。到第5天(图3A)和第9天(图3B),细胞主要表现为中央记忆T细胞表型,其特征为CD95+ CD28+的表达。采用这种快速转导与扩增方案所获得的细胞以中央记忆T细胞为主,因此在输注至实验动物体内后更有可能发生增殖并长期存续。
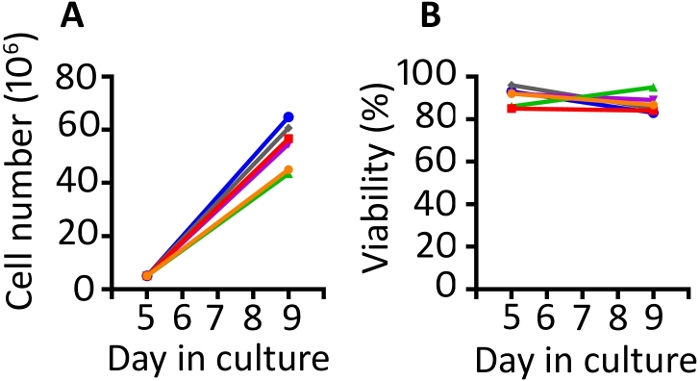
图1:转导与扩增方案可产生大量且高存活率的转导细胞。(A)在透气性培养容器中,来自6只不同动物的转导细胞在第5至第9天的扩增情况;(B)来自相同6只动物的转导外周血单个核细胞(PBMC)的存活率。采用自动细胞计数仪结合台盼蓝排斥法检测细胞数量和存活率。请点击此处查看该图的高清版本。
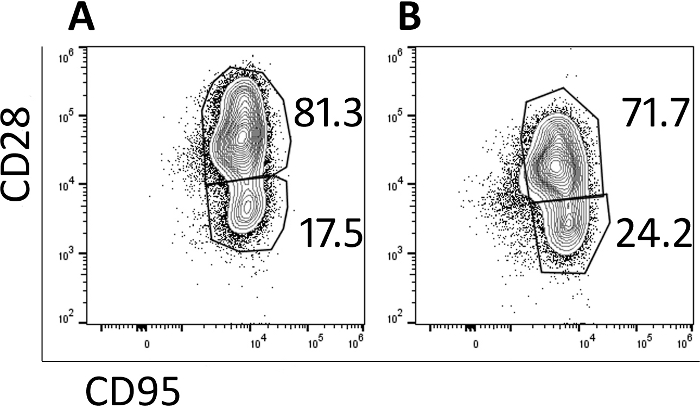
图 2:转导方案产生的细胞能够维持两个转导基因的共表达。(A)食蟹猴外周血单个核细胞(PBMC)在转导与扩增方案第9天的代表性流式图,显示CD4-MBL CAR和CXCR5均表达。(B)通过流式细胞术检测6只不同动物来源的转导后食蟹猴PBMC在培养第5天和第9天时CD4-MBL CAR与CXCR5的表达情况。设门依据为活的、CD3+细胞。转导细胞定义为MBL+ CXCR5+细胞。请点击此处查看该图的放大版本。
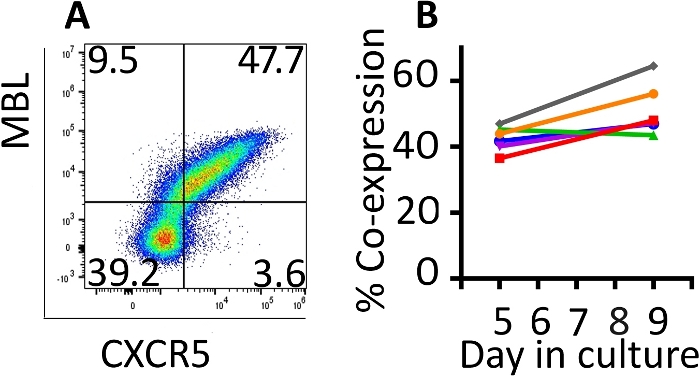
图3:在9天培养方案中产生的大多数细胞具有中央记忆表型。 第5天(A)和第9天(B)经CAR/CXCR5转导的恒河猴外周血单个核细胞(PBMC)的代表性流式细胞术图。设门依据为活的、CD3+、CD8+细胞。中央记忆细胞定义为CD28+ CD95+,效应记忆细胞定义为CD28- CD95+。请点击此处查看该图的放大版本。
讨论
本方案概述了一种T细胞免疫疗法的制备策略,该策略利用γ-逆转录病毒载体转导恒河猴外周血单个核细胞(PBMC),从而获得表达抗病毒嵌合抗原受体(CAR)以及滤泡归巢受体CXCR5的T细胞群体。经过总共8天的体外培养,可生成具有活性且功能完整的CAR T细胞,其数量处于已发表文献中用于非人灵长类动物临床前疗效测试输注的范围内10,21,22。
转导实验的成功依赖于健康且已被激活的外周血单个核细胞(PBMCs)以及高质量的γ-逆转录病毒制备物。为了实现有效的激活和转导,采集后的PBMCs在冻存和运输过程中必须得到妥善处理。理想情况下,若细胞在异地采集,应使用液氮运输并迅速转入长期液氮储存。PBMCs必须处于有丝分裂活性状态,才能被γ-逆转录病毒成功转导。在使用抗CD3/抗CD28抗体刺激后,应通过显微镜观察细胞是否形成聚集体。若细胞未能充分激活,将导致转导效率低下。同时,也需监测刺激后细胞的活力。刺激后细胞活力差通常会导致转导效果不佳。无论病毒制备是在实验室内部完成还是外包生产,均应将病毒分装成单次使用剂量,并于-80 °C保存,以避免反复冻融对病毒造成损伤并降低转导效率。病毒必须进行滴度测定,以确保每次实验使用一致的病毒量。使用病毒进行转导时,应快速解冻并置于冰上保存,直至使用。启动子、增强子及包膜蛋白的选择均可能影响转导效率以及目的基因在靶细胞中的表达水平。因此,感染复数(MOI)需通过实验经验性确定。此外,使用支持T细胞生长的培养基以及具有透气孔的培养板进行扩增,可显著促进转导细胞的扩增。然而,不同个体间细胞扩增速率存在差异。我们建议先开展预实验,以评估特定细胞样本的转导与扩增能力。小规模与大规模转导实验中的细胞扩增水平具有一致性。
通过使用本方案,我们已制备出多达 2.5 × 10⁹ 个细胞用于注入实验动物。尽管目前我们发现无需对该方案进行放大,但使用6孔板仍是大规模细胞制备的限制因素,若需获得更大量的细胞,该方案将需要进行修改。可能的修改方案包括在纤维连接蛋白包被的培养袋中进行转导,以增加转导细胞的数量,并在扩增阶段使用更大的透气性培养容器。尽管我们尚未进行这些调整,但这些修改所涉及的均为市售产品,因而是对现有方案切实可行的改进。
利用该方法,我们已从未感染动物、SIV感染动物以及接受抗逆转录病毒治疗(ART)的SIV感染动物中分离的外周血单个核细胞(PBMC)成功制备了转导细胞。然而,我们注意到,在接受ART治疗的动物来源细胞中,转导效率有所下降20。这种下降可能是由于药物抑制了逆转录酶和/或整合酶的活性所致。对来自ART治疗动物的细胞进行转导时,需对该方案进行改进,例如在采集PBMC前数天停止ART治疗,以降低细胞内ART药物浓度,或使用不受当前常用ART药物影响的替代载体。
用于免疫治疗的细胞必须具有最低限度的分化表型,以确保输注后能够长期存续12。尽管许多细胞过继转移方案需要较长的培养时间,但缩短体外培养时间已被证实可减少细胞分化,并改善CAR T细胞的功能13。本转导与扩增方案的时间相对较短,可在获得足够数量用于评估其免疫治疗潜力的细胞的同时,维持所需的中央记忆表型20。
该T细胞免疫治疗产品的生产策略目标是制备能够识别SIV感染细胞、迁移至B细胞滤泡内病毒复制位点,并在动物体内长期存续从而实现无需抗逆转录病毒药物的持久功能性治愈的T细胞。为将其转化应用于人类免疫治疗产品,本方案可通过使用人源特异性抗体和细胞因子,并结合GMP标准进行调整,最终实现对HIV的功能性治愈。
披露
Pamela Skinner 博士是 MarPam Pharma 的联合创始人兼首席科学官。
致谢
本研究获得了美国国立卫生研究院(NIH)基金 5R01AI096966-06S1(PS、EC 和 EB)、1UM1AI26617(PS、EC 和 EB)、P51OD011106/P51RR000167(ER)、明尼苏达州 REACH 基金 5U01HL127479-03(PS)、1R01A143380-01(PS 和 EB)、1UM14126617(PS 和 EC)的支持,以及美国国家过敏与传染病研究所(NIAID)所内研究部和 NIH 所内艾滋病靶向抗病毒计划提供的资金。本研究中使用的抗 CD3 和抗 CD28 抗体由 NIH 非人灵长类试剂资源中心(R24 OD010976,U24 AI126683)提供。本研究中使用的 IL-2 由美国国家癌症研究所(NCI)临床前试剂库提供。我们感谢在 CD4-MBL CAR/CXCR5 项目中的合作者:亚利桑那大学的 Elizabeth Connick 博士、NIH NIAID 的 Edward A Berger 博士、威斯康星国家灵长类研究中心的 Eva G Rakasz 博士、明尼苏达大学的 Geoff Hart 博士和 Preethi Haran 女士、哈佛医学院的 Leslie Kean 博士以及儿童研究研究所的 Catherine Bollard 博士。我们还感谢明尼苏达大学的 Scott McIvor 博士、Fred Hutchinson 癌症研究中心的 Christopher Peterson 博士、NIH 的 Matthew Trivett 博士、西雅图儿童医院的 Agne Taraseviciute 博士以及儿童研究研究所的 Conrad Russell Cruz 博士,他们在优化本实验方案过程中提供了非常有益的帮助。我们还衷心感谢明尼苏达大学的 Chi Phan 女士和 Jhomary Alegria-Berrocal 女士在γ逆转录病毒生产方面的贡献,以及威斯康星大学麦迪逊分校的 Kim Weisgrau 女士在恒河猴外周血单个核细胞(PBMC)分离工作中的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| γ-逆转录病毒制备 | |||
| 0.025% 胰蛋白酶,0.01% EDTA | Gibco | R-001-100 | |
| 293T 细胞 | ATCC | CRL-3216 | |
| 6 孔板(经处理) | CytoOne | CC7682-7506 | |
| DMEM | Gibco | 10569-010 | |
| 热灭活胎牛血清(FBS) | Hyclone | Sh30088.03 | |
| Lipofectamine | Invitrogen | 11668019 | 转染试剂 |
| Opti-Mem | Invitrogen | 31985070 | 低血清培养基 |
| pBS-CMV-gagpol | Addgene | 35614 | 由 Dr. Patrick Salmon 惠赠 |
| 含 CAR P2A CXCR5 的 pMSGV1 | GenScript 定制订单 | ||
| RD114 | 由 Dr. Ed Berger 惠赠 | ||
| T75 培养瓶 | CytoOne | CC7682-4875 | |
| VSV-G | pMD.G | 由 Dr. Scott McIvor 惠赠 | |
| T 细胞刺激 | |||
| 6 孔板(未经处理) | CytoOne | CC7672-7506 | |
| 抗 CD28 抗体 | NHP 试剂资源中心 | 克隆号:CD28.2 | |
| 抗猕猴 CD3 抗体 | NHP 试剂资源中心 | 克隆号:FN18 | |
| 磷酸盐缓冲液 | Gibco | 14190-144 | |
| 恒河猴外周血单个核细胞(PBMC)或 CD8 T 细胞 | WNPRC | 原代细胞 | |
| 用于纤维连接蛋白包被 | |||
| 6 孔板(未经处理) | CytoOne | CC7672-7506 | |
| BSA(第五组分) | HyClone | SH 30574.02 | |
| RetroNectin(1 mg/ml) | TaKaRa | T100A | |
| 用于 T 细胞扩增 | |||
| G-Rex 6 孔板 | Wilson Wolf | P/N 80240M | 带透气孔的培养板 |
| 培养基组分 | |||
| β-巯基乙醇 | Gibco | 21985-023 | |
| 热灭活胎牛血清(FBS) | Hyclone | Sh30088.03 | |
| IL-2 | NCI 前临床试剂库 | ||
| 青霉素/链霉素/谷氨酰胺 | Gibco | 10378-016 | |
| X-Vivo-15 培养基 | Lonza | 04-418Q | |
| 所用培养基的变体 | |||
| 基础培养基: | X-Vivo 15 培养基,含 10% 热灭活 FBS,1× 青霉素/链霉素/L-谷氨酰胺 | ||
| 扩增培养基: | 生长培养基 + 50 mM β-巯基乙醇 | ||
| 生长培养基: | 基础培养基 + 50 IU/ml IL-2 | 抗 CD28 抗体、IL-2 或 β-巯基乙醇应在使用当天加入完成培养基。 | |
| 细胞计数 | |||
| Countess 细胞计数板 | Invitrogen | AMQAF1000 | |
| Countess II FL 全自动细胞计数仪 | Invitrogen | T10282 | |
| 台盼蓝,0.4% 溶液 | Invitrogen | T10282 | |
| 流式细胞术 | |||
| Alexa Fluor 647 抗体标记试剂盒 | Invitrogen | A20186 | 用于 MBL 抗体偶联 |
| 抗 CD28-BV605 | BD Biosciences | 562976 | |
| 抗 CD3-AF700 | BD Biosciences | 557917 | |
| 抗 CD4-FITC | BD Biosciences | 556615 | |
| 抗 CD8-BV788 | BD Biosciences | 563824 | |
| 抗 CD95-PerCP Cy5.5 | BD Biosciences | 561655 | |
| 抗 CXCR5-PE | eBioscience | 12-1985-42 | |
| 抗 MBL 抗体 | Invitrogen | MA1-40145-S6 | |
| 流式分析软件 | FlowJo, LLC | FlowJo v10 | |
| 流式细胞仪 | Beckman | CytoFlex | |
| 活/死细胞近红外染料 | Invitrogen | L10119 | |
| 其他设备 | |||
| 用于防止气溶胶泄漏的 Aerosolve 容器 | Beckman | SX4750 | 安全设备 |
| Beckman Allegra 离心机 | Beckman | Sterilgard e3 | |
| 细胞培养箱 | Thermo Fisher | Everlast 247 | |
| II 级层流生物安全柜 | Baker | Heracell Vios 160i | |
| Extra-Safe 一次性实验服 | Fisher Scientific | 359232 | 个人防护装备 |
| 带生物认证盖的微孔板架 | Beckman | SX4750A | 安全设备 |
| 摇床平台 | Benchmark | C10228 | |
| 摆动吊篮转子 | Beckman | X13-R | |
| X-Gen 丁腈手套 | Genesee | 个人防护装备 |
参考文献
- Klebanoff, C. A., Rosenberg, S. A., Restifo, N. P. Prospects for gene-engineered T cell immunotherapy for solid cancers. Nature Medicine. 22 (1), 26-36 (2016).
- Lim, W. A., June, C. H. The Principles of Engineering Immune Cells to Treat Cancer. Cell. 168 (4), 724-740 (2017).
- Sadelain, M., Rivière, I., Riddell, S. Therapeutic T cell engineering. Nature. 545 (7655), 423-431 (2017).
- Kuhlmann, A., Peterson, C. W. Chimeric antigen receptor T-cell approaches to HIV cure. Current Opinion in HIV and AIDS. 13 (5), 446-453 (2018).
- Ghanem, M. H., Bolivar-Wagers, S., et al. Bispecific chimeric antigen receptors targeting the CD4 binding site and high-mannose Glycans of gp120 optimized for anti-human immunodeficiency virus potency and breadth with minimal immunogenicity. Cytotherapy. 20, 407-419 (2018).
- Folkvord, J. M., Armon, C., Connick, E. Lymphoid Follicles Are Sites of Heightened Human Immunodeficiency Virus Type 1 (HIV-1) Replication and Reduced Antiretroviral Effector Mechanisms. AIDS Research and Human Retroviruses. , (2005).
- Connick, E., Mattila, T., et al. CTL Fail to Accumulate at Sites of HIV-1 Replication in Lymphoid Tissue. The Journal of Immunology. 178 (11), 6975-6983 (2007).
- Connick, E., Folkvord, J. M., et al. Compartmentalization of Simian Immunodeficiency Virus Replication within Secondary Lymphoid Tissues of Rhesus Macaques Is Linked to Disease Stage and Inversely Related to Localization of Virus-Specific CTL. The Journal of Immunology. 193 (11), 5613-5625 (2014).
- Haran, K. P., Hajduczki, A., et al. Simian immunodeficiency virus (SIV)-specific chimeric antigen receptor-T cells engineered to target B cell follicles and suppress SIV replication. Frontiers in Immunology. 9 (MAR), 1-12 (2018).
- Ayala, V. I., Deleage, C., et al. CXCR5-Dependent Entry of CD8 T Cells into Rhesus Macaque B-Cell Follicles Achieved through T-Cell Engineering. Journal of Virology. 91 (11), e02507-e02516 (2017).
- Redeker, A., Arens, R. Improving adoptive T cell therapy: The particular role of T cell costimulation, cytokines, and post-transfer vaccination. Frontiers in Immunology. 7 (SEP), 1-17 (2016).
- Klebanoff, C. A., Gattinoni, L., Restifo, N. P. Sorting Through Subsets. Journal of Immunotherapy. 35 (9), 651-660 (2012).
- Ghassemi, S., Nunez-Cruz, S., et al. Reducing Ex Vivo Culture Improves the Antileukemic Activity of Chimeric Antigen Receptor (CAR) T Cells. Cancer Immunology Research. 6 (9), 1100-1109 (2018).
- Minang, J. T., Trivett, M. T., Bolton, D. L., Trubey, C. M., Estes, J. D., Li, Y., et al. Efficacy of Adoptively Transferred Central and Effector Memory-Derived Autologous Simian Immunodeficiency Virus-Specific CD8+ T Cell Clones in Rhesus Macaques during Acute Infection. The Journal of Immunology. 184 (1), 315-326 (2010).
- Bolton, D. L., Minang, J. T., et al. Trafficking, persistence, and activation state of adoptively transferred allogeneic and autologous Simian Immunodeficiency Virus-specific CD8(+) T cell clones during acute and chronic infection of rhesus macaques. Journal of immunology (Baltimore, Md. : 1950). 184 (1), 303-314 (2010).
- Patel, S., Jones, R. B., Nixon, D. F., Bollard, C. M. T-cell therapies for HIV : Preclinical successes and current clinical strategies. Cytotherapy. 18 (8), 931-942 (2019).
- Chambers, C. A., Allison, J. P. Costimulatory regulation of T cell function. Current Opinion in Cell Biology. 11 (2), 203-210 (1999).
- Schwartz, R. H. A cell culture model for T lymphocyte clonal anergy. Science. 248 (4961), 1349-1356 (1990).
- Bajgain, P., Mucharla, R., et al. Optimizing the production of suspension cells using the G-Rex M series. Molecular Therapy - Methods and Clinical Development. 1, 14015(2014).
- Pampusch, M. S., Haran, K. P., et al. Rapid transduction and expansion of transduced T cells with maintenance of central memory populations. Molecular Therapy - Methods and Clinical Development. 16, 1-10 (2019).
- Taraseviciute, A., Tkachev, V., et al. Chimeric antigen receptor T cell-mediated neurotoxicity in nonhuman primates. Cancer Discovery. 8 (6), 750-763 (2018).
- Berger, C., Sommermeyer, D., et al. Safety of targeting ROR1 in primates with chimeric antigen receptor-modified T cells. Cancer Immunology Research. 3 (2), 206-216 (2015).
重印与许可
