本文介绍了一种在氮化硅膜上进行细胞培养,并在利用同步辐射低温X射线纳米探针进行X射线荧光成像前进行 plunge-freezing(骤冷)的实验方案。若仅需室温纳米分析,冷冻样品可进一步进行冷冻干燥。这些步骤对于获取细胞内元素组成信息至关重要。
本文内容
摘要
摘要
关于金属离子在亚细胞水平的分布,目前所知甚少。然而,这些化学元素具有重要的调控功能,其稳态失衡与多种疾病相关。先进的同步辐射X射线荧光纳米探针技术具备足够的灵敏度和空间分辨率,能够揭示整个细胞内细胞器水平上金属元素的二维(2D)和三维(3D)分布及其浓度。这为研究金属在细胞生理与病理过程中的作用开辟了全新的、令人振奋的科学领域。细胞样品制备是其中关键且往往复杂的步骤,尤其对于基础分析而言更是如此。尽管X射线荧光技术现已广泛应用,并已采用多种样品制备方法,但针对如何最佳保留细胞内元素含量的研究仍极为有限,迄今为止尚无关于贴壁细胞用于X射线荧光纳米探针分析的冷冻制备步骤的详细分步方案发布。本文描述了一种分步细胞制备方案,通过快速冷冻固定,实现在具备低温环境与转移条件时,对处于冷冻水合状态的细胞进行同步辐射X射线荧光纳米分析。若需在室温下进行纳米分析,则额外提供了一种对冷冻固定的贴壁细胞样品进行冷冻干燥的处理步骤。所提出的这些方案已在先前的研究中成功应用,最近一次用于研究有机金属化合物在乳腺癌细胞内的二维和三维细胞内分布。
引言
新设计的同步辐射X射线荧光(SR-XRF)纳米探针能够以完全定量的方式可视化元素在亚细胞结构中的分布。例如,这种分析能力可用于研究纳米颗粒1或基于锇的金属有机分子复合物等有机金属分子的摄取情况2,从而深入了解具有强效抗癌特性的金属基分子在细胞内的摄取过程。作为一种多元素分析技术,结合纳米探针的SR-XRF3可同时对大多数生物学重要元素进行定量和定位,包括磷、硫、钾、钙、铁、铜和锌。实际上,利用硬X射线可实现较大的穿透深度,从而以无标记的方式对完整冷冻水合细胞进行成像。此外,X射线荧光能够高效激发,因为它可覆盖大多数目标元素的K边。采用低温方法可减少辐射损伤,并优化细胞结构及元素分布的保存。
目前可用于研究细胞中金属元素的大多数空间分辨分析技术均为表面分析技术,需要制备非常薄且平整的细胞切片。这些技术主要包括配备能量色散X射线分析的扫描透射电子显微镜(STEM–EDX)、能量过滤透射电子显微镜(EF-TEM)以及纳米二次离子质谱(nanoSIMS)。其中,nanoSIMS 无法用于分析冷冻含水状态的细胞切片,而冷冻电子显微技术虽可在无与伦比的空间分辨率下进行低温分析,但其元素检测灵敏度较低。粒子诱导X射线发射(PIXE)技术则实现了对完整细胞内元素分布的研究,具有全定量分析的优势,并在微米尺度甚至亚微米分辨率下具备良好的元素灵敏度。4,但存在辐射损伤问题,且缺乏低温能力来研究冷冻水合状态的细胞。上述所有分析技术在细胞元素成像方面相互补充,但对于所有技术而言,样品制备过程都是至关重要的步骤。该过程应尽可能简化,以最大限度减少可能的污染以及元素的再分布或泄漏,从而获得有意义的结果。正如电子显微镜中所展示的,采用低温工作流程,包括细胞的低温固定以及向低温扫描载台的低温转移,可实现接近天然状态的亚细胞水平上的最佳元素保存5,6,7,8,9,10这一理解已成功应用于同步辐射冷冻软X射线显微镜(如全视野显微镜和扫描显微镜)的开发中,用于对完整冷冻水合细胞进行二维或三维超微结构成像。已开发出多种低温工作流程11 美国劳伦斯伯克利国家实验室先进光源2.1光束线(XM-2)的软X射线显微镜12,德国电子储存环BESSY II的U41-XM光束线13中国台湾,ALBA光源(西班牙)MISTRAL光束线14,以及 Diamond 光源的 B24 光束线15,以及其他方法。最近有研究显示,类似的流程是利用X射线微探针对细胞内元素进行分析时最可靠的样品制备与保存方法16,17.
尽管X射线纳米探针技术,特别是低温同步辐射X射线荧光(SR-XRF)技术,已开始广泛应用于细胞元素分析,但迄今为止,尚未向科研界发布过系统的操作流程。本文提供了一种详细的实验方案,用于制备在氮化硅膜上以单层培养并经冷冻固定的贴壁细胞,以便在低温条件下进行分析。此外,还提供了一个冻干步骤,适用于在室温下进行X射线分析的情况。虽然该方案已成功应用于人乳腺癌细胞MD-MB-2312,且冻干步骤已在小鼠神经元等多种细胞中得到验证18,20,21,但该方法可轻松推广至多种人类或动物细胞类型。
方案
实验程序已获得法国原子能委员会生命科学部动物护理委员会(CETEA,A14-006)的批准。实验严格遵守法国法律法规以及欧洲共同体理事会1986年11月24日指令(86/609/EEC)的规定。
1. 氮化硅(Si3N4)薄膜支撑制备
注意:由于膜非常脆弱且精细,必须小心操作其支撑结构(200 µm 厚的硅框架),理想情况下应使用细碳镊子或Dumont #5直型自闭合精细镊子。本方案所用的氮化硅膜带有5 mm × 5 mm的框架,膜尺寸为1.5 mm × 1.5 mm。膜的制备应在开始实验(即细胞接种)前约12小时进行。可在当天工作结束时完成制备,并在II级层流罩下过夜干燥,以便次日早晨即可使用。200 µm的硅框架厚度是大多数销售氮化硅窗口的公司的标准规格。若本方案中使用的产品不可获得,也可使用膜尺寸在0.5−1.5 mm范围内、标准框架尺寸为5 mm × 5 mm的膜。当使用X射线断层扫描时,优先选择较大的膜尺寸。此外,也可使用透射电镜(TEM)载网型氮化硅窗口,其膜尺寸为0.5 mm,厚度为50 nm。
- 打开含有 Si3N4 膜支撑的胶囊(图1)。轻轻挤压胶囊,使支撑物略微松动。
- 使用细镊子夹住硅框架的一个角,注意不要触碰到中心的 Si3N4 膜。厚度为 200 或 500 nm 的膜容易损坏。
- 用细镊子将 Si3N4 膜支撑轻轻放入无菌玻璃培养皿中,使氮化硅窗口的平面朝上(即空腔朝向培养皿底部)。
- 取下培养皿盖,在超净工作台内将膜置于紫外光下照射 25−30 分钟。
注意:UVC 光(254 nm)强度通常设定为 200 µW/cm2。 - 在膜上加入 10 µL 多聚-L-赖氨酸,液滴应完全覆盖 Si3N4 膜,并可略微扩展至硅框架上。将样品置于标准组织培养孵育箱中,37 °C、相对湿度 100%、95% 空气和 5% CO2 条件下孵育 25 分钟。
注意:本实验中使用多聚-L-赖氨酸涂层处理 MDA-MB-231 乳腺癌细胞。根据不同的细胞系类型,可选用不同的涂层材料,此步骤应相应优化。 - 在无菌的 48 孔板中,向不同孔内加入 200−250 µL 经 0.22 µm 无菌滤膜过滤的超纯痕量水。通常每个孔可用于清洗 2−3 张膜。使用精细镊子夹住膜支撑的硅框架一角,依次将其垂直浸入三个连续的水孔中,每孔 10 秒,进行轻柔清洗。
注意:膜支撑从孵育箱取出后可在室温下操作,环境温度和湿度由 II 级超净工作台控制。 - 将膜支撑垂直放入无菌 96 孔板的空孔中,盖上盖子,并在 II 级超净工作台中过夜干燥。
2. 细胞接种
- 在无菌的4孔板中,将膜的平整面朝上放置.
- MDA-MB-231 细胞在含酚红/Glutamax I 的 DMEM 培养基中,添加 10% 胎牛血清和 1% 青霉素-链霉素,于 37 °C、5% CO₂ 条件下以单层培养方式维持培养。2 空气加湿培养箱
- 当细胞达到60−70%融合度时,移除培养皿或培养瓶中的培养基。
- 用不含 Ca 的 10 ml 磷酸盐缓冲液(Dulbecco's phosphate buffered saline)洗涤 1 次2+ 或 Mg2+.
- 向每个T75培养瓶中加入3 mL 0.05%胰蛋白酶/EDTA溶液,确保胰蛋白酶溶液完全覆盖整个单层细胞。
- 在37 °C孵育3−5分钟,直至细胞开始脱落。注意避免胰蛋白酶消化过度,并防止细胞过早脱落。
- 加入8 ml DMEM,该DMEM中添加有10%胎牛血清和1%青霉素-链霉素,或使用完全培养基,通过移液收集细胞。培养基中的血清将中和胰蛋白酶。
- 250 x g 离心 g 室温下静置3分钟。吸除上清液。
- 向含有细胞沉淀的15 ml离心管中加入8 ml新鲜完全培养基,用移液器将细胞上下吹打,直至细胞分散成单细胞悬液。
- 使用血细胞计数板对细胞进行计数,并稀释至浓度为 5 x 10⁶ 完全培养基(含酚红的DMEM,添加1%的200 mM L-丙氨酰-L-谷氨酰胺二肽/0.85% NaCl溶液、10%胎牛血清和1%青霉素-链霉素)中每毫升的细胞数。
- 取10 µL MDA-MB-231细胞悬液,滴加至膜上。MDA-MB-231细胞的浓度为50,000个细胞/10 µL。液滴应覆盖Si3N4 膜孔和硅框架上可能会有少量液体扩散。注意不要触碰硅片3N4 用微量移液器的尖端接触膜。
注意:根据细胞系类型以及实验或检测方法的不同,细胞密度可能有所差异,应相应进行优化测试。此处建议用于接种Si3N4 膜被发现最适合实验条件,并进一步用于MDA-MB-231细胞的同步辐射X射线荧光纳米分析2. - 对于海马神经元(HN),从胚胎第18.5天的小鼠中取出海马脑组织,并在含0.25%胰蛋白酶的Hepes-HBSS(5.3 mM KCl,0.44 mM KH)中进行消化2PO4,137.9 mM NaCl,0.34 mM NaH2PO4,5.56 mM葡萄糖)在37 °C下孵育15分钟18,19.
- 使用带有P1000吸头和P200吸头的P1000移液器,通过反复吸取和释放锥形管中的内容物进行机械解离。此步骤中需注意避免在培养基中产生气泡,因为气泡对神经元具有毒性。
- 等待几分钟,直至团块沉降至管底。
- 将含有分散细胞的上清液转移至无菌的Eppendorf管中。保留约25 µl含有细胞团的培养基。
- 使用血细胞计数板对解离的细胞进行计数。将分离的HN神经元以7 x 10的浓度接种4 细胞 cm-2 在聚-L-赖氨酸(1 mg/mL 聚-L-赖氨酸)包被的氮化硅膜上。
- 仅针对含有 HN 的膜,将神经元接种于添加了 10% 胎牛血清的 DMEM 培养基中进行培养。HN 接种于 DMEM 后 1 小时,更换为 Neurobasal 接种培养基(含 200 mM L-丙氨酰-L-谷氨酰二肽的 0.85% NaCl 溶液,并添加 B27 补充剂,按 1/50 比例稀释于 Neurobasal 培养基中)18,19.
- 对于 MDA-MB-231 细胞,将膜支持物置于 37 °C 培养箱中孵育(100% 相对湿度,95% 空气和 5% CO₂)2孵育25分钟,以使细胞沉降并开始贴附于基质。具体时间可根据所用细胞系进行调整。
- 在每个 MDA-MB-231 细胞孔中加入 1 mL 所需的完全培养基(含酚红的 DMEM/添加 10% 胎牛血清、1% 青霉素和链霉素,并含 1% 的 200 mM L-丙氨酰-L-谷氨酰二肽的 0.85% NaCl 溶液),将移液器枪头紧贴塑料孔壁,缓慢释放培养基,使其逐渐覆盖膜表面。
- 将膜垂直紧贴4孔板壁,以去除硅胶孔腔中困住的任何气泡3N4 膜(图2)。为此,使用精细镊子,轻轻推动气泡,使其沿硅片表面平行移动3N4 背侧框架,以避免触碰和损坏膜。
- 将膜重新水平放置于孔底部,根据所用细胞系的生长速率,将4孔板在培养箱中孵育所需时间。MDA-MB-231细胞孵育过夜。
3. 处理或更换培养基
- 从4孔板中移除培养基。
- 用1 mL 37 °C的PBS溶液冲洗一次,弃去PBS,然后使用1 mL移液枪头加入1 mL预热的完全新鲜培养基,根据实验设计加入或不加入(对照组)所需处理试剂,将液体沿孔板壁极缓慢地释放。Si3N4膜应缓慢浸入液体中,避免任何扰动,以防膜发生移动或翘起。
4. 通过浸入式冷冻对细胞样本进行冷冻固定
注意:在完成所需的孵育时间后,无论是否进行处理,都必须小心冲洗细胞并进行冷冻固定。在开始冲洗并吸干细胞样品以进行浸入式冷冻前约30分钟,应首先设置并冷却自动浸入式冷冻仪。操作冷冻剂时,必须佩戴适当的低温手套、护目镜、封闭式鞋子,并穿着实验服。液氮必须使用专用杜瓦瓶运输,操作区域应具备充分通风,并配备氧气监测仪。理想情况下,环境湿度应保持在20−30%的低水平,以减少材料、杜瓦瓶和冷冻剂上的结冰污染,因为冰污染会严重影响样品的玻璃化效果(即形成非晶态冰层)。通常情况下,根据研究人员的经验水平,单次操作可使用同一个二次冷冻剂液态乙烷杯制备多达10−12个样品。每次操作结束后,自动浸入式冷冻仪需进行1小时的自动烘烤程序。理想情况下,所有样品应采用相同的孵育条件进行处理;但也可先处理对照组样品,再处理特定处理条件的样品。
注意:以下步骤适用于 MDA-MB-231 和 HN 细胞的冷冻固定。
- 设置冷冻载网装置,用于细胞的快速冷冻固定。
- 打开自动冷冻仪。
- 从控制台和参数设置菜单中直接输入参数(例如温度、湿度百分比、若使用自动印迹则包括印迹时间,以及将样品提升至冷冻剂表面的位置,以促进转移至低温容器)。在本实验中,湿度 chamber 的参数设置为 37 °C 和 80% 湿度。
注意:本方案中,快速且谨慎的手动去污操作可获得更优的玻璃化冷冻效果,并适用于X射线成像。因此,该方案未使用自动去污程序。 - 将加湿室连接好,为保持湿度,首先用注射器加入60 mL双蒸水,然后按照自动冷冻仪控制面板的提示再加入20 mL。
注意:避免使用超纯水,因为它可能损坏汽化器系统。关闭阀门,并将管路保留在加湿器背面的连接处。 - 将黑色乙烷杯安装到支架中,并用塑料盖盖好。
- 向冷室的杜瓦瓶中加入液氮2,使其达到工作区域内网格的水平位置。
- 将专用的冷冻盒放入电镜-通用操作区(EM-GP)内指定位置的转移容器中,靠近液乙烷杯架,用于存放冷冻固定后的膜样品。
注意:专用冷冻盒是位于格勒诺布尔的欧洲同步辐射装置纳米探针光束线ID16A的自主研发产品。规格图纸可应要求提供。图3)。可将四个样品放入一个50 mL锥形管中,长期保存于液氮杜瓦瓶内。另一种替代方法是使用带有凸面盖的小型0.2 mL普通PCR薄壁管,用于单个Si的储存3N4 膜支撑。你需要使用加热的注射器针头在壁管的上部钻一个约2 mm的孔,以允许液氮2 以填满试管。 - 向转运容器中加入液氮2 并用专用的铝盖盖好。继续向冷室中添加液氮2 (通常需要约 2 L)保持液氮(LN)100% 充盈2 控制台上的液位监测器显示。等待直至达到最终所需温度。
- 取下塑料盖,将连接至乙烷瓶的液化器覆盖在乙烷杯上。等待乙烷杯温度达到设定值并平衡。达到设定温度后,开始使用二级冷冻剂(即液态乙烷)。
注意:设定温度为 -180 °C,略高于乙烷的熔点(-182.8 °C)。无需预先冷却乙烷液化器,因其可能导致霜的形成并污染乙烷杯。 - 打开高纯度乙烷气瓶主阀,缓慢开启减压阀,直至产生少量乙烷雾气。保持极低流速,直至液态乙烷开始积聚。将容器注满至顶部边缘。关闭减压阀及乙烷气瓶主阀。小心取下Leica液化装置,并将其置于通风橱内小块聚苯乙烯支架上。使用仪器配备的黑色聚苯乙烯盖,松散覆盖工作区域,以防止霜冻污染工作区及乙烷容器。
- 在手动点样前,取下黑色聚苯乙烯帽,然后从控制台菜单中按下“下室,使环境室与低温工作区域接触。
- 准备对样品进行印迹。
- 准备适当的缓冲液以去除培养基中的盐残留。本方案中,使用乙酸铵缓冲液洗涤 MDA-MB-231 细胞。
注意:醋酸铵缓冲液适用于大多数细胞类型,且不会增加X射线荧光信号(考虑原子序数Z<20的元素)。 > 9). 某些特定细胞系(如神经元细胞)可能需要使用专用缓冲液。例如,对于原代皮层神经元,可使用由1.8体积的0.5 M Na2HPO4 和1.9体积的0.5 M NaH2PO4 可用于15另一方面,缓冲液中含有的磷或氯元素会干扰XRF谱图。在检测目标元素时,必须注意这种由杂质元素引起的虚假X射线发射线的局限性。 - 使用超纯乙酸铵溶液配制150 mM乙酸铵溶液,并检测pH值(7.0–7.3)和渗透压(270–300 mOsm/kg)
注意:上述渗透压相当于不含钙和镁的杜氏磷酸盐缓冲液(D-PBS),可使用微渗透压计进行检测。 - 向12孔塑料板中加入所需数量的孔,并填充醋酸铵缓冲液。
- 从带有预切孔的1号滤纸,或从直径55 mm、中心带有15 mm孔的自行打孔滤纸上,裁剪出四分之一大小的滤纸用于吸水。
- 在冲洗和膜快速冷冻前的最后时刻,从37 °C培养箱中取出所需样品。
- 使用快速释放镊子的黑色夹紧环(通常为Dumont夹紧环高精度医用镊子)解锁镊子,并夹取Si3N4 从培养孔中取出膜支撑物。
注意:抓住硅胶框架的中部,使镊子尖端靠近膜表面。将黑色卡箍向下移动至第一条刻度线处,以固定镊子。 - 将 Si 浸入3N4 在37 °C的醋酸铵缓冲液中垂直放置膜支撑约5秒。
注意:支架在缓冲液中应保持垂直。请注意,每孔中的缓冲液可用于相同孵育条件下的最多三张膜。 - 用滤纸手动印迹,以吸除膜清洗液中的过量缓冲液(图4以留下一层薄而均匀的乙酸铵水溶液覆盖细胞。
注意:为此,首先将窗口背面压在滤纸上,以去除小孔和膜背面残留的几乎所有水相缓冲液;其次,从镊子两侧开始,然后是框架的每侧,依次吸干正面图4)。切勿触碰膜。可通过滤纸上形成的光晕来监测缓冲液的过量排出情况。 - 打开环境箱门,迅速安装镊子,将其滑入镊子联锁装置,然后关闭箱门(图5).
- 按压“印迹/浸入. 夹持硅片的镊子3N4 膜将迅速浸入冷冻剂中。
- 使用预冷的镊子取下转移容器的盖子。
- 按压“转移。Si3N4 膜将略微上移至冷冻剂上方。
- 单次快速操作,通过将镊子从镊子锁扣中滑出并略微倾斜脱离锁扣,直接放入装有液氮的转移容器中冷冻盒的空位内2. 松开黑色卡箍以释放膜(图5).
注意:转移容器应始终用液氮(LN)覆盖2当需要补充时,用设备附带的塑料盖盖住乙烷杯,以避免与液氮混合2 和乙烷。 - 用盖子盖住转运容器,并使用装满液氮的小型白色聚苯乙烯杯2 转移到装有液氮的聚苯乙烯盒中2.
注意:含有膜的冻存盒或管子可置于装有液氮的50 mL离心管中保存2 并转移至长期储存液氮中2 Dewar。在开始 plunge freeze 下一个样品前,使用吹风机或加热板/冷冻工具干燥器(45 °C)将所有冰冷和结霜的镊子预热,以避免冰晶污染。
- 准备适当的缓冲液以去除培养基中的盐残留。本方案中,使用乙酸铵缓冲液洗涤 MDA-MB-231 细胞。
5. 在氮化硅膜上培养的浸入式冷冻细胞的冷冻干燥
注意:冻干步骤同时适用于 MDA-MB-231 和 HN 细胞。为使冻干机降温,您需要等待约 40 分钟至 1 小时。
- 设置冷冻干燥机
- 使用位于仪器后侧面板上的摇杆开关打开电源。
- 开始根据液晶显示屏菜单输入参数:第一阶段 = -120 °C 下持续 2 小时;第二阶段 = 从 -120 °C 以斜坡升温至 -80 °C,持续 2 小时;第三阶段 = -80 °C 下持续 2 小时;第四阶段 = 从 -80 °C 以斜坡升温至 50 °C,持续 2 小时;第五阶段 = -50 °C 下持续 2 小时;第六阶段 = 从 -50 °C 以斜坡升温至 30 °C,持续 6 小时。
- 参数设置完成后,保存设置,关闭腔室盖,然后按“START".
- 该装置将抽真空至1.10-5 毫巴。当达到此压力时,显示屏的命令行将显示“立即开始冷却,输入 START 以继续".
- 定期填充液氮杜瓦瓶,以使载台温度降至三相点温度设定值以下。
注意:阶段三相点温度设定为 -140 °C。在加载本方案的样品前,最好等待约 1 小时,直至温度阶段降至 -160 °C。 - 显示屏将显示“按压 ENTER准备就绪时上样".
- 冷却至液氮温度,置于液氮中2 填充聚苯乙烯杜瓦瓶、供应商提供的样品转移架,以及两个额外的黄铜圆柱形硅3N4 膜夹持器
- 安装硅片3N4 聚苯乙烯杜瓦瓶中,位于供应商提供的样品转移架上方的膜黄铜支架图6A)。保持LN的水平2 距离第一块黄铜部件的上边缘约1−2毫米处。
- 拿起一个 Si3N4 使用预冷的不锈钢或聚四氟乙烯涂层自闭合镊子,从冷冻盒或PCR管中取出膜样品支撑物。
- 将膜(细胞样品面朝上)放入黄铜支架的编号凹槽中。
- 用第二块黄铜部件作为盖子盖住组件图6C).
注意:我们设计了两个黄铜圆盘,每个圆盘厚度为5 mm,直径为50 mm,中心有一个直径为11 mm的孔。第一个黄铜圆盘上加工有14个矩形凹槽(8 mm × 6 mm),用于放置支撑块(5 mm × 5 mm)。每个凹槽均有一个平整且抛光的底部,深度为2 mm。第二个黄铜圆盘为平整结构,用于覆盖Si3N4 膜片黄铜支架并作为冷阱外壳。 - 将转移杆预冷至液氮温度2 填充聚苯乙烯泡沫盒,并用其固定整个组件图6D,E).
- 按压“ENTER冻干机前面板上
- 涡轮泵和旋转泵将停止工作,腔室用干燥氮气吹扫,以允许打开腔室盖。
- 立即将带有弹簧加载转移杆的样品转移组件放入冷冻干燥机腔室,并将其夹在铜质液氮架上2 冷台
注意:将带有转移杆的完整组件留在腔室内。 - 立即关闭冷冻干燥机腔室的盖子,并按下“START继续进行冻干循环。
- 加满液氮2 每2小时手动更换一次冷冻干燥机的冷凝器。
注意:一种自动的 LN2 填充系统可连接至该储液罐。 - 冻干循环结束时,按“STOP为释放腔室压力,并取下整个组件以获取冻干样品。
结果
聚-L-赖氨酸包被的硅片上继代培养的冷冻水合MDA-MB-231细胞的典型光学视频显微镜图像3N4 膜支撑结构如图所示 图7A在ESRF的ID16A光束线上,使用专用的在线视频显微镜以反射模式获取了真空腔室内样品的光学图像。22。尽管电子显微镜或软X射线显微镜要求包埋细胞的冰层尽可能薄(通常 <0.5 µm),硬X射线(>10 keV)具有穿透深度大得多和剂量沉积低的优势。因此,冰层厚度可以更大,通常 <10 µm 包括细胞,使包埋细胞的冰层略厚几微米 µm 厚度。这可以通过测量样品透射的X射线强度与无样品时的强度进行比较来估算,同时考虑500 nm厚Si的吸收影响。3N4 膜。通过本方案所述的手动 blotting 方法可达到此冰层厚度。在牛顿环区域,冰层可更薄(未测量)。
近天然状态下冷冻水合细胞的X射线荧光元素分布图如图7B所示,展示了钾(K)、硫(S)和锌(Zn)等生理元素的典型分布情况。这些图谱表示的是元素的面密度(即元素的投影质量)。尽管本研究未进行归一化处理,但此类图谱可通过基于X射线传播的相位衬度成像进行归一化,从而获得样品投影质量的估算值23。许多研究报道指出,在接近天然状态保存的细胞中,高度可扩散的K离子被认为在整个细胞内均匀分布23,24,16。如图7B中的二维X射线荧光元素图像所示,与K类似,紧密结合的元素S在细胞内也呈均匀分布,可较好地反映细胞的质量分布轮廓。Zn在细胞核中的信号强于细胞质,并清晰勾勒出细胞核的轮廓。值得注意的是,在核区域可于空间分辨率(50 nm)下检测到若干富锌的小区域。
现有的X射线纳米探针或即将建造的设备未必具备低温功能。在此情况下,获得空间分辨率优于100 nm的细胞X射线荧光图像的最佳替代方法是:在将细胞进行浸入式冷冻后,按照本方案所述进行冷冻干燥处理。图8A展示了直接培养在Si3N4膜上的小鼠原代海马神经元经冷冻干燥后的典型明场显微镜图像。此类样品若保存在洁净且干燥的干燥环境中,可提前1−2周制备,并可用普通直立光学显微镜观察以定位感兴趣区域。应特别注意避免样品暴露于环境湿度中,因为冷冻干燥后的样品可能吸收水分,从而在X射线纳米束照射下造成损伤。该方法已成功应用于极为敏感的细胞(如神经元细胞),而对于其他更为稳定的细胞类型(如癌细胞),所获结果甚至更佳。与浸入式冷冻的细胞类似,整个冷冻干燥细胞上K、S和Zn的X射线荧光图像与上文所述相似,能够代表在50−100 nm空间分辨率下各类冷冻干燥细胞中元素分布的典型特征。尽管对完整细胞进行冷冻干燥是一种保持元素完整性的替代方法,但其代价是无法完美保留细胞形态16,尤其是细胞膜结构。
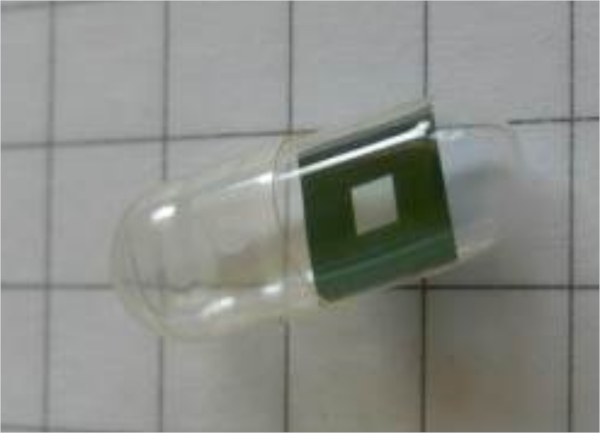
图 1:X射线荧光纳米分析的典型样品支撑装置。 位于保护胶囊内的Si3N4薄膜支撑。此类基底既可用于常温分析(先进行样品速冻制备,再经低温低真空冷冻干燥过程),也可用于低温X射线荧光分析。请点击此处查看该图的放大版本。
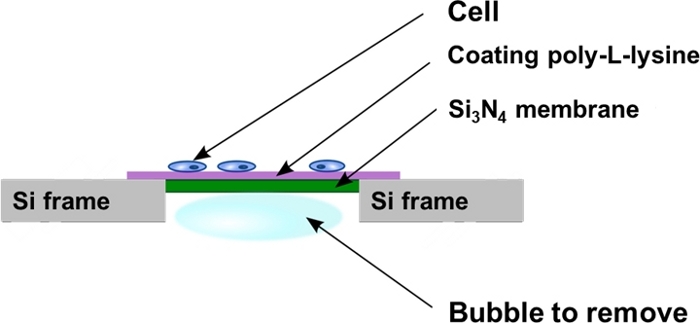
图 2:细胞接种后氮化硅窗口的示意图。 细胞直接培养在涂有聚-L-赖氨酸的 Si3N4 膜支撑的平坦表面上。有时气泡会滞留在 Si3N4 膜支撑的背面空腔中,需按照本方案所述方法予以去除。请点击此处查看此图的放大版本。
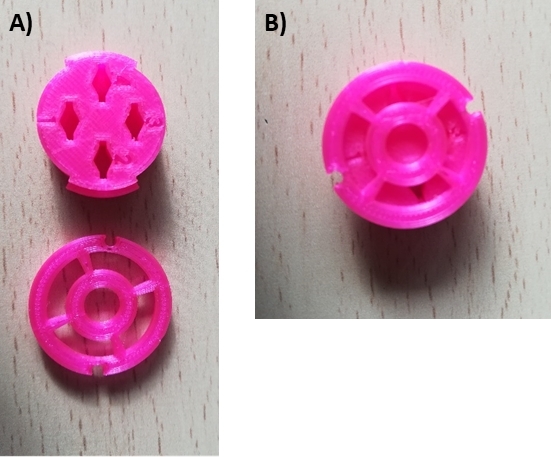
图3:自主开发的3D打印冷冻盒,用于在液氮杜瓦瓶中长期保存浸入式冷冻的Si3N4薄膜支撑片。(A)冷冻盒拆解状态,包含容器和盖帽(下部);(B)盖帽锁紧后的组装状态。盖帽可用镊子操作,通过旋转实现开启或锁定。详细的3D打印设计图可向ESRF ID16A申请获取。该设计专为容纳氮化硅透射电镜载网而设计。请点击此处查看该图的放大版本。
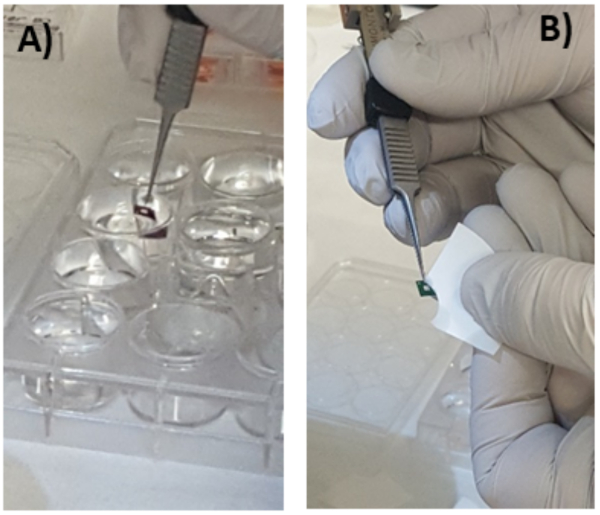
图 4:在氮化硅(Si3N4)上培养的细胞的吸液处理。 在进行冷冻浸入前,需先将生长在氮化硅(Si3N4)膜上的细胞单层用醋酸铵溶液清洗(A),然后使用滤纸小心地手动吸除多余液体(B)。请点击此处查看该图的放大版本。
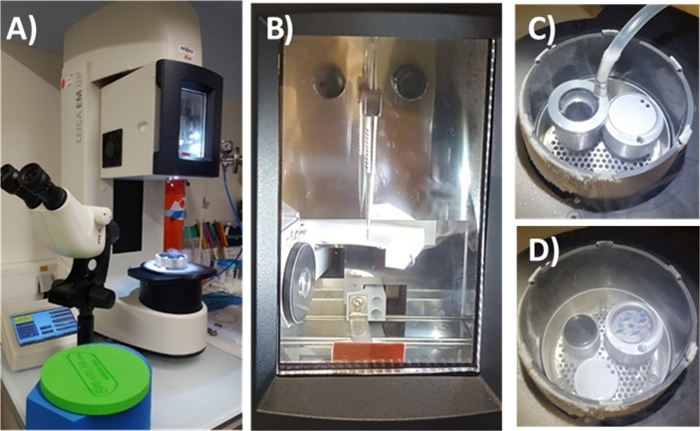
图5:自动浸入式冷冻电镜EM-GP设备。(A)自动浸入式冷冻仪。(B)环境控制室,镊子已锁定在其中。(C)盛有乙烷的容器,上方连接着徕卡液化装置,并与乙烷气瓶相连。(D)浸入式冷冻装置,显示装满液态乙烷的黑色容器,以及用于后续将玻璃态Si3N4膜在液氮(LN2)中储存的冷冻盒。请点击此处查看此图的放大版本。
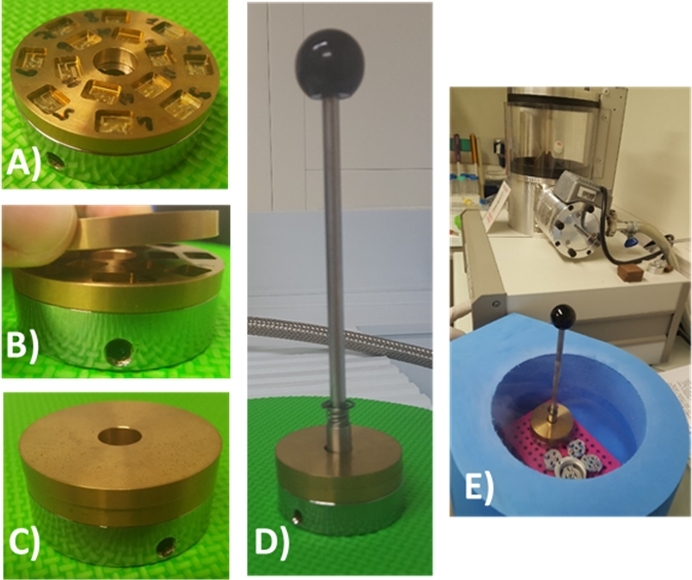
图6:冻干程序的样品冷冻转移装置示例。 (A第一个用于硅的黄铜接收器3N4 膜被安装在冻干机供应商提供的样品转移架顶部。B)和(C显示第二个扁平黄铜圆盘用作盖子,并作为冷阱腔室插入冷冻干燥机的真空腔室内。D) 带弹簧加载转移杆的完整组件。E) 携带玻璃化细胞样品的样品台,该细胞样品在硅片上培养3N4 膜必须进一步插入液氮中2-冷冻干燥机。组装的所有步骤均在液氮(LN)中进行2 在泡沫塑料箱中。为清晰起见,所有图像均在无液氮条件下生成2. 请点击此处以查看此图的放大版本。
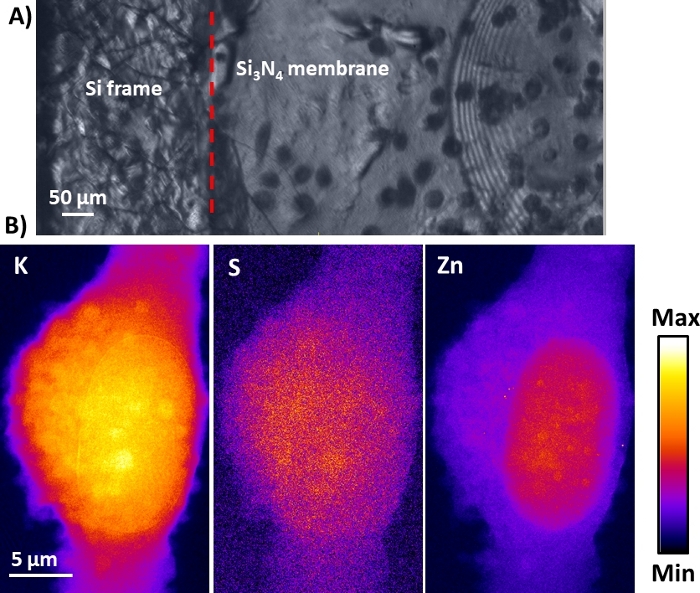
图7:利用硬X射线纳米探针获得的冷冻水合细胞的低温X射线荧光图像。(A)在ESRF ID16A光束线专用光学视频显微镜下,以反射模式进行的典型在线观察图像。经过手动 blotting 后,冰层总厚度约为5−10 µm,可清晰观察到冷冻水合细胞。图中可见具有牛顿环的区域,表明该处冰层更薄。(B)生理元素钾(K)、硫(S)和锌(Zn)的代表性低温X射线荧光细胞分布图。请点击此处查看该图的放大版本。
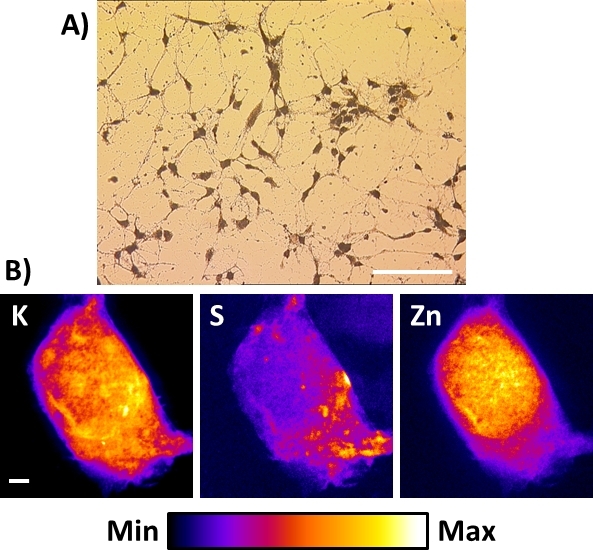
图8:利用硬X射线纳米探针对冻干神经元细胞进行X射线荧光成像。 (A)直接培养在Si3N4膜上的冻干细胞的典型明场显微图像。比例尺 = 200 µm。(B)单个冻干海马神经元在室温下的代表性X射线荧光图像,显示生理元素钾(K)、硫(S)和锌(Zn)的分布情况。比例尺 = 2 µm。请点击此处查看该图的放大版本。
讨论
冷冻电子显微技术(cryo-EM)获得了2017年诺贝尔化学奖,以表彰J. Dubochet在生物材料玻璃化方面的贡献,该技术实现了溶液中生物大分子高分辨率结构的测定25。正如Dubochet在其诺贝尔奖演讲中所述:“掌握如何将一滴水玻璃化是一回事,而为生物学观察制备生物样品则是另一回事”25。目前,冷冻制样步骤已被视为减轻辐射剂量损伤、并在接近天然状态下研究细胞的标准技术。然而,样品制备过程仍然十分繁琐。这是因为电子显微技术具有无与伦比的空间分辨率,对样品制备过程中产生的任何超微结构伪影均极为敏感。同步辐射冷冻纳米探针目前也正面临类似的挑战,其在高能X射线范围内的空间分辨率已接近低至13 nm的水平26。硬X射线显微技术能够对完整细胞进行分析,而电子显微技术则受限于电子穿透能力较差,只能观察非常薄的细胞切片。
细胞单层足够薄,通过在液态乙烷中快速浸入冷冻,即可达到水玻璃化所需的冷却速率。理论上,使用高压冷冻可实现高达108 K/s的冷却速率27,从而能够对过厚而不适合浸入冷冻的样品进行玻璃化。使用本文介绍的自动浸入冷冻装置及参数,可重复稳定地达到在常压下实现样品完全玻璃化所需的105 K/s冷却速率28。这使得研究人员能够通过在液态乙烷中浸入冷冻的方法,对较薄的生物样品(<10 µm)如细胞单层12,13,14,15,29,30进行玻璃化处理。
该方案的一个重要挑战是尽可能保持细胞内含物的化学完整性,以在二维或三维条件下提供细胞内可靠的元素分布。如其他文献2,16,17,31所述,在亚细胞水平进行元素成像时,应考虑分析冷冻水合状态下的细胞。否则,可采用将细胞快速冷冻后冻干的方法,以便在室温下进行分析。在后一种方法中,非晶态冰通过升华过程去除,而结合水分子则通过解吸过程去除。与冷冻水合样品相比,该过程可能远非理想,因为可能导致细胞膜及某些亚细胞结构形态的改变32。此外,在化学形态研究中,脱水过程可能导致金属形态的人为假象。尽管如此,该方法已被成功应用,并且是在亚100 nm水平进行元素成像时,除冷冻水合样品外的最佳选择2,16,17,18,20,33,34,35,36。
据已有报道37,冷冻保存细胞制剂的质量可通过钾钠比(K/Na)进行评估。然而,由于本研究中所用硬X射线纳米探针配备的硅漂移探测器在检测元素X射线荧光光子时存在较低的能量截止限制(E ≥ 1.3 keV 镁),目前尚无法测定该比值。事实上,较高的K/Na比值(>10) 可通过飞行时间二次离子质谱(TOF-SIMS)、电子探针显微分析(EPMA)或核微探针PIXE测量16,37 表明细胞的化学完整性得以保持,相较于活细胞中预期的25的K/Na比值37这可以通过同时较低的 Cl/K 比值来支持38然而,玻璃化过程若不完善,特别是当样品冷却速度过低时,可能导致形成较大的冰晶,从而损伤细胞膜和细胞器,继而改变化学元素的分布。尽管目前尚无常规方法用于监测此类潜在损伤及其对细胞内元素分布的影响,但上述元素比例分析,以及利用X射线相位衬度成像或低温软X射线显微镜对细胞进行高分辨率成像的能力,可能是评估细胞内区室结构良好保存且元素完整性得以维持的最佳手段。结合这些技术,并使用新开发的低温相关荧光光学显微镜,将有助于评估此类损伤发生的程度及其对细胞内元素分布的影响。
总体而言,本文提供了一套详细且全面的细胞样品制备方案,用于同步辐射X射线荧光纳米分析。该方案为科研界提供了一个良好的起点,有助于解决如何为(冷冻)硬X射线纳米探针下的二维和三维元素成像制备合适细胞样品这一难题。这些方法可与光学荧光显微和电子显微技术相结合,实现对细胞进行深入的化学与结构关联成像研究。
致谢
在纳米成像光束线ID16A上进行的实验是在ESRF提案LS2430、LS2303和LS2765的框架下完成的。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 乙酸铵溶液,BioUltra,分子生物学用,~5M in H2O | SIGMA | 09691-250mL | 可使用高纯度乙酸铵粉末和超纯水配制所需溶液,但需调节pH值和渗透压。 |
| B27添加剂,50倍浓缩液 | Life Technologies,Invitrogen | 17504-044 | 用于海马神经元培养 |
| 杜尔贝科’磷酸盐缓冲液,DPBS(不含 CaCl₂,不含 MgCl₂) | GIBCO | 14190-094 | 细胞培养 |
| 含酚红/谷氨酰胺I的DMEM培养基(ATCC改良型) | GIBCO | 21885025 | 细胞培养 |
| 杜尔贝科’DMEM(杜尔贝科改良伊格尔培养基) | Life Technologies,Invitrogen | 31966-02 | 用于海马神经元培养 |
| Dumont 镊子 #5,直头自闭合,尖端尺寸 0.05×0.01 mm,生物学用 | 世界精密仪器公司 | 501202 | |
| Emitech K750X 帕尔贴冷却式电子显微镜冷冻干燥仪 | Quorum Technology | EK3147 | |
| 乙烷 N45 | 空气液体 | p0505s05r0a001 | C2H6 > 99,995 % |
| 胎牛血清,性能增强型,经认证一次性使用包装,美国来源 | GIBCO | A31604-02 | 细胞培养 |
| HBSS 10倍浓缩液 | Life Technologies,Invitrogen | 14185-052 | 用于海马神经元培养 |
| Leica GP 快速释放镊子 | Leica | 16706435 | |
| MDA-MB-231细胞系,一种上皮性人乳腺腺癌细胞 | ATCC | ATCC HTB-26 | 细胞培养 |
| Neurobasal 培养基 | Life Technologies,Invitrogen | 21103-049 | 用于海马神经元培养 |
| Nunc 4孔板 | 赛默飞世尔科技 | 176740 | 细胞培养 |
| Osmo1 单样本微渗透压计 | 高级仪器 | Osmo1 | 替代品可在 Fisher Scientific(Wescor Inc. VAPRO)找到® 蒸汽压渗透压计 |
| 青霉素-链霉素 | SIGMA | P4333 | 细胞培养 |
| 聚-L-赖氨酸 | SIGMA | P4707 | 可依据拟在膜上培养的细胞类型选择其他类型的包被材料,可相应测试其他黏附因子,如纤连蛋白、胶原蛋白、多聚鸟氨酸等。细胞可直接在氮化硅膜上培养,但此类膜略具疏水性,除非经过亲水化处理(如辉光等离子体放电处理),否则建议使用黏附因子。 |
| Leica EM GP 主机(冷冻载网制备仪) | Leica | 16706401 | 自动压片机的替代设备包括 Vitrobot Mark IV (FEI)、CryoPlunge 3 (Gatan) 和 MS-002 Rapid Immersion Freezer (EMS)。也可使用手动自制系统,但冷冻压片过程若在环境可控的密闭腔室内进行将更具优势。 |
| 氮化硅膜(Si3N4) | Silson Ltd. | SiRN-5.0(o)-200-1.5-500-NoHCl | 建议的氮化硅膜类型已针对ESRF ID16A线站的X射线纳米探针分析进行了优化。本方案中选择500 nm厚度的膜,因其在细胞操作和冷冻固定过程中具有更高的机械强度。也可使用200 nm或更薄的膜,但其较为脆弱。其他类型的氮化硅膜(例如适用于透射电镜的膜)可从Sislon或Norcada、SPI Supplies、Ted Pella、EMS、LabTech、Neyco等公司购买。 |
| 0.4% 台盼蓝溶液 | GIBCO | 15250061 | 细胞培养 |
| 0.05% 胰蛋白酶-EDTA | GIBCO | 25300-054 | 细胞培养 |
| 超痕量元素分析级超纯水 | Fisher Chemicals | W9-1 | 可使用MilliQ水,但必须使用例如ICP-MS分析等方法检测其痕量元素污染水平。 |
| 预切孔的沃特曼1号滤纸 | Leica | 16706440 | 可使用其他滤纸,其外径必须为55 mm,可使用徕卡(Leica)的滤纸打孔系统(货号:16706443)。 |
参考文献
- Lewis, D. J., et al. Intracellular synchrotron nanoimaging and DNA damage/genotoxicity screening of novel lanthanide-coated nanovectors. Nanomedicine. 5 (10), 1547-1557 (2010).
- Fus, F., et al. The intracellular localization of osmocenyl-tamoxifen derivatives in hormone-independent breast cancer cells revealed by 2D and 3D nano X-ray fluorescence imaging. Angwendte Chemie. , (2019).
- Janssens, K., Adams, F., Rindby, A. Microscopic X-Ray Fluorescence Analysis. , Wiley. Chichester, UK. (2000).
- Carmona, A., et al. Uranium exposure of human dopaminergic cells results in low cytotoxicity, accumulation within sub-cytoplasmic regions, and down regulation of MAO-B. Neurotoxicology. 68, 177-188 (2018).
- Leapman, R. D., Hunt, J. A., Buchanan, R. A., Andrews, S. B. Measurement of low calcium concentrations in cryosectioned cells by parallel-EELS mapping. Ultramicroscopy. 49 (1-4), 225-234 (1993).
- Saubermann, A. J., Echlin, P., Peters, P. D., Beeuwkes, R. Application of scanning electron microscopy to X-ray analysis of frozen hydrated sections. I. Specimen handling techniques. Journal of Cell Biology. 88 (2), 257-267 (1981).
- Saubermann, A. J., Heyman, R. V. Quantitative digital X-ray imaging using frozen hydrated and frozen dried tissue sections. Journal of Microscopy. 146, Pt2 169-182 (1987).
- Wroblewski, J., Roomans, G. M. X-ray microanalysis of single and cultured cells. Scanning Electron Microscopy. , Pt 4 1875-1882 (1984).
- Wroblewski, J., Müller, R. M., Wroblewski, R., Roomans, G. M. Quantitative X-ray microanalysis of semi-thick cryosections. Histochemistry. 77 (4), 447-463 (1983).
- Zierold, K. Cryopreparation of mammalian tissue for X-ray microanalysis in STEM. Journal of Microscopy. 125, Pt2 149-156 (1982).
- Harkiolaki, M., et al. Cryo-soft X-ray tomography: Using soft X-rays to explore the ultrastructure of whole cells. Emerging Topics in Life Sciences. 2 (1), 81-92 (2018).
- McDermott, G., Le Gros, M. A., Knoechel, C. G., Uchida, M., Larabell, C. A. Soft X-ray tomography and cryogenic light microscopy: the cool combination in cellular imaging. Trends in Cell Biology. 19 (11), 587-595 (2009).
- Schneider, G., et al. Three-dimensional cellular ultrastructure resolved by X-ray microscopy. Nature Methods. 7 (12), 985-987 (2010).
- Sorrentino, A., et al. MISTRAL: a transmission soft X-ray microscopy beamline for cryo nano-tomography of biological samples and magnetic domains imaging. Journal of Synchrotron Radiation. 22 (4), 1112-1117 (2015).
- Carzaniga, R., Domart, M. C., Duke, E., Collinson, L. M. Correlative cryo-fluorescence and cryo-soft X-ray tomography of adherent cells at European synchrotrons. Methods in Cell Biology. 124, Academic Press. 151-175 (2014).
- Perrin, L., Carmona, A., Roudeau, S., Ortega, R. Evaluation of sample preparation methods for single cell quantitative elemental imaging using proton or synchrotron radiation focused beams. Journal of Analytical Atomic Spectrometry. 30 (12), 2525-2532 (2015).
- Jin, Q., et al. Preserving elemental content in adherent mammalian cells for analysis by synchrotron-based x-ray fluorescence microscopy. Journal of Microscopy. 265 (1), 81-93 (2017).
- Daoust, A., et al. Impact of manganese on primary hippocampal neurons from rodents. Hippocampus. 24 (5), 598-610 (2014).
- Daoust, A., et al. Manganese Cytotoxicity Assay on Hippocampal Neuronal Cell Culture. Bio-protocol. 5 (1), 1368(2015).
- Gibon, J., et al. The over-expression of TRPC6 channels in HEK-293 cells favours the intracellular accumulation of zinc. Biochimica et Biophysica Acta (BBA)-Biomembranes. 1808 (12), 2807-2818 (2011).
- Hasna, J., Bohic, S., Lemoine, S., Blugeon, C., Bouron, A. Zinc Uptake and Storage During the Formation of the Cerebral Cortex in Mice. Molecular Neurobiology. , 1-13 (2019).
- Villar, F., et al. Nanopositioning for the ESRF ID16A Nano-Imaging Beamline. Synchrotron Radiation News. 31 (5), 9-14 (2018).
- Kosior, E., et al. Combined use of hard X-ray phase contrast imaging and X-ray fluorescence microscopy for subcellular metal quantification. Journal of Structural Biology. 177 (2), 239-247 (2012).
- Bohic, S., et al. Synchrotron hard X-ray microprobe: fluorescence imaging of single cells. Applied Physics Letters. 78, 3544-3546 (2001).
- Dubochet, J. On the Development of Electron Cryo-Microscopy (Nobel Lecture). Angwendte Chemie. 57 (34), 10842-10846 (2018).
- Da Silva, J. C., et al. Efficient concentration of high-energy X-rays for diffraction-limited imaging resolution. Optica. 4 (5), 492-495 (2017).
- Studer, D., Humbel, B. M., Chiquet, M. Electron microscopy of high-pressure frozen samples: bridging the gap between cellular ultrastructure and atomic resolution. Histochemistry and Cell Biology. 130 (5), 877-889 (2008).
- Moor, H. Theory and pratice of high pressure freezing. Cryotechniques in Biological Electron Microscopy. Steinbrecht, R. A., Zierold, K. , Springer. 175-191 (1987).
- Gilkey, J. C., Staehelin, L. A. Advances in ultrarapid freezing for the preservation of cellular ultrastructure. Journal of Electron Microscopy Techniques. 3 (2), 177-210 (1986).
- Ferreira, J. L., Matthews-Palmer, T. R., Beeby, M. Electron Cryo-Tomography. Cellular Imaging. , Springer, Cham. 61-94 (2018).
- Colvin, R. A., Jin, Q., Lai, B., Kiedrowski, L. Visualizing metal content and intracellular distribution in primary hippocampal neurons with synchrotron X-ray fluorescence. PLoS One. 11 (7), 0159582(2016).
- Vavpetič, P., et al. Elemental distribution and sample integrity comparison of freeze-dried and frozen-hydrated biological tissue samples with nuclear microprobe. Nuclear Instruments and Methods in Physics Research Section B: Beam Interactions with Materials and Atoms. 348, 147-151 (2015).
- Guerquin-Kern, J. L., Bordat, C. Cryo-preparation procedures for elemental imaging by sims and eftem. Handbook of Cryo-Preparation Methods for Electron Microscopy. , CRC Press. 499-536 (2008).
- Gramaccioni, C., et al. Nanoscale quantification of intracellular element concentration by X-ray fluorescence microscopy combined with X-ray phase contrast nanotomography. Applied Physics Letters. 112 (5), 053701(2018).
- Perrin, L., et al. Zinc and Copper Effects on Stability of Tubulin and Actin Networks in Dendrites and Spines of Hippocampal Neurons. ACS Chemical Neurosciences. 8 (7), 1490-1499 (2017).
- Ortega, R., et al. α-synuclein over-expression induces increased iron accumulation and redistribution in iron-exposed neurons. Molecular Neurobiology. 53 (3), 1925-1934 (2016).
- Fartmann, M., et al. Quantitative imaging of atomic and molecular species in cancer cultures with TOF-SIMS and Laser-SNMS. Applied Surface Sciences. 231 (2), 428-431 (2004).
- Pålsgård, E., Lindh, U., Roomans, G. M. Comparative study of freeze-substitution techniques for X-ray microanalysis of biological tissue. Microscopy Research and Techniques. 28 (3), 254-258 (1994).
重印与许可
