核表面铺展技术是研究减数分裂过程中染色体事件不可或缺的工具。本文中,我们展示了一种制备和可视化斑马鱼精母细胞减数分裂前期 I 染色体的方法。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
减数分裂是产生单倍体配子以进行有性生殖的关键细胞过程。模式生物在揭示减数分裂前期染色体事件(包括确保染色体正确分离的配对、联会和重组事件)方面发挥了重要作用。尽管小鼠在解析这些过程的分子机制方面是一个重要的模型,但该系统中的并非所有减数分裂事件都与人类减数分裂相似。我们最近展示了斑马鱼作为人类精子发生模型的广阔前景。本文中,我们详细描述了在染色体铺展样品中可视化减数分裂染色体及其相关蛋白的方法。此类样品的优势在于能够对染色体结构进行高分辨率分析。首先,我们描述了从成年斑马鱼中解剖睾丸的操作流程,随后进行细胞解离、裂解以及染色体铺展。接着,我们介绍了通过免疫荧光检测减数分裂染色体蛋白的定位,以及通过荧光原位杂交(FISH)检测核酸序列的方法。这些技术共同构成了在斑马鱼系统中对减数分裂染色质结构进行细胞学分析的一套有用工具。斑马鱼研究领域的科研人员应能迅速掌握这些技术,并将其纳入对生殖功能的常规分析中。
引言
有性生殖通过两个单倍体配子的结合进行,每个配子携带体细胞一半的染色体数目。减数分裂是一种特殊的细胞分裂过程,通过一次DNA复制和两次连续的染色体分离,产生单倍体配子。在减数第一次分裂前期I中,同源染色体(同源染色体对)必须完成配对、重组和联会,其中联会的特征是形成联会复合体,该复合体由两个同源染色体轴通过横丝蛋白Sycp1连接而成(图1A,B)。若这些过程未能正确执行,可能导致非整倍体配子的产生,这是人类自然流产的主要原因之一1。人们对配对、重组与联会之间协调机制的认识,得益于在多种生物(如酵母、C. elegans、小鼠和Drosophila等)中开展的研究2。尽管同源染色体配对后分离这一基本过程在进化上高度保守,但其对重组和联会的依赖性以及这些事件发生的顺序在不同物种间存在差异。
减数分裂中双链断裂(DSB)的形成启动了同源重组,该过程在细线期期间发生在端粒聚集形成的花束结构附近,随后迅速发生联会3,4。DSB形成与联会起始的这种空间配置同样是人类雄性减数分裂的特征,但在小鼠中并不存在5,6,7,8,这表明斑马鱼可作为研究人类精子发生的模型。研究斑马鱼减数分裂还具有多种实际优势:雌雄个体在整个成年期均持续进行配子发生,其性腺易于获取,且单次交配可产生数百个子代。此外,胚胎透明并在体外发育,有利于早期检测由非整倍体配子导致的胚胎发育异常3,9。使用斑马鱼的不利之处在于其性成熟较慢(约60天),且制备核表面铺展所需的材料需从约10–20只成年个体中收集,具体数量取决于个体大小。
减数分裂染色体铺展制备是研究所有模式生物中染色体动态的关键工具,因为可以借此检测减数分裂染色体动态的关键特征。在斑马鱼中,通过对抗体标记的核表面铺展样本(本文称为染色体铺展)进行免疫荧光检测蛋白质和/或通过FISH检测核酸,已深入解析了减数分裂程序进展及核内结构组织的关键方面3,4,9,10,11,12。事实上,花束期端粒簇在核膜上的极性定位可在铺展制备过程中得以保留(图1C)。最近,我们结合斑马鱼精母细胞的染色体铺展、荧光检测方法以及超分辨率显微镜,阐明了斑马鱼端粒动态、同源染色体配对、双链断裂定位以及在关键减数分裂转换时期联会的详细进程3。本文中,我们介绍了从斑马鱼睾丸精母细胞制备染色体铺展的方法,并进一步使用针对端粒重复序列的荧光标记肽核酸(PNA)探针以及染色体相关蛋白的免疫荧光染色对其进行检测。
访问受限。请登录或开始试用以查看此内容。
方案
所有涉及斑马鱼的实验方法均按照加州大学戴维斯分校机构动物护理和使用委员会批准的伦理标准进行。
1. 染色体铺展实验步骤
注意:以下实验方案旨在制备 4–6 张载玻片,每张载玻片上含有数百个分散的减数分裂期细胞核。所需睾丸的数量取决于鱼类的大小。预计在受精后约 60 天(dpf)需使用 20 只动物,受精后约 6 个月(mpf)需使用 15 只动物。对于较大的斑马鱼(例如 12 mpf),10 只动物已足够。需注意的是,某些减数分裂突变体(例如 spo11-/-)的睾丸会略小3。在本方案中,一批睾丸被视为一个样本。建议平行处理的样本数不超过 4 个。
- 在开始铺板操作前,配制以下溶液
注意:为便于后续涂布实验的使用,建议按指定用量预先配制以下溶液。- 将3.42 g蔗糖溶解于100 mL蒸馏水中,配制0.1 M蔗糖溶液。使用pH 8的1 M Tris-HCl将蔗糖溶液调节至pH 8。随后对溶液进行过滤除菌。室温保存。
- 配制10倍浓度磷酸盐缓冲液(PBS)储备液,其终浓度为1.37 M NaCl、27 mM KCl、73 mM Na2HPO4 和 27.6 mM KH2PO4 在1.8 L蒸馏水中溶解,搅拌至完全溶解后,用NaOH调节pH至7.3,随后进行高压灭菌。室温保存。
- 用无菌蒸馏水配制 400 µg/mL 的 DNase I 溶液,于 -20 °C 保存。建议配制 5 mL 该溶液,分装为每份 100 µL 储存。
- 在进行铺展实验当天配制以下溶液
注意:为了节省时间,建议在解剖完所有睾丸后立即配制胶原酶溶液,然后在样品进行胶原酶处理的同时配制胰蛋白酶和胰蛋白酶抑制剂溶液。- 将每份样品的 4 mg 胶原酶溶解于 200 µL 达尔伯克改良伊格尔培养基(DMEM)中(终浓度为 2% w/v)。使用前置于冰上保存。胶原酶将解离睾丸组织。
- 将每份样品的 1.4 mg 胰蛋白酶溶解于 200 µL DMEM 中(终浓度为 0.7% w/v)。使用前置于冰上保存。胰蛋白酶有助于细胞解离。
- 将每份样品的 10 mg 胰蛋白酶抑制剂溶于 500 µL DMEM 中(终浓度为 2% w/v)。使用前置于冰上保存。胰蛋白酶抑制剂可防止胰蛋白酶降解细胞。
- 用无菌蒸馏水将16%的预配溶液稀释,配制含0.15% Triton X-100的1%甲醛溶液。使用前置于冰上保存。1%甲醛溶液可在睾丸组织进行胰蛋白酶和DNase I处理期间配制(即铺片实验步骤1.4.7期间)。
警告:甲醛具有危险性。
- 成年雄性斑马鱼睾丸的解剖
- 安乐死处理雄性斑马鱼(> 60 dpf)的鱼置于冰水中使其安乐死。鱼可在冰水中保存至解剖前,但应尽快进行解剖。
注意:本实验采用野生型品系 AB,但其他野生型品系也应适用。在解剖前,我们将鱼置于冰水中最长可达 3 h,对实验操作未见明显影响。 - 一次用小剪刀处死一条鱼,然后使用显微剪刀沿腹侧中线剪开,以暴露体腔。
- 使用镊子解剖睾丸(参见 材料表在显微镜下以1.65倍放大倍数进行操作。解剖过程应在覆有薄层1×PBS的硅胶包被培养皿中进行。
注意:睾丸位于鳔与肠之间,其颜色比肌肉组织浅图2A)。从斑马鱼中取出的睾丸应具有两个叶状结构(图2B). - 尽可能去除睾丸上的脂肪和周围组织。然后将每份解剖得到的睾丸直接放入含有2 mL DMEM的5 mL离心管中,并置于冰上保存。
注意:在开展任何实验之前,应先掌握步骤 1.3.3 和 1.3.4。
- 安乐死处理雄性斑马鱼(> 60 dpf)的鱼置于冰水中使其安乐死。鱼可在冰水中保存至解剖前,但应尽快进行解剖。
- 睾丸细胞的分离
- 将100 mL 0.1 M蔗糖溶液预热至37 °C。
- 向含有睾丸的5 mL离心管中加入200 µL胶原酶溶液。通过反复倒置混匀溶液。
- 在32 °C条件下,将睾丸组织置于摇床中水平摇动,转速为100 rpm,持续50分钟至1小时,直至DMEM培养基变浑浊且睾丸组织呈小块状。每10分钟快速颠倒离心管一次,以促进组织解离。
- 为去除胶原酶,加入DMEM至终体积5 mL,轻轻倒置离心管数次。在约200 x g条件下离心收集睾丸组织 g 室温下静置3分钟。移除3 mL上清液,仅保留2 mL。
注意:在整个染色体铺展实验过程中,DMEM 的添加、移除和转移均使用塑料移液管进行。 - 重复步骤1.4.4两次,共进行3次DMEM洗涤。每次DMEM洗涤之间不要重悬沉淀。最后一次DMEM洗涤后,移除4 mL上清液,仅保留1 mL。
- 加入1 mL DMEM,使总体积达到2 mL,再加入200 µL胰蛋白酶溶液和20 µL DNase I溶液。轻轻倒置离心管数次以混匀溶液。
- 在32 °C下以100 rpm水平摇动试管5–15分钟,直至DMEM溶液中仅剩少量团块。每5分钟快速倒置试管一次,以促进解离。
注意:振荡后团块应明显变小。 - 加入 500 µL 胰蛋白酶抑制剂溶液和 50 µL DNase I 溶液。轻轻颠倒离心管数次以混匀,然后在约 200 x g 条件下短暂离心。 g 室温下离心3分钟,以去除可能附着在管盖或管壁上的液体或团块。
- 将离心管置于冰上,用塑料移液管反复吹打细胞悬液2分钟,以促进残留细胞团块的解离。注意勿使细胞悬液进入移液管的橡胶头内。2分钟后,将悬液重新转移回5 mL离心管中。
- 用预冷的DMEM润湿一个100 µm细胞滤筛,并将其置于冰上的50 mL离心管管口。
- 使用塑料移液管将细胞悬液逐滴通过滤器。注意避免细胞悬液进入移液管的吸头部分。
- 使用塑料移液管将滤液转移至新的5 mL离心管中,并加入DMEM至终体积为5 mL。务必用干净的塑料移液管收集附着在滤膜底面的汇集细胞。在约200 x g条件下离心收集细胞沉淀。 g 室温下放置5分钟。
- 尽可能去除上清液,切勿扰动沉淀。
- 向沉淀中直接加入5 µL DNase I溶液。然后通过轻轻刮擦管子外底部4-5次,沿一个空的1.5 mL微量离心管架将沉淀与DNase I溶液混匀。刮擦过于剧烈可能导致回收的涂布量减少。
- 加入DMEM至终体积为5 mL,通过反复倒置试管数次来混匀溶液。第一次DNase I处理后仍常见有团块存在。
- 以约 200 x g 离心收集细胞悬液 g 室温下持续2分钟。
- 重复步骤 1.4.13–1.4.16 额外 1–3 次,直至重新悬浮的沉淀物在加入 DMEM 后不再发生结块。最后一次离心后,尽可能吸除上清液,切勿扰动沉淀。
注意:每次DNase I处理后,沉淀物体积预计会减小;DNase I洗涤次数超过4次可能导致细胞大量丢失。若DNase I处理步骤后未观察到可见沉淀,请勿继续后续操作。废弃任何未使用的DNase I。 - 加入1 mL 1×PBS,通过轻轻刮擦管子外底部沿一个空的1.5 mL离心管架来重悬沉淀。
- 将细胞悬液在约200 x g条件下离心成团 g 5 分钟后,尽可能吸除上清液,注意不要扰动沉淀。
- 用剪刀剪去200 µL枪头末端约3 mm以扩大开口,然后用该改造枪头反复吹打,将沉淀重悬于约80 µL的0.1 M蔗糖溶液中。将细胞悬液于室温放置3分钟。
- 在载玻片上铺展染色体
- 用移液枪枪头侧面将100 µL含0.15% Triton X-100的1%甲醛溶液均匀涂布于一张载玻片上。然后,将18 µL蔗糖细胞悬液以垂直于载玻片长边的直线方式加至载玻片中央。将载玻片前后倾斜约60°,以促进细胞悬液扩散至四个角落。
- 将载玻片平放于略微打开的湿盒内图3) 以防止甲醛溶液干燥。将湿盒置于暗抽屉中过夜。
- 从湿盒中取出盖子,让载玻片完全干燥。
- 将载玻片放入 Coplin 染色缸中,然后加入蒸馏水至淹没载玻片,于室温下轻轻振荡孵育 5 分钟。
注意:可将载玻片以锯齿状排列方式放入考普林瓶中,以最大化每个考普林瓶中可容纳的载玻片数量。确保每张载玻片之间留有足够空间,以便液体能够流通。 - 倒出水后,用1:250润湿剂填充容器(参见 材料表用温和振荡在室温下洗涤2次,每次5分钟。
- 让载玻片完全干燥,并于 -20 °C 保存,直至染色。
注意:我们储存玻片的最长时间约为2个月,超过此时间染色体即会出现可察觉的降解。
2. 端粒PNA探针染色
注意:可以使用与端粒重复序列(CCCTAA)互补的荧光标记端粒PNA探针来染色端粒重复序列。PNA探针具有中性骨架,可增强与带负电荷DNA的杂交亲和力,从而几乎不产生背景信号。端粒探针杂交步骤为可选步骤。若要进行抗体染色,请按照步骤2.2.2中的说明用1×PBS重新水合切片,然后直接进入"一抗染色"步骤。
- 在开始端粒染色前制备PNA探针试剂
注意:为方便起见,建议按以下指定数量配制溶液,以供后续实验使用。储存条件见下文。- 配制2 L 20倍浓度的氯化钠-柠檬酸钠(SSC)溶液,终浓度为3 M NaCl和0.3 M柠檬酸钠。经高压灭菌后,室温保存。
- 配制50 mL预杂交溶液,含转移RNA,终浓度为50%甲酰胺、5倍SSC、50 µg/mL肝素、500 µg/mL转移RNA、0.1% Tween 20,并加入460 µL 1 M柠檬酸,调节溶液pH至约6。于-20 °C保存。
警告:甲酰胺具有危害性。请在通风橱中配制该溶液。 - 按步骤2.1.2相同方法配制50 mL预杂交溶液,但不添加转移RNA。于-20 °C保存。
- PNA端粒探针TelC-Cy3和TelC-Alexa647按厂家说明书以甲酰胺配制成50 µM的储存液。将PNA探针分装为8 µL每份,于-80 °C保存。
- 使用无菌去离子水配制至少1 mL浓度为100 mg/mL的牛血清白蛋白(BSA)储存液。于-20 °C保存。若配制量超过1 mL,应将溶液分装为每份1 mL保存。
- 在2 mL离心管中,向1.965 mL含转移RNA的预杂交溶液中加入27 µL 100 mg/mL BSA和8 µL 50 µM PNA探针,配制成2 mL杂交溶液。避光保存于-20 °C。
- PNA端粒探针染色
- 将杂交炉预热至82 °C。
- 在室温下的湿盒中,每张载玻片加入500 µL 1倍PBS,孵育5分钟以重新水化。用移液枪头轻触载玻片边缘,吸除PBS。
- 将载玻片和装有杂交溶液的2 mL离心管直接置于预热的杂交炉金属板上,加热2分钟。
- 保持载玻片在金属板上,每张载玻片加入100 µL杂交溶液,然后用经裁剪的塑料盖玻片(约25 mm × 75 mm,取自高压灭菌袋)覆盖。在82 °C下孵育10–12分钟。
- 将载玻片转移至湿盒中,避光于37 °C孵育16–24小时。自此步骤起,包括一抗和二抗染色过程,所有操作均需避光,以防荧光信号发生光漂白。孵育期间可进行步骤2.2.9,准备抗体染色所需试剂。
- 用移液枪头小心移除盖玻片。
注意:为便于移除盖玻片,可在抬起盖玻片时,轻轻向载玻片与盖玻片之间加入约50–100 µL不含转移RNA的预杂交溶液。 - 每张载玻片上加入500 µL不含转移RNA的预杂交溶液,置于湿盒中室温孵育15分钟。用移液枪头轻触载玻片边缘,吸除溶液。
注意:不含转移RNA的预杂交溶液在加入载玻片前无需预热。 - 每张载玻片上加入500 µL由1倍PBS配制的50%不含转移RNA的预杂交溶液,置于湿盒中室温孵育15分钟。用移液枪头轻触载玻片边缘,吸除溶液。
- 将载玻片转移至Coplin染色缸中,用1倍PBS轻轻振荡洗涤3次,每次15分钟,室温进行。
- 从Coplin染色缸中取出载玻片,轻触边缘吸除多余PBS,随后进入步骤3.2 "一抗染色"。
3. 抗体染色
注意:针对已知减数分裂蛋白产生的抗体可用于染色体铺展制备样品中的免疫荧光检测。如果一抗来自不同动物,则使用与不同荧光染料偶联的二抗可实现多种蛋白的同时染色。
- 在进行一抗和二抗染色的当天配制以下溶液
- 用1x PBS和0.1% Triton X-100溶于去离子水中,配制1 L的PBT溶液。室温保存。此溶液可提前大量配制,用于后续的铺片实验。
- 每张载玻片准备500 µL抗体封闭液,终浓度为2 mg/mL BSA和2%山羊血清,溶于PBT中。
- 每张载玻片用100 µL一抗或二抗混合液,将适当浓度的抗体加入抗体封闭液中(参见材料表)。
注:抗体浓度可能需要通过实验确定。在讨论部分,我们列出了已成功使用(含稀释比例/浓度)以及未成功使用的抗体列表。
- 一抗染色
注:通常使用兔抗人SCP3和鸡抗斑马鱼Sycp1进行一抗染色。- 从载玻片上除去多余的PBS后,每张载玻片加入500 µL抗体封闭液,并将载玻片置于室温下的湿盒中,封闭至少20分钟。
- 将载玻片侧边轻触纸巾,去除抗体封闭液。
- 每张载玻片加入100 µL含一抗的抗体混合液,并用灭菌袋材料制成的塑料盖玻片覆盖。将载玻片置于4 °C湿盒中过夜孵育。
- 用移液器枪头小心移除塑料盖玻片,并在Coplin染色缸中用1x PBS在室温下轻轻振荡洗涤2次,每次至少5分钟。
- 将载玻片侧边轻触纸巾,去除PBS。
- 二抗染色
注:使用偶联不同荧光染料的山羊抗兔和抗鸡二抗,按1:1000浓度进行染色。- 每张载玻片加入500 µL抗体封闭液,并将载玻片置于室温湿盒中封闭至少5分钟。
- 将载玻片侧边轻触纸巾,去除抗体封闭液。
- 每张载玻片加入100 µL含二抗的抗体混合液,并用灭菌袋材料制成的塑料盖玻片覆盖。将载玻片置于37 °C湿盒中孵育1小时。
- 用移液器枪头移除塑料盖玻片,并在Coplin染色缸中用1x PBS在室温下轻轻振荡洗涤3次,每次至少5分钟。
- 在Coplin染色缸中用去离子水在室温下轻轻振荡冲洗1次,至少2分钟。
- 将载玻片倾斜放置,自然晾干,以促进干燥。
- 在玻璃盖玻片(24 mm × 60 mm)上以3个等距点的形式,每点加入20 µL抗荧光淬灭封片剂,可含或不含DAPI(参见材料表)。
- 将载玻片正面朝下置于玻璃盖玻片上,然后用指甲油在边缘密封,覆盖载玻片的磨砂端。
- 将制备好的载玻片于4 °C保存,待成像时使用。
访问受限。请登录或开始试用以查看此内容。
结果
我们已概述了一种制备和观察斑马鱼精母细胞铺展样品的方法。若操作得当,该方法可获得铺展良好且无重叠的细胞核。为获得此类细胞核,需使用适量的起始材料(即睾丸),并在胰蛋白酶中处理足够时间,同时进行充分的DNase I消化处理。随后可对这些铺展样品进行端粒和减数分裂蛋白染色,以研究减数分裂前期I的进程。图1展示了前期I不同阶段染色体特征染色的铺展样品示例。图4展示了一个铺展不良的细胞核示例。
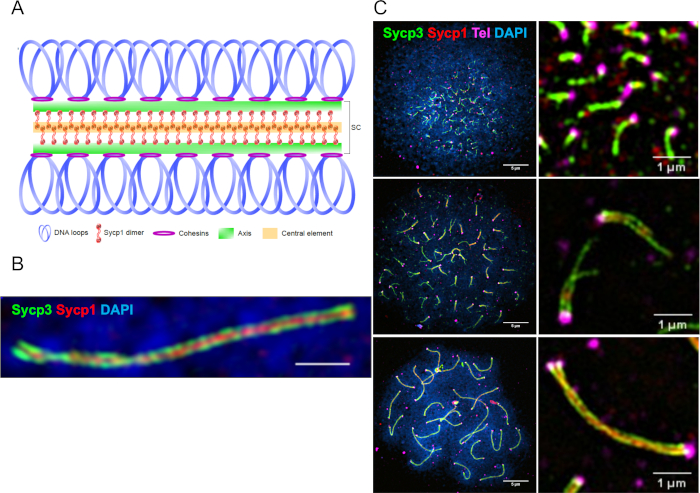
图1:采用P...
访问受限。请登录或开始试用以查看此内容。
讨论
本文介绍了检测斑马鱼睾丸中分离的精母细胞核表面铺展样本中端粒及染色体相关蛋白定位的方法。我们预计,通过调整睾丸大小参数,这些方法也可适用于其他硬骨鱼类物种精母细胞的分析。
尽管目前针对斑马鱼减数分裂蛋白产生的抗体较少,但我们成功使用了以下针对人(h)或小鼠(m)蛋白产生的抗体。本实验室已在鸡体内制备了针对斑马鱼Sycp1蛋白(zfSycp1)的抗体,该抗体可稳定标记联会复合体(SC),但该蛋白仅存在于从早期偶线期到晚期粗线期之间,即染色体完全联会的阶段。兔抗人SYCP3抗体(anti-hSYCP3)在检测从细线期到粗线期末期联会复合体解聚前的减数分裂染色体轴时表现非常可靠。图1B,C值得注意的是,我们未观察到典型的双线期,即由Sycp3定义全长轴且Sycp1缺失的阶段,这表明与小鼠不同,染色体轴可能在粗线期结束后即被降解3其他商业可得的针对小鼠、人或斑马鱼减数分裂蛋白且已获得阳性结果的抗体还包括DNA重组/复制相关的兔抗hRAD51和兔抗hR...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
感谢Trent Newman和Masuda Sharifi对本文稿的评论,以及An Nguyen在优化斑马鱼减数分裂细胞染色体铺展与染色方法方面的帮助。本研究工作由授予S.M.B.的美国国立卫生研究院(NIH)R01 GM079115项目资助。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1.5 mL 离心管 | 多个商业品牌可选 | ||
| 1.5 mL 微量离心管架 | 多个商业品牌可选 | ||
| 16% 甲醛,无甲醇 | ThermoFisher Scientific | 28908 | |
| 2 mL | 多个商业品牌可选 | ||
| 24 × 50 mm 玻璃盖玻片 | Corning | 2980-245 | |
| 24 × 60 mm 玻璃盖玻片 | VWR International | 16004-312 | |
| 50 mL 锥形离心管 | ThermoFisher Scientific | 363696 | |
| 高压灭菌袋 | 多个商业品牌可选 | 用于制作塑料盖玻片。 | |
| 牛血清白蛋白(BSA) | Fisher Scientific | BP1605-100 | 用无菌蒸馏水配制 100 mg/mL 储存液。 |
| 细胞筛,100 µm | Fisher Scientific | 08-771-19 | |
| CF405M 山羊抗鸡 IgY(H+L),高度交叉吸附 | Biotium | 203775-500uL | 使用稀释比例为 1:1000 |
| 鸡抗 zfSycp1 抗体 | Burgess 实验室制备 | N/A | 使用稀释比例为 1:100 |
| 来自Clostridium histolyticum 的胶原酶 | Sigma-Aldrich | C0130-500MG | |
| 考普林瓶(Coplin jar) | 多个商业品牌可选 | ||
| DNase I,牛胰腺来源,II 型 | Roche Diagnostics | 10104159001 | |
| 杜尔贝科改良伊格尔培养基(DMEM) | Fisher Scientific | MT10014CV | |
| Dumont No. 5 镊子 | Fine Science Tools | 11252-30 | 解剖睾丸时需要两把。 |
| Eppendorf 管,5 mL | VWR International | 89429-308 | |
| 甲酰胺 | Fisher Scientific | BP228-100 | |
| 山羊抗鸡 IgY(H+L)二抗,Alexa Fluor 488 标记 | ThermoFisher Scientific | A-11039 | 使用稀释比例为 1:1000 |
| 山羊抗鸡 IgY(H+L)二抗,Alexa Fluor 594 标记 | ThermoFisher Scientific | A-11042 | 使用稀释比例为 1:1000 |
| 山羊抗人 DMC1 抗体 | Santa Cruz Biotechnology | sc-8973 | 在我们实验条件下无效 |
| 山羊抗兔 IgG(H+L)交叉吸附二抗,Alexa Fluor 488 标记 | ThermoFisher Scientific | A-11008 | 使用稀释比例为 1:1000 |
| 山羊抗兔 IgG(H+L)交叉吸附二抗,Alexa Fluor 594 标记 | ThermoFisher Scientific | A-11012 | 使用稀释比例为 1:1000 |
| 山羊血清 | Sigma-Aldrich | G9023-10mL | |
| 肝素钠盐 | Sigma-Aldrich | H3393-100KU | |
| 湿盒(Humidity chamber) | Fisher Scientific | 50-112-3683 | |
| 杂交炉(Hybridization Oven) | VWR International | 230401V(型号 5420) | |
| 摇床培养箱(Incubator Shaker) | New Brunswick Scientific | 型号 Classic C25 | |
| KCl | Fisher Scientific | P217-500 | |
| Kimwipes 纸巾 | Kimberly-Clark Professional | 34155 | 用于湿盒 |
| KH2PO4 | Fisher Scientific | P285-500 | |
| 显微镜 | 多个商业品牌可选 | 任何能够提供至少约 1.65 倍放大倍数的标准显微镜均可满足要求。 | |
| 显微镜载玻片 | Fisher Scientific | 12-544-7 | |
| 鼠抗仓鼠 SCP3 抗体 | Abcam | ab97672 | 在我们实验条件下无效 |
| 鼠抗人 MLH1 抗体 | BD Biosciences | 550838 | 在我们实验条件下无效 |
| 鼠抗人 RPA 抗体 | Sigma-Aldrich | MABE285 | 在我们实验条件下无效 |
| Na2HPO4 · 7 H2O | Fisher Scientific | S373-500 | |
| NaCl | Fisher Scientific | S271-3 | |
| Photo-Flo 200 溶液 | Electron Microscopy Sciences | 74257 | |
| 塑料移液管 | 多个商业品牌可选 | ||
| PNA TelC-Alexa647 | PNA Bio Inc | F1013 | 按制造商说明配制。 |
| PNA TelC-Cy3 | PNA Bio Inc | F1002 | 按制造商说明配制。 |
| ProLong Diamond 抗荧光淬灭封片剂 | ThermoFisher Scientific | P36970 | |
| 含 DAPI 的 ProLong Diamond 抗荧光淬灭封片剂 | ThermoFisher Scientific | P36971 | |
| 兔抗人 RPA 抗体 | Bethyl | A300-244A | 使用稀释比例为 1:300 |
| 兔抗人 SCP3 抗体 | Abcam | ab150292 | 使用稀释比例为 1:200 |
| 兔抗人 Rad51 抗体 | GeneTex | GTX100469 | 使用稀释比例为 1:300 |
| 柠檬酸钠 | Fisher Scientific | S279-500 | |
| 蔗糖 | Fisher Scientific | S5-500 | |
| Supercut 剪刀,30° 角,10 cm | Fisher Scientific | 50-822-353 | 也可使用任意小型剪刀。 |
| Sylgard 试剂盒 | Fisher Scientific | NC9897184 | 按制造商说明配制。 |
| Triton X-100 | Fisher Scientific | BP151-100 | 用无菌蒸馏水稀释配制成 20% 工作液。室温保存。Triton X-100 在水中稀释时会形成沉淀,沉淀过夜溶解。 |
| 胰蛋白酶 | Worthington Biochemical | LS003708 | |
| 鸡蛋清来源的胰蛋白酶抑制剂 | Sigma-Aldrich | T9253-500MG | |
| Tween 20 | Bio-Rad | 170-6531 | 用无菌蒸馏水稀释配制成 20% 工作液。室温保存。 |
| Vannas 弹簧剪刀 - 4 mm(微型剪刀) | Fine Science Tools | 15018-10 |
参考文献
- Nagaoka, S. I., Hassold, T. J., Hunt, P. A. Human aneuploidy: mechanisms and new insights into an age-old problem. Nature Reviews Genetics. 13, 493-504 (2012).
- Zickler, D., Kleckner, N. Recombination, Pairing, and Synapsis of Homologs during Meiosis. Cold Spring Harbor Perspectives in Biology. 7, (2015).
- Blokhina, Y. P., Nguyen, A. D., Draper, B. W., Burgess, S. M. The telomere bouquet is a hub where meiotic double-strand breaks, synapsis, and stable homolog juxtaposition are coordinated in the zebrafish, Danio rerio. PLoS Genetics. 15, e1007730(2019).
- Saito, K., Sakai, C., Kawasaki, T., Sakai, N. Telomere distribution pattern and synapsis initiation during spermatogenesis in zebrafish. Developmental Dynamics. 243, 1448-1456 (2014).
- Oliver-Bonet, M., Turek, P. J., Sun, F., Ko, E., Martin, R. H. Temporal progression of recombination in human males. Molecular Human Reproduction. 11, 517-522 (2005).
- Gruhn, J. R., Rubio, C., Broman, K. W., Hunt, P. A., Hassold, T. Cytological studies of human meiosis: sex-specific differences in recombination originate at, or prior to, establishment of double-strand breaks. PLoS One. 8, e85075(2013).
- Pratto, F., et al. Recombination initiation maps of individual human genomes. Science. 346, 1256442(2014).
- Brown, P. W., et al. Meiotic synapsis proceeds from a limited number of subtelomeric sites in the human male. American Journal of Human Genetics. 77, 556-566 (2005).
- Poss, K. D., Nechiporuk, A., Stringer, K. F., Lee, C., Keating, M. T. Germ cell aneuploidy in zebrafish with mutations in the mitotic checkpoint gene mps1. Genes and Development. 18, 1527-1532 (2004).
- Saito, K., Siegfried, K. R., Nüsslein-Volhard, C., Sakai, N. Isolation and cytogenetic characterization of zebrafish meiotic prophase I mutants. Developmental Dynamics. 240, 1779-1792 (2011).
- Sansam, C. L., Pezza, R. J. Connecting by breaking and repairing: mechanisms of DNA strand exchange in meiotic recombination. Febs Journal. 282, 2444-2457 (2015).
- Feitsma, H., Leal, M. C., Moens, P. B., Cuppen, E., Schulz, R. W. Mlh1 Deficiency in Zebrafish Results in Male Sterility and Aneuploid as Well as Triploid Progeny in Females. Genetics. 175, 1561-1569 (2007).
- Dia, F., Strange, T., Liang, J., Hamilton, J., Berkowitz, K. M. Preparation of Meiotic Chromosome Spreads from Mouse Spermatocytes. Journal of Visualized Experiments. (129), e55378(2017).
- Moens, P. B. Zebrafish: chiasmata and interference. Genome. 49, 205-208 (2006).
- Lisachov, A. P., Zadesenets, K. S., Rubtsov, N. B., Borodin, P. M. Sex chromosome synapsis and recombination in male guppies. Zebrafish. 12 (2), 174-180 (2015).
- Ocalewicz, K., Mota-Velasco, J. C., Campos-Ramos, R., Penman, D. J. FISH and DAPI staining of the synaptonemal complex of the Nile tilapia (Oreochromis niloticus) allow orientation of the unpaired region of bivalent 1 observed during early pachytene. Chromosome Research. 17 (6), 773(2009).
访问受限。请登录或开始试用以查看此内容。
重印与许可
