在本实验方案中,我们描述了对与先天性心脏缺陷相关的小鼠发育表型进行定性和定量分析的步骤。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
先天性心脏病(CHD)是人类最常见的出生缺陷类型,影响高达1%的活产婴儿。然而,目前对CHD的根本病因仍了解甚少。发育中的小鼠是研究CHD的宝贵模型,因为小鼠与人类在心脏发育程序上具有高度保守性。本实验方案详细描述了如何获得特定妊娠阶段的小鼠胚胎,心脏组织的分离与保存方法以用于后续处理,通过组织学手段定量鉴定常见CHD类型(如室间隔缺损、房间隔缺损、动脉导管未闭)的方法,以及用于测量常见心肌致密化表型的定量组织形态学分析方法。这些方法系统阐述了样本制备、采集和分析的全部步骤,使科研人员能够准确且可重复地测量CHD。
引言
先天性心脏病(CHD)是人类最常见的出生缺陷类型,也是出生缺陷相关死亡的首要原因1,2,3,4,5,6。尽管约90%的CHD新生儿能够存活,但该病常伴随显著的发病率和长期的医疗干预,给患者生活及医疗系统带来沉重负担7,8,9,10。除单纯的遗传因素外,CHD的病因尚不明确4。根据美国心脏协会及其他来源的数据,约56%-66%的CHD病例病因尚未明确2,3,4,11。已知的致病因素包括基因突变、拷贝数变异(CNVs)、新生单核苷酸变异以及非整倍体。流行病学研究提示,环境和饮食因素也可能在CHD的发生中起重要作用,例如母体生活方式2,12、经济贫困和种族差异13;此外,关于饮食因素的研究也表明叶酸11,14和生物活性脂质视黄酸15,16可能具有影响。深入研究CHD及其他心血管缺陷的机制与病因,对于开发预防策略和新型治疗方案具有重要意义1,4,17,18,19。
发育中的小鼠是研究哺乳动物先天性心脏病(CHD)的核心模型。然而,对于初次分析小鼠心脏的研究人员而言,某些常用方法和分析手段可能具有挑战性,例如保留心脏形态的解剖技术、发育阶段的分析以及与CHD相关缺陷的识别。本实验方案旨在为这些操作提供定性和定量的指导。因此,本方案详细说明了如何进行定时交配以获得特定妊娠阶段的胚胎,对怀孕雌鼠进行解剖以完整回收心脏(包括流出道等关联组织),心脏的固定及冷冻切片前处理,基本的组织学方法,常见心脏缺陷的定量分析,以及心肌致密化程度的定性分析——后者是多种类型先天性心脏病常见的前驱表型。
访问受限。请登录或开始试用以查看此内容。
方案
本论文中所涉及实验使用的所有动物均按照密歇根州立大学机构动物照护与使用委员会(IACUC)的动物护理指南进行处理。
1. C57BL6/J 小鼠定时交配以获取胚胎
- 当小鼠达到繁殖年龄(6-8周)时,以一雄多雌的繁殖方式将它们合笼(即每只雄鼠配两只雌鼠)。建议在下午或傍晚时段开始合笼。
注意:小鼠通常在饲养设施关闭照明后1小时内进行交配。雌鼠应在约6-8个月大时停止繁殖,雄鼠最晚不应超过12月龄使用。 - 若采用称重法判断是否受精,请将小鼠以较大群体进行配对,因为称重法会使定时交配的进程比仅监测阴栓的方法更缓慢。
- 次日上午,在8:00至12:00之间检查阴栓。务必在此时间段内完成检查。若在8:00之前进行阴栓检测,阴栓可能仍位于阴道深处而无法观察到;若在12:00之后检查,则阴栓可能已经脱落。
- 抓住雌鼠尾根部,使用移液器吸头检查阴道口。阴栓表现为黏液状屏障(图1A),在某些情况下可能较难观察。干燥结痂也是存在或曾经存在阴栓的迹象。若未见黏液状屏障(图1B),则表明该雌鼠可能未交配,或阴栓已脱落。
- 将交配发生的早晨记为e0.5。
注意:对于C57BL6/J品系小鼠,阴栓较难识别,因此有时即使未观察到阴栓,小鼠也可能已完成交配。但交配并不总能导致受孕,这在C57BL6/J小鼠中更为常见。因此,应通过监测体重变化来确认妊娠(见步骤1.4)。称重有助于识别妊娠雌鼠,并确认阴栓是否导致成功受孕。连续多晚进行交配时需谨慎。若某只雄鼠被证实善于形成阴栓,则可信赖其与同一只雌鼠连续多晚交配。 - 需注意,既往有成功繁殖记录的“经产”小鼠妊娠几率更高,因其已有成功繁殖经历。为提高获得经产个体的概率,所用雄鼠不宜过老。
- 完成阴栓检测后,对雌鼠进行称重,并在7-10天后再次称重。若体重增加超过1.73 g,则小鼠很可能已妊娠20;若体重增加低于1.73 g,则很可能与妊娠无关,应将其重新放入繁殖群体中。
注意:C57BL6/J小鼠产仔数较少(平均每胎5-6个胚胎)。称重法在大多数情况下判断妊娠是准确的,该方法的假阳性率为12.8%,并可能将3%实际妊娠的雌鼠误判为未孕20。若研究者担心目标妊娠时间较晚,可继续执行步骤1.5。 - 可选步骤:在计划进行解剖的当天,通过体表检查确认妊娠是否进展。抓住雌鼠尾根部并将其身体拉直,操作时可将小鼠置于手腕上并轻拉尾根部以固定。若雌鼠已妊娠,通常会在下腹部出现明显增重,并可触诊到若干小隆起。
注意:妊娠状态最早可在e12.5时通过触诊感知,大多数情况下在e14.5时可明确触知。由于C57BL6/J小鼠产仔数少,即使无明显体征,雌鼠仍可能已妊娠。
2. 雌性个体及胚胎心脏回收的解剖
- 在开始解剖前,于室温下配制以下溶液。
- 将乙二胺四乙酸(EDTA)溶解于磷酸盐缓冲液(PBS)中,终浓度为 0.5 mM。
注意:溶液配制完成后,建议置于冰上保存,并仅在 4 °C 条件下使用。若存在污染风险,应在使用前进行高压灭菌。 - 将多聚甲醛(PFA)溶解于 PBS 中,终浓度为 4%。
注意:溶液配制完成后,建议置于冰上保存,并仅在 4 °C 条件下使用。长期储存时应保存于 4 °C 或更低温度。PFA 溶液的浓度可根据组织样本的后续应用需求进行调整。本浓度适用于苏木精-伊红染色、免疫组织化学及免疫荧光染色。
- 将乙二胺四乙酸(EDTA)溶解于磷酸盐缓冲液(PBS)中,终浓度为 0.5 mM。
- 当雌鼠达到所需妊娠阶段时,应根据批准的动物使用指南,在规定的时间点实施安乐死。若时间点为半日(如 e15.5),应于接近中午 12 点时处死;若时间点为整日(如 e15.0),则应于接近午夜 12 点时处死。
注意:通常认为受精发生在小鼠配对当晚接近午夜时分。然而,确切的受精时间难以确定,因此妊娠时间仅为估算,并非精确值。 - 将四肢固定后,沿躯干小心地做“I”形切口,从尿道附近开始向上至胸骨。
- 子宫通常位于骨盆区域上方。小鼠子宫呈“Y”形,因此通常较长并环绕躯干。使用精细镊子的侧面以舀取动作轻轻提起并取出子宫。在最初拉出子宫时,可用精细镊子的尖端非常小心地夹住子宫表面组织。使用剪刀将子宫从体内剪下。
注意:考虑到子宫独特的“Y”形结构,务必确保完整取出整个子宫。 - 将子宫浸入预冷的 PBS(冰上)中。固定子宫一端,并将其拉直成一条直线。
- 将子宫切成若干段,每段包含一个独立的胚胎。使用精细镊子轻轻剥离胚胎。此操作使用双手各持一把镊子最为方便。取出后,立即将胚胎放入盛有 4 °C PBS-EDTA 溶液的新培养皿中。
注意:也可使用普通 PBS 溶液,但 EDTA 可防止样本发生凝集。 - 使用 Theiler 分期法21对胚胎进行分期。由于同窝胚胎之间的发育阶段可能存在差异,需对每个胚胎单独进行分期。
注意:此步骤还可为胚胎可能存在的先天性心脏缺陷提供早期判断依据。通常,先天性心脏缺陷的症状可在胚胎形态学中观察到,某些心脏疾病常伴随其他主要发育异常。 - 根据胚胎的发育年龄,可采用多种方式取出心脏。
注意:若无法确定在取出过程中流出道是否能保持完整,可选择保留比心脏更多的周围组织(以保持流出道完整,并尽量减少镊子与心脏的直接接触),或对整个胚胎进行分析。- 在解剖显微镜下,使用两对精细镊子将胚胎仰卧放置,并稳定暴露胸腔。可通过用镊子固定前肢或将前肢去除后固定躯干来实现。
- 使用第二对精细镊子的尖端,在胚胎胸骨处做切口,并沿锁骨之间延伸至脐部。开始时应做非常细微且表浅的切口,逐步深入至胸腔内部。此时心脏应刚刚可见。在进行表浅切口时,避免镊子接触心脏。
- 使用第一对镊子轻轻挤压肋骨下方稍偏尾侧的躯干,将肋骨撑开,使心脏弹出或显露出来。心脏可能需要轻微辅助才能完全暴露。操作时应使用镊子的侧面,确保镊子尖端始终不接触心脏。为保持操作区域和镊子清洁,建议在附近放置无尘擦拭纸。
- 使用镊子侧面轻轻夹住肺动脉血管,注意不要切断组织,将心脏从胸腔中拉出,随后清洁心脏。
注意:对于 e13.5 及更早期的胚胎,心脏被心包膜覆盖,必须去除心包膜才能暴露心脏。
- 在体视显微镜下拍摄心脏图像,以供后续参考。
- 将心脏在 PBS-EDTA 溶液中冲洗 1–2 分钟,随后转移至 4% PFA 溶液中固定约 45–60 分钟。若需对整个胚胎进行分析,则可过夜固定。PFA 溶液体积应为待固定组织体积的 5–6 倍。
注意:固定时间可根据后续实验需求调整。本固定时间适用于苏木精-伊红染色、免疫组织化学及免疫荧光染色。 - 用 PBS-甘氨酸溶液洗涤 5–10 分钟,重复 3 次,然后将心脏放回 PBS 中。可加入叠氮化钠或青霉素/链霉素以抑制细菌生长,保持组织完整性。心脏样本现可在 4 °C 下短期保存。
3. 组织制备
注意:组织样本可采用OCT(最佳切割温度)包埋或石蜡包埋进行制备。两种方法各有优缺点,在选择包埋方法时应根据分析目的进行权衡。
- OCT包埋
注意:此方法可能优于甲醛/石蜡包埋,因为冷冻切片可保留抗原反应性,仍可用于苏木精-伊红染色,且制片速度更快。- 配制30% (w/v) 蔗糖的PBS溶液。
- 将组织转移至含有PBS-30%蔗糖的新15 mL离心管或1.5 mL微量离心管中。初始时组织会漂浮。
- 置于4 °C冰箱中。当组织沉降至管底时即可进行OCT包埋,通常需要24–40小时。
注意:肌肉组织在冻融循环中会受到显著损伤,并丧失其天然形态。蔗糖被组织吸收后可作为冷冻保护剂,有助于更好地保存组织形态。确保管内溶液量充足,以便充分观察组织是否下沉。PBS-蔗糖溶液易受细菌污染,因此需频繁检查溶液是否浑浊,浑浊提示存在真菌或细菌过度生长。为降低污染风险,可在PBS-蔗糖溶液中添加青霉素/链霉素或叠氮化钠。 - 使用巴斯德吸管取出心脏,确保吸管开口足够宽,以免撕裂组织。必要时可用剪刀剪宽吸管口。若处理完整胚胎,则使用镊子取出样本。
注意:操作应轻柔。即使吸管开口足够大可取出心脏,吸管边缘仍可能撕裂组织。若镊子使用过于用力,可能在组织样本上留下压痕。 - 将组织在无绒擦拭纸上短暂风干。将样本按所需切片方向(如矢状面、横断面、冠状面)放置于OCT模具中。加入OCT包埋剂直至完全浸没样本,确保组织周围无气泡。
- 将模具置于-20 °C过夜或数天,随后转移至-80 °C。24小时后模具即可用于冷冻切片。以此方式保存的组织可长期储存。
- 石蜡包埋
- 使用乙醇按以下顺序对组织进行脱水:50%乙醇10分钟,70%乙醇10分钟,80%乙醇10分钟,95%乙醇10分钟,100%乙醇10分钟(重复三次)。
- 将组织依次浸入乙醇/二甲苯溶液系列:2:1乙醇/二甲苯溶液10–15分钟,1:1乙醇/二甲苯溶液10–15分钟,1:2乙醇/二甲苯溶液10–15分钟,100%二甲苯10–15分钟(重复三次)。
- 为用石蜡取代二甲苯,将组织在真空烘箱中(设定温度54–58 °C)依次浸入以下溶液:2:1二甲苯/石蜡溶液30分钟,1:1二甲苯/石蜡溶液30分钟,1:2二甲苯/石蜡溶液30分钟,100%石蜡1–2小时,再换新鲜100%石蜡1–2小时或过夜。
注意:长时间将组织加热至60 °C以上会导致石蜡聚合物降解,使组织变脆。 - 使用新鲜石蜡,将组织按所需方向包埋。
4. OCT 包埋组织的冷冻切片
- 在冷冻切片机中,如果样本之前储存在 -80 °C 冰箱中,则需将其全部放入冷冻切片机内至少 1 小时。样本应一直保留在其中,直至所有切片均已被收集。
- 确保冷冻切片机的温度设置正确。冷冻切片机腔室内的环境温度应约为 -20 °C,冷冻切片机臂的温度应约为 -24 °C。
注意:此温度可能因组织块在切片过程中的反应而有所变化。若切片不一致,可适当降低环境温度。 - 通过拉扯模具开口侧的边缘使 OCT 包埋块松动,然后在模具闭合端(模具变窄处)捏住包埋块,将其从模具中取出。
- 安装 OCT 包埋块时,从夹头中央开始,向边缘涂抹室温的 OCT。无需覆盖整个夹头表面。
- 将 OCT 包埋块(见步骤 3.1)放置在夹头上。包埋块原先紧贴模具闭合侧的边缘应朝上放置在夹头上。让夹头上的 OCT 冷冻至呈现不透明的白色,约需 5–10 分钟。
- 将夹头置于冷冻切片机臂上再冷却 5–10 分钟,使包埋块达到臂的温度。为获得平行切面,调节切片机臂,使包埋块边缘与载物台平行,并确保包埋块底边与载物台之间的距离等于其顶边与载物台之间的距离。
- 插入刀片,并调整包埋块与刀片之间的距离以进行切片。
- 以 10 µm 的厚度进行切片。持续切片直至到达目标区域,可通过手动或使用修整功能实现。
- 使用小号平头画笔和细节画笔收集切片。当模具开始被切割时,用平头画笔轻轻将切片拉向支撑架。在切割样本过程中,动作必须连续且不能停顿,尽管速度可根据样本的硬度进行调整。
- 切片过程中,使用平头画笔轻柔引导切片的移动。此时切片无需与载物台完全齐平,可允许其轻微隆起,以避免撕裂或牵拉,影响组织学质量。
注意:在切取完整胚胎时,此步骤可能尤为困难,尤其是在组织类型发生变化时。务必确保切片过程中无停顿,且画笔不要过度牵拉切片。当组织类型改变时,切片容易断裂,因此保持低温至关重要。若出现断裂问题,可降低温度或增加切片厚度。 - 当样本被完全切透但切片尚未脱离包埋块时,暂停包埋块的移动。在不移动平头画笔的情况下,使用细节画笔轻拍切片,使其平整并冻结在载物台上。
- 在移除细节画笔并完成切片前,将切片固定在原位约 10 秒。使用两把画笔轻轻将切片压平贴附于载物台,防止卷曲,并将其固定在载物台上约 20–30 秒。
- 翻转切片并再次压平贴附于载物台。将带有静电的载玻片移近,使切片被吸引并粘附到载玻片上,而无需将载玻片接触载物台。使用铅笔标记载玻片。
- 将载玻片存放在密封盒中,以防止储存期间产生冰晶。短期储存时,染色前应将载玻片保存在 -20 °C;长期储存则应置于 -80 °C。
5. 石蜡包埋组织的切片
- 切片前将包埋块置于冰上,以冷却样品。冷却后,石蜡更易切片,可获得更薄的切片。
- 使用超纯水配制 40–45 °C 的水浴。
- 将刀片装入切片机的刀架中,确保固定牢固,然后调节刀片的倾角。确认倾角正确,可按照制造商的说明进行检查。
- 将石蜡包埋块放入切片机中,确保其方向正确,使刀片能够垂直于包埋块进行切割。
- 通过试切几片确认刀片与包埋块的相对位置是否正确。操作应谨慎,以便进行必要调整。
- 修块至目标区域暴露为止。
- 按所需厚度进行切片。注意最初的几片通常会被弃去。
- 用镊子夹取切片并移入水浴中,使切片展平。必要时用镊子调整切片位置。
- 将带有静电的载玻片靠近切片,使切片被吸引并附着于载玻片上。用铅笔标记载玻片。
- 将所有收集好的载玻片放入玻片架中,在 37 °C 下干燥过夜。
6. 组织脱蜡
- 按以下顺序清洗载玻片:二甲苯中清洗 3 分钟(2 次),1:1 二甲苯/100% 乙醇溶液中清洗 3 分钟,100% 乙醇中清洗 3 分钟(2 次),95% 乙醇中清洗 3 分钟,70% 乙醇中清洗 3 分钟,50% 乙醇中清洗 3 分钟。
7. 苏木精和伊红染色
- 准备染色用载玻片。
- 若使用OCT包埋的组织,将其浸入蒸馏水中约4分钟,直至OCT完全溶解,然后晾干。
- 若使用石蜡包埋的组织,需进行脱蜡处理。参见步骤6.1。
- 将载玻片置于过滤的0.1%苏木精溶液中染色10分钟。随后将载玻片放入蒸馏水中,立即换水一次,3分钟后再次换水。
- 将载玻片置于0.5%伊红溶液中染色10秒,或浸染12次。用蒸馏水冲洗载玻片,直至伊红不再产生条纹,约2–3次浸洗。
- 依次将载玻片浸入50%乙醇10秒、75%乙醇10秒、95%乙醇30秒和100%乙醇1分钟进行脱水。再浸入二甲苯中,直至二甲苯流出顺畅,约5–7次浸洗。
- 让二甲苯自然挥发,然后使用折射率接近玻璃的快速干燥封片介质进行封片。
8. 常见心脏缺陷的定性分析
- 使用倒置显微镜或体视显微镜及其配套相机拍摄所有样品的图像。根据所分析缺陷的类型,拍摄宏观或微观图像。宏观图像可在低于10倍的放大倍数下拍摄,而微观图像应在40倍或更高放大倍数下拍摄。本文所拍摄的照片使用体视显微镜在5倍放大倍数下获取,以及使用倒置显微镜配备40倍干镜(镜头数值孔径N.A.为0.55)获取。
注意:宏观图像可作为良好的起点,因其可提供整个心脏的视野(图3)。当识别出特定模式后,可进一步聚焦于特定区域并深入分析。 - 将所有图像并排排列在计算机屏幕上。将对照组样品的所有图像置于屏幕一侧,实验组样品的所有图像置于另一侧。建议每次仅分析一个处理组。
- 从心脏常见缺陷发生的重点区域开始,寻找不同处理组之间的表型差异。具体观察内容取决于图像是宏观的(显示心脏的大体解剖结构)还是微观的(显示心脏组织的显微解剖结构)。
- 开始寻找常见的宏观心脏缺陷,例如室间隔缺损(图2A)、房间隔缺损(图2B)和动脉导管未闭(图2C)。这些缺陷在心脏的横断面视图中最易观察。
- 为识别间隔缺损,建议观察多个切片,因为缺陷可能仅在一个组织切面中可见,而在另一个切面中不可见。
注意:有时缺陷并非间隔缺失,而是间隔上存在孔洞。因此需仔细区分撕裂与真正的间隔缺损。通过检查特定区域内相邻切片之间的一致性,可确认该异常是否为真实缺陷而非切片过程中造成的撕裂。 - 为识别流出道缺陷(如动脉导管未闭),应利用多个连续切片追踪主要血管离开心脏的路径,并构建主要血管之间的相对位置图像。示例见图2C。
注意:某些异常可能与胚胎的发育阶段有关(例如,动脉导管通常在出生后不久关闭;室间隔直至约e14.5才完全闭合)。图中未包含的其他常见宏观心脏缺陷包括永存动脉干(可在e16.5及以后最易检测)、双出口右心室(DORV,可在心脏进入流出道的切片中检测)以及主动脉骑跨22。一种常见的微观心脏缺陷为心肌致密化程度降低(图4)。
9. 使用苏木精和伊红染色组织对心肌致密化程度进行定量分析
- 利用染色组织样本的宏观视图(图4A),确定一个感兴趣的区域,以40倍放大倍数进行成像(图4B)。本文中使用左心室壁。将图像以所需格式保存;本文中图像保存为.tif文件。
- 在ImageJ软件中打开图像。
- 将图像设置为8位。此操作可使图像在下一步中使用阈值工具23,24。具体操作为选择“图像 | 类型 | 8位”。
- 设置图像的阈值。此步骤的目的是仅选择代表背景的像素,排除代表组织的像素23,24。
注意:此表面积将在后续步骤中被减去。正确的阈值应选择研究者希望从肌肉组织表面积中排除的像素。因此,最终结果应包含灰度显示的组织,而背景区域被选中。- 点击“ImageJ | 图像 | 调整 | 阈值”。移动上方滑块以调整阈值。在选定所需区域后,关闭阈值调整窗口,不再进行其他更改21。
- 使用多边形选区工具选择组织所占据的空间。仔细确保轮廓准确追踪组织边界,因为不精确的描边会导致测量结果错误。
- 在ImageJ中调整测量设置,使软件仅测量第9.4步中使用阈值工具所选中的像素区域23。操作路径为:“ImageJ | 分析 | 设置测量 | 面积 和 限制于阈值”。仅选择面积 和 限制于阈值。
- 测量高亮像素的面积。操作路径为:“ImageJ | 分析 | 测量”。该数值代表负空间的面积。
- 测量整个感兴趣区域的面积。即使用多边形选区工具所选中的区域。操作路径为:“ImageJ | 分析 | 设置测量 | 面积”。仅选择面积,并取消选择限制于阈值。然后执行测量,选择“ImageJ | 分析 | 测量”。
- 计算实际肌肉组织在感兴趣区域内所占的面积。用整个感兴趣区域的面积减去负空间的面积。该数值即为肌肉组织的面积。
- 计算肌肉致密指数(MCI)。将肌肉组织的面积除以感兴趣区域的面积。
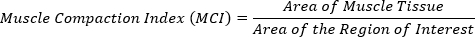
MCI值越大,表示肌肉越致密。这些MCI值可用于统计分析,以检验不同处理组之间肌肉致密程度是否存在显著差异(图4C)。
访问受限。请登录或开始试用以查看此内容。
结果
比较了在两种不同环境下发育的心脏的肌肉致密化指数,即对照组与实验组。这些方案用于对肌肉组织的致密化程度进行定量分析,从而允许开展统计学分析。结果显示,与在非实验条件下发育的胚胎相比,实验组心脏的肌肉致密化程度显著降低。
若观察时间似乎不准确,则丢弃相应胚胎。尽管胚胎生长迟缓可能是实验处理所致,且胚胎发育进程存在个体差异,但通过合理安排交配时间,足以确保胚胎发育时序的准确性。胚胎分期采用Theiler分期法21。若切片不一致,或存在明显撕裂或折叠,则视为切片质量不佳。染色应提供足够的对比度以分辨组织边缘,但不应过深而致使细胞结构无法分辨。随后使用倒置显微镜和40倍物镜对切片进行成像。MCI值使用ImageJ软件和Microsoft Excel计算,并通过T检验对这些MCI值进行统计分析。
访问受限。请登录或开始试用以查看此内容。
讨论
本方案探讨了胚胎心脏中心脏发育分析所涉及的技术。该方法的一些局限性包括预备技术所需的动手灵巧性,这可能需要练习,以及显微镜成像操作的熟练程度。如果在冷冻切片机上获得的切片杂乱不清,则苏木精-伊红染色将不清晰;或者如果显微镜拍摄的图像照明不良,则ImageJ软件所用的方法将无法奏效。ImageJ软件阈值功能的一个局限性在于,它会根据像素值选择位于阈值一端的像素。因此,任何位于阈值错误一侧的像素都可能在计算中被错误地包含或排除。最终,在将本方案应用于研究时,必须进行必要的故障排查。
如果心脏提取过于困难,可考虑跳过至步骤 2.8。此外,可考虑从胸腔中取出除心脏和肺脏以外的更多组织。这样目标区域更大,更易于操作,同时可最大限度减少心脏与精细镊子之间的直接接触。在进行冷冻切片时,实验样本应始终与对照样本直接比较。只要操作误差在所有样本中保持一致,这种比较方式可在一定程度上容忍操作偏差。为尽量减少人为误差并避免假阳性结果,务必确保从各处理组中获取可比的切片。例如,若有多人参与切片制备,应确保每位操作者为对照组和所有处理组制备数量相等的切片,而非仅针对某一亚组。最后,在 ImageJ 中进行图...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何披露事项需要报告。
致谢
Aguirre 实验室由美国国立卫生研究院下属的国家心肺血液研究所资助,资助编号为 K01HL135464,同时由美国心脏协会资助,资助编号为 19IPLOI34660342。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 15 mL 圆锥形离心管 | Fisher Scientific | # 1495970C | |
| C57BL/6J 小鼠 | Jackson Labs | C57BL/6J - stock 000664 | |
| 柯普林染色缸(x6) | VWR Scientific | # 25457-006 | |
| 盖玻片 24×50 mm #1.5 | VWR Scientific | # 48393-241 | |
| 冷冻切片机 - Leica CM3050S | Leica | N/A | |
| 解剖皿 | Fisher Scientific | # 50930381 | |
| Dumont #5 精细镊子(x2) | Fine Science Tools | # 11254-20 | |
| 伊红 Y 溶液 | Millipore Sigma | # HT110116-500ML | |
| 乙醇(纯度,200 proof) | Fisher Scientific | # BP2818-500 | |
| 乙二胺四乙酸(EDTA) | Millipore Sigma | # E9884-100G | |
| Eukitt 封片剂 | Millipore Sigma | # 03989-100ML | |
| 精细剪刀 | Fine Science Tools | # 14060-10 | |
| 荧光体视显微镜 Leica M165 FC | Leica | N/A | |
| 甘氨酸 | Millipore Sigma | # 410225-250G | |
| Graefe 镊子 | Fine Science Tools | # 11052-10 | |
| Graphpad Prism 8 软件 | Graphpad | ||
| ImageJ 软件 | ImageJ | ||
| Kimwipes 擦镜纸 | Fisher Scientific | # 06666A | |
| 梅耶苏木精染液 | Millipore Sigma | # MHS16-500ML | |
| 微量移液器吸头 - p200 | Fisher Scientific | # 02707448 | |
| Microsoft Excel 软件 | Microsoft | ||
| OCT 包埋剂 | VWR Scientific | # 102094-106 | |
| Olympus CkX53 显微镜 | Olympus | ||
| 画笔(至少 2 支) | |||
| 多聚甲醛 | VWR Scientific | # 0215014601 | 配制成 4% 溶液(溶于 PBS) |
| 巴斯德吸管 | Fisher Scientific | # 13-711-7M | |
| 青霉素-链霉素 | ThermoFisher Scientific | # 15140122 | |
| 磷酸盐缓冲液(PBS) | ThermoFisher Scientific | # 70011044 | 使用前从 10x 稀释至 1x |
| 天平 | Mettler Toledo | # MS1602TS | |
| 天平 | Mettler Toledo | # MS105 | |
| 手术刀柄 #3 | VWR Scientific | # 10161-918 | |
| 手术刀片 | VWR Scientific | # 21909-612 | |
| 方形模具 | VWR Scientific | # 100500-224 | 用于 OCT 包埋模具 |
| 蔗糖 | Millipore Sigma | # S9378-500G | |
| Superfrost Plus 载玻片 | Fisher Scientific | # 1255015 | |
| 外科剪刀 | Fine Science Tools | # 14002-14 | |
| Tissue-Tek Accu-Edge 一次性切片刀片 | VWR Scientific | # 25608-964 | |
| 便携式天平 | Acculab | VIC 5101 | |
| 二甲苯 | Millipore Sigma | 214736-1L |
参考文献
- Kathiresan, S., Srivastava, D. Genetics of human cardiovascular disease. Cell. 148 (6), 1242-1257 (2012).
- Sun, R., Liu, M., Lu, L., Zheng, Y., Zhang, P. Congenital Heart Disease: Causes, Diagnosis, Symptoms, and Treatments. Cell Biochemistry and Biophysics. 72 (3), 857-860 (2015).
- Hoffman, J. I. E., Kaplan, S. The incidence of congenital heart disease. Journal of the American College of Cardiology. 39 (12), 1890-1900 (2002).
- Fahed, A. C., Gelb, B. D., Seidman, J. G., Seidman, C. E. Genetics of congenital heart disease: The glass half empty. Circulation Research. 112 (4), 707-720 (2013).
- Pelech, A. N., Broeckel, U. Toward the etiologies of congenital heart diseases. Clinics in Perinatology. 32 (4), 825-844 (2005).
- Zaidi, S., Brueckner, M. Genetics and Genomics of Congenital Heart Disease. Circulation Research. 120 (6), 923-940 (2017).
- Kenny, L. A., et al. Transplantation in the single ventricle population. Annals of Cardiothoracic Surgery. 7 (1), 152-159 (2018).
- Navaratnam, D., et al. Exercise-Induced Systemic Venous Hypertension in the Fontan Circulation. The American Journal of Cardiology. 117 (10), 1667-1671 (2016).
- De Leval, M. R., Deanfield, J. E. Four decades of Fontan palliation. Nature Reviews Cardiology. 7 (9), 520-527 (2010).
- Buckberg, G. D., Hoffman, J. I. E., Coghlan, H. C., Nanda, N. C. Ventricular structure-function relations in health and disease: part II. Clinical considerations. European Journal of Cardio-Thoracic Surgery : Official Journal of the European Association for Cardio-thoracic Surgery. 47 (5), 778-787 (2015).
- Jenkins, K. J., et al. Noninherited risk factors and congenital cardiovascular defects: Current knowledge - A scientific statement from the American Heart Association Council on Cardiovascular Disease in the Young. Circulation. 115 (23), 2995-3014 (2007).
- Botto, L. D., et al. Lower rate of selected congenital heart defects with better maternal diet quality : a population-based study. Archives of Disease in Childhood - Fetal and Neonatal Edition. 101 (1), F43-F49 (2016).
- Knowles, R. L., et al. Ethnic and socioeconomic variation in incidence of congenital heart defects. Archives of Disease in Childhood. 102 (6), 496-502 (2017).
- Feng, Y., et al. Maternal Folic Acid Supplementation and the Risk of Congenital Heart Defects in Offspring : A Meta-Analysis of Epidemiological Observational Studies. Scientific Reports. 17 (5), 8506(2015).
- Rhinn, M., Dolle, P. Retinoic acid signalling during development. Development. 139 (5), 843-858 (2012).
- Liu, Y., et al. Circulating retinoic acid levels and the development of metabolic syndrome. The Journal of Clinical Endocrinology & Metabolism. 101 (February), 2015(2016).
- Kurian, L., et al. Identification of novel long noncoding RNAs underlying vertebrate cardiovascular development. Circulation. 131 (14), 1278-1290 (2015).
- Aguirre, A., Sancho-Martinez, I., Izpisua Belmonte, J. C. Reprogramming toward heart regeneration: Stem cells and beyond. Cell Stem Cell. 12 (3), 275-284 (2013).
- Srivastava, D. Making or breaking the heart: from lineage determination to morphogenesis. Cell. 126 (6), 1037-1048 (2006).
- Heyne, G. W., et al. A simple and reliable method for early pregnancy detection in inbred mice. Journal of the American Association for Laboratory Animal Science. 54 (4), 368-371 (2015).
- Baldock, R., Bard, J., Davidson, D. Stage Definition. , https://www.emouseatlas.org/emap/ema/theiler_stages/StageDefinition/stagedefinition.html (1998).
- Newbern, J., et al. Mouse and human phenotypes indicate a critical conserved role for ERK2 signaling in neural crest development. , http://www.pnas.org/cgi/content/full (2008).
- Carleton College. Part 4-Measure Areas using Thresholding. Science Education Resource Center. , https://serc.carleton.edu/eet/measure_sat2/part_4.html (2017).
- Reinking, L. Examples of Image Analysis Using ImageJ. , https://imagej.nih.gov/ij/docs/pdfs/examples.pdf (2007).
- MacIver, D. H., Adeniran, I., Zhang, H. Left ventricular ejection fraction is determined by both global myocardial strain and wall thickness. IJC Heart and Vasculature. 1 (7), 113-118 (2015).
- Towbin, J. A., Ballweg, J., Johnson, J. Left Ventricular Noncompaction Cardiomyopathy. Heart Failure in the Child and Young Adult: From Bench to Bedside. , Elsevier. 269-290 (2018).
- Choi, Y., Kim, S. M., Lee, S. C., Chang, S. A., Jang, S. Y., Choe, Y. H. Quantification of left ventricular trabeculae using cardiovascular magnetic resonance for the diagnosis of left ventricular non-compaction: evaluation of trabecular volume and refined semi-quantitative criteria. Journal of Cardiovascular Magnetic Resonance. 18 (1), 24(2016).
访问受限。请登录或开始试用以查看此内容。
重印与许可
