我们提供了一种免费的工作流程,专为快速探索和精确分析荧光显微镜图像中特定细胞区室内的细胞结构而设计。该用户友好的工作流程基于开源软件 Icy 构建,同时利用了 ImageJ 的功能。此分析流程无需图像分析专业知识即可使用。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
过去十年见证了荧光显微技术的突破性进展,不仅体现在空间分辨率的提升,还包括活细胞成像和高通量显微技术的发展。这导致单个实验所产生的显微图像数据在数量和复杂性上持续增加。由于显微图像数据的手动分析极为耗时、具有主观性,并且难以实现定量分析,因此生物图像分析的自动化正变得几乎不可避免。我们构建了一个名为 Substructure Analyzer 的信息学工作流程,用于完全自动化荧光显微图像中的信号分析。该工作流程基于用户友好的开源平台 Icy 开发,并整合了 ImageJ 的功能模块。其包括图像预处理以提高信噪比、单个细胞的分割(细胞边界的检测),以及对富集于特定细胞区室中的细胞结构的检测与定量。该工作流程的主要优势在于,通过友好的用户界面,使不具备图像分析专业知识的研究人员也能使用复杂的生物成像分析功能。此外,该流程具有高度模块化特性,可适用于多种研究需求,从核质转位的表征到不同细胞亚结构中各类细胞结构的比较分析均可适用。本工作流程的功能通过在氧化应激(OS)条件下对卡哈尔(盘绕)小体的研究得以展示。荧光显微结果显示,在人类细胞中,OS 诱导数小时后,卡哈尔小体的完整性即受到显著影响。这一效应表现为盘绕蛋白(coilin)在典型卡哈尔小体中的成核减少,同时伴随盘绕蛋白在核质中重新分布,形成数量增多但体积更小的焦点结构。鉴于盘绕蛋白在卡哈尔小体组分与周围核质之间物质交换中的核心作用,OS 所引发的盘绕蛋白重分布可能影响卡哈尔小体的组成及其功能。
引言
光学显微镜,尤其是荧光显微镜,是生物科学中常用的强大且多用途的技术。通过特异性的荧光标记,这些技术能够实现对蛋白质或RNA等多种生物分子的精确定位。过去十年间,显微镜与成像技术迅速发展,2014年诺贝尔化学奖授予埃里克·贝齐格(Eric Betzig)、斯特凡·W·赫尔(Stefan W. Hell)和威廉·E·莫纳(William E. Moerner),以表彰他们在超分辨荧光显微镜(SRFM)1发展中的贡献。超分辨荧光显微镜突破了传统光学显微镜的衍射极限,使其达到纳米尺度。此外,活体成像和高通量筛选等技术的进步也显著增加了每次实验所需处理的数据量和复杂性。大多数情况下,研究人员面对的是高度异质性的细胞群体,并希望在单细胞水平上分析表型特征。
最初,诸如焦点计数之类的分析是通过肉眼进行的,一些研究人员认为这种方法更优,因为它能够对计数过程实现完全的视觉控制。然而,此类数据的手动分析耗时过长,不同观察者之间易产生差异,并且无法获取更复杂的特征信息,因此基于计算机辅助的分析方法正被广泛采用并几乎成为必然选择2。生物图像信息学方法显著提高了数据分析效率,且避免了人工计数分析中不可避免的操作者主观性和潜在偏差。该领域日益增长的需求以及计算机性能的提升,促使大量图像分析平台得以开发。其中一些工具可免费获取,使用户能够利用个人计算机进行多种分析操作。近期已建立了一种针对开放获取工具的分类体系3,其中将 Icy4 列为兼具易用性与功能性的强大软件。此外,Icy 还具备与 ImageJ 互通的优势。
对于不具备图像分析专业知识的用户而言,主要障碍是 根据问题选择合适的工具并进行正确调整 参数通常难以充分理解,且设置时间往往较长。Icy 提出了一种名为“Protocols”的用户友好型点击式界面,通过组合其全面库中提供的若干插件来构建工作流程。4灵活的模块化设计和点选式界面使得非编程人员也能轻松完成分析设置。本文介绍了一种名为 亚结构分析器在Icy界面中开发的该工作流程,旨在分析特定细胞区室中的荧光信号,并测量亮度、焦点数量、焦点大小及空间分布等多种特征。该流程可解决多个问题,包括信号转位的定量分析、表达荧光报告分子的转染细胞分析,或对单个细胞中不同细胞亚结构来源的焦点进行分析。它支持多幅图像的同步处理,输出结果将导出为制表符分隔的工作表文件,可在常用电子表格程序中打开。
亚结构分析器(Substructure Analyzer)流程如图1所示。首先,对指定文件夹中的所有图像进行预处理,以提高其信噪比。此步骤可提高后续步骤的效率,并缩短运行时间。接着,识别并分割感兴趣区域(ROIs),即应检测荧光信号的图像区域。最后,对荧光信号进行分析,并将结果导出至制表符分隔的工作表中。
对象分割(边界的检测)是图像分析中最具挑战性的步骤,其效率决定了最终细胞测量结果的准确性。在图像中首先识别出的对象(称为初级对象)通常是DNA染色图像中的细胞核(如DAPI或Hoechst染色),但初级对象也可以是整个细胞、微珠、斑点、肿瘤,或任何被染色的结构。在大多数生物图像中,细胞或细胞核相互接触或重叠,导致简单且快速的算法失效。迄今为止,尚无一种通用算法能够对所有对象实现完美的分割,主要原因在于对象的特征(如大小、形状或纹理)会影响分割的效率5。显微镜软件通常附带的分割工具(如Molecular Devices公司的MetaMorph成像软件6,或Nikon公司的NIS-Elements Advanced Research软件7)一般基于相关匹配、阈值分割或形态学操作等标准技术。尽管这些方法在基础系统中有效,但在更具挑战性和特定的实验条件下,其局限性迅速显现。事实上,分割结果对细胞类型、细胞密度或生物标志物等实验参数高度敏感,通常需要针对大规模数据集进行反复调整。Substructure Analyzer工作流程整合了从简单到更复杂的多种算法,可根据图像复杂程度和用户需求提供不同的分割方案。该流程特别引入了基于标记的分水岭算法8,用于处理高度聚集的对象。该分割方法的有效性依赖于在每个对象上选择独立的标记点。这些标记点通常需要手动选取,以获得准确的全图分割参数,但当面对大量对象时,这一过程极为耗时。Substructure Analyzer提供了一种自动检测标记点的方法,从而实现了高效的分割过程。在大多数情况下,分割是图像分析的瓶颈步骤,其耗时会因图像分辨率、每幅图像中对象的数量以及对象的聚集程度而显著变化。在标准台式计算机上,典型的分析流程每幅图像需要几秒至5分钟。对于更复杂的图像分析,可能需要更高性能的计算机以及一定的图像分析基础知识。
代表性结果中的多个示例展示了该工作流程的灵活性和功能性。该工作流程的优势在氧化应激(OS)条件下对细胞核亚结构的研究中尤为突出。OS是指氧化还原稳态失衡,偏向于氧化剂的一侧,通常伴随着高水平的活性氧(ROS)。由于ROS可作为信号分子发挥作用,其浓度和亚细胞定位的变化会正向或负向影响众多调控生理功能的通路与网络,包括信号转导、修复机制、基因表达、细胞死亡和增殖9,10。因此,OS直接参与多种病理过程(如神经退行性疾病、心血管疾病、癌症、糖尿病等),同时也与细胞衰老密切相关。因此,解析OS对人类细胞结构与功能的影响,是理解OS在人类疾病发生与发展过程中所起作用的关键步骤。已有研究表明,OS可通过调控多种转录因子(如p53、Nrf2、FOXO3A)来调节转录过程,从而影响基因表达11,同时也可通过影响多个共转录和转录后过程(如前体RNA的可变剪接(AS))来实现调控12,13,14。初级编码和非编码转录本的可变剪接是一种关键机制,通过生成不同的转录本异构体来提高基因组的编码能力。AS由一个称为剪接体的大型核糖核蛋白复合物完成,该复合物包含近300种蛋白质和5种富含U的小核RNA(UsnRNAs)15。剪接体的组装和AS过程在细胞内受到严密调控,其中部分剪接体成熟步骤发生在一类无膜的核内区室——卡哈尔体(Cajal Bodies)中。这些核亚结构的结构和组成具有高度动态性,主要由其RNA和蛋白质组分与coilin蛋白之间的多价相互作用所驱动。利用Substructure Analyzer工作流程对数千个细胞进行分析,成功表征了OS对卡哈尔体此前从未被描述过的影响。实验数据表明,OS会改变卡哈尔体的成核过程,导致coilin蛋白在核质中重新分布,形成大量更小的核内焦点。这种卡哈尔体结构的改变可能影响剪接体的成熟过程,并参与OS对可变剪接的调控作用。
访问受限。请登录或开始试用以查看此内容。
方案
注意:Icy 网站上提供易于使用的教程,网址为 http://icy.bioimageanalysis.org。
1. 下载 Icy 软件和 Substructure Analyzer 协议
- 从 Icy 官方网站(http://icy.bioimageanalysis.org/download)下载 Icy,并下载 Substructure Analyzer 协议:http://icy.bioimageanalysis.org/protocols?sort=latest。
注意:如果使用 64 位操作系统,请务必使用 64 位版本的 Java。该版本允许增加分配给 Icy 的内存(首选项 | 常规 | 最大内存)。
2. 打开实验方案
- 打开 Icy 软件,点击 功能区 菜单中的 工具。
- 点击 协议 以打开 协议编辑器 界面。
- 点击 加载,并打开 亚结构分析器 协议。协议加载可能需要数秒钟。请确保协议完全打开后再使用。
注意:该工作流程由 13 个通用模块 组成,如 图 2a 所示。每个模块作为一个流水线运行,包含多个执行特定子任务的方框。
3. 在 Icy 上与工作流程交互
注意:每个模块或框均标有编号,并在工作流程中具有特定的层级顺序(图2b)。单击该编号时,系统会将所选模块/框分配至最接近第一个位置的位置,然后重新调整其他模块/框的位置。在构建工作流程时,请遵循模块的正确顺序。例如,斑点检测模块需要预先定义的感兴趣区域(ROI),因此分割模块必须在斑点检测模块之前运行。请勿更改框的位置。图像名称中不得使用“.”。
- 单击左上角图标,可折叠、展开、放大、缩小或移除该模块(图2b)。
- 工作流程中的每条管道均由通过输入和输出相互连接的方框网络构成(图2b)。要创建连接,请单击输出并按住,直至光标到达输入端。通过单击输出标签可删除连接。
4. 图像通道的合并
- 使用 合并通道 模块生成合并图像。如有必要,请重命名文件,使待合并的序列具有相同的文件名前缀,并以不同的分隔符结尾。例如,图像 A 各通道的序列命名为:ImageA_red、ImageA_blue。
注意:分隔符请勿使用图像名称中已包含的字符。 - 在同一目录下,为每个待合并的通道创建一个新文件夹。例如,若要合并红色、绿色和蓝色通道,则创建 3 个文件夹,并将相应通道的序列存储在这些文件夹中。
- 仅保留 合并通道 模块,删除其他模块,并将该协议保存为 合并通道。
- 进入参数设置框。针对每个通道,依次填写 通道编号 X(框 1、5 或 9)、通道编号 X 的文件夹(框 2、6 或 10)、通道编号 X 的分隔符(框 3、7 或 11)以及 通道编号 X 的色彩映射表(框 4、8 和 12)。
注意:这些设置框每四个水平分组,每一行对应一个通道。每行还提供一个显示窗口(框 23、24 或 25),可直接预览对应通道的序列。- 在 通道编号 X 框中,选择要提取的通道(在标准 RGB 图像中,0=红色,1=绿色,2=蓝色)。用户可在 Icy 软件的 检查器 窗口的 序列 选项卡中快速查看图像的各个通道。请将较小的通道值填入上方行,较大的通道值填入下方行。
- 在 通道编号 X 的文件夹 框中,输入包含通道 X 图像的文件夹名称。
- 在 通道编号 X 的分隔符 框中,输入图像名称所使用的分隔符(如前述示例中的“_red”、“_green”和“_blue”)。
- 在 通道编号 X 的色彩映射表 框中,输入一个数字,表示在 Icy 中可视化对应通道时所使用的色彩映射模型。检查器 窗口的 序列 选项卡中可查看可用的色彩映射表。
- 在 合并图像格式 框(框 28)中,输入用于保存合并图像的扩展名:.tif、.gif、.jpg、.bmp 或 .png。
注意:若仅合并两个通道,则无需填写与第三个通道对应的四个设置框。
- 在 合并通道 模块的左上角,点击 文件夹 右侧的链接。在弹出的 打开 对话框中,双击包含第一个通道序列的文件夹(即在 通道编号 1 的文件夹 框(框 2)中定义的文件夹),然后点击 打开。
- 点击 合并通道 模块左上角的黑色箭头运行协议(详见第 7 部分)。合并后的图像将保存在与各通道文件夹同级的 Merge 文件夹中。
- 进入参数设置框。针对每个通道,依次填写 通道编号 X(框 1、5 或 9)、通道编号 X 的文件夹(框 2、6 或 10)、通道编号 X 的分隔符(框 3、7 或 11)以及 通道编号 X 的色彩映射表(框 4、8 和 12)。
5. 感兴趣区域的分割
注意:子结构分析器结合了简单和更复杂的算法,以提出针对图像复杂性和用户需求的不同替代方案。
- 选择已适配的模块。
- 如果物体彼此不接触,或用户无需单独区分聚集的物体,请使用该模块 分割 A:非聚类对象.
- 当物体彼此不接触但部分物体距离较近时,使用该模块 分割 B:较差 聚类对象.
- 对于具有高聚集程度且呈凸形的物体,使用该模块 分割 C:具有凸形的聚类对象.
- 如果物体具有较高的聚集程度且形状不规则,请使用区块方法 分割 D:具有不规则形状的聚类对象.
- 使用该模块 E区:成簇的细胞质 利用已分割的细胞核作为标记,对相互接触的细胞质进行单独分割。此步骤必须依赖已分割的细胞核才能进行处理。
注意:为独立进行主要物体分割流程,可对各个模块进行调整,以便在同一次运行中使用多个模块,比较其针对特定亚结构的分割效率,或用于分割不同类型的亚结构。若同一图像组内聚类程度存在异质性,则应在调整后的模块中分别处理体积较小且高度聚集的物体。
- 链接 output0 (文件)块 选择文件夹 到 文件夹 所选分割模块的输入。
- 设置所选分割模块的参数。
- 分割 A:非聚类物体和分割 C:具有凸形的聚类物体
- 在盒子中 通道信号 (方框 1)中,设置待分割对象的通道。
- 作为可选步骤,在盒子中 高斯滤波器 (方框2),若物体内部信号不均一,可增大X和Y方向的sigma值。高斯滤波可平滑纹理,获得更均匀的区域,从而提高细胞核分割的速度和效率。物体越小,sigma值应越低。避免使用过高的sigma值。默认值设为0。
- 在盒子中 HK-均值 (方框 3),设置 强度分类 参数以及待检测物体的近似最小和最大尺寸(以像素为单位)。
注意:对于强度分类,数值2将像素分为两类:背景和前景。因此,当目标与背景之间的对比度较高时,此设置较为适用。如果前景目标具有不同的强度值,或与背景的对比度较低,应增加分类数量。默认设置为2。可通过手动在感兴趣的目标周围绘制感兴趣区域(ROI)来快速评估目标大小。将光标指向该区域时,ROI的大小(内部像素数)会直接显示在图像上,或可通过相关功能获取。 ROI 统计分析 窗口(从搜索栏打开)。最佳参数可在单个 ROI 中检测每个前景对象. 可在 Icy 中手动定义检测与追踪 | HK-均值). - 在盒子中 主动轮廓模型 (方框4),优化物体边界的检测。该插件的详细文档可在线获取: http://icy.bioimageanalysis.org/plugin/Active_Contours. 也可以在 Icy 中手动定义正确的参数(检测与追踪 | 主动轮廓模型).
- 在此过程中,系统会自动创建一个文件夹以保存已分割对象的图像。在该框中 文本 (框6),为该文件夹命名(例如:分割后的细胞核)。要设置分割对象图像的保存格式(Tiff、Gif、Jpeg、BMP、PNG),请填写该框 分割对象图像的格式该文件夹将在包含合并图像的文件夹中创建。
- 运行工作流程(详细信息请参见第7部分)。
- 分割 B:聚类效果差的物体
- 按照 5.3.1 中的相同步骤设置方框的参数 通道信号, HK-均值, 主动轮廓模型, 用于保存已分割对象的扩展功能 和 文本 (方框的排序与步骤5.3.1中的顺序不同)。
- 在盒子中 调用 IJ 插件 (方框 4),设置 滚动 用于控制背景减除的参数。该参数应至少设置为不属于背景的最大物体的尺寸。降低此数值可增强背景去除效果 但也可能导致前景信号的丢失。
- 在盒子中 自适应直方图均衡化 (框 6),增强前景物体与背景之间的对比度。增大斜率可获得对比度更高的序列。
- 运行工作流程(详细信息请参见第7部分)。
- 分割 D:具有不规则形状的聚类对象
注意:每幅图像采用三种不同的分割方法:首先, HK-means 聚类 与 主动轮廓线方法 应用。然后, 经典分水岭算法 (使用欧几里得距离图)应用于先前分割错误的物体。最后,一个 基于标记的分水岭算法 使用。仅HK-means和基于标记的分水岭方法需要用户干预。对于这两种方法,可对所有图像应用相同的参数(全自动版本),或针对每幅图像调整参数(半自动版本)。如果用户未接受过这些分割方法的培训,强烈推荐使用半自动处理。在该模块处理过程中,需要进行人工干预。当一种分割方法完成后,用户必须在开始下一种分割方法前手动删除分割错误的对象。成功分割的对象将被保存,并不再参与后续处理。 在接下来的步骤中。此模块必须与该模块连接 聚类/异质形状初级对象分割对话框 正常工作。- 下载 ImageJ 工具集 MorphoLibJ https://github.com/ijpb/MorphoLibJ/releases. 本实验方案使用 MorphoLibJ 1.4.0 版本。将文件 MorphoLibJ_-1.4.0.jar 在 icy/ij/plugins 文件夹中。有关此集合内容的更多信息,请访问 https://imagej.net/MorphoLibJ
- 按照步骤 5.3.1 中的相同步骤设置方框的参数 通道信号, 高斯滤波器, 主动轮廓模型, 用于保存已分割对象的扩展功能 和 文本方框的排序与步骤 5.3.1 中的不同。
- 设置盒子的参数 自适应直方图均衡化 (参见步骤 5.3.2.3)。
- 为了激活 减去背景,写“是” 应用减去背景? (方框 5)。否则,写入 无若插件已激活,在对话框中设置滚动参数(参见步骤 5.3.2) 减去背景参数 (方框 7)
- HK均值自动化 为所有图像应用相同参数(全自动处理),请设置 类别数量 (方框11),的 最小尺寸 (盒 12),以及 最大尺寸 (框13)(参见步骤5.3.1)。必须设置这些参数以选择最大数量的前景像素,并优化前景对象的个体化。对于半自动化处理版本,无需人工干预。
- 标记物提取的自动化: 对于全自动版本,请展开该框 内部标记物提取 (方框27)并设置脚本第13行中“dynamic”参数的值。对于半自动化处理版本,无需干预。
注意:通过在输入图像上应用受“dynamic”参数控制的扩展极小值变换来提取标记。在基于标记的分水岭算法中,通过模拟从这些标记开始的“泛洪”过程实现对象分割。为了成功分割前景对象,应为每个前景对象提取一个且仅一个标记。用于最优标记提取的“dynamic”参数设置主要取决于图像分辨率。因此,若对该参数不熟悉,建议使用半自动化版本。 - 运行工作流程(详细信息请参见第7部分)。
- 在处理开始时,对话框 HK-means 参数 和 基于标记的分水岭 依次打开。如需对所有图像应用相同参数(全自动版本),请点击 是。否则,点击 一氧化氮. 一个信息框弹出,提示“使用 HK-Means 插件确定最佳 ROI 并关闭图像”。单击 好的 并手动应用 HK-Means 插件(检测与追踪|HK-均值) 在自动打开的图像上,选择 导出感兴趣区域 在 HK-Means 插件对话框中选择相应选项。应用最佳参数,以获得包含最多前景像素的感兴趣区域(ROI),并优化前景对象的个体化分割。当找到最优感兴趣区域后,直接关闭图像。
- 第一种分割方法结束时,会弹出一个信息框,提示“移除不需要的 ROI 并关闭图像”。这些 ROI 对应于已分割对象的边界。选择 好的 移除图像中错误分割对象的感兴趣区域(ROI),该图像会自动打开。将光标置于 ROI 边界上,然后按键盘上的“Delete”键即可轻松删除该区域。关闭图像。在完成第二次分割步骤后,重复相同的操作流程。
- 在此阶段,如果为基于标记的分水岭算法的完全自动化选择了“是”按钮,则先前设置的参数将应用于所有图像。
- 如果选择了“否”按钮,将弹出一个信息框,提示“确定并调整内部标记”。单击 好的 在 Icy 的 ImageJ 界面中,前往 插件 | MorphoLibJ 最小值 和 Maxima|扩展小值 & Max在操作中,选择 扩展极小值.
- 选择 预览 在自动打开的图像上预览变换结果。调整动态参数直至观察到最佳标记。标记是指像素值为255的像素群(不一定是白色像素)。最优参数应使每个目标对象对应一个标记。重点关注此前两种分割方法未能良好分割的剩余对象。
- 如有必要,可通过应用“开运算”或“闭运算”等额外的形态学操作来优化标记插件 | MorphoLibJ 形态学滤波器)。在获取标记物的最终图像时,保持该图像打开,并关闭所有其他图像,仅保留最初用作输入的图像 扩展极小值 操作。单击 无 如果 ImageJ 弹出对话框询问是否保存对此图像的更改。
- 在盒子中 带信息框的图像数量 (框 14),确定应显示多少张带信息框的图片。
- E区:成簇的细胞质
注意:此模块利用先前已分割的细胞核作为独立标记物来启动细胞质分割。请确保在使用前已完成细胞核分割模块的处理。- 在盒子中 通道细胞质 (方框1),设置细胞质信号的通道。
- 在盒子中 延伸的分段细胞核 (框 2)中填写用于保存分割后细胞核图像的格式(tif、jpeg、bmp、png)。默认格式为 tif。
- 在盒子中 文本 (框3)中填写包含已分割细胞核的文件夹名称。
- 在盒子中 分割后细胞质图像的格式 (框 4)设置用于保存分割对象图像的格式(Tiff、Gif、Jpeg、BMP、PNG)。
- 在此过程中,系统会自动创建一个文件夹以保存已分割的细胞质图像。在该框中 文本 (框 5),为该文件夹命名(例如:分割的细胞质)。该文件夹将创建在包含合并图像的文件夹中。
- 按照步骤 5.3.1 中的相同步骤设置方框的参数 高斯滤波器 和 主动轮廓模型 (注意:盒子的排序与步骤 5.3.1 中的不同)。
- 运行工作流程(详细信息请参见第7部分)。
- 分割 A:非聚类物体和分割 C:具有凸形的聚类物体
6. 荧光信号检测与分析
- 选择已调整的模块。
- 在区块中 荧光分析 A:1 通道,在一种分段对象内的单个通道中执行焦点的检测与分析:在细胞核内检测coilin焦点(红色通道)。
- 在区块中 荧光分析 B:同一区室中的 2 个通道,在一种分段对象内对两个通道中的焦点进行检测与分析:在细胞核内检测coilin(红色通道)和53BP1(绿色通道)焦点。
- 在区块中 荧光分析 C:两个区室中的双通道检测,在一个或两个通道中对核内及其相应细胞质中的灶状结构进行检测与分析:可检测核内及相应细胞质中的Coilin灶状结构(红色通道),或检测核内的Coilin灶状结构(红色通道)与相应细胞质中的G3BP灶状结构(绿色通道)。
- 在该区块中 荧光分析 D:全局转位,计算一个通道在两个细胞区室(a 和 b)中的信号百分比。例如,在细胞质/细胞核转位实验中,应在最终的“结果”电子表格中为每张图像计算细胞核和细胞质信号的百分比。用于计算细胞核信号百分比的公式如下所示。该模块可用于任何亚细胞区室:
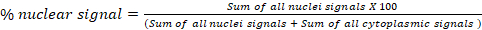
- 在区块中 荧光分析 E:单细胞转位,计算每个细胞在两个细胞区室中某一通道信号的百分比。该模块专为单细胞水平的细胞核/细胞质转位实验优化。
注意:由于该模块 荧光分析 E:单细胞转位 在单细胞水平进行分析时,需要对细胞核和细胞质进行高效分割。
- 链接 output0 组织块的文件 选择文件夹 到 文件夹 所选模块的输入(黑圈中的白色箭头)。
- 设置所选模块的参数。
- 荧光分析A:单通道,荧光分析B:同一区域内的双通道,荧光分析C:两个区域内的双通道
- 在盒子中 文件夹图像 ROI, 在反斜杠后写出包含已分割对象图像的文件夹名称。(例如:\Segmented nuclei)
- 在盒子中 分割对象图像的格式 (框 2)中填写用于保存分割对象图像的格式(tif、jpeg、bmp、png)。默认格式为 tif。
- 在盒子中 消除边界?,书写 是 去除边界对象。否则,写入 无. 使用此功能需要安装 ImageJ 的 MorphoLibJ 工具包(参见步骤 5.3.3)。
- 在方框中 通道斑点信号设置用于检测斑点的通道。在传统的RGB图像中,0=红色,1=绿色,2=蓝色。
- 在盒子中 局部化分子的名称,填写定位于斑点中的分子名称。需输入的字段数量取决于分子的数量。
- 在方框中 小波斑点检测模块,为每个通道设置斑点检测参数。设置尺度(即斑点大小)和检测灵敏度(灵敏度数值越小,检测到的斑点数量越少,默认值为100,最小值为0)。该插件的详细文档可在线获取: http://icy.bioimageanalysis.org/plugin/Spot_Detector参数也可以在 Icy 中手动定义检测与追踪 | 斑点检测器).
- 作为一种选择,在该框中 按大小筛选 ROI,通过设置尺寸(像素)范围来筛选检测到斑点的分割对象。此步骤特别适用于去除分割过小或过大的对象。如需手动估计对象尺寸,请参见步骤 5.3.1。默认参数不包含按尺寸对 ROI 进行筛选。双通道双区室模块包含两个设置框:按尺寸筛选细胞核(框 19)和按尺寸筛选细胞质(框 46)。
- 可选,在方框中 按大小筛选斑点,根据检测到的斑点大小(以像素为单位)进行过滤,以去除不需要的伪影。要手动估算斑点大小,请点击 检测与追踪 并打开 斑点检测器 插件。在 输出 选项,选择 导出至 ROI注意默认参数不包含按大小对斑点进行过滤,且过滤后的斑点不应纳入分析。需要输入的字段数量取决于通道的数量。
- 可选地,在方框中 过滤斑点,对检测到的斑点应用额外的筛选条件(对比度、均一性、周长、圆度)。注意默认参数不包含斑点筛选,且经过筛选的斑点不参与后续分析。需要输入的视野数量取决于通道数。
- 可选地,在方框中 斑点大小阈值,设置被分析斑点面积(以像素为单位)的阈值。最终导出低于和高于此阈值的斑点数量 结果 电子表格。需填写的方框数量取决于通道数量。
- 运行工作流程(详情见第7部分)。数据以 结果 保存在包含合并图像文件夹中的电子表格。
- 荧光分析 D:整体转位分析与荧光分析 E:单细胞转位分析
- 在盒子中 文件夹图片 (盒子 1 和 2), 写入包含已分割对象图像的文件夹名称。在该模块中 荧光分析 D: 全局转位,两种ROI被标识为ROI a和ROI b。对于该模块 荧光分析 E: 单细胞迁移,在 分割核的文件夹图像 和 分割细胞质的文件夹图像 分别写出包含已分割细胞核和细胞质的文件夹名称。
- 在盒子中 通道信号 (方框3)输入信号通道。
- 在盒子中 分割对象图像的格式 (框 4)中填写用于保存分割对象图像的格式(tif、jpeg、bmp、png)。默认格式为 tif。 杀伤边界 也可选择移除边界对象(参见步骤 6.3.1)。
- 可选地,置于盒中 按大小筛选 ROI,通过设置对象大小(像素)的区间来筛选已分割的对象。此步骤可用于去除分割过小或过大的对象。如需手动估算对象大小,请参见步骤 5.3.1。有两个输入字段,每个通道一个。默认参数不包含按大小对 ROI 进行筛选。
- 运行工作流程(详情见第7部分)。将数据导出为电子表格 结果 保存在包含合并图像的文件夹中。
- 荧光分析A:单通道,荧光分析B:同一区域内的双通道,荧光分析C:两个区域内的双通道
7. 运行实验方案
- 运行中处理一个模块时,断开所选模块与另一模块之间的连接 选择文件夹. 将目标模块放置在第 1 位st 等级。在目标模块的左上角,点击紧邻其右侧的链接 文件夹. 在 开放 对话框出现后,双击包含合并图像的文件夹。然后,单击 打开. 点击 运行 以启动工作流程。可通过点击来停止处理 停止 按钮。
- 为处理运行中的不同模块,请保持所选模块与该模块之间的连接 选择文件夹 (模块1)。确保各模块的顺序能够保证工作流程的顺利执行。例如,若某一特定模块需要以分割后的对象作为输入,则应确保分割模块位于其之前执行。在运行工作流程前,移除未使用的模块,并将新协议另存为其他名称。
- 点击 运行 开始工作流程。当打开对话框出现时,双击包含合并图像的文件夹。然后,单击 开放工作流程将自动运行。如有必要,可通过点击来停止处理 停止 按钮
- 处理结束后,检查消息 工作流程已成功执行 出现在右下角,且所有模块均标有绿色标记(图 2b)。如果不符合,出现错误提示的方块及其内侧框将指示需要更正的元素(图2b).
注意:工作流程成功执行后,无法直接启动新的运行。若要再次处理该工作流程,至少需将一个模块标记为“准备处理”状态。要更改模块状态,可删除并重新创建该模块内两个框之间的连接,或直接关闭并重新打开该实验方案。如果处理过程中发生错误,则可直接启动新的运行。在新的运行过程中,管道中的所有模块都将被处理,即使其中部分模块已带有绿色标记。
访问受限。请登录或开始试用以查看此内容。
结果
所有描述的分析均在一台标准笔记本电脑(64 位,2.80 GHz 四核处理器,16 GB 随机存取存储器(RAM))上完成,该电脑运行 64 位版本的 Java。随机存取存储器是需要考虑的重要参数,具体取决于待分析图像的数量和分辨率。使用 32 位版本的 Java 会将内存限制在约 1300 MB,这可能不适用于大数据分析,而 64 位版本则允许增加分配给 Icy 的内存。图 3 显示了对不同类型图像和不同分辨率进行分割所需的时间。结果证实,高分辨率会显著增加初级目标分割所需的时间。
下文展示的数据表明,Substructure Analyzer 工作流程可用于解决细胞和分子生物学中遇到的大多数常见问题(细胞计数、焦点计数与分析、转位分析)。
在大量细胞中测量特定区室内的分子精确比例,或亚细胞区域间定位变化,可能是一项非常繁琐且易出错的任务,尤其是当手动操作时。图4展示了该工作流程快速而精确...
访问受限。请登录或开始试用以查看此内容。
讨论
目前有越来越多的免费软件工具可用于荧光细胞图像的分析。用户必须根据自身研究问题的复杂程度、图像处理知识水平以及愿意在分析上投入的时间,正确选择合适的软件。Icy、CellProfiler 或 ImageJ/Fiji 均为兼具易用性与功能性的强大工具3。Icy 是一款独立运行的软件,具有清晰的图形用户界面(GUI),其“Protocols”模块提供点击式操作界面,可方便地设计或调整工作流程4。该软件支持并可调用 ImageJ 插件,进一步增强了其功能,同时得益于庞大的用户社区,提供了丰富的文档资源。我们利用 Icy 软件在易用性与功能性方面的优势,开发了 Substructure Analyzer 工作流程。其主要目标是提供一种自动化解决方案,用于对多幅图像中的细胞荧光信号进行完整分析。该分析过程包括图像预处理、目标分割以及荧光信号分析。
Icy 网站上分享了多个协议,建议使用 Icy 功能来检测和分析荧光信号(如细胞焦点)。然而,其中一些协议每次运行仅处理一幅图像,未将...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
G.H. 获得了法国研究与技术部研究生奖学金的资助。L.H. 获得了洛林癌症研究所(ICL)研究生奖学金的资助,而 Q.T. 获得了法国国家研究署(ANR)监管的公共资助,该资助属于第二期“未来投资计划”FIGHT-HF 项目(项目编号:ANR-15-RHU4570004)。本研究由法国国家科学研究中心(CNRS)和洛林大学(UMR 7365)提供经费支持。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 16% 甲醛溶液(w/v),无甲醇 | Thermo Fisher Scientific | 28908 | 用于固定细胞 |
| Alexa Fluor 488 标记的山羊抗兔抗体 | Thermo Fisher Scientific | A-11008 | 荧光二抗 |
| Alexa Fluor 555 标记的山羊抗小鼠抗体 | Thermo Fisher Scientific | A-21425 | 荧光二抗 |
| Alexa Fluor 555 标记的鬼笔环肽 | Thermo Fisher Scientific | A34055 | 荧光二抗 |
| 牛血清白蛋白标准品(BSA) | euromedex | 04-100-812-E | |
| DMEM | Sigma-Aldrich | D5796-500ml | 细胞培养基 |
| Duolink In Situ DAPI 封片剂 | Sigma-Aldrich | DUO82040-5ML | 封片剂 |
| 人:HeLa S3 细胞 | IGBMC, Strasbourg, France | 用于实验的细胞系 | |
| 30% 过氧化氢溶液(H2O2) | Sigma-Aldrich | H1009-100ml | 用作应激刺激剂 |
| Lipofectamine 2000 转染试剂 | Thermo Fisher Scientific | 11668-019 | 转染试剂 |
| 小鼠单克隆抗coilin抗体 | abcam | ab11822 | coilin特异性抗体 |
| Nikon Optiphot-2 荧光显微镜 | Nikon | 落射荧光显微镜 | |
| Opti-MEM I 低血清培养基 | Thermo Fisher Scientific | 31985062 | 转染培养基 |
| PBS pH 7.4 (10x) | gibco | 70011-036 | 用于洗涤细胞 |
| 兔多克隆抗53BP1抗体 | Thermo Fisher Scientific | PA1-16565 | 53BP1特异性抗体 |
| 兔多克隆抗EDC4抗体 | Sigma-Aldrich | SAB4200114 | EDC4特异性抗体 |
| Triton X-100 | Roth | 6683 | 用于细胞通透处理 |
参考文献
- Möckl, L., Lamb, D. C., Bräuchle, C. Super-resolved fluorescence microscopy: Nobel Prize in Chemistry 2014 for Eric Betzig, Stefan Hell, and William E. Moerner. Angewandte Chemie. 53 (51), 13972-13977 (2014).
- Meijering, E., Carpenter, A. E., Peng, H., Hamprecht, F. A., Olivo-Marin, J. -C. Imagining the future of bioimage analysis. Nature Biotechnology. 34 (12), 1250-1255 (2016).
- Wiesmann, V., Franz, D., Held, C., Münzenmayer, C., Palmisano, R., Wittenberg, T. Review of free software tools for image analysis of fluorescence cell micrographs. Journal of Microscopy. 257 (1), 39-53 (2015).
- de Chaumont, F., et al. Icy: an open bioimage informatics platform for extended reproducible research. Nature Methods. 9 (7), 690-696 (2012).
- Girish, V., Vijayalakshmi, A. Affordable image analysis using NIH Image/ImageJ. Indian J Cancer. 41 (1), 47(2004).
- Zaitoun, N. M., Aqel, M. J. Survey on image segmentation techniques. Procedia Computer Science. 65, 797-806 (2015).
- Molecular Devices. MetaMorph Microscopy Automation and Image Analysis Software. , Available from: https://www.moleculardevices.com/products/cellular-imaging-systems/acquisition-and-analysis-software/metamorph-microscopy (2018).
- Nikon. NIS-Elements Imaging Software. , Available from: https://www.nikon.com/products/microscope-solutions/lineup/img_soft/nis-element (2014).
- Meyer, F., Beucher, S. Morphological segmentation. Journal of Visual Communication and Image Representation. 1 (1), 21-46 (1990).
- Schieber, M., Chandel, N. S. ROS Function in Redox Signaling and Oxidative Stress. Current Biology. 24 (10), 453-462 (2014).
- D'Autréaux, B., Toledano, M. B. ROS as signalling molecules: mechanisms that generate specificity in ROS homeostasis. Nature Reviews. Molecular Cell Biology. 8 (10), 813-824 (2007).
- Davalli, P., Mitic, T., Caporali, A., Lauriola, A., D'Arca, D. ROS, Cell Senescence, and Novel Molecular Mechanisms in Aging and Age-Related Diseases. Oxidative Medicine and Cellular Longevity. 2016, 3565127(2016).
- Disher, K., Skandalis, A. Evidence of the modulation of mRNA splicing fidelity in humans by oxidative stress and p53. Genome. 50 (10), 946-953 (2007).
- Takeo, K., et al. Oxidative stress-induced alternative splicing of transformer 2β (SFRS10) and CD44 pre-mRNAs in gastric epithelial cells. American Journal of Physiology - Cell Physiology. 297 (2), 330-338 (2009).
- Seo, J., et al. Oxidative Stress Triggers Body-Wide Skipping of Multiple Exons of the Spinal Muscular Atrophy Gene. PLOS ONE. 11 (4), 0154390(2016).
- Will, C. L., Luhrmann, R. Spliceosome Structure and Function. Cold Spring Harbor Perspectives in Biology. 3 (7), 003707(2011).
- Ljosa, V., Sokolnicki, K. L., Carpenter, A. E. Annotated high-throughput microscopy image sets for validation. Nature Methods. 9 (7), 637-637 (2012).
- Wang, Q., et al. Cajal bodies are linked to genome conformation. Nature Communications. 7, (2016).
- Carpenter, A. E., et al. CellProfiler: image analysis software for identifying and quantifying cell phenotypes. Genome Biology. 7, 100(2006).
- McQuin, C., et al. CellProfiler 3.0: Next-generation image processing for biology. PLoS Biology. 16 (7), 2005970(2018).
访问受限。请登录或开始试用以查看此内容。
重印与许可
