Worm-align/Worm_CP 是一个简单的 FIJI/CellProfiler 工作流程,可用于拉直并排列Caenorhabditis elegans样本,并对全虫基于图像的检测进行评分,且无需预先训练步骤。我们已将 Worm-align/Worm_CP 应用于活体动物中热激诱导表达的定量分析 以及固定样本中脂滴的定量分析 。
方法文章
Worm-align 和 Worm_CP:两款用于对来自 Caenorhabditis elegans 的荧光图像数据进行拉直和定量分析的开源流程
本文内容
摘要
摘要
在获取固定或麻醉的 C. elegans 图像数据时,常遇到的一个问题是线虫会相互交叉并聚集。随着线虫密度的增加,这一问题会更加严重,给成像和定量分析带来困难。我们开发了一种基于 FIJI 的工作流程 Worm-align,可用于从 C. elegans 的原始图像数据中生成用户选定的、拉直并排列整齐的单通道或多通道线虫拼接图。Worm-align 是一种简单且用户友好的工作流程,无需用户或分析算法进行预先训练。使用 Worm-align 生成的拼接图有助于对线虫进行视觉检查、分类和展示。此外,Worm-align 的输出结果可用于后续对单个线虫荧光强度的定量分析,既可直接在 FIJI 中进行,也可在其他图像分析软件平台中完成。我们通过将 Worm-align 的输出导入 Worm_CP(一种基于开源 CellProfiler 软件的分析流程)来演示这一应用。CellProfiler 具有高度灵活性,可整合额外模块以实现高内涵筛选。 作为一个实际应用示例,我们将该流程应用于两个数据集:第一个数据集为热休克报告基因线虫的图像,这些线虫在热休克诱导基因 hsp-70 启动子的调控下表达绿色荧光蛋白(GFP);第二个数据集为经固定并使用荧光染料对脂质储存进行染色的线虫所获得的图像。
引言
一种相对简单的生物,线虫 秀丽隐杆线虫是一种研究人类疾病极为有用的模型系统。约38%的基因 秀丽隐杆线虫 基因组在人类中具有功能对应物1,2其中一个独特的特征是 秀丽隐杆线虫 其具有光学透明性,能够便捷地获取有关荧光报告分子在组织中(亚)细胞水平表达的活体信息。这使得 秀丽隐杆线虫 基于成像平台的高内涵筛选的理想模式生物3然而,这些研究常面临一个难题:在对高密度的线虫群体进行成像时,线虫容易相互交叉和聚集,这使得个体间的比较变得困难,并干扰后续的图像分析与定量。
目前解决此问题的方案通常依赖于培养和成像方案的优化,例如采用微流控装置4,使单个线虫可在独立图像中被捕获5,6。另一些方法则应用了机器学习算法,即使在线虫聚集的群体中也能识别出单个个体。其中典型的例子是 WormToolbox,它是开源图像分析平台 CellProfiler 的一个模块化扩展7。WormToolbox 为 C. elegans 的分析提供了高通量、高内涵的解决方案,并因其集成于 CellProfiler 而具有优势,可方便地添加额外的分析模块。尽管 WormToolbox 配备了一个预训练模型(DefaultWormModel.xml),但在每项新应用中通常仍需重新训练机器学习算法。相关在线教程可在 Github 上获取(https://cp-website.github.io/Worm-Toolbox/)。即便如此,对于 初学者用户而言 ,安装和使用 WormToolbox 仍需投入大量时间。
本文中, 我们描述了一种简单、经济且节省时间的 C. elegans 种群培养与成像实验方案。为了能够在获取的图像中对单个线虫进行评估,我们开发了一个基于开源 FIJI 软件的简易工作流程,命名为 Worm-align。Worm-align 可用于生成经过拉直和对齐处理的单通道或多通道线虫拼接图像。首先,用户需通过从头到尾绘制一条线,手动选择用于分析的单个线虫。Worm-align 将利用该选择从整体图像中裁剪出所选线虫,并生成一个拼接图,其中所选线虫被拉直并对齐,以方便进行视觉比较和结果展示。
此外,Worm-align 的输出结果可用于后续对单个线虫荧光强度的定量分析,既可直接在 FIJI 中进行,也可在其他图像分析软件平台上完成。我们通过将 Worm-align 的输出导入 Worm_CP 流程来演示这一应用,该流程基于开源的 CellProfiler 软件。CellProfiler 具有高度灵活性,可整合额外模块以实现高内涵筛选。我们已利用 Worm_CP 流程对热休克反应进行定量分析,这是一种高度保守的保护机制,能够将因高温等应激因素导致错误折叠的蛋白质重新折叠8。具体而言,我们将该流程应用于携带整合型多拷贝转基因的线虫,其中热休克可诱导基因 hsp-70(C12C8.1) 的启动子驱动绿色荧光蛋白(GFP)的表达9。我们还将在固定处理后用荧光染料标记脂滴(LDs)的动物样本中应用 Worm_CP 流程,脂滴是 C. elegans 中主要的脂肪储存细胞器10。 尽管该工作流程的通量不及 WormToolBox,但它为基于图像的 C. elegans 实验提供了用户友好且简便的可视化展示与分析替代方案。
方案
1. 使用脂滴荧光染料(BODIPY)对线虫进行固定以进行脂肪含量成像10
- 通过标准的漂白程序制备同步化的 C. elegans 种群2。每种实验条件下,将约 1,000 条 L1 期线虫接种至一个 9 cm 的线虫生长培养基(NGM)平板上。
注意:由于操作过程中线虫会有所损失,因此准备的线虫数量多于最终实际定量的数量。 - 为了在年轻成虫阶段成像(在 20 °C 下接种 L1 期线虫后约 50 小时),将每个 9 cm 平板用 15 mL M9 缓冲液冲洗至一个锥形 管中,在 252 × g 条件下离心 1 分钟,然后弃去上清液。
- 重复洗涤一次,并在虫体沉淀上方保留 1 mL M9 缓冲液。
- 使用低吸附枪头,将含有线虫的 1 mL M9 缓冲液转移至一个 2 mL 低蛋白吸附的微量离心管中。
- 在微量离心机中以 252 × g 离心 1 分钟,然后小心弃去上清液,注意不要触碰管底的线虫沉淀。
- 若需通过 4,4-二氟-1,3,5,7,8-五甲基-4-硼-3a,4a-二氮杂-s-引达省(BODIPY)染色法监测脂肪含量10(材料表),可选择以下任一方法固定线虫:向线虫沉淀中加入 0.5 mL 60% 异丙醇,固定 3 分钟11;或加入 2 mL 冰冷甲醇,固定 10 分钟。两种方法均需每隔 30 秒轻轻颠倒混匀一次。
警告:若使用甲醇作为固定剂,此步骤必须在通风橱中进行,因其具有毒性。 - 尽可能彻底去除固定液,避免触碰线虫沉淀,然后加入 1 mL M9 缓冲液。让线虫在管底静置沉降 3–5 分钟。
- 再次用 1 mL M9 缓冲液洗涤,待线虫沉降后弃去上清液,管中保留约 50 µL 液体。用夹具固定离心管。
- 通过将密封好的离心管迅速浸入液氮,随后立即转入约 40 °C 的温水浴中,使线虫发生冻裂。
- 重复步骤 1.9 一次。
- 加入 0.5 mL 用 M9 缓冲液稀释的 BODIPY 染料,终浓度为 1 µg/µL,室温下置于旋转仪上孵育 1 小时。
- 孵育 1 小时后,让线虫在管底静置沉降 3–5 分钟。
- 弃去上清液,加入 1 mL M9 缓冲液。
- 待线虫沉降后,弃去上清液。
注意:也可选择在 252 × g 条件下离心 1 分钟,此操作似乎不影响线虫形态。 - 加入 0.5 mL M9 缓冲液。
注意:若固定剂为 60% 异丙醇,线虫需在 48 小时内使用;若固定剂为甲醇,则应在 24 小时内使用。
2. 制备琼脂糖垫以固定线虫
注意:制备琼脂糖垫的关键步骤是获得厚度均匀的垫片。否则,线虫在垫片上的不同位置会处于不同的焦平面,导致难以获得较大视野的清晰图像。
- 制备2%琼脂糖垫:将0.2 g琼脂糖加入盛有10 mL灭菌H2O的烧杯或锥形瓶中,放入微波炉加热30秒,直至琼脂糖开始沸腾。
注意:切勿过热,一旦出现气泡即停止加热;否则会增加琼脂糖黏度,导致难以获得理想的垫片厚度。 - 琼脂糖完全融化后,使用剪去尖端的1000 µL移液枪头,吸取少量熔化的琼脂糖并滴加至显微镜载玻片中央。立即轻轻将另一张载玻片靠近琼脂糖液滴,并缓缓放下,使其与琼脂糖接触形成厚度均匀的垫片,以获得最佳显微观察效果。
注意:若从较高位置释放上层载玻片,不仅会产生气泡,还会导致垫片厚度不均。也可采用另一种方法:在放置琼脂糖的载玻片两侧各放置一张载玻片作为边界,并在每张边界载玻片上贴一层薄胶带以控制厚度。 - 静置至少2−3分钟后,轻柔地移除上层载玻片。利用该载玻片的边缘修整琼脂糖垫,使其呈方形。在5分钟内完成线虫的封片操作,以防垫片在使用前干燥。
3. 固定线虫的成像封片
- 通过在本生灯火焰中拉伸一根细玻璃毛细管来制作口吸移液管(图1A)。在火焰中拉伸后,将毛细管折成两段(图1B)。选择最合适的一段,通常是较长的一段, 通过尝试吸取水来测试毛细管末端是否通畅。
注意:如果液体无法进入毛细管,则说明毛细管太细或已堵塞。可用剪刀轻轻剪去毛细管末端,但避免剪得过多,否则孔径过大将导致线虫被吸入。 - 将步骤3.1中制备的玻璃毛细管插入毛细管接头(图1C),该接头连接一段6 mm硅胶管,再将6 mm硅胶管的另一端插入一个0.2 µm滤器,该滤器的另一端连接一段3 mm硅胶管(图1C)。 将1 mL带滤芯吸头(图1C)插入3 mm硅胶管的游离端,用于吸取液体。
注意:在实验者口腔与毛细管之间加入0.2 µm滤器,以确保实验者的最大安全性。类似方案也用于操作小鼠胚胎的口吸移液管12。若口吸移液管无法再吸取液体,应更换滤器(通常每几个月更换一次)。 - 在解剖显微镜下使用口吸移液管,尽可能吸除固定线虫沉淀周围的液体(图2)。
注意:在步骤3.1至3.3中,可使用手动移液器代替口吸移液管吸取上清液,以尽可能去除上清。加入6 µL封片介质。然而,我们发现该方法效果较差,因为垫片中液体过多会导致线虫密度稀疏,从而增加成像耗时。继续进行步骤3.6。观察管底,确保移液管未吸入线虫。 - 迅速向管底加入10 µL封片介质(材料表)。
- 用含微量去污剂(0.01% Triton)的PBS冲洗10 µL吸头,以防止线虫粘附在塑料吸头内壁。用剪刀剪去吸头最末端。
- 将含有线虫的8 µL封片介质转移至步骤2.3中制备的琼脂糖垫上。在显微镜下轻轻晃动载玻片, 以避免线虫重叠。
- 用18 mm × 18 mm盖玻片覆盖琼脂糖垫上的封片介质液滴(图3)。
注意:优先选用较小的盖玻片,因其对线虫施加的压力较小。使用镊子夹住盖玻片,先将盖玻片的一边接触琼脂糖垫,再用镊子轻轻放下整个盖玻片。
4. 为成像固定活体线虫
注意:为了对活体线虫进行成像,需要将其固定在载玻片上。一种实现方法是使用烟碱型受体激动剂——左旋咪唑(材料表)使其麻痹。
- 用移液器吸取3−4 µL溶于M9缓冲液中的3 mM左旋咪唑,滴加到步骤2.3中制备的琼脂糖垫上。
注意:液体体积应足够,使线虫不会相互重叠,但又不能过多,以免线虫在垫上过于分散。有经验的线虫操作者可使用3 µL左旋咪唑;经验较少的操作者可能需要加入较大体积的左旋咪唑,以防止其完全蒸发。 - 每种条件下挑选30−50条线虫至左旋咪唑液滴中。
- 用18 mm × 18 mm的盖玻片覆盖琼脂糖垫上的左旋咪唑液滴。应在1小时内完成成像,因为麻痹试剂最终会导致线虫死亡。
5. 使用落射荧光显微镜对载玻片进行成像
- 使用厚度均匀的琼脂糖垫,例如采用荧光显微镜的20倍物镜,通过6 × 6或7 × 7的大视野图像一次性对载玻片上的所有线虫进行成像。如果琼脂糖垫厚度不均匀,则对同一载玻片采集多个较小的3 × 3或4 × 4图像。
- 所有实验条件下均使用相同的荧光强度和曝光时间设置。 根据荧光信号最强的载玻片调整各项参数,确保无像素饱和现象。有关图像采集的具体操作步骤, 请遵循显微镜制造商提供的说明。
6. 使用 Worm-align FIJI 流程创建排列整齐的单条线虫拼接图像
- 从 https://imagej.net/Fiji 下载并安装开源图像分析软件包 FIJI13/ImageJ14。如果计算机上已安装 FIJI,请确保其版本更新至 1.52a 或更高版本,因为宏中使用的部分功能(例如表格功能)需要该版本支持。从 GitHub 下载 Worm-align 宏:https://github.com/hannekeo/Worm-align。
- 打开 FIJI 并运行 Worm-align 宏。在 FIJI 主菜单栏中点击 插件 | 宏 | 运行 来执行 Worm-align 宏(图 S1)。然后在计算机中找到 Worm-align.ijm 脚本文件。
- 宏启动时会提示用户指定图像所在位置。该流程可处理单通道和多通道荧光图像(图 S2)。选择一个输入文件夹后,宏将自动生成一个输出文件夹,所有结果将保存在该文件夹中(图 S3)。
注意:所选文件夹中应仅包含图像文件,其他文件格式的存在会导致宏运行崩溃。理想情况下,仅将使用相同显微镜设置采集的图像归为一组。 Worm-align 支持多种文件格式,包括 nd2、czi、tif、rgb、jpg 和 png。 输出文件夹的名称与输入文件夹相同,并以“_output”作为后缀,例如,若输入文件夹名为“images”,则输出结果将保存在“images_output”中。输出文件夹包含四个子文件夹,用于分别保存数据。 - 允许宏继续运行,打开输入文件夹中的第一幅图像,并将其作为代表性图像用于提取生成拼接图的设置。
注意:Worm-align 将自动选择输入文件夹中的第一幅图像,以生成适用于该文件夹中所有其他图像的设置。如果认为其他图像更能代表整个数据集,可通过在输入文件夹中保存该图像副本并将其重命名为列表排序最前的名称(例如“0_RepresentativeImage”),确保该图像被选中。 - 使用 直线 绘图工具,在线虫的宽度方向上画一条线(图 S4),并利用该线的长度确定单个线虫裁剪区域的高度。针对每个通道,需指定其名称、查找表(LUT)、强度设置(B&C)以及是否将其包含在拼接图中(图 S4)。
注意:这些参数将被记录 并保存在输出文件夹的 CellProfiler 子文件夹中的设置文件 Settings.csv 中。 - 当所有设置完成后,用户将看到应用这些设置后图像的预览效果(图 S5)。如果设置已满足要求,请勾选顶部复选框。选择拼接图生成选项(如无需某项,请取消勾选):1. 为每幅单个图像中选定的线虫生成拼接图;或 2. 生成综合拼接图,将输入文件夹中所有图像上选定的线虫合并为一幅拼接图。点击 确定 以执行宏的其余部分。
注意:如果在点击“确定”前未勾选顶部复选框,宏将重新运行设置流程,以便优化图像设置。 - Worm-align 流程现在将继续打开输入文件夹中的所有图像。对于每幅图像,使用“分段线”工具(位于 FIJI 主菜单栏)在线虫的纵轴上绘制线条,以标记将被包含在拼接图中和/或用于定量分析的线虫(图 4 和 图 S6)。为确保线虫正确对齐,请始终从头到尾(或相反方向)沿线虫全长一致地绘制线条(参见 图 4B 中“良好”与“不良”线条绘制的示例)。
- 通过按下 Ctrl+T 将每条线添加到 ROI 管理器 中。Worm-align 利用添加到 ROI 管理器中的线条,结合第 6.4 步中设定的线虫宽度参数,生成单个选定线虫的裁剪图像。所有线形 ROI 的集合将保存在“data”子文件夹中。该文件夹还包含显示线条的原始图像副本以及线虫编号。线条使用 Glasbey_on_dark 查找表进行颜色编码。 拉直后的线虫图像将保存在输出文件夹的 single_worms 子文件夹中。此外,如果在本方案的第 6.6 步中已选择相应选项,Worm-align 将为每个概览图像中选定的所有线虫和/或输入文件夹中所有概览图像的线虫生成拼接图(见 图 4C 和 图 S7)。这些拼接图可于输出文件夹的“aligned”子文件夹中找到。
7. 使用 Worm-align 输出结果在自动化的 CellProfiler 流程中分析单条线虫的荧光强度
- 为了对 Worm-align 的输出进行下游数据处理与分析,请下载并安装开源图像分析软件包“CellProfiler15,16”,网址为 https://cellprofiler.org/。从 GitHub 下载 Worm_CP.cpproj 分析流程:https://github.com/hannekeo/Worm-align
注意:此处描述的示例流程使用 CellProfiler 2.2.0 构建,可能无法在 CellProfiler 的后续版本中运行。 - 在启动 Worms_CP.cpproj 流程之前,请确保 Worm-align 输出文件夹的 CellProfiler 子文件夹中包含所有预期的输出图像:原始图像的处理副本(命名为:Original_)、线虫群体的二值图像掩膜(命名为:Mask_)、在选定线虫上绘制的线条的线掩膜(命名为:Lines_),以及代表原始图像中每个通道的一幅图像(按通道编号命名)。
- 为量化单个线虫中的荧光强度,请点击 Images input 模块,并将 CellProfiler 输出文件夹直接拖入标有 Drop files and folders here 的窗口中。如果此前分析已存在图像列表,请先在窗口中右键单击并选择 Clear File List 以清除列表。为从图像列表中排除“Settings.csv”文件,请在筛选设置中选择“Images only”或“Custom”,并设置“Extension is tif, tiff, ome.tif, or ome.tiff”(图 S8)。
- 点击 Metadata input 模块。在第二种提取方法中,点击黄色文件夹,定位到 WormAlign 输出文件夹中的 CellProfiler 子文件夹(图 S9)。选择 Settings.csv 文件,并通过将 CSV 文件中的元数据与图像中的元数据(通道元数据)匹配,将文件中的设置链接至 CellProfiler 输出。
- 点击 NamesAndTypes 输入模块,并为需要量化的原始图像的每个通道插入一个新的图像。
注意:示例流程中已包含线虫掩膜、两幅彩色图像、线掩膜和原始图像,以及三幅灰度图像(绿色和红色通道)。如果原始图像的通道数多于或少于示例图像,则需要调整该模块中的列表。 - 检查每列中图像名称在标签/掩膜/线虫列中的命名是否正确。
注意:每行中的图像名称应全部对应于同一幅待分析的初始图像。如果在图像分析过程中出现错误,部分输出图像将缺失,且每行中标签/掩膜/线虫三列下的名称将不再对应同一初始图像。若出现此情况,请查找错误发生的位置。 - 点击 View output setting 以选择保存 CellProfiler 输出结果的文件夹。
- 点击 Start Test Mode。进入测试模式后,通过点击 Run(将运行流程中所有激活的模块)或 Step(逐个模块运行流程),对数据集中的第一幅图像应用设置,以再次核对流程设置。
注意:在测试模式下,即使流程中存在(并启用了)ExportToSpreadsheet 模块,提取的测量结果也不会被导出。 - 当流程按预期运行后,点击 Exit Test Mode,然后点击 Analyze Images。当前配置下,Worms_CP 将执行以下操作:(1) 使用 Mask_ 图像分割出粗略的线虫掩膜,并利用 Lines_ 图像(图 S10A)分离出选定的线虫,生成单个线虫掩膜(图 S10C);(2) 测量输入图像中所有通道在已识别并掩膜化线虫中的荧光强度。该流程还可测量背景强度(图 S10B),并据此对所有图像进行校正(参数名称中带有“threshold”一词表示已校正,例如:Intensity_MeanIntensity_green_threshold);(3) 测量所选线虫的大小;(4) 导出所有测量参数(图 S10D)。
- 打开由两个 CSV 文件组成的 Worm_CP 输出结果,即 worms.csv 和 lines.csv,这些文件 保存在选定的输出文件夹中(见 图 S11)。这些文件可在 Excel 或 R(Studio)中打开,用于后续处理与报告。如果需要额外输出(例如按图像的数据),可在流程中的 ExportToSpreadsheet 模块中进行选择。
结果
根据本实验方案所述方法培养和成像 C. elegans,可获得线虫群体的大幅概览图像。为了便于对这些图像中的线虫进行视觉检查与分类,我们开发了 Worm-align 工具。Worm-align 是一个简单且用户友好的 FIJI 脚本,可用于生成拉直并排列整齐的线虫拼接图。通过在概览图像中沿线虫的纵轴画一条线来选择目标线虫。每条被选中的线虫将被分配一个编号,随后被裁剪、拉直,并添加到拼接图中。拼接图可以针对单张图像生成,也可以合并原始输入文件夹中的所有图像生成。
正如预期,该流程的输出结果在很大程度上取决于在图像上绘制线条的质量。图4展示了若干条线示例及其在Worm-align中的输出结果。从头部到尾尖绘制完整的一条线可产生正确对齐的线虫(标记为“良好”)。图4还说明了在执行Worm-align过程中,描迹不准确如何影响对齐结果。根据图4C中包含的标注图像拼接图,应特别注意避免以下错误,因为这些错误会妨碍线虫的正确对齐:
- 从头部到尾部追踪线虫不一致(标记为“尾部到头部”)。这会导致在比对过程中线虫朝向不同(即尾对头与头对尾混杂)。
- 追踪不完整(标记为“不完整”)。这会导致仅被追踪的部分线虫被裁剪并用于拼接图。
- 单次追踪中包含多条线虫(标记为“两条头的线虫”)。这会导致目标线虫及其邻近线虫的(显著部分)被一同插入到拼接图的同一面板中。
- 在图像中添加随机线条(标记为“随机”)。这会导致在拼接图中插入随机的面板。
在创建拼接图时,如果两条独立的线相交(标记为“相交”)或在蠕虫的任一端连接(标记为“连接”),只要每条线完整地追踪了一条单独蠕虫的全长,则不会影响结果:Worm-align 脚本会逐个依次选择每条线形选区(ROI),对其进行裁剪和拉直,从而使最终拼接图中的每个面板都代表一条独立的线迹。然而,对于相交的蠕虫,尽管在拼接图中,“相交1”和“相交2”蠕虫均显示为完整长度且已被拉直的图像(见图5A-B),但可以明显看出,这些蠕虫在原始概览图像中彼此交叉。因此,可以得出结论:通过位于“data”子文件夹中的叠加图像(图5A),以及拼接图中各个蠕虫的面板图像(图5B),均可实现对相交线迹的视觉识别。此外,任何蠕虫/线迹之间的重叠情况还可通过 Worm-align 为每张处理后的图像生成并保存在 data 子文件夹中的质量控制(QC)表格进行识别。该表格记录了图像中每条线形选区(ROI)的三个参数(见图5C):其中,Length 表示线形选区的长度,是蠕虫大小的良好指标;Worm number 表示在概览图像上绘制线条的顺序。最后,最后一列指示当前蠕虫/线迹是否与图像中选择的其他任何蠕虫/线迹存在重叠。若存在重叠,该列中的数值将不同于Worm number列中列出的数值。结合叠加图像与QC表格,研究人员可据此做出合理判断,决定哪些蠕虫应从拼接图和/或定量分析中排除。
Worm-align 的输出结果可用于后续对单条线虫的荧光强度进行定量分析。在 FIJI 中,可利用线状选区(line ROIs)在原始图像数据中测量荧光强度,例如运行简单的 FIJI 脚本“Worm-quant.ijm”,该脚本也可在 Github 上的 Worm-align 仓库中找到。此外,Worm-align 的输出结果也可导入第三方图像分析软件中进行处理。我们以将两组数据集的 Worm-align 输出结果导入 Worm_CP 为例进行说明,Worm_CP 是我们在 CellProfiler 中构建的一个分析流程。Worm_CP 利用 Worm-align 输出文件夹中“CellProfiler”子文件夹内的文件,对 Worm-align 宏执行过程中选定的单条线虫的分割掩膜进行精细调整。具体而言,该流程利用线状掩膜(命名为:Lines_)将选定的线虫从二值掩膜(命名为:Mask_)中所显示的线虫群体中分离出来。需要注意的是,在概览图像中相交的线条(图5A),尽管对生成拼接图像没有影响,但会对 Worm_CP 分析流程造成问题。其原因如图所示 图5 D-E. Worm_CP 使用线状掩膜(图 5D),而不是单独的 ROI,以帮助识别单个蠕虫。在执行 Worm-align 时,第二条绘制的交叉线会叠加在第一条线上,因此该线上的强度将属于 ROI2,包括线1与线2重叠的部分。结果是,CellProfiler 会将 line2 分割为一个对象,而将 line1 分割为两个对象,这两个对象在其与 line2 相交处被分隔开。这意味着 CellProfiler 将为蠕虫“intersecting1”生成两个(半条)蠕虫掩膜(图5E)。如果需要从最终分析中排除这些事件,最简单的方法是通过质控表(数据子文件夹)识别出相交线虫的编号,并从CellProfiler输出文件中删除这些线虫的测量数据。请注意,同一线虫在FIJI和CellProfiler中的编号不一定相同:要确定FIJI中的线虫编号在CellProfiler输出文件中的对应关系,请查看“Lines.csv”输出文件中的Intensity_Max_Intensity值。若在“Lines.csv”表格中,某个Intensity_Max_Intensity值在单张图像中出现多次,则表明该线状ROI导致了线虫掩模的断裂。
一旦完成单个线虫掩膜的分割,Worm_CP 即可针对所有记录的通道测量选定线虫的荧光强度。所有测量均基于原始(未处理)图像数据进行,但需注意,CellProfiler 会自动将像素强度值重缩放至 0-1 范围内。该重缩放通过将原始像素强度值除以图像中可能的最大像素强度值得到。对于 8 位图像,该最大值为 255;对于 16 位图像,则为 65535。因此,为恢复与原始图像数据等效的数值,需将 CellProfiler 输出的强度值乘以对应位深下的最大可能强度值。Worm_CP 的输出结果包含两个 CSV 文件:“worms.csv” 和 “Lines.csv”,保存于用户指定的输出文件夹中。检查这些文件时可发现,CellProfiler 记录了大量与荧光强度相关的参数。其中,Intensity_IntegratedIntensity 表示每条线虫的总荧光强度(即构成单条线虫掩膜的所有像素内荧光强度值的总和);参数 Intensity_MeanIntensity 则表示单条线虫内部的平均荧光强度(即单条线虫所包含所有像素的每像素平均荧光强度)。由于线虫掩膜分割过程中偶尔可能出现(微小)误差,因此在比较两种条件下个体线虫的荧光强度时,建议使用 MeanIntensity 测量值。若需从定量测量结果中扣除背景荧光,请使用名称为 MeanIntensity_Threshold 的测量参数。
我们使用 Worm_CP 分析流程来定量固定动物中脂滴(LDs)的荧光强度,这些动物已用可掺入脂滴的荧光染料进行标记(图6)。为了验证 Worm-align/Worm_CP 分析流程的荧光定量结果,我们对 BODIPY 数据集中的同一批线虫,分别采用 Worm-align/Worm_CP 分析流程或在 FIJI/ImageJ 中进行手动定量,以比较其荧光强度。在 FIJI/ImageJ 中的手动定量方法为:在每张图像中圈选每条线虫以及一个黑暗背景区域,利用 ROI 管理器测量荧光强度,并从每条线虫的荧光测量值中减去对应图像背景的测量值,具体方法如文献17所述。我们将野生型(WT)N2 线虫与脂滴含量降低的dbl-1(nk3)突变体进行了比较18。正如预期,无论是使用哪种方法,WT 与dbl-1(nk3)线虫之间的绿色荧光强度均显著降低(图6A,B)。对齐后的线虫示例见图6C,D。通过手动定量分析,WT 与dbl-1(nk3)线虫之间的脂滴含量降低了17%(p值<0.0001,非配对t检验);而使用 Worm_CP 分析流程则降低了14%(p值=0.0051,非配对t检验)。两种定量方法均显示dbl-1(nk3)突变体的脂滴含量降低,该结果与已有文献报道一致18。这表明,使用 Worm_CP CellProfiler 分析流程对获取的荧光图像进行定量,其结果与手动定量具有可比性。
我们还使用 Worm_CP 对在热休克诱导基因 hsp-70(C12C8.1)9 启动子控制下表达 GFP 的活体线虫中的热休克反应进行了定量分析。图7 展示了携带热响应性 hsp-70(C12C8.1)p::GFP 报告基因的活体 C. elegans 的代表性图像。在无热应激条件下,线虫不诱导 GFP 表达(图7A,B)。然而,当线虫暴露于 34 °C 下持续 30 分钟的短暂热休克时,会诱导 GFP 表达(图7C,D)。有无热休克条件下的 GFP 表达水平已在 图7E 中进行定量。
目前,Worm_CP 是一个非常基础的分析流程。然而,这种方法能够更准确地分割出单个线虫的掩膜,从而更精确地量化从图像中选出的线虫的荧光强度。因此,我们更倾向于采用这种方法,而不是在 FIJI 中仅使用线状掩膜进行粗略的定量分析。此外,CellProfiler 的优势在于可以轻松地在流程中加入额外的分析模块。例如,针对分析脂滴含量的数据集,可在 Worm_CP 流程中插入额外模块,以研究概览图像中选定线虫内单个脂滴的数量及其荧光强度。
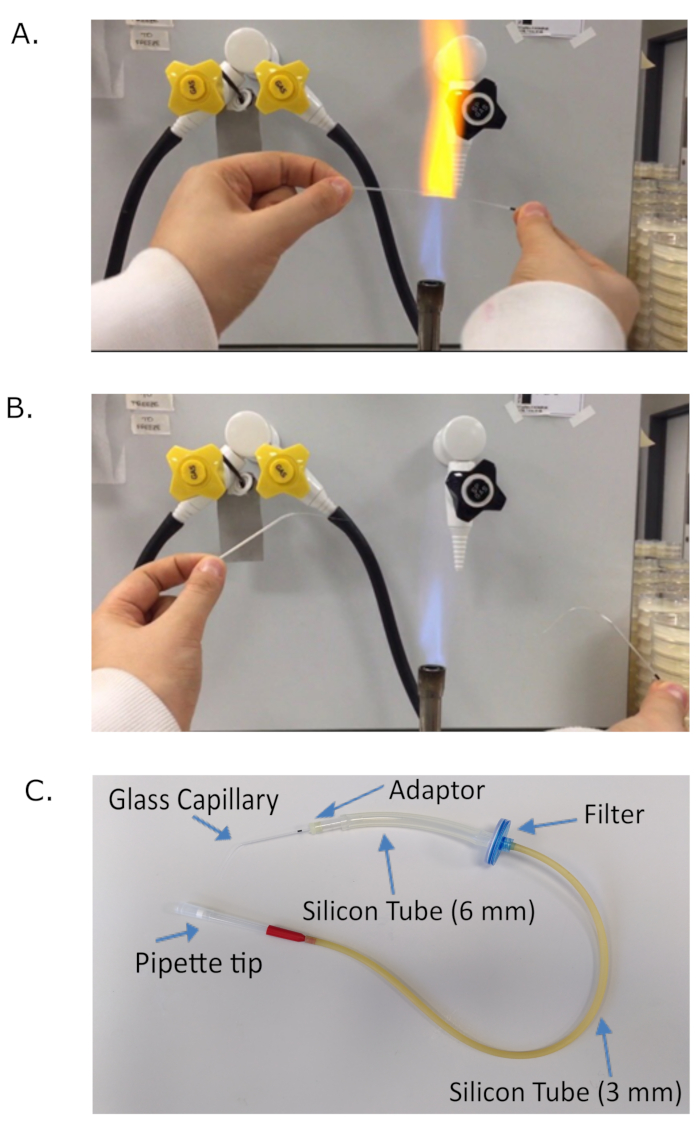
图1:制备口控微量移液器。将玻璃毛细管置于本生灯火焰中加热(A),直至其拉伸形成细长的末端(B)。然后将拉伸后的玻璃毛细管插入口控微量移液器的连接头中。(C)口控微量移液器的示意图。该装置由插入连接头的玻璃毛细管组装而成。一段6 mm的硅胶管将连接头与一个0.2 µm的一次性针头滤器相连,以确保操作安全。滤器的另一端连接一段3 mm的硅胶管,末端接一个1 mL带滤芯的吸头。实验人员可通过该滤芯吸头进行吸取操作。请点击此处查看该图的放大版本
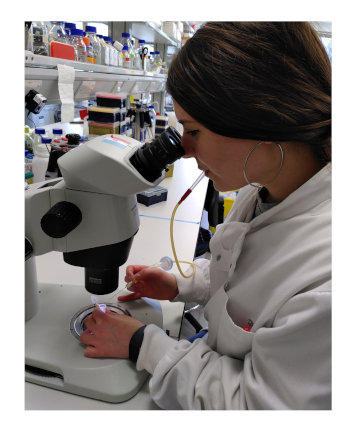
图2:使用口控微移液管吸取线虫沉淀物周围的液体。 请点击此处查看该图的放大版本。
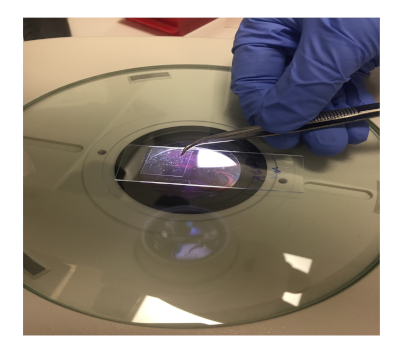
图 3:将盖玻片盖在置于琼脂糖垫上的线虫上 请点击此处查看该图的放大版本。
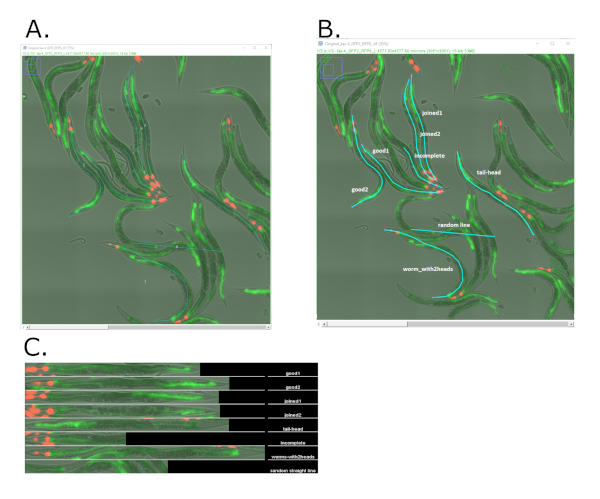
图4:使用Worm-align对活体线虫肠道中携带转录报告基因fat-7p::GFP及咽部红色共注射标记(myo-2p::tdtomato)的荧光图像进行线虫拉直的示例。(A)在成虫第3天获取的活体线虫荧光显微镜复合图像的截图。该图像在Worm_align中打开,并使用Worm-align沿线虫纵轴绘制线条。(B)与(A)相同的图像截图,使用Worm-align标注了沿线虫轴线正确与错误绘制线条的示例。(C)在线虫上方绘制线条的示例,若绘制不当可能导致线虫对齐错误。图中展示了B部分所选线虫经Worm-align处理后的输出结果。图像使用倒置宽场显微镜(见材料表)配备20倍物镜拍摄,绿色荧光强度设为1,曝光时间为60 ms;红色荧光强度设为8,曝光时间为60 ms。请点击此处查看该图的放大版本。

图 5:使用 Worm-align 对交叉线虫进行拉直处理的示例。(A)在荧光显微镜下拍摄的成虫第3天活体线虫复合图像的截图,线虫肠道中携带转录报告基因fat-7p::GFP,咽部含有红色共注射标记(myo-2p::tdtomato)。交叉的线虫标记为“intersecting1”和“intersecting2”,无重叠的线虫标记为“good3”和“good4”。(B)由 Worm-align 生成的拼接图,展示在(A)中选定的拉直后的线虫。从拼接图中可以明显看出,线虫1和线虫2在原始图像中存在交叉(即标记为“intersecting1”和“intersecting2”的线虫)。(C)Worm-align 的质控表(QC table)截图,可用于识别线虫交叉的情况。长度:ROI线的长度;线虫编号:绘制线条的顺序;最后一列表示目标线虫/线条是否与其他线虫存在重叠。在此示例中,第一行的线虫(线虫编号1)与线虫编号2存在重叠,如最后一列中的数字“2”所示。(D)在A图中选定的四条线虫上使用 Worm-align 绘制的线条截图。(E)Worm-align 针对A图中选定的四条线虫生成的掩膜截图,显示了两条交叉线虫的掩膜生成情况。在此情况下,原本属于“intersecting1”的线虫被分成了两个掩膜。图像使用倒置宽场显微镜(见材料表)配备20倍物镜拍摄,绿色荧光强度为1,曝光时间为60 ms,红色荧光强度为8,曝光时间为60 ms。请点击此处查看该图的放大版本。
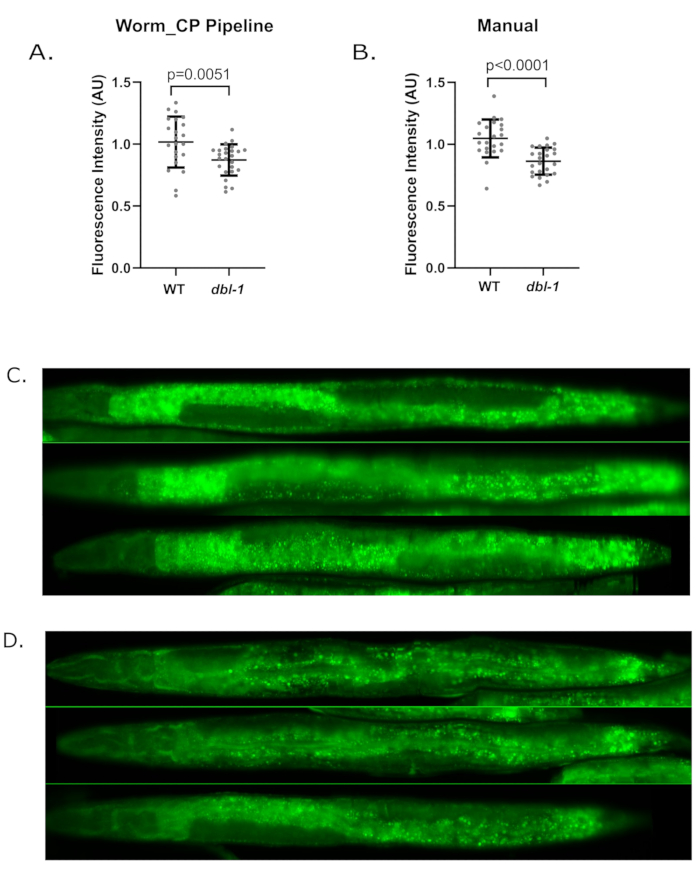
图6:Worm_CP流程对荧光的定量精度与人工定量相当。 使用 Worm_CP 流程与手动分析方法对经 BODIPY 绿色荧光染料固定并染色的年轻成虫蠕虫脂滴含量进行荧光定量比较A)或手动定量(B). 野生型(WT)和 dbl-1 (nk3) 通过使用BODIPY对动物进行固定和染色来监测脂滴中的脂肪酸(见方案A)。将年轻成虫期动物用60%异丙醇固定,随后用BODIPY染色1小时。同一组动物采用Worm_CP分析流程(见步骤7)或按照标准操作进行人工定量分析。17. (A使用 Worm_CP 流程进行荧光定量。WT:n=22 只动物,平均荧光强度 = 1.016(A.U)± 0.206 SD; dbl-1(nk3):n=25 只动物,平均荧光强度 = 0.8714 (A.U)± 0.126 SD。非配对 t 检验。(B)荧光强度的手动定量。WT:n=22 只动物,平均荧光强度 = 1.048 ± 0.153 SD; dbl-1(nk3):n=25 只动物,平均荧光强度 = 0.8632 ± 0.109 标准差。非配对 t 检验。(C, D) 野生型(WT)的 Worm-Align 输出代表性示例C)和 dbl-1(nk3) (D) 使用 Worm-align 流程对动物进行拉直处理。采用倒置宽场显微镜(见材料表)配备 20 倍物镜拍摄图像,绿色荧光强度设为 2,曝光时间为 60 毫秒。 请点击此处以查看此图的放大版本。
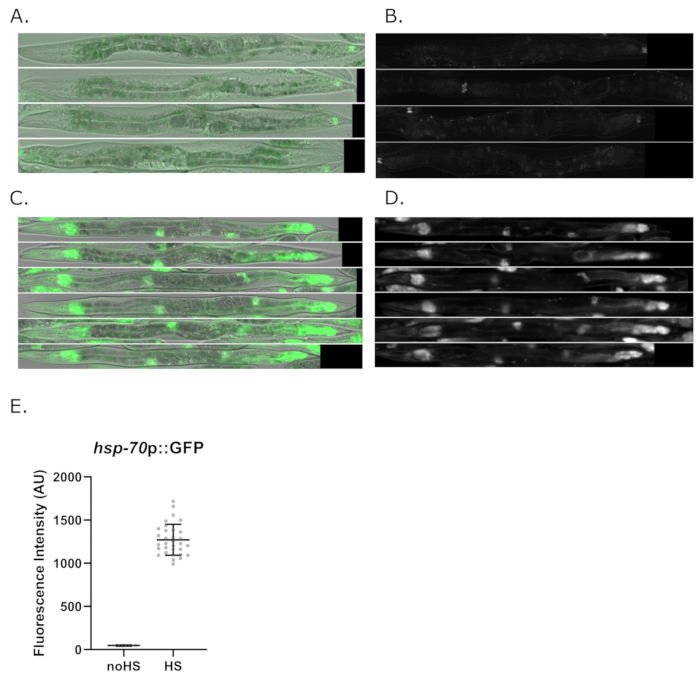
图7:利用荧光图像对活体线虫进行荧光定量与线虫排列对齐的示例,线虫携带转录报告基因 hsp-70(C12C8.1)p::GFP 并经历热激处理。(A)经过短暂热激(34 °C 下 30 分钟)后,将年轻成虫线虫恢复至培养温度(25 °C),并在热激后 3.5 小时进行固定和成像。使用 Worm-align 分析流程对约 30 条线虫在热激后的荧光信号进行了定量。(A-B)未经热激处理的线虫排列对齐示例。(C-D)携带 hsp-70(C12C8.1)p::GFP 的热激处理线虫使用 Worm-align 进行排列的示例。(E)显示野生型年轻成虫线虫在无热激或经热激处理(34 °C 持续 30 分钟)条件下的 GFP 平均荧光强度(Worm_CP 参数:MeanIntensity_Threshold)。图像使用倒置宽场荧光显微镜(见材料表)配备 20 倍物镜采集,绿色荧光强度设为 1,曝光时间为 60 ms;无热激组:n=12,热激组:n=32。请点击此处查看该图的放大版本。
补充图1:安装后,Worm-align宏在FIJI中的位置。 请点击此处下载该文件。
补充图2:选择包含所有相同设置下拍摄图像的文件夹。 请点击此处下载该文件。
补充图3:在FIJI中输出文件夹内生成4个子文件夹。 请点击此处下载该文件。
补充图4:横跨线虫宽度的线条示意图及拼图图像的通道设置。 请点击此处下载该文件。
补充图5:应用设置后的图像预览。 请点击此处下载该文件。
补充图6:沿目标蠕虫体长轴绘制线条,用于图像拼接和/或定量分析。 请点击此处下载该文件。
补充图7:输出文件夹中“aligned”子文件夹内选定线虫的拼接图像。 请点击此处下载该文件。
补充图8:在Cell Profiler中清除之前分析的图像。 请点击此处下载该文件。
补充图9:通过选择Worm-align输出文件夹中的Settings.csv子文件夹,将元数据导入CellProfiler。 请点击此处下载该文件。
补充图10:CellProfiler流程Worm_CP.cpproj使用Lines_图像来选定目标线虫(A),并生成所关注线虫的单个虫体掩膜(C)。该流程还测量背景强度(B)。图中显示了流程Worm_CP.cpproj所测量的全部参数概览,这些参数将导出为一个csv文件(D)。请点击此处下载该文件。
补充图11:在 Worm_CP.cpproj 分析流程中“导出到电子表格”步骤的输出文件选择。 请点击此处下载该文件。
讨论
Worm-align 是一个基于 FIJI 的图像处理流程,可轻松生成用户选定的线虫拼接图,其中线虫被拉直并进行对齐,以方便视觉比较、分类和展示。尽管已有某些现有工具提供类似功能,尤其是 CellProfiler 中的 WormToolbox 模块7,但 Worm-align 所需的前期图像分析经验相对较少:用户只需在图像中描迹出希望用于拼接图(及分析)的线虫即可。虽然在原始图像数据上描迹线虫是一个简单的过程——尤其是在使用触摸屏计算机或平板设备时——但至关重要的是,描迹线必须准确沿线虫的纵轴绘制。若描迹线不完整,仅覆盖线虫的一部分,则会导致拼接图中出现不完整的线虫(例如缺失头部或尾部),并在 CellProfiler 分析中产生不完整的分割掩膜。此外,若两条来自不同个体线虫的描迹线发生交叉,则线虫在对齐拼接图以及荧光定量分析中均无法被正确处理。为进行质量控制,系统会将描迹线在原始图像上的叠加图保存至数据文件夹中,同时保存一份质控表(QC table)。通过这些信息,可快速识别出可能导致线虫分割错误的问题描迹线,并将其从拼接图和/或后续分析中排除。
尽管在选择线虫时需要实验人员直接参与,看似略微耗时,但在同一图像中存在不同发育阶段线虫的实验中,该工作流程相比其他方法具有明显优势:在“轨迹追踪步骤”中,只需勾画处于正确发育阶段的线虫即可完成筛选。或者,也可根据Worm_CP输出的轨迹线长度或分割掩膜面积对线虫进行筛选,这两者均为线虫长度/大小的可靠指标。可以认为,由于不同发育阶段的线虫在微分干涉差显微镜(DIC)图像中的尺寸和外观差异较大,机器学习算法可能难以准确识别这些线虫。
Worm-align 的输出结果可用于后续对单条线虫的荧光强度进行定量分析,既可直接在 FIJI 中完成,也可在其他图像分析软件平台上实现。我们通过将 Worm-align 的输出结果导入一个简单的 CellProfiler 分析流程(Worm_CP)来展示这一应用,该流程能够对运行 Worm-align 流程时选定的单条线虫进行多通道荧光强度的定量分析。我们选择这种方法是因为 CellProfiler 软件具有良好的灵活性:可轻松在流程中加入额外模块,以分析单条线虫的其他特征(例如脂滴、应激颗粒、细胞核或线粒体的大小)。此外,这些单条线虫的掩膜图像还可用于训练 WormToolbox7 的新模型。
该方法的主要优点是 操作快速,且仅需简单的线虫固定装置。此方法更为快捷,无需花费时间学习软件操作,也无需通过机器算法运行训练集7。此外,该方法适用于直接固定在常规琼脂糖垫上的活体或固定线虫,无需使用其他方法中开发的复杂微流控腔室5,6。
披露
作者无任何利益冲突需要披露。
致谢
我们感谢捷克共和国布拉格BIOCEV的Christian Lanctôt博士向我们传授使用口控微量移液器技术固定线虫的方法,同时感谢Fatima Santos博士和Debbie Drage博士分享口控微量移液器的安全操作设置。我们还感谢Francesca Hodge对稿件的编辑,以及Sharlene Murdoch和Babraham研究所设施团队提供的支持。OC的研究得到了欧洲研究理事会(ERC 638426)和英国生物技术和生物科学研究生理事会(BBSRC [BBS/E/B000C0426])的资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 琼脂糖 | MeLford Biolaboratories Ltd | MB1200 | |
| 吸管 | Sigma-Aldrich | A5177 | 用于制作口吸微移液管(见实验步骤) |
| 烧杯 | |||
| BODIPY 493/593 | Invitrogen | D3922 | 用DMSO配制的储存液,浓度为1mg/mL |
| 离心机 | MSE MISTRAL 1000 | ||
| 锥形瓶 | |||
| 盖玻片 | VWR | 631-0120 | |
| 0.2 µm 注射器滤器 | Sartrius | 16534-K | 滤器,用于制作口吸微移液管(见实验步骤) |
| 异丙醇 | |||
| 盐酸左旋咪唑 | Sigma-Aldrich | BP212 | 将左旋咪唑溶于M9缓冲液中配制成3 mM溶液 |
| 液氮 | 液氮设施 | ||
| 低吸附枪头 1000µL | Starlab | S1182-1830 | |
| 甲醇 | VWR chemicals | 20847.307 | |
| 显微镜载玻片,MENZEL GLASSER | Thermo Scientific | BS7011/2 | |
| 显微镜 | Nikon | Eclipse Ti | |
| 微波炉 | Delongi | ||
| M9缓冲液 | 根据15在实验室中配制 | ||
| 9 cm NGM平板 | 根据15在实验室中配制 | ||
| PBS缓冲液 | 在实验室中配制 | ||
| 蛋白低吸附管 2 ml | Eppendorf | 22431102 | |
| 吐温-20 | SIGMA | T9284-500ML | |
| 玻璃毛细管 | SIGMA-ALDRICH | Z611247-250EA | 玻璃微毛细管,用于制作口吸微移液管(见实验步骤) |
| 旋转混合仪 | Stuart Scientific | ||
| 透明硅胶管 | Scientific Laboratory Suppliers | TSR0600200P | 内径2.0 mm,外径6.0 mm — 用于制作口吸微移液管(见实验步骤) |
| 灭菌H2O | 实验室中经高压灭菌的MilliQ水 | ||
| 10µL枪头 | Starlab | S1120-3810 | |
| 200µL枪头 | Starlab | S1120-8810 | |
| 1000µL枪头 | Starlab | S1122-1830 | |
| 15 mL离心管 | CORNING | 430791 | |
| Vecta Shield封片剂 | VECTOR | 94010 | 抗荧光淬灭封片剂(H-1000),不含DAPI |
参考文献
- Shave, D. D., Greenwald, I. OrthoList: A compendium of C. elegans genes with human orthologs. PLoS One. 6 (5), 20085(2011).
- Stiernagle, T. Maintenance of C. elegans. WormBook. , (2006).
- Letizia, M. C., et al. Microfluidics-enabled phenotyping of a whole population of C. elegans worms over their embryonic and post-embryonic development at single-organism resolution. Microsystems & Nanoengineering. 4 (6), (2018).
- San-Miguel, A., Lu, H. Microfluidics as a tool for C. elegans research. WormBook. , (2013).
- Atakan, H. B., et al. Automated Platform for Long-Term Culture and High-Content Phenotyping of Single C. elegans Worms. Scientific Reports. 9 (1), 120-135 (2019).
- Atakan, H. B., Cornaglia, M., Mouchiroud, L., Auwerx, J., Gijs, M. A. M. Automated high-content phenotyping from the first larval stage till the onset of adulthood of the nematode Caenorhabditis elegans. Lab on a Chip. 19 (1), 120-135 (2018).
- Wählby, C., et al. An image analysis toolbox for high-throughput C. elegans assays. Nature Methods. 9 (7), 714(2012).
- Morimoto, R. I. The heat shock response: systems biology of proteotoxic stress in aging and disease. Biology. 76 (9), 91-99 (2012).
- Guisbert, E., Czyz, D. M., Richter, K., McMullen, P. D., Morimoto, R. I. Identification of a tissue-selective heat shock response regulatory network. PLoS Genetics. 9 (4), (2018).
- Klapper, M., et al. Fluorescence-based fixative and vital staining of lipid droplets in Caenorhabditis elegans reveal fat stores using microscopy and flow cytometry approaches. Journal of Lipid Research. 52 (6), 1281-1293 (2011).
- Wählby, C., et al. and low-throughput scoring of fat mass and body fat distribution in C. elegans. Methods. 68 (3), 9(2014).
- Kurimoto, K., Yabuta, Y., Ohinata, Y., Saitou, M. Global single-cell cDNA amplification to provide a template for representative high-density oligonucleotide microarray analysis. Nature Protocols. 2 (3), 739-752 (2007).
- Schindelin, J., et al. Fiji: An open-source platform for biological-image analysis. Nature Methods. 9 (7), 676-682 (2012).
- Rueden, C. T., et al. ImageJ2: ImageJ for the next generation of scientific image data. BMC Bioinformatics. 18, 529(2017).
- Carpenter, A. E., et al. CellProfiler: image analysis software for identifying and quantifying cell phenotypes. Genome. 7, 100(2006).
- Kamentsky, L., et al. Improved structure, function and compatibility for CellProfiler: modular high-throughput image analysis software. Bioinformatics. 27 (8), 1179-1180 (2011).
- Casanueva, M. O., Burga, A., Lehner, B. Fitness trade-offs and environmentally induced mutation buffering in isogenic C. elegans. Science. 335 (6064), 82-85 (2012).
- Clark, F. J., Meade, M., Ranepura, G., Hall, D. H., Savage-Dunn, C. Caenorhabditis elegans DBL-1/BMP Regulates Lipid Accumulation via Interaction with Insulin Signaling. G3. 8 (1), Bethesda. 343-351 (2017).
重印与许可
