本文旨在提供一种标准化的方法,以诱导人多能干细胞分化为肝祖细胞。该实验流程结合即用型培养基配方,为用户提供了便捷的系统,可用于生成人肝细胞,服务于生物医学研究及转化应用。
本文内容
摘要
摘要
肝脏疾病是一项日益严重的全球健康问题。尽管肝移植是一种有效的治疗手段,但由于供体器官短缺,患者的死亡率不断上升。器官稀缺也影响了基础研究和临床对人肝细胞的常规供应。因此,开发可再生的人源肝前体细胞来源成为迫切需求,也是本研究的目标。为了能够大规模有效地生成和应用人肝前体细胞,本研究建立了一种可重复的肝前体细胞分化体系。该方案有助于在不同细胞培养器皿格式中实现用户间的实验可重复性,并支持利用人胚胎干细胞和诱导性多能干细胞系进行分化。相较于现有的分化系统,这些优势将促进基础研究的发展,并可能为临床产品开发铺平道路。
引言
肝脏疾病是全球性的健康挑战,每年在全球范围内导致约200万人死亡1。尽管已有多种模型系统可用于研究肝脏疾病并进行临床干预,但基于细胞的系统在常规应用中受到显著局限性制约(综述见Szkolnicka等2)。先进的人类多能干细胞(hPSC)培养和体细胞分化技术代表了极具前景的方法,可用于开发基础生物医学研究工具,以及为临床提供可再生的分化细胞来源3,4。
迄今为止,已开发出多种肝细胞样细胞(HLC)分化的实验方案5,6,7,8。这些方案试图通过联合使用小分子化合物和生长因子来模拟人类肝脏发育的某些过程9,10。大多数方案包括一个逐步分化的流程:首先将人多能干细胞(hPSCs)诱导为定型内胚层,随后定向分化为肝祖细胞11,12,13,最终完成HLC的特化。通过这些方案获得的HLC表现出胎儿和成体表型的混合特征,包括甲胎蛋白(AFP)的表达、肝细胞标志物如HNF4α和 白蛋白(ALB)的表达,以及药物代谢能力14,15,16。不同实验室之间的HLC分化效果可能存在差异,因此建立标准化的实验方案十分必要。这将有助于研究人员在基础研究和临床研究中大规模高效地生成和应用干细胞来源的HLC。
建立了一种肝前体细胞分化体系,该体系可应用于人胚胎干细胞和诱导性多能干细胞系,并配有易于遵循的操作指南。该方法可在多种培养容器中获得均一的肝前体细胞群体,培养容器类型包括细胞培养瓶至96孔板。下文提供了在24孔板和96孔板中培养干细胞来源肝前体细胞的实验方案。
以下方案中所使用的细胞密度分别针对24孔板和96孔板的一个孔(参见 表1). 不同细胞培养板规格和细胞系需要优化起始细胞数量。建议用于方案优化的起始细胞密度为 2 x 10⁵ 细胞/厘米²2. 为优化密度,可通过增减 ±50,000 个细胞/cm² 来测试多种细胞密度2 一次一个。
方案
1. 人多能干细胞(hPSC)在层粘连蛋白-521上的培养维持
- 将人多能干细胞(hPSCs)在含层粘连蛋白-521(LN-521)的6孔板中,于37 °C、5% CO2条件下培养。自选择的分化起始日(第0天)起,每天每孔加入2 mL干细胞维持培养基(如mTeSR1培养基)进行换液。
- 在细胞收获前,确保细胞汇合度达到70–80%的理想范围。
2. 用于分化的人多能干细胞接种与层粘连蛋白-521 多孔板制备
注意:对于未在 LN-521 上培养的 hPSC(例如,在 Matrigel 或纤连蛋白上培养的细胞),在传代并诱导分化前,需先将 hPSC 接种至 LN-521 上培养 1 周,以提高该过程的效率15,17,18。
- 层粘连蛋白包被板的制备
- 将一管重组LN-521(100 μg/mL)在4 °C下解冻2小时或过夜。
- 用预冷的含Ca2+/Mg2+的1×DPBS稀释解冻后的LN-521,配制成8 μg/mL的溶液。
- 向24孔板的每孔加入0.25 mL 8 μg/mL的LN-521溶液,或向96孔板的每孔加入0.05 mL。轻轻左右摇动平板,使LN-521溶液均匀覆盖各孔。
注意:对于96孔板格式,可使用半自动化流程进行加样、细胞接种和换液操作。具体细节参见Meseguer-Ripolles等19。 - 用半透明、柔性的封口膜密封已包被LN-521的平板,并在使用前于4 °C保存过夜。
注意:LN-521包被的平板在4 °C下可保存最多两周。避免层粘连蛋白包被的孔发生干燥。
- 在细胞接种当天,将预包被的平板置于37 °C细胞培养孵育箱中预热30–60分钟。
- 吸除LN-521溶液。
注意:吸液时避免移液器头直接接触孔底,以防破坏LN-521包被层。 - 向24孔板的每孔加入0.5 mL新鲜添加了10 µM Rho相关激酶(ROCK)抑制剂Y27632的干细胞维持培养基,或向96孔板的每孔加入0.05 mL。将平板放回孵育箱,待细胞接种时取出。
- 在预定接种日(第0天),当hPSC融合度达到70–80%时,用记号笔在6孔板孔底标记出任何自发分化的区域。
注意:可通过相差显微镜观察细胞大小的明显变化和/或不同细胞形态的出现来识别自发分化区域。 - 吸除并弃去标记的分化区域及耗尽的培养基。每孔用1 mL不含Ca2+/Mg2+的DPBS在室温(RT)下洗涤一次。
- 向每孔加入1 mL无酶解离试剂(见材料表),在37 °C孵育8–10分钟,直至细胞明显从培养板上脱离。
- 使用细胞刮轻轻将细胞从孔中刮下。用P1000移液器将每孔液体上下吹打2–4次,获得单细胞悬液。对每种细胞系,将所有维持培养孔中的细胞收集至一个无菌的50 mL离心管中。
- 用1 mL干细胞维持培养基洗涤每个已清空的孔,并将洗涤液加入对应含有该细胞系混合细胞的离心管中。
- 对每种细胞系的混合样本进行三次活细胞计数。计算每种细胞系的平均活细胞浓度(活细胞数/mL)。
- 将混合样本在室温下以250 × g离心5分钟。吸除上清液,然后用1–3 mL室温的干细胞维持培养基重悬细胞沉淀,该培养基需新鲜添加10 μM ROCK抑制剂Y27632。
- 根据步骤2.4中准备的孔数,计算每种细胞系所需的细胞数量(见表1)。用新鲜添加了10 μM ROCK抑制剂Y27632的干细胞维持培养基重悬所需数量的细胞。
- 将计算好的体积加入步骤2.4中已准备好的预包被板的各孔中,无需移除先前加入的液体。每孔最终体积为:24孔板为1 mL,96孔板为0.1 mL。轻轻左右及前后摇动平板,确保细胞在孔内均匀分布。
注意:细胞在孔内的均匀分布是实现均一接种和成功分化的关键。 - 将接种后的平板放入孵育箱,并立即轻轻前后及左右摇动,使细胞均匀分布,同时在37 °C、5% CO2条件下维持培养。
3. 在层粘连蛋白-521上将人多能干细胞分化为肝前体细胞
- 使用补充了适当添加剂的内胚层基础培养基,制备用于定型内胚层诱导(第1阶段)的培养基。
- 第0天,在4 °C条件下过夜解冻内胚层基础培养基瓶装液体。
- 根据需要配制第1阶段培养基1(用于第1天)。
- 将补充剂MR和补充剂CJ在冰上解冻。
- 用内胚层基础培养基将补充剂MR和补充剂CJ按1:100稀释。
- 根据需要配制第1阶段培养基2(用于第2–4天)。
- 用内胚层基础培养基将补充剂CJ按1:100稀释。
- 使用肝祖细胞培养基,制备后续肝祖细胞特化(第2阶段)分化所需的培养基。
- 第4天,在4 °C条件下过夜解冻肝祖细胞培养基瓶装液体。
注:本实验使用了1%青霉素/链霉素(终浓度分别为100 IU/mL和100 μg/mL)。抗生素并非必需;是否使用抗生素由使用者自行决定。
- 第4天,在4 °C条件下过夜解冻肝祖细胞培养基瓶装液体。
- 分化第1天,从孔中移除含10 μM ROCKi Y-27632的耗尽型干细胞维持培养基,并为每孔加入0.5 mL完全型第1阶段培养基1(24孔板)或每孔0.1 mL(96孔板)。
- 第2、3、4天,移除耗尽型培养基,并为每孔加入0.5 mL第1阶段培养基2(24孔板)或每孔0.1 mL(96孔板)。
- 第5天,对部分孔进行固定,用于定型内胚层分化分析(通过免疫细胞化学法);对剩余孔,移除耗尽型培养基,并为每孔加入0.5 mL肝祖细胞分化培养基(24孔板)或每孔0.1 mL(96孔板)。在第6、7、9天再次更换培养基。
- 第10天,收获孔内细胞用于肝祖细胞分化分析,或继续进行肝样细胞的进一步分化。
注:在此时间点,样品或用4%多聚甲醛(PFA)固定以进行免疫细胞化学分析,或收集上清液用于ELISA检测,同时收集细胞用于蛋白质定量。
4. 在层粘连蛋白-521上由人多能干细胞生成的肝前体细胞分化培养物的表征
- 第5天,通过免疫染色检测定型内胚层特异性标志物的表达。
- 第10天,通过免疫染色检测肝祖细胞特异性标志物的表达。
- 第10天,使用试剂盒通过ELISA检测AFP和ALB的分泌量,并根据双辛可宁酸(BCA)蛋白定量法测定的每毫克蛋白质进行归一化处理。
- 通过定量每孔中HNF4α阳性细胞所占百分比,评估96孔板中肝祖细胞的变异性。
5. 免疫细胞化学与图像采集
- 在分化第5天和第10天,用1×DPBS清洗细胞3次,24孔板每孔0.5 mL,96孔板每孔0.1 mL。室温下轻轻振荡孵育2–5分钟。
注意:免疫细胞化学实验应使用不含Ca2+/Mg2+ 的DPBS。 - 加入4%多聚甲醛(PFA)在室温下固定细胞15–30分钟,24孔板每孔加0.3 mL PFA,96孔板每孔加0.1 mL PFA。
- 按照步骤5.1所述方法,用1×DPBS清洗3次 。
- 使用含0.1% Tween的PBST进行膜通透处理,24孔板每孔加0.3 mL PBST,96孔板每孔加0.1 mL PBST,室温孵育20分钟,轻轻振荡。
- 进行蛋白封闭:将细胞与含10% BSA的PBST溶液在板式振荡器上轻轻振荡孵育1小时,24孔板每孔加0.3 mL BSA溶液,96孔板每孔加0.1 mL BSA溶液。
- 蛋白封闭后,弃去封闭液,加入用含1% BSA的PBST稀释的一抗溶液,4 °C轻轻振荡过夜孵育。
注意:蛋白封闭后无需洗涤即可直接加入抗体。 - 24小时后,用PBST清洗孔板3次。
- 加入用含1% BSA的PBST稀释的二抗溶液,室温避光孵育1小时,同时轻轻振荡。
- 二抗孵育结束后,用1×DPBS清洗3次,然后按照制造商说明加入Hoechst染料,室温避光染色10分钟,同时轻轻振荡。
- 用1×DPBS清洗3次。此时孔板已准备好用于成像。
注意:成像前应将孔板置于4 °C避光保存。 - 免疫组织化学染色完成后,使用高内涵成像显微镜对多孔板进行成像。建议采集多个视野图像,以真实反映孔内细胞情况。不同标志物的表达水平通过商业软件(见材料表)进行细胞分割分析来评估(图1)。
注意:也可使用开源图像分析软件(如CellProfiler或Fiji20,21)进行细胞分割。
结果
根据图2中描述的逐步方案,对hESC(H9)和hiPSC(P106)细胞系进行肝祖细胞分化。在此过程中,多能干细胞在分化开始前以单细胞形式接种于LN-521包被的培养板中。细胞汇合度是实现稳健且可重复分化的关键因素。当达到合适的汇合度后(图2),即启动分化程序。在第5天,通过Sox17的表达评估定型内胚层的特化情况。在两个细胞系中,Sox17均高度表达,H9和P106中Sox17阳性细胞的比例分别为80% ± 0.5%和87.8% ± 0.5% SEM(图3)。在第10天,肝祖细胞呈现出鹅卵石样形态(图2)。此外,通过检测HNF4α、AFP、ALB和细胞角蛋白-19(CK19)的表达,以及AFP和ALB蛋白的分泌情况,评估肝祖细胞的特化状态10,15,22(图4)。H9和P106来源的肝祖细胞均表达胎儿肝细胞标志物,包括HNF4α(91% ± 0.5% 和 90% ± 0.2%)、AFP(89.7% ± 1.8% 和 86% ± 1.2%)以及CK19(78.5% ± 3.2% 和 83.6% ± 1.8%)(图4)。在两个细胞系中,第10天均可检测到AFP的分泌(32.4 ± 1.6 和 47.8 ± 5.9 ng/mL/mg/24 h)(图5)。白蛋白合成水平较低(30.7% ± 1.8% 和 27.2% ± 1.1%)(图4),且ELISA未能检测到其分泌(图5)。
该方案实现了从24孔板到96孔板肝前体细胞的标准化制备。采用半自动化流程,按照先前所述方法,由H9和P106细胞系制备96孔板的肝前体细胞。17通过定量HNF4α表达评估细胞数量变异性和肝前体细胞分化效率。利用高内涵成像仪器,通过免疫荧光进行细胞分割以实现蛋白质定量图1第10天,肝前体细胞在各排之间未显示出显著差异 >每孔 H9 细胞中 HNF4α 阳性细胞占 94%,P106 细胞中 HNF4α 阳性细胞占 97%图6).
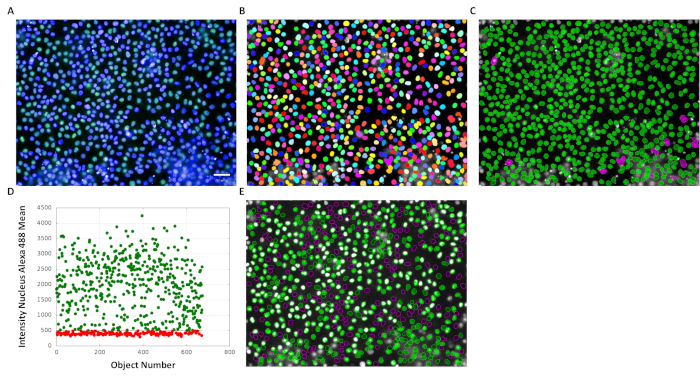
图 1:细胞分割流程概览。(A)使用原始图像,(B)利用细胞核染色进行细胞核分割。(C)基于形态和大小进行细胞核分割的质量控制步骤,仅对清晰分割的细胞核进行定量。(D)随后,对 HNF4α 染色阳性的细胞核进行定量。(E)最后,采用基于强度的阈值方法识别表达 HNF4α 的细胞。在 C 和 E 中,绿色细胞核代表被选中的细胞,品红色细胞核代表被剔除的细胞。比例尺 = 50 µm。请点击此处查看该图的放大版本。
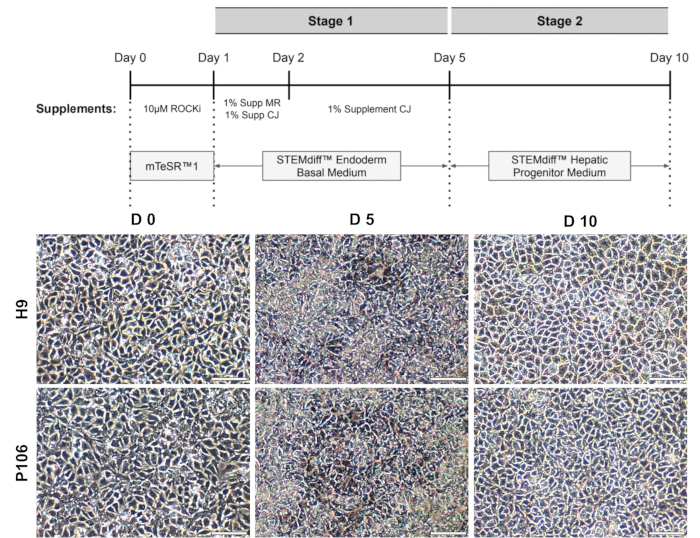
图2:人多能干细胞(hPSCs)向肝祖细胞的分化。(A)肝祖细胞分化方案的示意图。(B)代表性图像,展示分化过程中的形态学变化。在第0天(D0),hPSCs呈现为紧密排列的单层细胞。随后,在第5天(D5)hPSCs被诱导为定型内胚层。接着,在第10天(D10)进一步分化为肝祖细胞。肝祖细胞表现出类似铺路石的细胞形态。比例尺 = 75 µm。 请点击此处查看该图的放大版本。
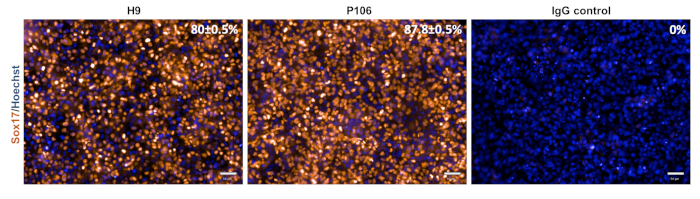
图 3: 定型内胚层特化表征。 第5天,对细胞进行定型内胚层标志物 Sox17 的染色。H9 细胞中 Sox17 阳性细胞的比例为 80 ± 0.5%,P106 细胞中为 87.8 ± 0.5%。百分比定量基于10个独立孔,每孔6个视野。数据以平均值 ± 标准误(SEM)表示。比例尺 = 50 µm。 请点击此处查看该图的放大版本。
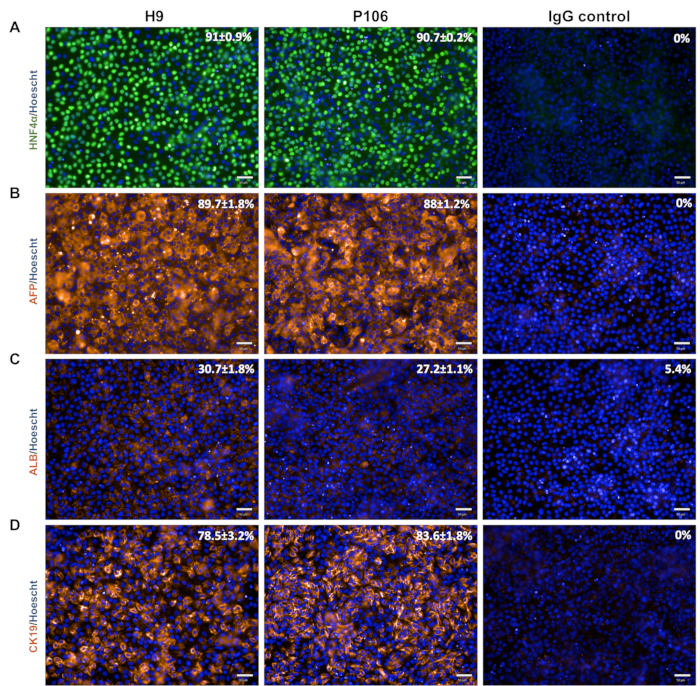
图 4:肝祖细胞表征。在第 10 天,对肝祖细胞进行肝细胞标志物染色:(A)HNF4α、(B)AFP 和(C)ALB。H9 细胞系中,HNF4α、AFP 和 ALB 阳性细胞的比例分别为 91% ± 0.4%、89.7% ± 1.8% 和 30.7% ± 1.8%;P106 细胞系中,相应比例分别为 90% ± 0.2%、86% ± 1.2% 和 27.2% ± 1.1%。(D)通过检测 CK19 表达评估胆管细胞谱系分化潜能;H9 来源的肝祖细胞中 CK19 阳性细胞占 78.5% ± 3.2%,而 P106 来源的肝祖细胞中 CK19 阳性细胞占 83.6% ± 1.8%。免疫球蛋白 G(IgG)染色用作染色对照。定量分析基于 10 个独立孔,每孔 6 个视野。数据以平均值 ± 标准误(SEM)表示。比例尺 = 50 µm。 请点击此处查看该图的放大版本。
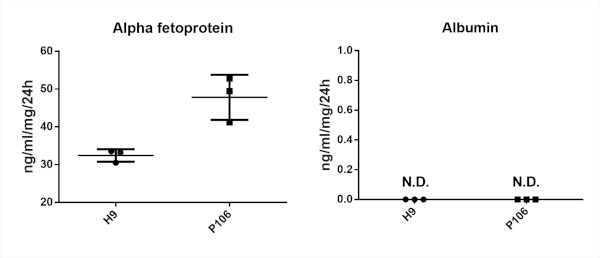
图 5:肝祖细胞蛋白质分泌分析。在 H9 和 P109 细胞系中,于第 10 天分析肝祖细胞培养物中甲胎蛋白(AFP)和白蛋白(ALB)的分泌情况。数据代表三次生物学重复实验,误差线表示标准差(SD)。分泌蛋白从 24 小时培养上清中定量,单位为每毫升每毫克蛋白质所分泌的蛋白纳克数,n = 3;ND = 未检出。请点击此处查看该图的放大版本。
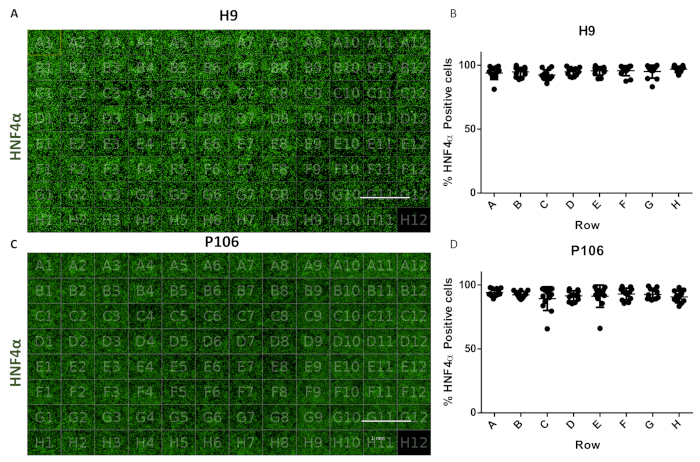
图 6:96 孔板中孔间变异性的评估。(A)经 HNF4α 染色的 H9 来源肝祖细胞在 96 孔板中的图像展示。(B)HNF4α 阳性细胞的定量分析。每孔取六个视野进行计数,统计每行每孔的平均细胞数。整块板中每孔 HNF4α 阳性细胞的平均比例为 94.81% ± 0.22 SEM。各孔之间未观察到具有统计学意义的差异。(C)经 HNF4α 染色的 P106 来源肝祖细胞在 96 孔板中的图像展示。(D)HNF4α 阳性细胞的定量分析。每孔取六个视野进行计数,统计每行每孔的平均细胞数。整块板中每孔 HNF4α 阳性细胞的平均比例为 97.7% ± 0.57 SEM。各行之间未观察到具有统计学意义的差异。H12 孔用作免疫球蛋白 G(IgG)染色对照。比例尺 = 1 mm。采用单因素方差分析(One-way ANOVA)结合 Tukey 事后检验进行统计分析。请点击此处查看该图的放大版本。
| 培养板规格 | 表面积 (cm²) | 每平方厘米细胞数 | 每孔总细胞数 | 加样体积 (mL) | 细胞浓度 (个/mL) |
| 24孔板 | 1.9 | 210526 | 400000 | 0.5 | 800000 |
| 96孔板 | 0.32 | 187500 | 60000 | 0.05 | 1200000 |
表1:本实验方案中使用的人多能干细胞系在不同培养板规格下的推荐细胞密度。
讨论
大规模地从多能干细胞生成人类肝祖细胞,可能成为尸源材料的一种有前景的替代方案。方案的标准化与可重复性对于确保该技术在生物医学研究中的转化与影响至关重要。为解决这一问题,先前的研究致力于开发一种逐步分化方案,从hESC和iPSC出发,使用明确的添加剂和基质15,23,24,25,26,27,28。通过这种方法,肝细胞表型特征和实验可重复性已得到改善,从而实现了分化过程的半自动化19。该系统的优势在于其与 市售细胞培养基以及简便的肝细胞分化系统相结合。
此前,多能细胞在分化方案开始前的密度被认为是获得均一肝前体细胞群体的关键变量26。采用这一更为优化的流程,可通过多种起始细胞密度以逐步方式大量生成干细胞来源的肝前体细胞(表1)。在第5天,通过Sox17染色验证了定型内胚层的诱导效果(图3)。两种测试的ESC和iPSC细胞系均实现了高效且稳定的定型内胚层分化,Sox17阳性细胞比例超过80%(图3)。在第10天,肝前体细胞呈现均一的鹅卵石样形态,肝干细胞标志物AFP和HNF4α的表达均显著富集(>86%,图4)。结合手动与半自动化技术,可在多种培养板规格中进行分化操作19。
目前,细胞分化适用于基于体外(in vitro)的实验研究。然而,在临床应用前可能需要进行细胞富集,以确保制备出的肝前体细胞群体具有良好的均一性,可用于移植或治疗。
综上所述,本文所述方案为该领域提供了一种标准化的大规模生成肝前体细胞的方法。未来的研究将致力于开发一种新的培养基,用于后续肝样细胞的分化、成熟和维持。
披露
David C. Hay 是 Stemnovate Ltd. 的联合创始人及股东。其余作者声明,他们对本文所讨论的主题或材料不存在利益冲突。
致谢
本研究获得了医学研究委员会博士培训合作项目(MRC Doctoral Training Partnership,项目编号 MR/K501293/1)、英国再生医学平台(UK Regenerative Medicine Platform,项目编号 MRC MR/L022974/1 和 MR/K026666/1)以及首席科学家办公室(Chief Scientist Office,项目编号 TCS/16/37)的资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 含钙和镁的DPBS | ThermoFisher | 14040133 | |
| 温和细胞解离试剂 | STEMCELL Technologies | 7174 | |
| Hoechst 33342 即用型染色试剂 | thermofisher | R37165 | |
| 人重组层粘连蛋白521 | BioLamina | LN521-02 | |
| 人血清白蛋白ELISA试剂盒 | Alpha Diagnostics | 1190 | |
| 人血清甲胎蛋白ELISA试剂盒 | Alpha Diagnostics | 500 | |
| mTeSR1培养基 | STEMCELL Technologies | 5850 | |
| Operetta高内涵成像系统 | PerkinElmer | HH12000000 | |
| 无钙无镁PBS | ThermoFisher | 14190250 | |
| 青霉素-链霉素(10,000 U/mL) | Life Technologies | 15140122 | |
| Rho相关激酶(ROCK)抑制剂Y27632 | Sigma-Aldrich | Y0503-1MG | |
| STEMdiff定型内胚层补充剂CJ | STEMCELL Technologies | ||
| STEMdiff定型内胚层补充剂MR | STEMCELL Technologies | ||
| STEMdiff内胚层基础培养基 | STEMCELL Technologies | ||
| STEMdiff肝前体细胞培养基 | STEMCELL Technologies | ||
| TWEEN 20 | Sigma-Aldrich | P9416 | |
| 抗体 | |||
| 白蛋白 | Sigma-Aldrich | A6684 | 1:200(小鼠) |
| 甲胎蛋白 | Sigma-Aldrich | A8452 | 1:400(小鼠) |
| HNF-4α | Santa Cruz | sc-8987 | 1:400(兔) |
| IgG | DAKO | 1:400 | |
| Sox17 | R&D Systems, Inc. | AF1924 | 1:200(山羊) |
| 软件 | |||
| Columbus图像数据存储与分析系统 | PerkinElmer |
参考文献
- Asrani, S. K., Devarbhavi, H., Eaton, J., Kamath, P. S. Burden of liver diseases in the world. Journal of Hepatology. 70 (1), 151-171 (2019).
- Szkolnicka, D., Hay, D. C. Concise Review: Advances in Generating Hepatocytes from Pluripotent Stem Cells for Translational Medicine. Stem Cells Dayton Ohio. 34 (6), 1421-1426 (2016).
- Heslop, J. A., Duncan, S. A. The Use of Human Pluripotent Stem Cells for Modeling Liver Development and Disease. Hepatology. 69 (3), 1306-1316 (2019).
- Alwahsh, S. M., Rashidi, H., Hay, D. C. Liver cell therapy: is this the end of the beginning. Cell and Molecular Life Sciences. 75 (8), 1307-1324 (2018).
- Hay, D. C., et al. Efficient differentiation of hepatocytes from human embryonic stem cells exhibiting markers recapitulating liver development in vivo. Stem Cells Dayton Ohio. 26 (4), 894-902 (2008).
- Si-Tayeb, K., et al. Highly efficient generation of human hepatocyte-like cells from induced pluripotent stem cells. Hepatology. 51 (1), 297-305 (2010).
- Hannan, N. R. F., Segeritz, C. -P., Touboul, T., Vallier, L. Production of hepatocyte-like cells from human pluripotent stem cells. Nature Protocols. 8 (2), 430-437 (2013).
- Basma, H., et al. Differentiation and transplantation of human embryonic stem cell-derived hepatocytes. Gastroenterology. 136 (3), 990-999 (2009).
- Meseguer-Ripolles, J., Khetani, S. R., Blanco, J. G., Iredale, M., Hay, D. C. Pluripotent Stem Cell-Derived Human Tissue: Platforms to Evaluate Drug Metabolism and Safety. The AAPS Journal. 20 (1), 20(2017).
- Si-Tayeb, K., Lemaigre, F. P., Duncan, S. A. Organogenesis and development of the liver. Developmental Cell. 18 (2), 175-189 (2010).
- D'Amour, K. A., et al. Efficient differentiation of human embryonic stem cells to definitive endoderm. Nature Biotechnology. 23 (12), 1534-1541 (2005).
- Shin, D., et al. Bmp and Fgf signaling are essential for liver specification in zebrafish. Development Cambridge England. 134 (11), 2041-2050 (2007).
- DeLaForest, A., et al. HNF4A is essential for specification of hepatic progenitors from human pluripotent stem cells. Development Cambridge England. 138 (19), 4143-4153 (2011).
- Baxter, M., et al. Phenotypic and functional analyses show stem cell-derived hepatocyte-like cells better mimic fetal rather than adult hepatocytes. Journal of Hepatology. 62 (3), 581-589 (2015).
- Cameron, K., et al. Recombinant Laminins Drive the Differentiation and Self-Organization of hESC-Derived Hepatocytes. Stem Cell Reports. 5 (6), 1250-1262 (2015).
- Szkolnicka, D., et al. Reducing Hepatocyte Injury and Necrosis in Response to Paracetamol Using Noncoding RNAs. Stem Cells Translational Medicine. 5 (6), 764-772 (2016).
- Domogatskaya, A., Rodin, S., Boutaud, A., Tryggvason, K. Laminin-511 but Not -332, -111, or -411 Enables Mouse Embryonic Stem Cell Self-Renewal In Vitro. Stem Cells. 26 (11), 2800-2809 (2008).
- Kanninen, L. K., et al. Laminin-511 and laminin-521-based matrices for efficient hepatic specification of human pluripotent stem cells. Biomaterials. 103, 86-100 (2016).
- Meseguer-Ripolles, J., Lucendo-Villarin, B., Wang, Y., Hay, D. C. Semi-automated Production of Hepatocyte Like Cells from Pluripotent Stem Cells. Journal of Visualized Experiments. (137), e57995(2018).
- Carpenter, A. E., et al. CellProfiler: image analysis software for identifying and quantifying cell phenotypes. Genome Biology. 7, 100(2006).
- Schindelin, J., et al. Fiji: an open-source platform for biological-image analysis. Nature Methods. 9 (7), 676-682 (2012).
- Raven, A., et al. Cholangiocytes act as Facultative Liver Stem Cells during Impaired Hepatocyte Regeneration. Nature. 547 (7663), 350-354 (2017).
- Hay, D. C., et al. Unbiased screening of polymer libraries to define novel substrates for functional hepatocytes with inducible drug metabolism. Stem Cell Research. 6 (2), 92-102 (2011).
- Medine, C. N., et al. Developing High-Fidelity Hepatotoxicity Models from Pluripotent Stem Cells. Stem Cells Translational Medicine. 2 (7), 505-509 (2013).
- Szkolnicka, D., et al. Accurate prediction of drug-induced liver injury using stem cell-derived populations. Stem Cells Translational Medicine. 3 (2), 141-148 (2014).
- Wang, Y., et al. Defined and Scalable Generation of Hepatocyte-like Cells from Human Pluripotent Stem Cells. Journal of Visualized Experiments. (121), e55355(2017).
- Villarin, B. L., et al. Polymer Supported Directed Differentiation Reveals a Unique Gene Signature Predicting Stable Hepatocyte Performance. Advanced Healthcare Materials. 4 (12), 1820-1825 (2015).
- Wang, Y., et al. Multiomics Analyses of HNF4α Protein Domain Function during Human Pluripotent Stem Cell Differentiation. iScience. 16, 206-217 (2019).
重印与许可
