本方案旨在从结构层面研究TmPep1050(一种M42型氨肽酶)从二聚体到十二聚体的转变过程。该流程简明清晰,涵盖从蛋白质纯化到X射线数据处理的全过程。通过TmPep1050H60A H307A变体这一研究实例,重点阐述了晶体生成、数据集指标化以及分子置换等关键步骤。
本文内容
摘要
摘要
M42 氨肽酶可形成由 12 个亚基组成的、具有功能活性的复合物。其组装过程似乎受到金属离子辅因子的调控,可触发二聚体向十二聚体的转变。金属离子结合后,活性位点及相互作用界面会发生多种结构改变,从而促使二聚体构象调整以促进自身组装。为观察此类结构变化,需在开展结构研究前分离获得稳定的寡聚体。本文报道了一种方法,可用于纯化来源于中国台湾甲烷球菌(*Methanococcus thermolithotrophicus*)的 M42 氨肽酶 TmPep1050 的稳定十二聚体和二聚体。 T. maritima,以及通过X射线晶体学对其结构的测定。二聚体是通过螯合剂去除十二聚体中的金属离子而制备的。在缺乏这些金属离子的情况下 辅因子存在时,十二聚体稳定性降低,并在加热后完全解离。寡聚结构通过直接的分子置换法解析。为说明该方法,展示了一种TmPep1050突变体的结构,该突变体完全丧失金属离子结合能力,结果显示其二聚体未进一步分解为单体。
引言
寡聚化是一种主要过程,决定了许多蛋白质的生物学功能。在Escherichia coli中,据估计仅有35%的蛋白质为单体形式1。某些蛋白质被称为morpheeins,甚至可以形成多种寡聚状态,且在每种寡聚状态中,其亚基具有不同的结构2。它们在不同寡聚状态之间的转换通常是调控蛋白质活性的一种机制,因为每种寡聚状态可能具有不同的特异性活性或功能。文献中已有多个morpheeins的实例被充分记录,尤其是δ-氨基乙酰丙酸合酶3、HPr激酶/磷酸酶4、Lon蛋白酶5、乳酸脱氢酶6、甘油醛-3-磷酸脱氢酶7、丙酮酸激酶8、柠檬酸合酶9以及核糖核酸酶A10。最近,我们描述了M42氨肽酶TmPep1050,这是另一种具有类似morpheein行为的酶,其活性依赖于其寡聚状态11。其寡聚状态之间的转换由金属辅因子介导,这些辅因子可诱导亚基发生多种结构变化。
M42 氨基肽酶家族属于 MH 超家族12,13,且在细菌和古菌中广泛分布14M42 氨肽酶是真正的双核酶,可降解长度达 35 个氨基酸残基的肽段15它们采用一种由12个亚基组成的独特四面体结构,其活性位点位于其中 朝向一个内部空腔。这种排列通常被称为活性的纳米区室化,以避免不受控制的蛋白水解。M42 氨肽酶的生理功能可能与蛋白酶体相关,负责水解产生的肽段 来自蛋白质降解16,17. Pyrococcus horikoshii 具有四种M42氨肽酶,每种均表现出独特但互补的特异性18,19,20,21由两种不同类型亚基组成的异源复合物已有报道 P. horikoshii,表明存在肽酶体复合物22,23.
文献中已报道了多种M42氨肽酶的结构11,16,18,19,20,24,25,26。其亚基由两个不同的结构域组成:催化结构域和二聚化结构域。催化结构域采用一种在MH家族中保守的典型α/β折叠 ,该结构域的原型为Vibrio proteolyticus的氨肽酶Ap127。二聚化结构域则采用一种类似PDZ的折叠结构16,除了在寡聚化中发挥作用外,还可能参与调控底物进入和结合到内部空腔的过程11。由于其基本结构单元是二聚体,十二聚体通常被描述为六个二聚体的结合体,每个二聚体位于四面体的一条边上16。M42氨肽酶的寡聚化依赖于其金属辅因子的可用性。二价金属离子(通常是Zn2+和Co2+)在肽的结合与水解过程中具有催化作用。这些金属离子结合于两个不同的位点,即M1位点和M2位点。这两个金属离子还驱动并精细调节寡聚化过程,这已在PhTET2、PhTET3、PfTET3和TmPep1050中得到证实11,24,28,29。当金属辅因子缺失时,十二聚体会解离为二聚体,如PhTET2、PhTET3和TmPep1050所示11,16,28;甚至进一步解离为单体,如PhTET2和PfTET3中所观察到的24,29。
本文介绍了一种用于研究TmPep1050寡聚体结构的实验方案。该方案包含一系列常用方法,如蛋白质纯化、蛋白酶活性筛选、结晶、X射线衍射以及分子置换法。文中特别强调了在处理金属酶、蛋白质寡聚化、蛋白质结晶及分子置换过程中所涉及的关键技术细节。此外,本文还提供了一个研究案例,旨在探讨TmPep1050十二聚体是否能够进一步解离为单体。为回答这一问题,研究人员对一种TmPep1050突变体TmPep1050H60A H307A进行了研究,该突变体通过将His-60(M2位点)和His-307(M1位点)突变为丙氨酸残基,从而破坏了其金属离子结合位点。本实验方案可适用于研究其他M42家族氨肽酶,或具有类似morpheein行为的金属酶。
方案
1. 重组TmPep1050的制备与纯化
注意:以下所述的野生型 TmPep1050 的克隆与纯化步骤改编自先前的研究11。或者,也可使用合成基因进行克隆。为构建 TmPep1050 变体,可采用定点突变技术,例如并行单引物反应(SPRINP)方法30。该纯化方案同样适用于 TmPep1050 变体。应避免使用 His 标签,因其会干扰金属离子的结合。
- 表达载体设计
- 获取基因组DNA Thermotoga maritima MSB8(ATCC 43589)或 TmCD00089984(联合结构基因组学中心)
- 使用基因组DNA或模板质粒、高保真DNA聚合酶以及以下引物扩增Amplify TM_1050开放阅读框(ORF):ocej419(5’- TTTAACTTTAAGAAGGAGATATACATACCCATGAAGGAACTGATCAGAAAGCTG)和 ocej420(5’- ATCCGCCAAAACAGCCAAGCTGGAGACCGTTTACGCCCCCAGATACCTGATGAG)。按照以下程序进行聚合酶链式反应(PCR)扩增:95 °C预变性5 min,30个循环的三步扩增(95 °C变性30 s,55 °C退火30 s,72 °C延伸90 s),最后72 °C延伸10 min。
- 将PCR片段克隆至合适的表达载体中(材料表)通过同源重组(图1) 在 E. coli 根据 SLiCE 方案31将PCR片段以10:1的片段与载体摩尔比加入50 ng线性化载体中,再加入1 µL PPY菌株提取物、50 mM Tris-HCl(pH 7.5)、100 mM MgCl₂2,10 mM ATP 和 10 mM 二硫苏糖醇(DTT),反应体系为 10 µL。37 °C 孵育 1 小时。
- 转化感受态细胞 E. coli XL1蓝菌株(或任何 recA- 将1 µL重组反应产物转入合适的菌株中,在含有100 µg/mL氨苄青霉素的LB培养基平板上涂布。于37 °C过夜培养。
- 在含100 µg/mL氨苄青霉素的新鲜LB平板上挑取单菌落。37 °C培养至少8 h。
- 使用合适的引物对(5’- ATGCCATAGCATTTTTATCC 和 5’- ATTTAATCTGTATCAGGC,若使用文中推荐的载体)通过菌落PCR筛选阳性克隆候选菌株 材料表用微尖头工具刮取挑出的菌落,并将细胞转移至20 µL反应混合液中,反应液包含每种引物0.5 µM以及10 µL商用Taq DNA聚合酶混合物。
- 按照以下程序进行PCR筛选:95 °C预变性5分钟;30个循环的三步法扩增(95 °C 30秒,55 °C 30秒,72 °C 90秒);最后72 °C延伸10分钟。
注意:PCR 反应产物可在 PCR 仪中于 12 °C 保存过夜。 - 将每份PCR反应产物各取10 µL上样至用Tris-乙酸-EDTA(TAE)缓冲液配制的0.8%琼脂糖凝胶中,在100 V电压下电泳运行25分钟。
注意:预期获得 1.1 kbp 的扩增片段。 - 使用商业试剂盒从候选菌株中提取质粒(材料表)并使用步骤1.1.6中相同的引物对进行测序。
- 细胞培养
注意:当通过测序鉴定到合适的目的序列后,若使用推荐的载体,可直接将该克隆用作表达载体材料表)。在这种情况下,表达由阿拉伯糖诱导型启动子P控制BAD 启动子32.- 在含有100 µg/mL氨苄青霉素的10 mL LB培养基中接种候选菌株,并于37 °C下振荡培养过夜。将5 mL预培养物接种至1 L含100 µg/mL氨苄青霉素的LB培养基中。注意保持液体与培养容器内空气体积比为1:3。
- 在37 °C条件下,于摇床中培养细胞。监测660 nm处的光密度(OD660).
- 当OD660 当培养物达到0.5−0.6时,立即在冰上快速冷却5分钟,然后转移至设定为18 °C的培养箱中。
- 加入0.2 g/L阿拉伯糖以诱导基因表达,在18 °C下培养12−18 h。
- 通过在 6,000 x g 条件下离心培养物收集细胞 g 在 4 °C 下孵育 30 分钟。弃去上清液,用 100 mL 0.9% (w/v) NaCl 洗涤细胞。
- 再次以 6,000 x 离心 g 4 °C 下离心 15 分钟,弃去上清液。
注意:细胞沉淀可直接用于蛋白质提取,或在 -80 °C 保存。
- 蛋白质纯化
- 将细胞沉淀重悬于 40 mL 的 50 mM MOPS、1 mM CoCl 中2,pH 7.2。加入1 µL 25 U/µL的DNA/RNA核酸内切酶和1片不含EDTA的蛋白酶抑制剂混合物。在冷却条件下以脉冲模式超声处理悬浮液30分钟。
- 将粗提物在 20,000 x g 4 °C下孵育30分钟。收集上清液,于70 °C水浴中加热10分钟。
- 将变性细胞提取物在20,000 x g下离心 g 4 °C 下孵育 30 分钟,收集上清液用于纯化。
- 使用合适的阴离子交换树脂(材料表) 装填于约 15 mL 体积的层析柱中。操作流速和柱压限制请参照生产商的建议。用 50 mM MOPS、1 mM CoCl₂ 平衡树脂2,pH 7.2。
- 将步骤1.3.3中收集的上清液上样至层析柱中。监测洗脱液在280 nm处的吸光度。当吸光度降至基线水平时,开始洗脱。
- 在50 mM MOPS、1 mM CoCl中,施加0至0.5 M NaCl的梯度2,pH 7.2,流经5个柱体积(CV)。待电导率稳定且吸光度达到基线水平后停止。
- 在50 mM MOPS、1 mM CoCl₂中施加0.5至1 M NaCl的最终梯度2,pH 7.2,平衡1个柱体积。
- 分析部分组分(参见 图2A 通过十二烷基硫酸钠聚丙烯酰胺凝胶电泳(SDS-PAGE)进行指导。
注意:经考马斯亮蓝染色后,TmPep1050 显示为 36 kDa 条带。 alternatively,可通过活性测定确认 TmPep1050 的存在(见第 2.1 节)。此步骤中,组分可在 4 °C 保存过夜。 - 合并含有 TmPep1050 的组分,并加入研细的 (NH4)2SO4 以获得1.5 M (NH4)2SO4轻轻颠倒混匀试管,直至完全溶解。
- 使用疏水相互作用树脂(材料表) 装填于约 30 mL 体积的层析柱中。请参考生产商提供的建议,确定工作流速和柱压限制。用 50 mM MOPS、1.5 M (NH4)2SO4,1 mM CoCl2,pH 7.2。
- 将样品上样至柱子,并监测洗脱液在280 nm处的吸光度。当吸光度降至基线时,通过施加从1.5 M到0 M的(NH₄)₂SO₄线性梯度洗脱结合的蛋白质。4)2SO4 在50 mM MOPS、1 mM CoCl中2,pH 7.2,平衡5个柱体积。
- 分析部分组分(参见 图2B 通过SDS-PAGE进行指导)分析。
注意:经考马斯亮蓝染色后,TmPep1050表现为一条36 kDa的条带。 alternatively,可通过活性测定确认TmPep1050的存在(见第2.1节)。此步骤中,组分可在4 °C下保存过夜。 - 合并含有 TmPep1050 的组分,并使用截留分子量为 30 kDa 的超滤装置浓缩至 2 mL(材料表)。继续进行第1.4节以确定分子量。
- 尺寸排阻色谱
- 使用尺寸排阻树脂(材料表) 装填于约 120 mL 体积的层析柱中。请参考生产商提供的建议,确定工作流速和柱压限制。用 50 mM MOPS、0.5 M (NH4)2SO4,1 mM CoCl2,pH 7.2。
- 将样品上样至柱中,并在280 nm处监测洗脱液的吸光度。从柱死体积(约0.33 CV)开始收集组分,直至 洗脱结束(1 CV)。
- 测量每个观察到的峰的洗脱体积。
注意:作为参考,十二聚体 TmPep1050 在约 82 mL 处洗脱(图3A)在当前实验条件下,而二聚体形式的 TmPep1050,例如 TmPep1050H60A H307A 变异体在约 95 mL 处洗脱(图3B)。一些 TmPep1050 可能同时具有两种寡聚形式,例如 TmPep1050H60A (图3C). - 使用SDS-PAGE分析对应于观察到的峰的最高值和尾部的组分。
注意:TmPep1050 经考马斯亮蓝染色后呈现为 36 kDa 条带。 - 合并各峰的组分,并使用截留分子量为30 kDa的超滤装置进行浓缩(材料表) 以获得约 300 µM 的浓度。
- 使用纳米级分光光度计在 280 nm 处测定吸光度,并利用 18,910 M⁻¹cm⁻¹ 的摩尔消光系数计算浓度。-1 cm-1.
- 将纯化的蛋白质在 -18 °C 下保存。
- 为确定分子量,使用分子量标准品对尺寸排阻色谱(SEC)柱进行校准(材料表). 使用 50 mM MOPS、0.5 M (NH₄)₂SO₄ 分析标准品4)2SO4,1 mM CoCl2 pH 7.2 的运行缓冲液。
2. 活性测定与脱辅基酶制备
注意:最初,脱辅酶的制备方法是将1体积的TmPep1050加入到10体积的2.1 M、pH 7.0的苹果酸溶液中稀释,然后浓缩 至原体积,再进行透析11。以下介绍一种使用金属离子螯合剂1,10-菲啰啉的替代方法。该方法可减少蛋白损失,并获得与先前发表方法相同的结果。
- 活性测定
- 在甲醇中配制 100 mM L-亮氨酸-p-硝基苯胺(材料表)的储备液。
- 将 25 µL 的 100 mM L-亮氨酸-p-硝基苯胺加入 965 µL 的 50 mM MOPS、250 µM CoCl2、pH 7.2、10% 甲醇溶液中。将反应混合物在干浴中预孵育于 75 °C。
- 用 50 mM MOPS(pH 7.2)将酶稀释至 1 µM 浓度。取 10 µL 加入反应体系中,涡旋混匀,于 75 °C 孵育,直至溶液变为淡黄色或孵育 1 小时。
- 加入 1 mL 20% 乙酸终止反应。充分涡旋混匀,静置冷却至室温。
- 将反应混合物转移至分光光度计比色皿中。以不含酶的孵育反应混合物作为空白对照,在 410 nm 处测定吸光度。
- 脱辅基酶制备
- 在乙醇中配制 1 M 1,10-菲啰啉储备液。取 10 µL 1,10-菲啰啉储备液加入 890 µL 的 50 mM MOPS、0.5 M (NH4)2SO4、pH 7.2 溶液中,再加入 100 µL 纯化的 TmPep1050(浓度为 300 µM−1 mM)。
- 使用第 2.1 节所述的活性测定方法检测活性损失,但反应体系中不添加 CoCl2。
- 将样品转移至透析袋中,在 4 °C 条件下用 200 mL 的 50 mM MOPS、0.5 M (NH4)2SO4、pH 7.2 缓冲液进行透析。在 48 小时透析过程中,更换三次新鲜缓冲液。
- 从透析袋中收集样品,使用截留分子量为 30 kDa 的超滤装置浓缩至 100 µL(材料表)。使用微量体积分光光度计在 280 nm 处测定吸光度以确定蛋白浓度。
- 二聚体制备
- 将脱辅基酶用 50 mM MOPS、0.5 M (NH4)2SO4、pH 7.2 缓冲液稀释至 1 µM 浓度。在干浴中 75 °C 孵育 2 小时,随后让样品自然冷却至室温。
- 将样品浓缩至酶浓度至少为 50 µM。通过尺寸排阻色谱(SEC)检测其分子量(见第 1.4 节)。洗脱峰应从约 82 mL 位移至约 95 mL(在当前实验条件下)。
3. TmPep1050 结晶
注意:蛋白质结晶仍是一门经验性科学,因为这是一个多因素影响的现象33。尽管某些参数可以被识别和控制(如温度、pH值、沉淀剂浓度),但其他因素可能隐性地影响结晶过程(如蛋白质和化学纯度、蛋白水解、样品历史)。如今,得益于一系列商业化的结晶筛选条件和自动化技术,蛋白质结晶得以以理性且系统的方式进行。然而,结晶条件的优化在很大程度上仍依赖于试错法。以下将描述蛋白质结晶的基本方案以及若干优化结晶条件的建议。
- 结晶筛选
注意:使用商业化结晶试剂盒,已获得十二聚体 TmPep1050 的晶体,结晶条件为 2.2 M DL-苹果酸(pH 7.0)、0.1 M Bis-Tris 丙烷(pH 7.0)和 0.18 M 三乙酸铵柠檬酸盐,20% 聚乙二醇(PEG)3350。二聚体 TmPep1050 的晶体在 0.1 M 柠檬酸钠(pH 5.6)、0.2 M 醋酸铵、30% PEG4000 条件下获得。十二聚体晶体通常在一周内出现,并在一个月内达到最大尺寸。二聚体晶体通常在 24 小时内出现,并在一周内生长至完全大小。- 获取多个商业化结晶试剂盒(示例参见材料表)。
- 设置用于悬滴法的结晶板(参见材料表)。向各孔中加入 500 µL 结晶筛选试剂盒中的每种溶液。
- 对每个孔设置一个结晶支撑盖。在支撑盖上滴加 1 µL 纯化的蛋白质溶液(通常浓度约为 10 mg/mL)。
- 立即从孔中吸取 1 µL 结晶溶液,小心地将其加入蛋白质液滴中,并通过倒置移液三次轻轻混匀。液滴必须保持半球形,且无气泡产生。
- 将支撑盖旋紧在对应孔的上方。对整个试剂盒重复此操作。
- 设置完成后,使用双目显微镜观察每个液滴。参考结晶试剂盒的用户指南进行结果判读(如澄清液滴、相分离、沉淀、针状物等)。
- 将结晶板在 20 °C 下孵育。第一周每天检查一次,之后每周检查一次。
- 使用结晶试剂盒附带的评分表和用户指南对每个孔进行评分。
- 结晶条件优化
注意:十二聚体 TmPep1050 的初始结晶条件已优化为 2.1 M DL-苹果酸(pH 6.75)、0.18 M 三乙酸铵柠檬酸盐(pH 7.5)和 40%(w/v)PEG3350;而二聚体 TmPep1050 的结晶条件已调整为 0.1 M 柠檬酸钠(pH 6.0)、10%(w/v)PEG3350。为提高晶体质量,需进行一轮引晶。以下描述的是 TmPep1050H60A H307A 变体的结晶优化过程。- 配制不同 pH(4.5、5.2 和 6.0)的 0.5 M 柠檬酸钠缓冲液储备液,以及 50%(w/v)PEG3350 溶液。
- 设置一个以 pH 与沉淀剂为变量的矩阵式结晶板(参见图 4A)。
- 将结晶板在 20 °C 下孵育。一周内每天使用双目显微镜观察各孔一次。
- 根据晶体的大小和形状对各孔进行评分。选择能产生至少 50 µm 晶体的条件,进入微晶引种步骤。
- 微晶引种
注意:微晶引种是一种有效改善蛋白质晶体形态、尺寸和结晶质量的方法34。一种更快的引种方法是使用猫须进行划线引种。参见图 4,了解结晶优化与微晶引种如何改善 TmPep1050H60A H307A 晶体的形状和尺寸。- 使用步骤 3.2.4 中选定的孔制备晶种。
- 向含有晶体的液滴中加入孔内结晶溶液,使总体积增至 10 µL。吸取该液滴并加入 90 µL 孔内结晶溶液,充分涡旋混匀后将晶种置于冰上保存。
- 制备晶种的一系列稀释液:1 倍、10 倍、25 倍和 100 倍稀释。移液前充分涡旋混匀晶种,稀释液保持在冰上。
- 针对每种晶种稀释液,设置以 pH 与沉淀剂为变量的矩阵式结晶板(参见图 4B)。使用步骤 3.2.1 中配制的储备液。
- 在制备液滴时,对于 2 µL 的液滴加入 0.2 µL 晶种。将结晶板在 20 °C 下孵育,一周内每天使用双目显微镜观察各孔一次。
注意:晶体的尺寸分布和形态应有所改善,参见图 4C 中 TmPep1050H60A H307A 的示例。如需后续使用,晶种可保存于 -20 °C。
4. X射线衍射
- 晶体挑选
注意:样品制备取决于X射线光源设施(家用设备 vs. 同步辐射)。请相应地使用储存装置(小瓶和小瓶支架篮)。根据盐/沉淀剂浓度,可能需要添加冷冻保护剂(如甘油)。对于TmPep1050晶体,无需使用冷冻保护剂,因为PEG或缓冲液浓度已足够高,可避免水结晶。- 准备一个充满液氮的浴槽,将用于样品处理的任何小瓶或支架篮迅速浸入其中。
- 准备不同尺寸的样品挑选环:100、150 和 200 µm(材料表)。根据晶体大小选择合适的尺寸。
- 使用双目显微镜检查含有晶体的液滴,找出孤立的晶体(最容易挑选)。用环轻轻从底部挑取一个晶体,立即将其浸入液氮中,并将环放入合适的小瓶中。
- 数据收集
注意:数据收集会因X射线源(家用设备 vs. 同步辐射)和探测器灵敏度而有很大差异。收集策略也可能因样品不同而显著变化,具体取决于分辨率、衍射点强度、空间群等因素。该主题已被Dauter35进行了广泛综述。- 将携带晶体的环安装在衍射仪的测角头装置上。
- 调节测角头沿XYZ轴方向,使晶体与X射线光束路径对齐。
- 将波长设为0.98 Å,并移动探测器以获得2 Å的分辨率。
- 通过在至少两个不同晶体取向下采集图像,开始短时间的数据收集。在0°和90°各采集10张图像(每0.1°一张图像)。
- 使用合适的软件(例如ADXV、XDS-Viewer或Albula Viewer)检查所收集的图像。确定衍射点强度以及能够观察到衍射点的最高分辨率。同时检查单晶性和衍射点分离情况。
- 如有必要,根据观察结果调整探测器位置以获得更高或更低的分辨率,并相应改变曝光时间,重复步骤4.2.3−4.2.5。
- 以每0.1°采集一张图像的方式,围绕360°开始数据收集。请记住要优化设置探测器位置和曝光时间。
5. 指数化、分子置换与模型构建
- 指标化
注意:指标化是一种用于测量衍射斑点强度的方法,可得到结构因子的振幅36。通常有四种软件包用于处理采集到的图像:Mosflm37、HKL200038、DIALS39 和 XDS40。后者已用于对 TmPep1050 晶体衍射获得的数据集进行指标化。- 安装 XDS 软件包和 XDSME41。如果处理 HDF5 文件,请安装 XDS Neggia 插件(可在 Dectris 官网获取)。更多信息请访问 XDS 维基网页 https://strucbio.biologie.uni-konstanz.de/xdswiki/index.php/Main_Page 和 XDSME 网页 https://github.com/legrandp/xdsme。
- 在处理数据前,创建一个用于运行 XDS 的文件夹,并定位图像的路径。
- 要运行 XDSME,在终端窗口中输入 xdsme /path_to_images/image.extension。
- XDS 完成任务后,检查 CORRECT.LP 文件。注意空间群判定的概率、数据完整性、最高分辨率、晶体镶嵌度以及数据质量。同时检查 XDS_pointless.log 文件以获取各空间群的可能性。
注意:参见 图5 作为输出示例。 - 在独立的文件夹中使用 XDS 提出的不同空间群解重新运行 XDSME,以避免覆盖先前的处理过程。输入命令 xdsme -s space_group_name -c “unit_cell_parameters” /path_to_images/image.extension(例如:xdsme -s P21 -c “43.295 137.812 61.118 90.000 110.716 90.000”)。
- 检查 CORRECT.LP 文件,并根据数据统计选择最优解。
- 通过输入 xscale.py XDS_ASCII.HKL 运行 XSCALE。通过输入 xdsconv.py XSCALE.HKL ccp4 运行 XDSCONV。
注意:在某些情况下,XDSME 可能无法正确识别空间群,或无法恰当截断分辨率范围,或生成异常的数据统计结果。若遇到此类问题,建议直接原生运行 XDS。需在 XDS.INP 初始化文件中引入若干参数(参见 XDS 维基页面)。使用 XDS 时,可通过 CCP4 软件包中的 Pointless 工具检查可能空间群的可能性42。为截断数据集的分辨率,通常以 Rmeas < 60% 且 I/σ ~2 作为确定最高分辨率的标准43。然而,在分子置换和模型精修过程中,可将分辨率扩展至 I/σ ~0.5−1.5 且 CC1/2 降至 0.2−0.4 以获得更优结果44。
- 分子置换
注意:实验数据可提供结构因子的振幅信息,但若未知相位,则这些数据无法使用。相位可通过依赖异常散射信号(例如来自重原子)的不同实验方法测定45。分子置换是另一种无需异常散射原子即可确定相位的方法46,47。该方法利用相关分子的坐标来迭代地寻找并优化相位。我们使用 Phenix GUI49 中的 Phaser48 进行分子置换。- 使用 4P6Y 坐标准备用于分子置换的起始模型。从 pdb 文件中提取单体 A,并使用 Phenix 中的 PDB 文件编辑器(位于 Model tools 选项卡下)将其氨基酸截断为丙氨酸。
- 在 Phenix 中运行 Xtriage(位于 数据分析 选项卡下),输入由 XDSCONV(5.1.9)生成的反射文件和序列。
- 检查 Xtriage 的日志文件。注意数据完整性、非对称单元中亚基的数量、各向异性、冰环的存在以及孪晶现象。
- 在 Phenix 中运行 Phaser-MR(位于 分子置换 选项卡下),使用反射文件、序列以及步骤 5.2.1 中截断为多聚丙氨酸的起始 4P6Y 模型进行分子置换。
- 完成之后,检查是否已找到模型以及分子置换的得分。平移因子 Z 得分(TFZ)至少达到 8 表明该解明确正确。
- 模型构建
注意:通过分子置换确定相位后,必须构建并精修模型。本方案使用 Phenix GUI49 进行自动建模和迭代精修,使用 Coot50 进行手动结构构建和精修。- 在 Phenix 中使用 Phaser-MR 完成分子置换后,选择 运行自动建模(Run Autobuild)。所有必需文件将自动添加,只需点击 运行(Run) 即可开始自动建模。
- 完成后,在 Coot 中检查模型。根据 Coot 中的电子密度图手动构建并精修模型。
- 在 Phenix 中(位于 精修 选项卡下)使用模型、序列和衍射数据作为输入,对人工校正后的模型进行精修。请参考 Phenix 帮助文档选择合适的策略。
- 精修后检查结果:Rfree 和 Rwork 应下降,Molprobity51 指标应符合要求,且低实空间相关性的异常残基应尽可能减少。
- 重复步骤 5.3.2−5.3.4,直至生成最优精修模型。
- 在服务器上运行 Molprobity:http://molprobity.biochem.duke.edu/。检查 Molprobity 识别出的任何异常残基。
- 必要时重复步骤 5.3.2−5.3.6,直至获得最佳精修模型。
结果
为了研究TmPep1050中十二聚体可能解离为单体的情况,使用合成基因将His-60和His-307密码子替换为丙氨酸密码子。随后将该基因克隆至pBAD载体中,用于表达和纯化相应的TmPep1050变体,该变体被命名为TmPep1050H60A H307A。凝胶过滤色谱(图3B)显示,纯化后的蛋白表观分子量为56 kDa(单体分子量为36.0 kDa)。已有研究报道TmPep1050二聚体的表观分子量为52 kDa11。因此,可推断TmPep1050H60A H307A的寡聚状态为二聚体。在比活性方面,TmPep1050H60A H307A在L-Leu-pNA作为底物时完全无活性,即使在钴离子存在条件下亦如此。该结果强烈提示该变体无法结合任何金属离子。
通过在二聚体条件(即 0.1 M 柠檬酸钠 pH 6.0,10% PEG3350)附近调整 pH 与 PEG 浓度,对 TmPep1050H60A H307A 的结晶条件进行了优化(图 4)。TmPep1050H60A H307A 的最佳晶体在 0.1 M 柠檬酸钠 pH 5.2、20% PEG3350 条件下获得,并通过一次微晶接种以提高单晶性。完整的数据集在 SOLEIL 同步辐射光源的 Proxima 2 光束线收集,分辨率达到 2.36 Å(Table 1)。数据指标化分析显示,TmPep1050H60A H307A 晶体的空间群为 C2221,但 XDS 提出了另一种可能的解,即 mP 空间群(见 图 5)。根据 Pointless 的分析,C2221 和 P21 空间群的似然值分别为 0.711 和 0.149。根据数据质量分析,不对称单元中包含两个单体。Xtriage 分析表明,该数据集可能存在孪晶,但在 C2221 空间群中发生孪晶的可能性较低52。孪晶源于晶体生长异常,其中多个明确的晶域具有部分晶格方向相互平行53。孪晶也可能由更高的晶体对称性引起,提示数据指标化可能存在错误。因此,可能存在一种拟半随机孪晶,使得 P21 晶格表现为 C2221。随后将数据集按 P21 空间群重新指标化,并进行分子置换测试。对按 P21 指标化的数据集进行 Xtriage 分析,发现其遵循孪晶律 h, -k, -h-l 的拟半随机孪晶。
利用十二聚体TmPep1050(PDB编号4P6Y)中单体的坐标,在仅以P21进行指标化的数据集中找到了分子置换解,其TFZ得分为28.9。因此,将衍射数据视为孪晶数据集进行模型构建。为尽量减少分子置换带来的偏差,首先使用phenix.autobuild54,55构建了初始模型。经过Phenix和Coot中多轮自动与手动精修后,完成了TmPep1050H60A H307A的结构解析(表1和图6A)。该结构确认了其寡聚状态,两个单体之间的界面表面积为1,710 Å2,PDBe Pisa56计算得到的ΔiG为-16.2 kcal mol-1。相比之下,二聚体TmPep10502-mer的界面表面积和ΔiG分别为1,673 Å2和-16.7 kcal mol-1。
TmPep1050H60A H307A 的结构与野生型二聚体结构高度相似,比对后的均方根偏差(RMS)为 0.774 Å。重要的是,在这两种结构中均观察到相同的结构修饰:α8 和 α10 螺旋具有较高的柔性,活性位点 Gln-196–Val-202 无序,以及 Lys-229–Ala-235 和 Lys-247–Ser-254 的位移。这些修饰此前已被证实与在缺乏金属辅因子时阻碍十二聚体形成相关11。然而,His-60 和 His-307 的两个突变对 Asp-168 和 Asp-62 的侧链产生了轻微影响。它们呈现出与野生型二聚体不同的构象,并被锁定在该状态(图6B)。由于 His-60 和 His-307 的缺失,Asp-168 羧酸根旋转了 40°。因此,这两个组氨酸残基对于正确固定 Asp-168 羧酸根的位置以桥接两个金属离子至关重要。Asp-62 侧链朝向 Glu-18 羧酸根,位于催化位点之外。Asp-62 可能在催化过程中发挥重要作用,因为它被认为可调节 His-60 的 pKa,从而影响 M2 位点的金属离子结合。此外,它可能在结构上参与金属离子结合后催化位点的稳定,促进十二聚体的形成。
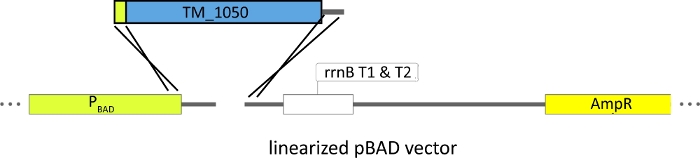
图 1:通过同源重组将 TM_1050 ORF 克隆至 pBAD 载体的示意图。
该 ORF 两侧分别为与 BAD 启动子末端同源的 30 bp 序列以及位于 PmeI 限制性酶切位点上游的同源序列。请点击此处查看该图的放大版本。
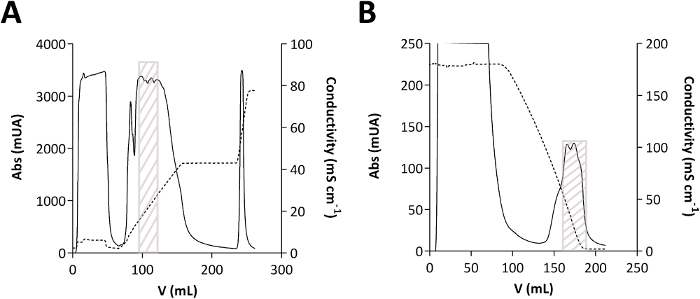
图 2:TmPep1050 纯化过程的层析图谱。
(A) 阴离子交换层析。(B) 疏水相互作用层析。吸光度(Abs),以毫吸光单位(mUA)表示,用实线显示。电导率,以 mS cm-1 表示,用虚线显示。灰色框表示 TmPep1050 在层析图谱中的洗脱位置。请点击此处查看该图的放大版本。
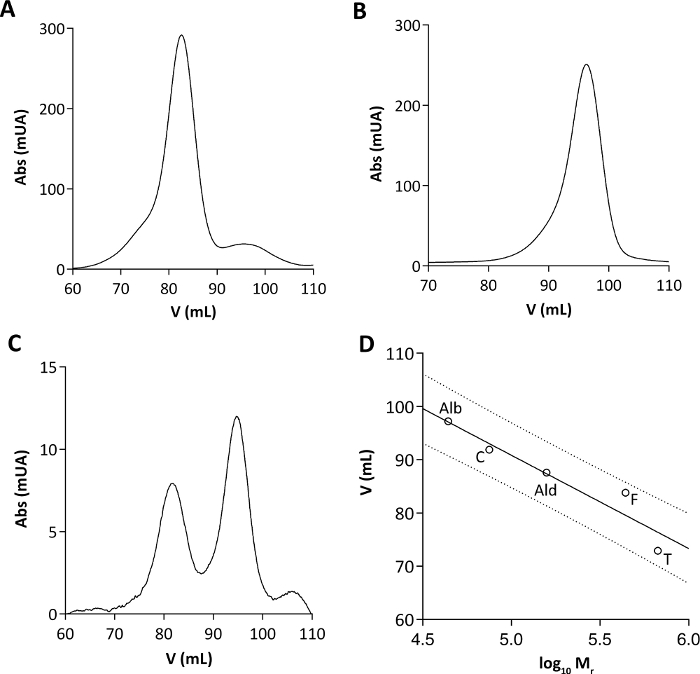
图3:(A) TmPep1050 十二聚体、(B) TmPep1050H60A H307A 和 (C) TmPep1050H60A 的凝胶过滤层析结果。
样品使用填充于120 mL柱中的SEC树脂进行分析。吸光度(Abs)以毫吸光度单位(mUA)表示。(D) 使用甲状腺球蛋白(T)、铁蛋白(F)、醛缩酶(Ald)、伴清蛋白(C)和白蛋白(Alb)作为标准品对SEC柱进行校准。相对分子质量的对数与洗脱体积之间呈线性关系,R2 为0.91。95%置信区间以圆点表示。请点击此处查看该图的高清版本。
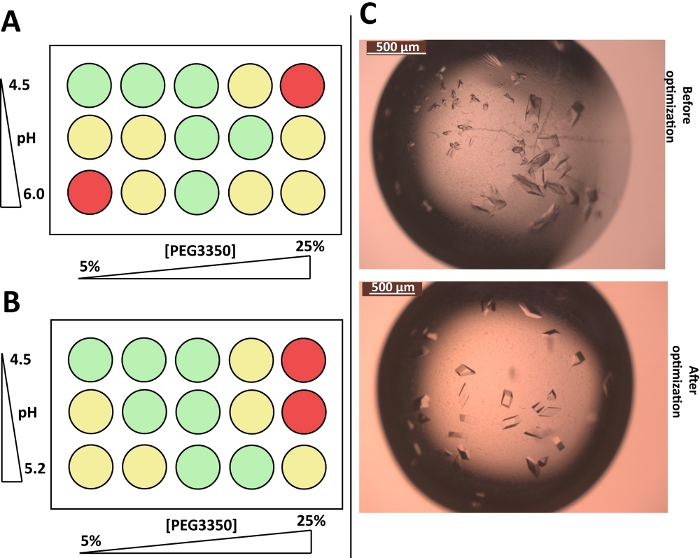
图4:TmPep1050H60A H307A 结晶条件的优化。
(A) 第一次优化策略包括改变pH值(在4.5至6.0之间)与PEG3350浓度(在5%至25%之间)的组合。图中示意了结晶板,孔位以颜色编码:红色表示沉淀,黄色表示多晶,绿色表示单晶。(B) 第二次优化策略包括使用稀释25倍的晶种,并在更窄的pH与PEG3350浓度范围内进行优化。(C) 结晶优化及微晶接种前(上图)和后(下图)的晶体形态与大小。 请点击此处查看该图的放大版本。
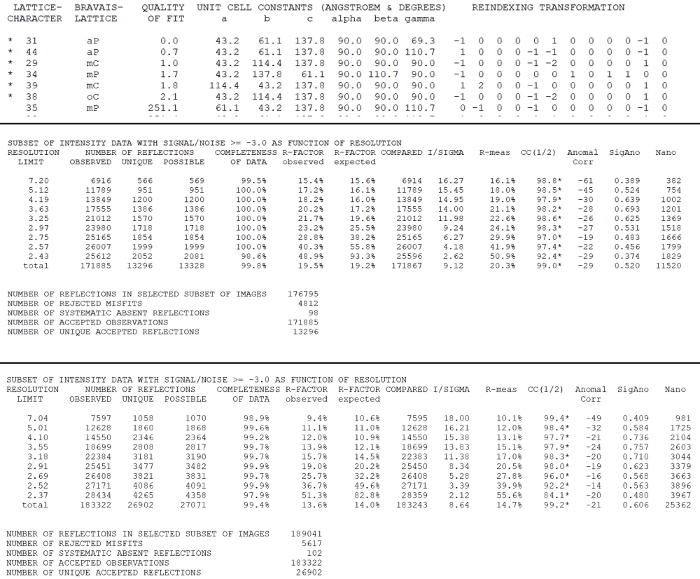
图 5:TmPep1050H60A H307A 数据通过 XDS 进行指标化时 CORRECT.LP 文件输出日志的节选。
上图显示可能的布拉维格子,其中最可能的为 mC、mP 和 oC。中图显示在 C2221 空间群中指标化数据的整体统计信息。下图显示在 P21 空间群中指标化数据的整体统计信息。请点击此处查看该图的放大版本。
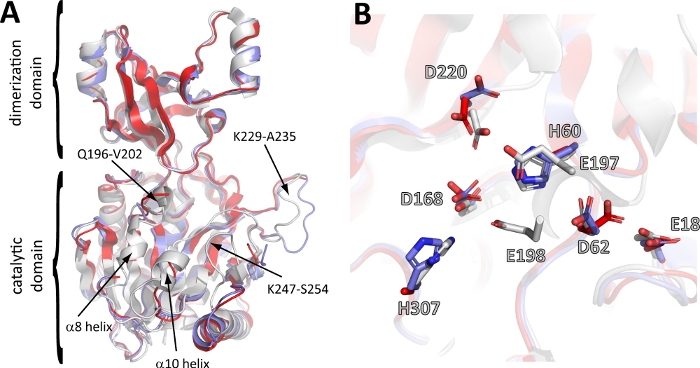
图6:TmPep1050H60A H307A的结构。
(A) TmPep1050H60A H307A亚基(红色,PDB编号5NE9)与十二聚体亚基(白色,PDB编号6NW5)及二聚体亚基(蓝色,PDB编号5NE6)的结构比对。箭头指示十二聚体与二聚体之间的结构差异。(B)) TmPep1050H60A H307A活性位点(红色)与TmPep1050二聚体(蓝色)和十二聚体(白色)活性位点的局部放大比较。请点击此处查看该图的放大版本。
| TmPep1050H60A H307A | |
| 数据收集 | |
| 温度 (K) | 100 |
| 辐射源 | SOLEIL Proxima 2 |
| 波长 (Å) | 0.9801 |
| 探测器 | Dectris Eiger X 9M |
| 振荡范围 (°) | 0.1 |
| 曝光时间 (s) | 0.025 |
| 空间群 | P 1 21 1 |
| 晶胞参数 | |
| α, β, γ (°) | 90.00, 110.69, 90.00 |
| a, b, c (Å) | 43.24, 137.79, 61.11 |
| 分辨率 | 43.99 – 2.37 (2.52–2.37) |
| 唯一衍射点 | 26,902 |
| Rmerge (%) | 0.14 |
| 冗余度 | 6,815 |
| 8.64 (2.12) | |
| 数据完备性 (%) | 99.6 (97.9) |
| CC1/2 (%) | 99.2 (84.1) |
| 结构精修 | |
| 分辨率 | 43.99 – 2.37 |
| 用于精修的衍射点 | 26,900 |
| Rfree 测试集数量 | 1,345 |
| Rwork/Rfree | 0.206/0.234 |
| 每个不对称单位中的蛋白质分子数 | 2 |
| VM (Å3/Da) | 2.37 |
| 溶剂含量 (%) | 49.0 |
| 蛋白质/溶剂原子数 | 4,559/96 |
| 键长 r.m.s.d. (Å) | 0.31 |
| 键角 r.m.s.d. (°) | 0.51 |
| 平均 B 因子 (Å2) | 57.0 |
| Ramachandran 图 φ/ψ 有利区/禁阻区 (%) | 95.02 / 0.17 |
| 孪晶律 | h, -k, -h-l |
| PDB 编号 | 5NE9 |
表1:数据收集与精修统计表。 括号内的数值对应最高分辨率壳层的数据。
讨论
本文所述方案可在结构水平上揭示TmPep1050从二聚体向十二聚体转变的过程。此前已应用该方法成功解析TmPep1050两种寡聚体的结构11。其中最具挑战性的步骤是寻找能够促使十二聚体解离为稳定二聚体的条件,这些条件必须足够温和,以便在加入金属离子辅因子后,二聚体可重新组装为十二聚体。寡聚体的分离也是一个关键步骤,因为它直接影响后续的结构研究和生化表征(例如,在不同浓度Co2+条件下研究十二聚体的重新组装)。采用分子置换法——一种已被验证的相位确定方法——来解析TmPep1050寡聚体及其变体的结构。本方案可推广应用于研究其他寡聚状态依赖于金属辅因子可用性的金属酶。
为说明该实验方案,本文展示了一个研究案例:TmPep1050H60A H307A,其金属结合位点因将His-60和His-307突变为丙氨酸而受损。这两个残基分别在M2和M1位点结合Co2+。干扰金属结合可能会影响其寡聚化状态,并导致完全解离为单体。此前已有文献报道,分别来自P. horikoshii和P. furiosus的两种M42氨肽酶PhTET2和PfTET3存在类似现象24,29。然而,TmPep1050H60A H307A的表现与预期不同,该突变体仅形成二聚体。其结构显示出与野生型二聚体相同的修饰,但存在两个细微差异。实际上,Asp-168和Asp-62的侧链呈现出一种非典型的固定取向,阻碍了活性位点的稳定。这种取向似乎受到His-60和His-307的制约,因为在单点突变体中未观察到此类结构变化。
披露
作者无任何利益冲突需要披露。
致谢
感谢 Martine Roovers 对本文进行校对并提出建设性意见。Proxima 2 光束线(SOLEIL 同步辐射光源)的使用权限属于 20151139 区块分配组。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1,10-邻菲啰啉 | Sigma-Aldrich | 13, 137-7 | |
| Amicon Ultra 0.5 ml 离心滤膜 Ultracel 30K | Merck Millipore | UFC503096 | |
| Amicon Ultra 15 离心滤膜 Ultracel 30K | Merck Millipore | UFC903024 | |
| 苯并核酸酶(Benzonase Nuclease) | Merck Millipore | 70664-3 | |
| CCP4 | N/A | 访问 http://www.ccp4.ac.uk/ | |
| cOmplete 无EDTA蛋白酶抑制剂 | Roche | 5056489001 | |
| Coot | N/A | 访问 https://www2.mrc-lmb.cam.ac.uk/personal/pemsley/coot/ | |
| Crystal Screen I | Hampton Research | HR2-110 | |
| Crystal Screen II | Hampton Research | HR2-112 | |
| DreamTaq Green PCR 预混液 | ThermoFisher Scientific | K1082 | |
| EasyXtal 15孔工具 | NeXtal | 132007 | |
| 大肠杆菌PPY菌株 | N/A | 参见参考文献31 | |
| 大肠杆菌XL1-blue菌株 | Agilent | 200249 | |
| 凝胶过滤校准试剂盒 HMW | GE Healthcare Life Sciences | 28-4038-42 | |
| 凝胶过滤校准试剂盒 LMW | GE Healthcare Life Sciences | 28-4038-41 | |
| 凝胶过滤标准品 | Biorad | 1511901 | |
| GeneJET 质粒小提试剂盒 | ThermoFisher Scientific | K0503 | |
| Index | Hampton Research | HR2-144 | |
| Litholoops | Molecular Dimensions | ||
| L-亮氨酸对硝基苯胺 | Bachem AG | 40010720025 | |
| Natrix 1 | Hampton Research | HR2-116 | |
| Natrix 2 | Hampton Research | HR2-117 | |
| Neggia插件 | Dectris | N/A | 访问 https://www.dectris.com/ |
| NeXtal JCSG核心试剂盒I型管 | NeXtal | 130724 | |
| NeXtal JCSG核心试剂盒II型管 | NeXtal | 130725 | |
| NeXtal JCSG核心试剂盒III型管 | NeXtal | 130726 | |
| NeXtal JCSG核心试剂盒IV型管 | NeXtal | 130727 | |
| pBAD-TOPO | ThermoFisher Scientific | K430001 | |
| Phenix | N/A | 访问 https://www.phenix-online.org/ | |
| Phusion高保真DNA聚合酶 | ThermoFisher Scientific | F-530L | |
| Salt RX 1 | Hampton Research | HR2-107 | |
| Salt RX 2 | Hampton Research | HR2-109 | |
| SnakeSkin透析管,3.5K截留分子量 | ThermoFisher Scientific | 88242 | |
| Source 15Phe | GE Healthcare Life Sciences | 17014702 | |
| Source 15Q | GE Healthcare Life Sciences | 17094705 | |
| Superdex 200 制备级 | GE Healthcare Life Sciences | 17104301 | |
| Thermotoga maritima MSB8菌株 | 美国模式培养物集存库 | ATCC 43589 | |
| TmCD00089984 | DNASU质粒库 | N/A | |
| XDS | N/A | 访问 http://xds.mpimf-heidelberg.mpg.de/ | |
| xdsme | N/A | 访问 https://github.com/legrandp/xdsme |
参考文献
- Levy, E. D., Teichmann, S. A. Structural, Evolutionary, and Assembly Principles of Protein Oligomerization. Progress in Molecular Biology and Translational Science. 117, 25-51 (2013).
- Selwood, T., Jaffe, E. K. Dynamic dissociating homo-oligomers and the control of protein function. Archives of Biochemistry and Biophysics. 519 (2), 131-143 (2012).
- Jaffe, E. K. The Remarkable Character of Porphobilinogen Synthase. Accounts of Chemical Research. 49 (11), 2509-2517 (2016).
- Ramström, H., et al. Properties and Regulation of the Bifunctional Enzyme HPr Kinase/Phosphatase in Bacillus subtilis. Journal of Biological Chemistry. 278 (2), 1174-1185 (2003).
- Rudyak, S. G., Brenowitz, M., Shrader, T. E. Mg2+-Linked Oligomerization Modulates the Catalytic Activiy of the Lon (La) Protease from Mycobacterium smegmatis. Biochemistry. 40 (31), 9317-9323 (2001).
- Yamamoto, S., Storey, K. B. Dissociation-Association of lactate dehydrogenase Isozymes: Influences on the formation of tetramers vs. dimers of M4-LDH and H4-LDH. International Journal of Biochemistry. 20 (11), 1261-1265 (1988).
- Sirover, M. A. Structural analysis of glyceraldehyde-3-phosphate dehydrogenase functional diversity. The International Journal of Biochemistry & Cell Biology. 57, 20-26 (2014).
- Gupta, V., Bamezai, R. N. K. Human pyruvate kinase M2: A multifunctional protein: Multifunctional Human PKM2. Protein Science. 19 (11), 2031-2044 (2010).
- Wiegand, G., Remington, S. J. Citrate synthase: Structure, Control, and Mechanism. Annual Review of Biophysics and Biophysical Chemistry. 15, 97-117 (1986).
- Libonati, M., Gotte, G. Oligomerization of bovine ribonuclease A: structural and functional features of its multimers. Biochemical Journal. 380 (2), 311-327 (2004).
- Dutoit, R., et al. How metal cofactors drive dimer-dodecamer transition of the M42 aminopeptidase TmPep1050 of Thermotoga maritima. Journal of Biological Chemistry. 294 (47), 17777-17789 (2019).
- Rawlings, N. D., et al. The MEROPS database of proteolytic enzymes, their substrates and inhibitors in 2017 and a comparison with peptidases in the PANTHER database. Nucleic Acids Research. 46 (1), 624-632 (2018).
- Neuwald, A. F., Liu, J. S., Lipman, D. J., Lawrence, C. E. Extracting protein alignment models from the sequence database. Nucleic Acids Research. 25 (9), 1665-1677 (1997).
- Dutoit, R., Brandt, N., Legrain, C., Bauvois, C. Functional Characterization of Two M42 Aminopeptidases Erroneously Annotated as Cellulases. PLoS ONE. 7 (11), 50639(2012).
- Franzetti, B., et al. Tetrahedral aminopeptidase: a novel large protease complex from archaea. The EMBO Journal. 21 (9), 2132-2138 (2002).
- Borissenko, L., Groll, M. Crystal Structure of TET Protease Reveals Complementary Protein Degradation Pathways in Prokaryotes. Journal of Molecular Biology. 346 (5), 1207-1219 (2005).
- Appolaire, A., et al. TET peptidases: A family of tetrahedral complexes conserved in prokaryotes. Biochimie. 122, 188-196 (2016).
- Russo, S., Baumann, U. Crystal Structure of a Dodecameric Tetrahedral-shaped Aminopeptidase. Journal of Biological Chemistry. 279 (49), 51275-51281 (2004).
- Schoehn, G., et al. An Archaeal Peptidase Assembles into Two Different Quaternary Structures: A tetrahedron and a giant octahedron. Journal of Biological Chemistry. 281 (47), 36327-36337 (2006).
- Durá, M. A., et al. The structural and biochemical characterizations of a novel TET peptidase complex from Pyrococcus horikoshii reveal an integrated peptide degradation system in hyperthermophilic Archaea: Characterization of P. horikoshii TET3 peptidase. Molecular Microbiology. 72 (1), 26-40 (2009).
- Basbous, H., Appolaire, A., Girard, E., Franzetti, B. Characterization of a Glycyl-Specific TET Aminopeptidase Complex from Pyrococcus horikoshii. Journal of Bacteriology. 200 (17), 00059(2018).
- Appolaire, A., et al. Small-angle neutron scattering reveals the assembly mode and oligomeric architecture of TET, a large, dodecameric aminopeptidase. Acta Crystallographica Section D Biological Crystallography. 70 (11), 2983-2993 (2014).
- Appolaire, A., et al. The TET2 and TET3 aminopeptidases from P yrococcus horikoshii form a hetero-subunit peptidasome with enhanced peptide destruction properties: TET aminopeptidase multi-subunit complex. Molecular Microbiology. 94 (4), 803-814 (2014).
- Colombo, M., Girard, E., Franzetti, B. Tuned by metals: the TET peptidase activity is controlled by 3 metal binding sites. Scientific Reports. 6 (1), 20876(2016).
- Petrova, T. E., et al. Structure of the dodecamer of the aminopeptidase APDkam598 from the archaeon Desulfurococcus kamchatkensis. Acta Crystallographica Section F Structural Biology Communications. 71 (3), 277-285 (2015).
- Kim, D., et al. Structural basis for the substrate specificity of PepA from Streptococcus pneumoniae, a dodecameric tetrahedral protease. Biochemical and Biophysical Research Communications. 391 (1), 431-436 (2010).
- Chevrier, B., et al. Crystal structure of Aeromonas proteolytica aminopeptidase: a prototypical member of the co-catalytic zinc enzyme family. Structure. 2, 283-291 (1994).
- Rosenbaum, E., Ferruit, M., Durá, M. A., Franzetti, B. Studies on the parameters controlling the stability of the TET peptidase superstructure from Pyrococcus horikoshii revealed a crucial role of pH and catalytic metals in the oligomerization process. Biochimica et Biophysica Acta (BBA) - Proteins and Proteomics. 1814 (10), 1289-1294 (2011).
- Macek, P., et al. Unraveling self-assembly pathways of the 468-kDa proteolytic machine TET2. Science Advances. 3 (4), 1601601(2017).
- Edelheit, O., Hanukoglu, A., Hanukoglu, I. Simple and efficient site-directed mutagenesis using two single-primer reactions in parallel to generate mutants for protein structure-function studies. BMC Biotechnology. 9 (1), 61(2009).
- Zhang, Y., Werling, U., Edelmann, W. SLiCE: a novel bacterial cell extract-based DNA cloning method. Nucleic Acids Research. 40 (8), 55(2012).
- Schleif, R. AraC protein, regulation of the l-arabinose operon in Escherichia coli, and the light switch mechanism of AraC action. FEMS Microbiology Reviews. 34 (5), 779-796 (2010).
- McPherson, A., Gavira, J. A. Introduction to protein crystallization. Acta Crystallographica Section F Structural Biology Communications. 70 (1), 2-20 (2014).
- Bergfors, T. Seeds to crystals. Journal of Structural Biology. 142 (1), 66-76 (2003).
- Dauter, Z. Collection of X-Ray Diffraction Data from Macromolecular Crystals. Protein Crystallography. 1607, 165-184 (2017).
- Powell, H. R. X-ray data processing. Bioscience Reports. 37 (5), 0227(2017).
- Battye, T. G. G., Kontogiannis, L., Johnson, O., Powell, H. R., Leslie, A. G. W. iMOSFLM a new graphical interface for diffraction-image processing with MOSFLM. Acta Crystallographica Section D Biological Crystallography. 67 (4), 271-281 (2011).
- Otwinowski, Z., Minor, W. Processing of X-ray diffraction data collected in oscillation mode. Methods in Enzymology. 276, 307-326 (1997).
- Clabbers, M. T. B., Gruene, T., Parkhurst, J. M., Abrahams, J. P., Waterman, D. G. Electron diffraction data processing with DIALS. Acta Crystallographica Section D Structural Biology. 74 (6), 506-518 (2018).
- Kabsch, W. XDS. Acta Crystallographica Section D Biological Crystallography. 66 (2), 125-132 (2010).
- Legrand, P. legrandp/xdsme: March 2019 version working with the latest XDS version. , Jan 26, 2018. Zenodo (2019).
- Evans, P. Scaling and assessment of data quality. Acta Crystallographica Section D Biological Crystallography. 62 (1), 72-82 (2006).
- Wlodawer, A., Minor, W., Dauter, Z., Jaskolski, M. Protein crystallography for non-crystallographers, or how to get the best (but not more) from published macromolecular structures: Protein crystallography for non-crystallographers. FEBS Journal. 275 (1), 1-21 (2008).
- Karplus, P. A., Diederichs, K. Assessing and maximizing data quality in macromolecular crystallography. Current Opinion in Structural Biology. 34, 60-68 (2015).
- Taylor, G. L. Introduction to phasing. Acta Crystallographica Section D Biological Crystallography. 66 (4), 325-338 (2010).
- Rossmann, M. G., Blow, D. M. The detection of sub-units within the crystallographic asymmetric unit. Acta Crystallographica. 15, 24-31 (1962).
- Rossmann, M. G. The molecular replacement method. Acta Crystallographica Section A Foundations of Crystallography. 46 (2), 73-82 (1990).
- McCoy, A. J., et al. Phaser crystallographic software. Journal of Applied Crystallography. 40 (4), 658-674 (2007).
- Adams, P. D., et al. PHENIX: a comprehensive Python-based system for macromolecular structure solution. Acta Crystallographica Section D Biological Crystallography. 66 (2), 213-221 (2010).
- Emsley, P., Lohkamp, B., Scott, W. G., Cowtan, K. Features and development of Coot. Acta Crystallographica Section D Biological Crystallography. 66 (4), 486-501 (2010).
- Chen, V. B., et al. MolProbity: all-atom structure validation for macromolecular crystallography. Acta Crystallographica Section D Biological Crystallography. 66 (1), 12-21 (2010).
- Zwart, P. H., Grosse-Kunstleve, R. W., Lebedev, A. A., Murshudov, G. N., Adams, P. D. Surprises and pitfalls arising from (pseudo)symmetry. Acta Crystallographica Section D Biological Crystallography. 64 (1), 99-107 (2008).
- Yeates, T. O. Detecting and overcoming crystal twinning. Methods in Enzymology. 276, 344-358 (1997).
- Terwilliger, T. C. Using prime-and-switch phasing to reduce model bias in molecular replacement. Acta Crystallographica Section D Biological Crystallography. 60 (12), 2144-2149 (2004).
- Terwilliger, T. C., et al. Iterative model building, structure refinement and density modification with the PHENIX AutoBuild wizard. Acta Crystallographica Section D Biological Crystallography. 64 (1), 61-69 (2008).
- Krissinel, E., Henrick, K. Inference of Macromolecular Assemblies from Crystalline State. Journal of Molecular Biology. 372 (3), 774-797 (2007).
重印与许可
