本文介绍了一种高效制备高滴度戊型肝炎病毒(HEV)毒种的方法,可用于有效感染肝癌细胞。利用该方法,可收获非包膜型和包膜型病毒颗粒,并用于接种多种细胞系。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
戊型肝炎病毒是导致肝硬化和肝功能衰竭的主要原因,其全球发病率正不断上升。这种单链RNA病毒主要通过输血、卫生条件不足以及受污染的食品传播。迄今为止,许多患者主要采用超说明书使用的抗病毒药物利巴韦林(RBV)进行治疗。然而,仍尚未确定针对戊型肝炎病毒的特异性治疗方法。由于缺乏高效的戊型肝炎病毒细胞培养系统,目前对HEV生命周期及致病机制的研究受到严重阻碍。一个稳定的细胞培养系统对于研究病毒生命周期(包括其致病过程)至关重要。通过本文所述的方法,可获得高达 3 × 10⁶ 焦点形成单位/毫升(FFU/mL)的非包膜型HEV病毒滴度,以及高达 5 × 10⁴ FFU/mL 的包膜型HEV病毒滴度。利用这些病毒颗粒,可以感染多种来源的细胞,包括原代细胞以及人源和动物源性细胞系。通过质粒产生具有感染性的HEV颗粒,可提供无限的病毒来源,使该实验方案极为高效。
引言
戊型肝炎是一种相对常见的 患病率在全球范围内被低估的疾病。每年约有2000万例感染,导致超过70,000人死亡1. 其致病因子戊型肝炎病毒(HEV) recently 被重新分类,现归属于科 Hepeviridae 包括正肝炎病毒属(Orthohepevirus)和鱼肝炎病毒属(Piscihepevirus)。来源于不同宿主的HEV被归类于正肝炎病毒属A至D种,包括来自人类、猪、兔、大鼠、鸟类及其他哺乳动物的分离株。2目前,已鉴定出八种不同的正链单股RNA病毒基因型(GT)。2尽管它们在序列同源性、传播途径和地理分布上存在差异,但其基因组结构高度保守。具体而言,7.2 kbp的HEV基因组分为三个主要的开放阅读框(ORF1-3)。其中,ORF1编码宿主细胞内成功复制所需的所有酶,ORF2编码衣壳蛋白,而ORF3蛋白则作为功能性离子通道,参与感染性病毒颗粒的组装与释放。3一旦释放到基底侧或顶侧腔隙中,HEV会以准包膜型和无包膜(裸露)型两种形式存在,具体形式取决于病毒来源于血液还是粪便。4,5.
虽然GT1和GT2主要存在于发展中国家,仅通过粪-口途径感染人类6,但GT3、GT4和GT7则主要出现在发达国家1,7,多种动物可作为其储存宿主,例如猪8、大鼠9、鸡10,11、鹿12、獴13、蝙蝠14、兔子15,16、野猪17等众多物种7,18,19,表明存在人畜共患传播的证据7,20,21,22。除了卫生条件不良23和受污染的食品12,24,25,26外,HEV还可通过输血和器官移植传播27,28。HEV是导致肝硬化和肝功能衰竭的常见原因29,尤其在已有肝病的患者、免疫功能低下者(基因型3、4和7)以及孕妇(基因型1)中更为严重。值得注意的是,HEV还可引起肝外表现,如造血系统疾病30,31,32、神经系统疾病33和肾脏损伤34。
迄今为止,超说明书用药利巴韦林(ribavirin, RBV)仍是许多感染患者的首选治疗方案35,36。然而,已有治疗失败及临床长期预后不佳的病例报道。治疗失败与慢性感染患者体内病毒的诱变作用及病毒异质性增加相关37,38,39。相反,最近一项欧洲回顾性多中心研究未能将聚合酶突变与RBV治疗失败相关联40。在临床观察和体外实验中,干扰素41,42,43、索非布韦44,45、锌盐46以及银莲花素(silvestrol)47,48也显示出抗病毒作用。尽管如此,由于对戊型肝炎病毒(HEV)生命周期及其致病机制的认识仍不足,特异性HEV治疗方案的开发仍受到阻碍。因此,迫切需要建立一个稳定的细胞培养系统,用于病毒学研究及新型抗病毒药物的开发49。
遗憾的是,与其他肝炎病毒类似,戊型肝炎病毒(HEV)在常规细胞系中难以增殖,通常进展非常缓慢,导致病毒载量较低。尽管如此,一些研究团队通过建立细胞系亚克隆50或调整培养基添加剂51,成功提高了病毒载量。最近,cDNA克隆的构建52以及通过连续传代适应细胞培养的原代患者分离株53,54进一步改善了HEV在体外细胞培养中的增殖能力55。在本实验方案中,我们使用了适应细胞培养的Kernow-C1株基因组(称为p6_WT)54 ,以及携带复制增强突变的突变株(称为p6_G1634R)37。Kernow-C1是HEV体外培养中最常用的毒株,能够产生较高的病毒载量。通过检测病毒RNA拷贝数,可在体外监测HEV的复制情况。然而,这些技术无法评估所产生的具有感染性病毒颗粒的数量。因此,我们建立了免疫荧光染色法以测定焦点形成单位(FFU/mL)。
本文所述方法56可用于产生全长的感染性病毒颗粒,这些病毒颗粒能够感染多种来源的细胞类型,包括原代细胞和哺乳动物细胞系。这是解析HEV感染机制和嗜性特征的重要前提。该方法无需依赖通常数量有限的患者分离株进行接种。通过质粒生产感染性HEV颗粒可提供无限的病毒来源,使本实验方案具有较高的效率。此外,该系统可用于反向遗传学研究,从而分析在体内发现的基因组变异及其对HEV复制能力和适应性的影响。该技术克服了诸多限制,可为药物开发、诱变研究以及病毒与宿主相互作用(如限制因子或病毒进入因子)的评估开辟新途径。
访问受限。请登录或开始试用以查看此内容。
方案
注意:所有实验均在生物安全二级(BSL-2)条件下进行。所有接触过戊型肝炎病毒RNA或感染性病毒的材料,在丢弃前必须在生物安全柜内的废液容器中用4% Kohrsolin FF充分冲洗。
1. 质粒制备
- 将含有编码全长 HEV gt3 Kernow-C1p6 序列质粒(pBluescript_SK_HEVp6 [JQ679013]54 或 pBluescript_SK_HEVp6-G1634R37)的转化后 Escherichia coli JM109 接种至 200 mL 含 100 µg/mL 氨苄青霉素的 LB 培养基中。在 37 °C、持续振荡(170 rpm)条件下培养 16 小时。
注:质粒提取使用质粒提取试剂盒进行(参见材料表)。 - 按照生产商提供的操作说明,将 200 mL 过夜培养物在 6,000 x g、4 °C 条件下离心 10 分钟,沉淀菌体,弃去上清液。细菌沉淀可冷冻并保存于 -20 °C。
- 用 10 mL 血清移液管和移液器辅助装置反复吹打,将细菌沉淀重悬于 4 mL 重悬缓冲液中。同时剧烈涡旋振荡。
- 加入 4 mL 预热(30–40 °C)的裂解缓冲液。轻柔颠倒数次,室温(RT)孵育 5 分钟。
- 加入 4.8 mL 中和缓冲液,轻柔颠倒混匀,确保裂解物完全中和(参见生产商说明书)。然后在 11,000 x g、4 °C 条件下离心 20 分钟。
- 将一块 2 cm × 2 cm 的玻璃棉置于 1 mL 无滤芯吸头内,用 10 mL 血清移液管吸取重悬、裂解并中和后的上清液,将装有玻璃棉的 1 mL 吸头套在血清移液管末端,将上清液过滤至新的 50 mL 离心管中。
注:如有需要,上清液可在 4 °C 下保存最多 30 分钟。 - 分多次将 750 µL 过滤后的上清液加至总共 4 个过滤柱(试剂盒提供),在 11,000 x g 条件下离心 30 秒。弃去穿流液,并重复此步骤直至所有上清液均加至过滤柱上。
- 每个过滤柱用 500 µL 预热(50 °C)的洗涤缓冲液 AW 洗涤两次,每次在 11,000 x g 条件下离心 30 秒,随后弃去穿流液。
- 每个过滤柱用 600 µL 洗涤缓冲液 A4 洗涤一次,在 11,000 x g 条件下离心 30 秒。弃去穿流液后,在 11,000 x g 条件下离心 2 分钟以干燥过滤柱。
- 通过将 60 µL 洗脱缓冲液转移至各过滤柱中心部位,洗脱质粒 DNA。室温孵育 1 分钟,然后在 11,000 x g 条件下离心 1 分钟。
- 合并各洗脱液,使用分光光度计测定提取的质粒 DNA 浓度。
2. 线性化与DNA纯化

图1:质粒线性化与DNA纯化的实验示意图。 请点击此处查看该图的高清版本。
注意:线性化可增加体外转录过程中的RNA产量(步骤3)
- 为线性化质粒DNA(图1),将10 µg模板DNA(步骤1中提取)与10 µL缓冲液、2 µL MluI 混合,并用H2O定容至100 µL。
- 在37 °C下孵育1小时,并通过琼脂糖凝胶电泳确认质粒的线性化(例如,将未消化和已消化的质粒DNA各取1 µL上样至1%琼脂糖凝胶,以120 V恒定电流进行电泳)。
- 根据DNA提取试剂盒的说明书(参见材料表,图1),将试剂盒提供的500 µL结合缓冲液与100 µL线性化DNA混合。将样品加入滤膜柱中,于17,800 x g离心30秒。弃去穿流液,并将滤膜柱放回原管中。
- 加入650 µL洗涤缓冲液洗涤滤膜柱,并于17,800 x g离心30秒。弃去穿流液,将滤膜柱放回原管中。为去除残留的洗涤缓冲液,于17,800 x g干燥离心60秒,随后将每个滤膜柱转移至新的1.5 mL离心管中。
- 通过将60 µL预热的H2O(PCR级,70 °C)转移至滤膜柱中心以洗脱DNA。在70 °C孵育1分钟,然后于18,000 x g离心1分钟。使用分光光度计测定纯化后DNA的浓度。
注:将DNA储存于-20 °C,直至进行体外转录。
3. 全长HEV基因型3 p6 DNA的体外转录及RNA纯化
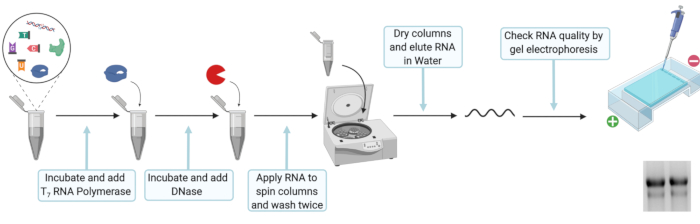
图2:实验装置示意图 体外 转录与RNA纯化 请点击此处以查看此图的放大版本。
注意:体外转录是利用质粒 DNA 制备病毒基因组 RNA 所必需的步骤。
- 体外转录反应体系配制:将 20 µL 的 5× T7 转录缓冲液、10 mM DTT、100 U 核糖核酸酶抑制剂、25 mM ATP、CTP 和 UTP、12.5 mM GTP、5 mM Ribo m7G 帽类似物、2 µg 线性化 DNA 模板以及 80 U T7 RNA 聚合酶混合。用无核酸酶的 H2O 定容至 100 µL,充分混匀后于 37 °C 孵育 2 小时。
注:在完成步骤 3.1 至 3.1.2 后,可短期保存于 -20 °C。- 加入 2 µL T7 RNA 聚合酶,充分混匀,于 37 °C 再次孵育 2 小时。
- 为降解初始 DNA 模板,加入 7.5 µL DNase(无 RNase,1 U/µL),充分混匀后于 37 °C 孵育 30 分钟。
注:操作 RNA 时,须使用 RNase 表面去污剂清洁所有台面和移液器,以避免 RNA 降解。同时确保所有反应管无 RNase 且无菌。仅使用带滤芯的吸头,并仅用无 RNase 且无菌的水进行稀释。
- 根据 RNA 提取试剂盒的制造商说明书(参见 材料表,图 2),为每一体外转录反应配制裂解缓冲液与 100% 乙醇的预混液:将 330 µL 裂解缓冲液与 330 µL 100% 乙醇混合。向 110 µL RNA 样品中加入 660 µL 裂解缓冲液-乙醇预混液,涡旋混匀。将样品加载至滤柱,于 8000 x g 离心 30 秒。弃去穿流液,将滤柱放回原管中。
- 加入 600 µL 洗涤缓冲液,于 8000 x g 离心 30 秒。弃去穿流液,将滤柱放回原管中。再加入 350 µL 洗涤缓冲液,于 8000 x g 离心 2 分钟以去除残留洗涤液。将每个滤柱转移至洁净的 1.5 mL 微离心管中。打开滤柱盖,室温静置干燥 3 分钟。
- 通过向滤柱中心加入 50 µL 无 RNase 的 H2O 洗脱 RNA。室温孵育 1 分钟后,于 8,000 x g 离心 1 分钟。取 1 µL RNA 样品上样至琼脂糖凝胶以检测 RNA 完整性,并使用分光光度计测定提取 RNA 的浓度。
注:RNA 提取后应储存于 -80 °C,直至电穿孔使用;解冻时必须置于冰上,以避免降解。
4. 用于细胞培养衍生的HEV(HEVcc)生产的HepG2细胞的制备
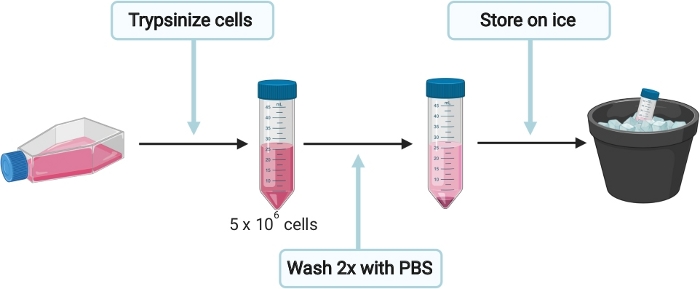
图3:用于制备细胞培养来源的戊型肝炎病毒(HEVcc)的HepG2细胞的示意图实验流程。 请点击此处查看该图的放大版本。
注意:为避免污染,细胞制备、电穿孔、感染、收获及细胞固定均在生物安全二级设施内的无菌条件下进行。涉及细胞的 37 °C 培养步骤均在含 5% CO2 的培养箱中完成。
- 为准备用于HEVcc生产的HepG2细胞(图3),将细胞接种于含完全杜尔贝科改良伊格尔培养基(DMEM)(见表1)的15 cm胶原包被培养皿中(见表1,使用无菌滤器将PBS-乙酸混合液经0.2 µm滤膜过滤后加入胶原)。于37 °C孵育,直至细胞融合度达到90%。
注意:每个含有90%融合细胞的15 cm培养皿可提供足够用于最多4次电穿孔的细胞量。 - 轻柔移除培养皿中的培养基,并用10 mL 1× PBS洗涤细胞一次。加入3 mL 0.05%胰蛋白酶-EDTA溶液进行消化,37 °C孵育至细胞完全脱落。用10 mL完全DMEM培养基重悬细胞,将细胞悬液转移至50 mL离心管中,测定细胞总数。
- 由于每次电穿孔需要5 × 10⁶个细胞,因此将相应体积的细胞悬液转移至新的50 mL离心管中,并用1× PBS补足体积至至少35 mL。在200 x g条件下离心5分钟,小心弃去上清液,避免扰动细胞沉淀。
- 再次用35 mL 1× PBS在200 x g条件下洗涤细胞5分钟。将细胞置于冰上,暂不移除1× PBS,以保持细胞处于悬浮状态。
5. HepG2 细胞的电穿孔
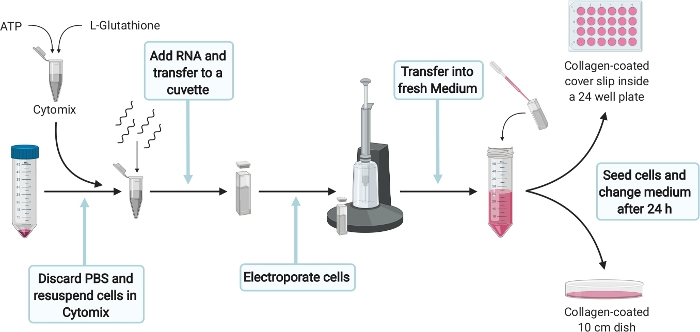
图4:HepG2细胞电穿孔的示意图实验装置。 请点击此处查看该图的放大版本。
- 对于HepG2细胞的电穿孔图 4) 准备 400 µL 每次电穿孔通过补充完整的Cytomix 384 µL 细胞混合物(参见 表1用 2 mM ATP 和 5 mM 谷胱甘肽配制。临用前新鲜配制,并立即置于冰上。
注意:正确且迅速地执行以下步骤至关重要。因此,请确保所有准备工作均已妥善完成。 - 小心移除步骤 4.4 中的 1x PBS,注意不要扰动细胞沉淀。重悬 5 x 10⁶ 细胞中 400 µL 细胞混合液完全添加并补充 5 µg 来自步骤 3.2.2 的 RNA。将溶液转移至 4 mm 比色皿中,并脉冲一次 975 µF使用电穿孔系统,在270 V条件下处理20 ms。
- 电穿孔后,立即将细胞用巴斯德吸管迅速转移至每次电穿孔对应的11 mL完全DMEM培养基中。
注意:为确保RNA成功转染至HepG2细胞,将进行转染对照(TC)。预期转染效率为40–60%的ORF2阳性细胞。
- 电穿孔后,立即将细胞用巴斯德吸管迅速转移至每次电穿孔对应的11 mL完全DMEM培养基中。
- 将10 mL电穿孔后的细胞转移至经胶原蛋白包被的10 cm培养皿中。加入1.3 x 10⁵ 电穿孔细胞(300 µL)加入至一个包被有胶原蛋白的24孔微孔板中的单个孔内,该孔内已放置盖玻片(后续用作转染对照)。将细胞均匀分布后,于37°C、5% CO₂培养箱中孵育。 37 °C.
- 24 小时后,更换 10 cm 培养皿中的培养基,加入 10 mL 新鲜的完全 DMEM 培养基。转染对照组的培养基不更换。继续在 37 °C.
- 在电穿孔后5-7天,根据细胞密度,通过继续进行免疫荧光染色方案(步骤8)来终止24孔板中的转染对照。转染效率通过计数ORF2阳性细胞数并相对于总细胞数进行归一化计算。
6. 收获细胞内和细胞外的HEVcc
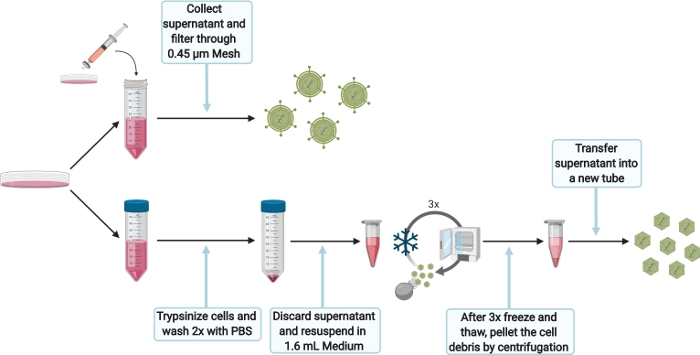
图5:收获细胞内和细胞外HEVcc的实验流程示意图。 请点击此处查看该图的放大版本。
- 为了收获细胞外HEVcc(图5),将第6天(步骤5.3.1)从10 cm培养皿中获得的上清液通过0.45 µm滤膜过滤,以去除任何细胞碎片。收获的细胞外HEVcc可在4 °C保存用于当天感染,否则应保存在-80 °C。
- 为了收获细胞内HEVcc(图5),用1×PBS洗涤细胞,并加入1.5 mL 0.05%胰蛋白酶-EDTA进行消化。在37 °C孵育直至细胞完全脱落。加入10 mL完全DMEM培养基,冲洗培养皿以收集细胞,并将细胞悬液转移至50 mL离心管中。用PBS洗涤细胞两次。在200 x g下离心5分钟。
- 弃去上清液,每份电穿孔样品用1.6 mL完全DMEM重悬细胞沉淀。将细胞悬液转移至2 mL反应管中。
注意:不要使用更大体积,否则会显著降低病毒载量。 - 将细胞冷冻(液氮中)并解冻,重复此过程3次。
注意:每次冻融循环中不要合并超过一份电穿孔样品(1.6 mL),否则会影响裂解效率。循环过程中不要涡旋振荡细胞悬液。确保缓慢解冻细胞悬液(例如室温或冰上),以最大化病毒载量。 - 将裂解后的细胞在10,000 x g下高速离心10分钟,以去除细胞碎片。将上清液转移至新管中。可直接取上清液用于感染,否则保存于-80 °C。
- 可选:使用浓缩装置根据制造商说明书对细胞外和细胞内HEVcc进行浓缩,以提高病毒载量。
- 弃去上清液,每份电穿孔样品用1.6 mL完全DMEM重悬细胞沉淀。将细胞悬液转移至2 mL反应管中。
7. 胞内和胞外HEVcc对HepG2/C3A细胞的感染

图6:HepG2/C3A 细胞感染细胞内和细胞外 HEVcc 的实验设计示意图。 请点击此处查看该图的高清版本。
注意:HepG2/C3A 细胞的感染应确保已产生感染性病毒颗粒。此外,通过测定收获的细胞内和细胞外 HEVcc 的滴度,可计算病毒滴度(单位为 FFU/mL)。此步骤后续将被称为感染对照(IC)。
- 为进行HEVcc感染(图6),将完全最低必需培养基(MEM完全培养基)(见表1)预热至37 °C。
- 在进行步骤6的前一天,将2 × 10⁴个细胞/孔接种于胶原蛋白包被的96孔微孔板中,每孔体积为100 µL。确保最外圈的孔中加入1× PBS,以防止内部60个孔中培养基蒸发。在37 °C下孵育24小时。
- 通过向前一天接种的HepG2/C3A细胞中加入50 µL上清液(来自步骤6.1)进行细胞外HEVcc感染。用移液器吹打混匀,并通过将50 µL转移至下一孔的方式进行1:3连续六次梯度稀释。每个梯度稀释设置两个技术重复孔。
- 通过向前一天接种的HepG2/C3A细胞中加入25 µL上清液(来自步骤6.2.3)进行细胞内HEVcc感染。用移液器吹打混匀,并通过将25 µL转移至下一孔的方式进行1:5连续六次梯度稀释。每个梯度稀释设置两个技术重复孔。
- 在37 °C孵育7天后,继续进行免疫荧光染色实验(步骤8),以终止感染。
8. 转染与感染对照的免疫荧光染色
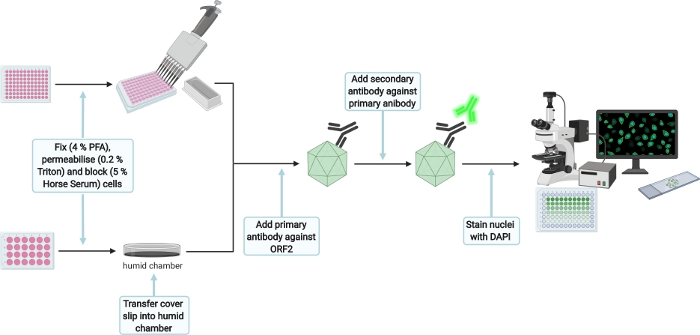
图7:转染与感染对照的免疫荧光染色实验示意图。 请点击此处查看此图的放大版本。
- 进行免疫荧光染色(图7)时,用1× PBS洗涤3次,然后每孔加入350 µL(转染对照[TC])或50 µL(感染对照[IC])的4%固定液进行细胞固定。室温孵育15分钟,随后小心地用1× PBS洗涤两次。
注意:转染对照的实验流程可在此暂停,直至HepG2/C3A细胞的感染过程也停止。将培养板置于4 °C保存,并用封口膜密封以防止蒸发。 - 加入350 µL(TC)或50 µL(IC)含0.2% Triton X-100的1× PBS溶液,室温孵育5分钟以通透细胞。然后小心地用1× PBS洗涤两次,再加入350 µL(TC)或50 µL(IC)含5%马血清的1× PBS溶液,在室温下于旋转摇床(30 rpm)上持续振荡孵育1小时进行封闭。
注意:准备一个小型塑料培养皿(30 mm),在其中放入湿润的纸巾,并在其上方覆盖一层石蜡膜,制成一个湿润 chamber。然后将TC的盖玻片正面朝上转移至石蜡膜上。TC后续所有步骤均在此湿润 chamber 中进行。 - 每孔加入70 µL(TC)或25 µL(IC)的一抗anti-ORF2 8282(HEV特异性兔高免血清,用5%马血清稀释至1:5,000),在4 °C下于旋转摇床(30 rpm)上持续振荡孵育过夜。
- 小心地用1× PBS洗涤两次,然后每孔加入70 µL(TC)或25 µL(IC)二抗山羊抗兔IgG 488(用5%马血清稀释至1:1,000),在避光条件下于旋转摇床(30 rpm)上持续振荡孵育1小时。再次小心地用1× PBS洗涤两次
- 每孔加入70 µL(TC)或25 µL(IC)DAPI溶液(H2O中稀释1:10,000),孵育1分钟。小心地用H2O洗涤两次。从湿润 chamber 中取出盖玻片,将TC的盖玻片正面朝下,用6 µL封片剂封固于载玻片上(仅TC需此操作),并在避光条件下室温干燥16小时。IC样本则保存于水中直至成像,并用石蜡膜密封培养板以避免因蒸发导致干燥。
- 拍摄图像以确认转染和感染成功。
注意:使用市售的一抗anti-ORF2 1E6抗体57(用5%马血清稀释至1:200)以及驴抗小鼠二抗(用5%马血清稀释至1:1,000)也可获得类似结果。
9. FFU 测定
注意:一个蚀斑形成单位(FFU)定义为一个或多个ORF2阳性细胞,其与另一个蚀斑形成单位之间至少被三个阴性细胞隔开。
- 对于细胞外HEVcc,开始计数两个最低稀释度的两孔中所有ORF2阳性病灶。应总计数四孔。每毫升的感染灶形成单位(FFU)可通过以下公式计算:
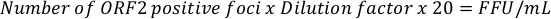
注:预期滴度范围在102至5 × 10⁴ FFU/mL之间。 - 对于细胞内HEVcc,开始计数病灶数在50至100个之间的孔中所有ORF2阳性病灶。此外,还需计数下一个更高稀释度的两孔。应总计数四孔。每毫升的感染灶形成单位(FFU)可通过以下公式计算:
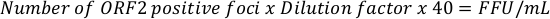
注:预期滴度范围在105至3 × 10⁶ FFU/mL之间。因子20×和40×用于将50 µL和25 µL样本中的FFU数量外推至1 mL,可根据实际体积相应调整。
访问受限。请登录或开始试用以查看此内容。
结果
在本实验方案中,我们描述了高滴度感染性HEVcc的制备方法。第一步是分离质粒DNA(pBluescript_SK_HEVp654 和 pBluescript_SK_HEVp6-G1634R37,图8a),随后通过限制性酶切将其线性化,并纯化用于体外转录(图1)。可通过琼脂糖凝胶电泳比较未酶切与酶切后的质粒DNA,以验证线性化是否成功。除出现大小迁移外,仅应观察到一条代表线性化形式的DNA条带。当位于线性化条带上、下两侧分别代表切口环状和超螺旋形式的两条额外条带完全消失时,表明线性化已完全(图8b)。纯化所得DNA的浓度应超过150 ng/µL。只有满足上述条件的线性化DNA方可用于体外转录。体外转录所得RNA也应通过凝胶电泳进行检测,若RNase污染较少,则应呈现清晰分明的条带,而非弥散的涂抹状(图8c)。...
访问受限。请登录或开始试用以查看此内容。
讨论
从质粒制备开始,DNA 产量应超过 150 ng/µL,以便能够从同一质粒储备中进行 多次线性化,从而最大限度地降低细菌诱导关键基因组序列突变的风险。此外,必须通过凝胶电泳检测限制性酶切是否实现了质粒的完全线性化(图 8b)。若缺乏线性化的质粒 DNA,将引发滚环扩增,导致体外转录效率降低。另外,应确认 RNA 的完整性,以评估样品中 RNase 的含量(图 8c)。只有在完成上述步骤后,才可考虑对靶细胞进行电穿孔。需要注意的是,在开始 HepG2 细胞制备前,务必确保所有物品均已准备就绪,避免出现长时间等待。特别是,细胞和 RNA 在电穿孔前应短暂保存于 Cytomix 中。为防止电穿孔过程中细胞受热,必须提前将缓冲液置于冰上预冷。电脉冲持续时间不应超过 20–25 ms,电压为 270 V。电穿孔后,细胞需迅速转移至新鲜培养基中,以确保细胞存活率。在感染靶细胞前,应检测转染细胞(TC)中 ORF2 阳性细胞的比例。如果转染细胞中未检测到 ORF2 阳性细胞,则很可能是电穿孔失败或染色未成功,此时应重复实验...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
我们感谢Suzanne Emerson提供的戊型肝炎病毒p6克隆。HEV特异性兔高免血清由德国弗里德里希·勒夫勒研究所的Rainer Ulrich慷慨提供。此外,我们感谢波鸿鲁尔大学分子与医学病毒学系所有成员给予的支持与讨论。图1-7使用BioRender.com生成。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.45 µm 网格 | Sarstedt | 83.1826 | 收集细胞外病毒 |
| 4 % Histofix | CarlRoth | P087.4 | 免疫荧光 |
| 乙酸 | CarlRoth | 6755.1 | 胶原工作液 |
| Amicon Ultra-15 | Merck Millipore | UFC910024 | 病毒收获 |
| 氨苄青霉素 | Sigma-Aldrich | A1593 | 转化细菌筛选 |
| ATP | Roche | 11140965001 | 体外转录与电穿孔 |
| BioRender | BioRender | 图像生成 | |
| CaCl2 | Roth | 5239.2 | Cytomix |
| 0.4 % 无菌胶原R溶液 | Serva | 47256.01 | 胶原工作液 |
| CTP | Roche | 11140922001 | 体外转录 |
| 电穿孔杯 | Biorad | 165-2088 | 电穿孔 |
| DAPI | Invitrogen | D21490 | 免疫荧光 |
| DMEM | gibco | 41965-039 | 细胞培养 |
| DNA酶 | Promega | M6101 | 体外转录 |
| DTT | Promega | 包含于P2077中 | 体外转录 |
| EGTA | Roth | 3054.3 | Cytomix |
| 大肠杆菌 JM109 | Promega | L2005 | 转化 |
| 胎牛血清 | gibco | 10270106 | 细胞培养 |
| Fluoromount | SouthernBiotech | 0100-01 | 免疫荧光 |
| GenePulser Xcell 电穿孔系统 | BioRad | 1652660 | 电穿孔 |
| 庆大霉素 | gibco | 15710049 | 细胞培养 |
| GTP | Roche | 11140957001 | 体外转录 |
| H2O | Braun | 184238001 | 免疫荧光 |
| Hepes | Invitrogen | 15630-03 | Cytomix |
| 马血清 | gibco | 16050122 | 免疫荧光 |
| K2HPO4 | Roth | P749.1 | Cytomix |
| KCL | Roth | 6781.3 | Cytomix |
| KH2PO4 | Roth | 3904.2 | Cytomix |
| L-谷氨酰胺 | gibco | 25030081 | 细胞培养 |
| 还原型L-谷胱甘肽 | Sigma-Aldrich | G4251-5G | Cytomix |
| MEM | gibco | 31095-029 | 细胞培养 |
| MEM 非必需氨基酸(100×) | gibco | 11140-035 | 细胞培养 |
| MgCl2 | Roth | 2189.2 | Cytomix |
| 微量紫外-可见分光光度计 NanoDrop One | Thermo Fisher | ND-ONE-W | DNA/RNA 浓度测定 |
| MluI 酶 | NEB | R0198L | 线性化 |
| NEB 缓冲液 | NEB | 包含于 R0198L 中 | 线性化 |
| NucleoSpin 质粒提取试剂盒 | Macherey & Nagel | 740588.250 | 质粒制备 |
| NucleoSpin RNA 纯化试剂盒 | Macherey & Nagel | 740948.250 | RNA 纯化 |
| PBS | gibco | 70011051 | 细胞培养 |
| 青霉素/链霉素 | Thermo Fisher | 15140122 | 细胞培养 |
| 编码全长HEV基因组的质粒(p6_G1634R) | Todt 等 | 病毒生产 | |
| 编码全长HEV基因组的质粒(p6_WT) | Shukla 等 | GenBank 登录号 JQ679013 | 病毒生产 |
| 一抗 1E6 | LS-Bio | C67675 | 免疫荧光 |
| 一抗 8282 | 德国弗里德里希-勒弗勒研究所 Rainer Ulrich | ||
| QIAprep Spin Miniprep 试剂盒 | Qiagen | 27106 | DNA 提取 |
| Ribo m7G 加帽类似物 | Promega | P1711 | 体外转录 |
| RNase away | CarlRoth | A998.3 | RNA 纯化 |
| RNasin(RNase抑制剂) | Promega | N2515 | 体外转录 |
| 二抗 驴抗小鼠 488 | Thermo Fisher | A-21202 | 免疫荧光 |
| 二抗 山羊抗兔 488 | Thermo Fisher | A-11008 | 免疫荧光 |
| 丙酮酸钠 | gibco | 11360070 | 细胞培养 |
| T7 RNA 聚合酶 | Promega | P2077 | 体外转录 |
| 转录缓冲液 | Promega | 包含于 P2077 中 | 体外转录 |
| 吐温 X-100 | CarlRoth | 3051.3 | 免疫荧光 |
| 胰蛋白酶-EDTA(0.5 %) | gibco | 15400054 | 细胞培养 |
| 超低IgG | gibco | 1921005PJ | 细胞培养 |
| UTP | Roche | 11140949001 | 体外转录 |
参考文献
- Wedemeyer, H., Pischke, S., Manns, M. P. Pathogenesis and treatment of hepatitis e virus infection. Gastroenterology. 142 (6), 1388-1397 (2012).
- Smith, D. B., et al. Proposed reference sequences for hepatitis E virus subtypes. The Journal of General Virology. 97 (3), 537-542 (2016).
- Ding, Q., et al. Hepatitis E virus ORF3 is a functional ion channel required for release of infectious particles. Proceedings of the National Academy of Sciences of the United States of America. 114 (5), 1147-1152 (2017).
- Chapuy-Regaud, S., et al. Characterization of the lipid envelope of exosome encapsulated HEV particles protected from the immune response. Biochimie. 141, 70-79 (2017).
- Yin, X., Ambardekar, C., Lu, Y., Feng, Z. Distinct Entry Mechanisms for Nonenveloped and Quasi-Enveloped Hepatitis E Viruses. Journal of Virology. 90 (8), 4232-4242 (2016).
- Khuroo, M. S., Khuroo, M. S., Khuroo, N. S. Hepatitis E: Discovery, global impact, control and cure. World Journal of Gastroenterology. 22 (31), 7030-7045 (2016).
- Rasche, A., et al. Hepatitis E Virus Infection in Dromedaries, North and East Africa, United Arab Emirates, and Pakistan, 1983-2015. Emerging Infectious Diseases. 22 (7), 1249-1252 (2016).
- Hsieh, S. Y., et al. Identity of a novel swine hepatitis E virus in Taiwan forming a monophyletic group with Taiwan isolates of human hepatitis E virus. Journal of Clinical Microbiology. 37 (12), 3828-3834 (1999).
- Johne, R., et al. Detection of a novel hepatitis E-like virus in faeces of wild rats using a nested broad-spectrum RT-PCR. The Journal of General Virology. 91, Pt 3 750-758 (2010).
- Payne, C. J., Ellis, T. M., Plant, S. L., Gregory, A. R., Wilcox, G. E. Sequence data suggests big liver and spleen disease virus (BLSV) is genetically related to hepatitis E virus. Veterinary Microbiology. 68 (1-2), 119-125 (1999).
- Haqshenas, G., Shivaprasad, H. L., Woolcock, P. R., Read, D. H., Meng, X. -J. Genetic identification and characterization of a novel virus related to human hepatitis E virus from chickens with hepatitis–splenomegaly syndrome in the United States. Journal of General Virology. 82, 2449-2462 (2001).
- Tei, S., Kitajima, N., Takahashi, K., Mishiro, S. Zoonotic transmission of hepatitis E virus from deer to human beings. The Lancet. 362 (9381), 371-373 (2003).
- Nakamura, M., et al. Hepatitis E virus infection in wild mongooses of Okinawa, Japan: Demonstration of anti-HEV antibodies and a full-genome nucleotide sequence. Hepatology Research: the Official Journal of the Japan Society of Hepatology. 34 (3), 137-140 (2006).
- Drexler, J. F., et al. Bats worldwide carry hepatitis E virus-related viruses that form a putative novel genus within the family Hepeviridae. Journal of Virology. 86 (17), 9134-9147 (2012).
- Zhao, C., et al. A novel genotype of hepatitis E virus prevalent among farmed rabbits in China. Journal of Medical Virology. 81 (8), 1371-1379 (2009).
- Lhomme, S., et al. Risk of zoonotic transmission of HEV from rabbits. Journal of Clinical Virology: the Official Publication of the Pan American Society for Clinical Virology. 58 (2), 357-362 (2013).
- Kaci, S., Nöckler, K., Johne, R. Detection of hepatitis E virus in archived German wild boar serum samples. Veterinary Microbiology. 128 (3-4), 380-385 (2008).
- Liu, B., et al. Avian hepatitis E virus infection of duck, goose, and rabbit in northwest China. Emerging Microbes & Infections. 7 (1), 76(2018).
- Raj, V. S., et al. Novel hepatitis E virus in ferrets, the Netherlands. Emerging Infectious Diseases. 18 (8), 1369-1370 (2012).
- Dong, C., et al. Restricted enzooticity of hepatitis E virus genotypes 1 to 4 in the United States. Journal of Clinical Microbiology. 49 (12), 4164-4172 (2011).
- Goens, S. D., Perdue, M. L. Hepatitis E viruses in humans and animals. Animal Health Research Reviews. 5 (2), 145-156 (2004).
- Geng, Y., Wang, Y. Transmission of Hepatitis E Virus. Advances in Experimental Medicine and Biology. 948, 89-112 (2016).
- Naik, S. R., Aggarwal, R., Salunke, P. N., Mehrotra, N. N. A large waterborne viral hepatitis E epidemic in Kanpur, India. Bulletin of the World Health Organization. 70 (5), 597-604 (1992).
- Feagins, A. R., Opriessnig, T., Guenette, D. K., Halbur, P. G., Meng, X. -J. Detection and characterization of infectious Hepatitis E virus from commercial pig livers sold in local grocery stores in the USA. The Journal of General Virology. 88, Pt 3 912-917 (2007).
- Colson, P., et al. Pig liver sausage as a source of hepatitis E virus transmission to humans. The Journal of Infectious Diseases. 202 (6), 825-834 (2010).
- Wenzel, J. J., et al. Detection of hepatitis E virus (HEV) from porcine livers in Southeastern Germany and high sequence homology to human HEV isolates. Journal of Clinical Virology: the Official Publication of the Pan American Society for Clinical Virology. 52 (1), 50-54 (2011).
- Colson, P., et al. Transfusion-associated Hepatitis E, France. Emerging Infectious Diseases. 13 (4), 648-649 (2007).
- Kamp, C., et al. Impact of hepatitis E virus testing on the safety of blood components in Germany - results of a simulation study. Vox Sanguinis. , (2018).
- Kamar, N., Dalton, H. R., Abravanel, F., Izopet, J. Hepatitis E virus infection. Clinical Microbiology Reviews. 27 (1), 116-138 (2014).
- Pischke, S., Behrendt, P., Manns, M. P., Wedemeyer, H. HEV-associated cryoglobulinaemia and extrahepatic manifestations of hepatitis E. The Lancet Infectious Diseases. 14 (8), 678-679 (2014).
- Colson, P., et al. Severe thrombocytopenia associated with acute hepatitis E virus infection. Journal of Clinical Microbiology. 46 (7), 2450-2452 (2008).
- Mishra, P., Mahapatra, M., Kumar, R., Pati, H. P. Autoimmune hemolytic anemia and erythroid hypoplasia associated with hepatitis E. Indian Journal of Gastroenterology: Official Journal of the Indian Society of Gastroenterology. 26 (4), 195-196 (2007).
- Sood, A., Midha, V., Sood, N. Guillain-Barré syndrome with acute hepatitis E. The American Journal of Gastroenterology. 95 (12), 3667-3668 (2000).
- Fousekis, F. S., Mitselos, I. V., Christodoulou, D. K. Extrahepatic manifestations of hepatitis E virus: An overview. Clinical and Molecular Hepatology. 26 (1), 16-23 (2020).
- Pischke, S., et al. Ribavirin treatment of acute and chronic hepatitis E: A single-centre experience. Liver International: Official Journal of the International Association for the Study of the Liver. 33 (5), 722(2013).
- Kamar, N., et al. Ribavirin for Chronic Hepatitis E Virus Infection in Transplant Recipients. The New England Journal of Medicine. 370, 1111-1120 (2014).
- Todt, D., et al. In vivo evidence for ribavirin-induced mutagenesis of the hepatitis E virus genome. Gut. 65, 1733-1743 (2016).
- Todt, D., Walter, S., Brown, R. J. P., Steinmann, E. Mutagenic Effects of Ribavirin on Hepatitis E Virus-Viral Extinction versus Selection of Fitness-Enhancing Mutations. Viruses. 8 (10), 8100283(2016).
- Todt, D., Meister, T. L., Steinmann, E. Hepatitis E virus treatment and ribavirin therapy: Viral mechanisms of nonresponse. Current Opinion in Virology. 32, 80-87 (2018).
- Kamar, N., et al. Ribavirin for Hepatitis E Virus Infection After Organ Transplantation: A Large European Retrospective Multicenter Study. Clinical Infectious Diseases: An Official Publication of the Infectious Diseases Society of America. , (2019).
- Kamar, N., et al. Influence of immunosuppressive therapy on the natural history of genotype 3 hepatitis-E virus infection after organ transplantation. Transplantation. 89 (3), 353-360 (2010).
- Kamar, N., et al. Pegylated interferon-alpha for treating chronic hepatitis E virus infection after liver transplantation. Clinical Infectious Diseases: An Official Publication of the Infectious Diseases Society of America. 50 (5), 30-33 (2010).
- Todt, D., et al. Antiviral Activities of Different Interferon Types and Subtypes against Hepatitis E Virus Replication. Antimicrobial Agents and Chemotherapy. 60 (4), 2132-2139 (2016).
- Dao Thi, V. L., et al. Sofosbuvir Inhibits Hepatitis E Virus Replication In Vitro and Results in an Additive Effect When Combined with Ribavirin. Gastroenterology. 150 (1), 82-85 (2016).
- van der Valk, M., Zaaijer, H. L., Kater, A. P., Schinkel, J. Sofosbuvir shows antiviral activity in a patient with chronic hepatitis E virus infection. Journal of Hepatology. 66 (1), 242-243 (2017).
- Kaushik, N., et al. Zinc Salts Block Hepatitis E Virus Replication by Inhibiting the Activity of Viral RNA-Dependent RNA Polymerase. Journal of Virology. 91 (21), (2017).
- Todt, D., et al. The natural compound silvestrol inhibits hepatitis E virus (HEV) replication in vitro and in vivo. Antiviral Research. 157, 151-158 (2018).
- Glitscher, M., et al. Inhibition of Hepatitis E Virus Spread by the Natural Compound Silvestrol. Viruses. 10 (6), 301(2018).
- Kinast, V., Burkard, T. L., Todt, D., Steinmann, E. Hepatitis E Virus Drug Development. Viruses. 11 (6), 485(2019).
- Schemmerer, M., et al. Enhanced Replication of Hepatitis E Virus Strain 47832c in an A549-Derived Subclonal Cell Line. Viruses. 8 (10), 267(2016).
- Huang, R., et al. Cell Culture of Sporadic Hepatitis E Virus in China. Clinical and Vaccine Immunology. 6 (5), 729-733 (1999).
- Emerson, S. U., et al. Recombinant hepatitis E virus genomes infectious for primates: Importance of capping and discovery of a cis-reactive element. PNAS. 98 (26), 15270-15275 (2001).
- Shukla, P., et al. Cross-species infections of cultured cells by hepatitis E virus and discovery of an infectious virus-host recombinant. Proceedings of the National Academy of Sciences of the United States of America. 108 (6), 2438-2443 (2011).
- Shukla, P., et al. Adaptation of a genotype 3 hepatitis E virus to efficient growth in cell culture depends on an inserted human gene segment acquired by recombination. Journal of Virology. 86 (10), 5697-5707 (2012).
- Meister, T. L., Bruening, J., Todt, D., Steinmann, E. Cell culture systems for the study of hepatitis E virus. Antiviral Research. 163, 34-49 (2019).
- Todt, D., et al. Robust hepatitis E virus infection and transcriptional response in human hepatocytes. Proceedings of the National Academy of Sciences of the United States of America. , (2020).
- Ankavay, M., et al. New insights into the ORF2 capsid protein, a key player of the hepatitis E virus lifecycle. Scientific Reports. 9 (1), 6243(2019).
- Schemmerer, M., Johne, R., Erl, M., Jilg, W., Wenzel, J. J. Isolation of Subtype 3c, 3e and 3f-Like Hepatitis E Virus Strains Stably Replicating to High Viral Loads in an Optimized Cell Culture System. Viruses. 11 (6), 483(2019).
访问受限。请登录或开始试用以查看此内容。
重印与许可
