本文展示了一种行为范式,可在人类上肢肌肉进行视觉引导的伸手运动期间,诱发强烈的快速视觉运动反应。
本文内容
摘要
摘要
为了触及可见物体,视觉信息必须转化为运动指令。物体的颜色、形状和大小等视觉信息在多个脑区中被处理和整合,最终传递至运动外周系统。在某些情况下,需要尽快产生反应。然而,人类中这种快速视觉-运动转换及其潜在的神经基础尚不明确,原因在于缺乏可靠的生物标志物。刺激锁定反应(SLR)是一种短潜伏期(<100 ms)的肌电图(EMG)活动爆发,代表了受视觉刺激呈现影响的首波肌肉募集。SLR为快速视觉-运动转换提供了可量化的输出指标,但在以往的研究中,并非所有受试者都能稳定观察到SLR。本文介绍了一种新的行为范式,其特征是移动目标突然从障碍物下方出现,能够稳定诱发显著的SLR。实验中,人类受试者使用机械臂装置朝向或远离突然出现的目标进行视觉引导的伸手动作,同时通过表面电极记录胸大肌的肌电活动。与以往使用静态刺激研究SLR的工作相比,该“目标突然出现”范式所诱发的SLR幅度更大、出现更早,并且在所有受试者中均能观察到。此外,在该范式下,伸手反应时间(RT)也更短。该范式具有多种可修改的参数,可用于系统研究各种感觉、认知和运动操作对快速视觉-运动反应的影响。总体而言,我们的结果表明,“目标突然出现”范式能够稳定而强烈地激活快速视觉-运动系统中的活动。
引言
当我们注意到手机上有消息时,会促使我们执行一个视觉引导的伸手动作,以拿起手机并阅读消息。手机的形状和大小等视觉特征会被转化为运动指令,使我们能够成功地到达目标。这类视觉-运动转换可以在实验室条件下进行研究,从而实现高度的控制。然而,在某些情况下反应时间至关重要,例如,当手机即将掉落时需要迅速抓住。对快速视觉-运动行为的实验室研究通常依赖于目标位移范式,即在运动过程中,当目标位置发生改变时(例如,参见文献1,2),正在进行的动作会在中途被调整。尽管此类在线校正可在<150 ms内发生3,但由于手臂具有低通滤波特性,且快速的视觉-运动输出会叠加在已经进行中的运动之上,仅通过运动学数据难以精确确定快速视觉-运动输出的确切时间。这些复杂性导致人们对快速视觉-运动反应的神经基础仍存在不确定性(参见文献4以了解综述)。一些研究表明,可能是上丘等皮层下结构,而非额顶叶皮层区域,启动了此类在线校正过程5。
这种对快速视觉运动系统输出缺乏可靠生物标志物的情况,可能至少在一定程度上导致了目前对相关神经基础的不确定性。最近,我们描述了一种可用于检测快速视觉运动反应的指标,该反应可由静态姿势引发,并通过肌电图(EMG)记录。刺激锁定反应(SLRs)是一类与刺激时间同步的EMG活动爆发,出现在自主运动之前6,7,通常在刺激呈现后约100毫秒内稳定出现。顾名思义,SLRs由刺激 onset 诱发,即使最终未产生运动8,或运动方向相反9,该反应仍可持续存在。此外,在动态范式中由目标位移诱发的SLRs与更短潜伏期的在线校正反应相关10。因此,SLRs为系统研究参与短潜伏期反应时(RTs)的快速视觉运动系统的输出提供了一种客观的测量手段,因为它们可由静态姿势产生,并能从其他与快速视觉运动反应初始阶段无关的EMG信号中分离出来。
本研究的目的是提出一种能够稳健诱发短潜伏期反应(SLR)的视觉引导 reaching 范式。以往关于 SLR 的研究报道,在参与者中的检测率低于 100%,即使使用了更具侵入性的肌内记录方法6,8,9。检测率偏低以及对侵入性记录的依赖,限制了 SLR 测量在未来针对疾病状态或全生命周期中快速视觉运动系统研究中的应用价值。尽管部分受试者可能本身并不表现出 SLR,但先前研究所采用的刺激和行为范式可能并非诱发 SLR 的最佳选择。以往关于 SLR 的报告通常采用让参与者向静止且突然出现的目标进行视觉引导 reaching 的范式6,9。然而,快速视觉运动系统最可能在需要快速与下落或飞行物体互动的情境中发挥作用,这引发人们 思考:移动刺激是否比静态刺激更能有效诱发 SLR。因此,我们改进了一种用于研究眼动的移动目标范式11,并将其与一种用于考察 SLR 的 pro/anti 视觉引导 reaching 任务相结合9。与先前范式所得结果相比6,8,9,我们发现,在新兴目标范式中,SLR 出现更早、幅值更高,并且在受试者样本中更为普遍。总体而言,新兴目标范式极大地促进了快速视觉运动反应的表达,使得通过表面肌电图(EMG)记录即可可靠地进行客观测量,从而为临床人群及全生命周期的研究提供了可能。此外,新兴目标范式还可进行多种不同方式的修改,有助于更深入地探究促进或调节快速视觉运动反应的感觉、认知和运动因素。
方案
所有程序均经西安大略大学健康科学研究伦理委员会批准。所有参与者均签署知情同意书,参与研究可获得报酬,且有权随时退出 在实验的任何时间点。
1. 受试者准备
注意:研究纳入了少量健康的年轻参与者(3名女性,2名男性;平均年龄:26岁 ± 3.5岁)。所有参与者均为右利手,视力正常或矫正至正常,且无当前视觉、神经或肌肉骨骼系统疾病。有上肢肌肉骨骼损伤或疾病史的参与者被排除在外。
- 将肌电图(EMG)传感器放置于参与研究的上肢目标肌肉上。本实验中,记录的是右侧胸大肌锁骨部的肌电信号,该肌肉在跨身体(向左)伸手动作中被募集。
注意:也可记录上肢其他肌肉,或胸大肌胸骨部及外侧部的肌电信号。- 通过要求受试者执行已知可募集目标肌肉的动作来观察该肌肉。对于胸大肌锁骨部,可让受试者双肘自然垂于体侧,并将掌心相互推压。若难以观察目标肌肉,可在受试者重复执行该动作时触诊目标区域,并选择肌肉形态变化明显的部位作为电极放置位置。
注意:此处“观察”指通过受试者执行募集该肌肉的动作时,透过皮肤观察肌肉的轮廓变化,以识别目标肌肉。此方法有助于准确定位目标肌肉。 - 使用酒精棉片清洁目标肌肉表面将要放置电极的皮肤区域,以及接地电极将要放置的部位。
- 为表面传感器安装粘合剂并涂抹电极凝胶。
- 让受试者再次执行与目标肌肉募集相关的动作,将传感器贴附于肌肉肌腹处,并使其方向与目标肌肉纤维走向平行。将接地电极置于与伸手手臂对侧的锁骨上。使用医用胶带将传感器和接地电极固定于周围皮肤。开启肌电系统,以便在整个实验过程中持续采集肌电信号。
注意:肌电电极放置后,肌电信号将通过肌电系统被动且连续地采集,并以模拟数据流形式保存,供后续分析使用。 - 通过连接至肌电系统的台式显示器或示波器检查肌电信号质量。为评估信号质量,让受试者执行朝向或背离目标肌肉偏好方向的伸手动作,确认肌电活动相应增强或减弱。若静息状态下无活动,则应确保在非偏好方向运动时肌电活动不增加。
注意:表面电极采集的肌电信号质量受多种因素影响(如个体脂肪组织分布、受试者姿势等)。建议在偏好(收缩)方向运动时,肌电活动峰值至少为静息水平的2倍,但理想情况下应显著更高。 - 如有必要,调整电极位置以确保达到上述活动水平。实验全程保持显示器或示波器连接,以持续监测肌电输出。
- 通过要求受试者执行已知可募集目标肌肉的动作来观察该肌肉。对于胸大肌锁骨部,可让受试者双肘自然垂于体侧,并将掌心相互推压。若难以观察目标肌肉,可在受试者重复执行该动作时触诊目标区域,并选择肌肉形态变化明显的部位作为电极放置位置。
- 将已安装肌电传感器的受试者安置于机器人辅助伸手装置中,该装置允许在水平面内进行伸手运动,并可对操纵杆施加力。
注意:对目标肌肉施加对抗力可增加背景肌电活动,从而使短潜伏期反应(SLR)在刺激呈现后表现为肌肉在偏好方向或非偏好方向活动的增强或减弱。在非偏好方向,基础活动水平尤为重要,因为若无背景负荷力,基础活动与非偏好方向伸手活动将难以区分。在整个实验过程中施加5N向右和2N向下的力(相对于起始位置,目标向左呈现)通常已足够。实验过程中力应保持恒定,必要时可使用较低的力值。- 让受试者坐在实验椅上,优先考虑其在肢体承受额外外力时的舒适度,以尽量减少实验过程中姿势的改变。
2. 刺激材料构建/实验装置
- 使用内置视觉显示的机器人到达装置生成所有实验程序和刺激。
注意:确保机器人到达装置配备有视觉输出与操纵杆电机输出之间的接口,能够同时进行模拟信号(例如,操纵杆位置、光电二极管输出)和肌电图(EMG)记录。确保该装置配备有能够运行包含所有预设视觉组件的单个预编程试验区块的软件。内置视觉显示器可以是标准显示器或定制的高质量投影仪;但建议使用更高品质的投影仪,以确保所显示目标的时间和视觉分辨率。- 通过驱动视觉显示器的内置软件生成新兴目标范式(见补充图1)的四个主要组成部分。
注意:所有组成部分均应通过内置软件生成,并在每次数据采集过程中投射到视觉显示器上。每个组成部分需手动输入软件中,软件会将形状的输入坐标转换为视觉显示器上可见的图形。在数据采集前需完成对所有组成部分及目标运动的完整编码,因此在数据采集过程中无需实验者干预范式运行,范式将根据参与者的反应自动执行。以下坐标(以厘米为单位)是相对于本研究中用于采集参与者数据的机器人到达装置中两个操纵杆原点中点的位置。在每次试验过程中,范式的所有组成部分对参与者均可见,起始位置除外,该位置在移动目标出现后即消失。不同装置可能采用不同的参考坐标系。- 通过手动输入六个矩形的坐标生成倒Y形路径,其坐标如下(y:-19(倒Y顶部)或-34(倒Y底部),x:-/+2(内侧底部倒Y),-/+8(外侧底部倒Y);宽度0.5,高度:20(顶部)或15(底部))。
- 通过手动输入一个大矩形的坐标生成遮挡物(中心位置:0, -29;宽度:35,高度:15),覆盖在倒Y路径的中心区域。该遮挡物的颜色可在不同试验间变化,用以向参与者提供指令。
注意:遮挡物在底部中心两个出口之间有一个缺口(0, -29;宽度:5,高度:5)。参与者被指示:“当目标位于遮挡物后方时,注视该缺口。”这样做可确保在目标出现时眼睛处于稳定状态。每个试验开始时,遮挡物将显示为红色或绿色。 - 通过手动输入一个圆形的坐标生成移动目标,该圆形将沿倒Y路径向下移动并进入遮挡物后方(起始位置:0, -17;半径:1;速度:10 cm/s,遮挡物后方速度:30 cm/s)。
注意:移动目标(T1)在每个试验开始时可见且静止。 - 通过指定目标运动的x和y坐标,在软件中定义目标的移动方式。
注意:目标速度由连续x和y坐标之间的距离计算得出。目标运动的正确呈现依赖于软件和视觉显示器能否快速连续地更新每个x和y位置。在软件中,当目标的x和y位置完全移至遮挡物下方时,将其状态更改为“对参与者不可见”,直至其x和y位置完全从遮挡物中重新出现。 - 生成起始位置(0, -42;半径1)。参与者需将手移动至该位置以启动每次试验。
- 在屏幕上实时生成代表参与者手部位置的实时光标(RTC)。
注意:实验过程中,参与者的上肢通过一个向上倾斜的镜子被遮挡,该镜子反射向下呈现的目标。此功能可通过装置特有的内置软件实现,即在持续更新的手部x和y坐标上方放置一个目标图像。
- 通过驱动视觉显示器的内置软件生成新兴目标范式(见补充图1)的四个主要组成部分。
3. 实验步骤
- 点击实验者屏幕上相关软件的“开始”按钮,以启动第一次试验,并使机器人伸手装置对受试者的上肢施加作用力。
注意:实验者点击开始后,直到各区块之间需要再次点击“开始”前,无需进一步干预。如果持续监测的肌电(EMG)信号发生变化,或受试者无法完成实验,则可能需要实验者介入。一旦发生紧急情况,应立即停止所有实验。当受试者松开手柄时,内置任务程序会自动停止施加在受试者手部的力。建议使用配备紧急情况下可终止实验按钮的设备。- 口头指示受试者通过将实时光标(RTC,由操纵杆位置指示)移至起始位置(T0)来开始第一次试验,停留时间为1–1.5秒不等。遮挡器颜色变化用于提示受试者即将进行的是顺向伸手(pro-reach)或反向伸手(anti-reach)任务。
注意:将RTC移入T0位置即启动每次试验。如果受试者在规定时间之前离开T0起始位置,则当RTC重新回到T0时,试验将重新开始。 - 确保移动目标(T1)原本静止且可见,位于倒Y形路径顶端(2.1.1.3),在受试者将RTC移入T0后,T1开始沿倒Y形路径向受试者方向移动。
注意:T1开始移动后,T0即消失。此后对受试者手臂无任何限制,但仍应指导其保持在假想的T0范围内。 - 确保T1移至遮挡器后方,对受试者不可见。在此期间,受试者需保持手部位于假想的T0位置。
- 确保T1以30 cm/s的恒定速度沿Y轴方向在遮挡器后方向受试者移动。当T1到达遮挡器长度一半时,沿倒Y形路径之一分叉,并增加一个X轴方向的速度分量,从而保持Y轴方向速度不变。目标消失一段固定延迟时间约0.5秒,该延迟取决于遮挡器尺寸和T1移动速度。
- 当T1到达最靠近受试者的遮挡器边缘时,应确认软件程序不会通过让T1从遮挡器边缘滑出的方式呈现目标,因为这会向视觉系统最初呈现一个“半月形”刺激。相反,应检查软件是否在目标完全露出前保持其不可见,然后才向受试者呈现。
注意:此设计旨在控制部分刺激引起的视觉处理效应,尤其是在使用不同速度目标时,这些目标穿越边界的时间不同。部分出现的目标(如半月形刺激)最初包含较高空间频率成分,根据先前研究结果,这会导致短潜伏期反应(SLR)潜伏期延长和幅度降低10。 - 检查软件是否在受试者手部仍静止于T0时,将T1随机呈现于两个倒Y路径中的一侧。
注意:T1从遮挡器下方出现的同时,屏幕角落会呈现一个次级目标,该位置被光电二极管覆盖。此目标对受试者不可见,但可向集成在机器人伸手装置中的光电二极管提供模拟信号。该光电二极管信号可精确对齐目标出现时间与肌肉活动,确保机器人伸手装置中无滞后或延迟。 - 当T1从遮挡器后方出现时,观察受试者是否能根据遮挡器颜色产生视觉引导的伸手动作。当遮挡器为绿色时,要求受试者用RTC拦截T1;当遮挡器为红色时,要求受试者将RTC移离T1。
注意:绿色遮挡器颜色(2.1.1.2)表示顺向伸手(即朝向遮挡器方向),红色则表示远离移动目标T1(即反向伸手)。在反向伸手条件下,正确拦截并非基于T1的镜像位置,而是相对于T0的水平距离。 - 根据受试者的伸手行为,在试次间期提供反馈,反馈类型包括“命中”(正确拦截)、“错误方向”(顺向/反向伸手方向错误)或“未命中”(未检测到正确或错误反应)。该反馈以文字形式显示在遮挡器上。
- 确保在受试者完成伸手动作后200毫秒,T1和T0在其原始位置重新出现。当受试者将RTC移回T0时,开始下一次试验。
- 口头指示受试者通过将实时光标(RTC,由操纵杆位置指示)移至起始位置(T0)来开始第一次试验,停留时间为1–1.5秒不等。遮挡器颜色变化用于提示受试者即将进行的是顺向伸手(pro-reach)或反向伸手(anti-reach)任务。
- 要求每位受试者完成4个区块,每个区块100次试验,每个条件共完成100次伸手动作。将顺向伸手与反向伸手的试次类型随机混合,左右刺激交替呈现。每个区块大约需要7.5分钟完成。
注意:建议在使用表面记录时,每个条件至少重复约80次,因为后续分析步骤依赖大量试次的数据以检测短潜伏期反应(SLR)。- 尽量减少每个区块之间的受试者移动,以确保记录的一致性。在口头确认受试者准备好开始下一个区块后,启动下一区块,并持续监控受试者表现和EMG输出。
注意:实验者可能需要通过桌面显示器持续监控EMG输出,以检测表面EMG记录中的问题。例如,在长时间伸手运动过程中,由于出汗,表面EMG电极可能会从受试者皮肤上脱落。
- 尽量减少每个区块之间的受试者移动,以确保记录的一致性。在口头确认受试者准备好开始下一个区块后,启动下一区块,并持续监控受试者表现和EMG输出。
- 采集控制静态范式的数据,以便与移动目标出现范式所获得的数据进行比较。
注意:该控制范式可在移动目标出现范式之前或之后进行。为建立控制静态范式,请重复步骤2.1.1.3、2.1.1.5、2.2、3.1、3.1.1、3.1.7、3.2和3.2.1;但在步骤2.1.1.3中,不要编写T1从屏幕顶部开始并向受试者移动的程序。相反,将T1设置为直接出现在T0的左侧或右侧。此外,此时T0本身应为红色或绿色,类似于移动目标出现范式中使用的遮挡器。试验流程如下所述。- 口头指示受试者将RTC移入T0以启动第一次试验,T0位置与移动目标出现范式中的位置相同。
- 确保软件程序将T0显示为红色或绿色,分别表示反向或顺向伸手任务。随机设置1–2秒的保持期,要求受试者在此期间将RTC保持在T0位置。
- 确保软件程序在T0左侧或右侧10 cm处呈现一个静止目标。目标侧别在各试次间随机化。
- 与移动目标出现范式相同,若T0为绿色,则要求受试者朝目标伸手;若T0为红色,则要求受试者朝与目标完全相反的方向伸手。接触目标或反目标位置后,进入下一次试验。
- 确保每位受试者完成4个区块,每个区块100次试验,每个条件共100次伸手动作。试次类型随机混合。
4. 分析
- 使用离线自定义脚本分析所有数据,并剔除错误试验。
注意:错误试验的定义包括错误的伸手方向(3.5 cm)、过长的反应时间(RT)(>500 ms),提示可能注意力不集中,或过短的反应时间(<120 ms),提示存在预判行为。- 通过确定运动切向速度超过峰值的8%的时间点,计算每次试验伸手运动的反应时间(RT)。
注意:也可采用其他方法定义反应时间。 - 为分析肌肉活动,使用离线脚本将肌电图(EMG)信号转换为源微伏值,去除任何直流偏移,对EMG信号进行整流,并使用7点移动平均滤波器对信号进行滤波。
- 采用时间序列受试者工作特征(ROC)分析,检测短潜伏期反应(SLR)6,7的存在及其潜伏期。
注意:也可采用其他方法确定SLR活动的时间锁定特性。- 执行时间序列ROC分析时,根据目标呈现侧和试验条件对EMG数据进行分类(图1a显示了朝向伸手任务中左侧与右侧的数据)。
- 计算在目标呈现前100 ms至目标呈现后300 ms范围内,每个时间点(1 ms)两个数据群体的ROC曲线下面积(例如,图2c)。
注意:ROC值为0.5表示分辨能力处于随机水平,而值为1或0则分别表示相对于目标呈现的完全正确或完全错误的分辨。 - 将连续10个时间点中最早出现8个点超过0.6阈值的时间点定义为分辨潜伏期(图2c中由垂直红色或蓝色线指示)。
注意:阈值及超过阈值的点数可根据表面或肌内EMG记录的质量和数量进行调整,也可使用自助法分析客观确定置信区间。以往研究表明,0.6的阈值大约对应于95%的置信区间12。
- 为确定朝向伸手试验中是否存在SLR,采用基于反应时间的分半分析法(见图18),即根据反应时间将试验分为早期和晚期两组,并分别对这两组数据执行步骤4.1.3.2和4.1.3.3(图1a中的紫色试验和绿色试验)。
- 将早期分辨时间与平均早期反应时间作为一个数据点绘出,再将晚期分辨时间与平均晚期反应时间作为第二个数据点在同一图中绘出,并用直线连接这两个点(图1c)。当该直线斜率超过67.5˚时,判定存在SLR。
注意:在此图中,90˚的斜率表示EMG分辨时间与刺激呈现完全锁定(即EMG活动以相同的潜伏期启动,不受后续运动时间影响),而45˚的斜率表示EMG分辨时间与运动起始完全锁定。实际应用中,通常采用67.5˚(介于45˚与90˚之间)作为判断SLR是否存在的临界值:斜率 > 67.5˚ 表示存在SLR,斜率 < 67.5˚ 表示不存在SLR;该标准表明EMG活动更倾向于与刺激呈现而非运动起始时间锁定。
- 将早期分辨时间与平均早期反应时间作为一个数据点绘出,再将晚期分辨时间与平均晚期反应时间作为第二个数据点在同一图中绘出,并用直线连接这两个点(图1c)。当该直线斜率超过67.5˚时,判定存在SLR。
- 若确定存在SLR,则将所有试验的分辨潜伏期定义为SLR潜伏期(见步骤4.1.3.3)。
- 将SLR幅度定义为从SLR潜伏期至分辨潜伏期后30 ms期间,左右侧平均EMG轨迹之间的差值(例如,图2c中深红色与浅红色轨迹,或深蓝色与浅蓝色轨迹之间的差异)。
注意:幅度的时间范围可根据需要延长或缩短。
- 通过确定运动切向速度超过峰值的8%的时间点,计算每次试验伸手运动的反应时间(RT)。
结果
刺激锁定反应(SLR)是一类短暂的肌肉活动爆发,其时间与刺激 onset 相锁定,且出现在与运动 onset 相关的大规模肌肉募集之前。由于SLR具有时间锁定特性,在按反应时间(RT)排序的所有试验中,可在约100 ms处观察到呈“条带状”分布的肌肉活动(图1a,由灰色方框标示)。如图1a所示,SLR依赖于目标位置,右侧胸大肌的SLR表现为:当目标向左或向右呈现时,肌肉募集相应增加或减少。通过RT分割分析(方法4.1.4)检测SLR,即对早期和晚期RT试验分别进行时间序列ROC分析(图1b—紫色与绿色对比)。该分析用于判断肌电(EMG) onset 是否相对于刺激或运动 onset 保持不变,其依据是连接早期与晚期判别时间的直线斜率,该斜率以RT为函数作图得出(图1c)。以往使用静态刺激研究SLR的文献报道,在所有受试者中的检测率低于70%8,9。本研究进一步比较了新兴目标范式在诱发SLR方面的有效性与使用静态目标范式所获得效果的差异。
在新兴目标范式中(补充图1),受试者朝出现并移动的目标伸手,而非静止的目标。图2展示了两名受试者朝静止目标(第一和第三行)或从遮挡物下方出现的移动目标(第二和第四行)伸手时的数据。受试者1在静态范式中未表现出短潜伏期反应(SLR),但在新兴目标范式中表现出明显的SLR;在单次试验的活动图中(图2a),SLR表现为刺激开始后约100 ms处的一条垂直活动带,该现象仅出现在新兴目标范式中,而未出现在静态范式中。SLR在受试者1的平均肌电图(EMG)轨迹中也可见(图2b),仅在新兴目标范式中出现,而在静态范式中未见(图2b前两行中的红色轨迹)。受试者1提供了一个实例:该个体在以往文献中使用的静态范式下不表现出SLR,但在新兴目标范式下却表现出SLR。相比之下,受试者2在静态和新兴目标范式中均表现出SLR,但其在新兴目标范式中的SLR幅度明显更大,接近运动起始前达到的幅度。
我们在全样本范围内比较了在出现目标范式与静态目标范式下观察到的短潜伏期反应(SLR)特性,分析了在指向性伸手条件(pro-reach condition)下采集的数据。如图3a(绿色线条)所示,并与图2中的代表性结果一致,在出现目标范式下,SLR幅度显著大于静态目标范式,刺激起始后80–120 ms时间窗口内的募集幅度平均增加了五倍。与SLR幅度的这种系统性变化相反,在静态目标与出现目标范式之间,所检测到的SLR潜伏期并无差异(图3a,紫色线条)。如图3b(蓝色柱状图)所示,在出现目标范式中,所有五名参与者均检测到了SLR(即检出率为100%),而在静态目标范式中仅在三名参与者中检测到SLR(即检出率为60%,与先前报道8,9相似)。考虑到本研究依赖的是非侵入性表面肌电(EMG)记录,而在以往报道中通常采用侵入性肌内EMG记录,因此在出现目标范式下所有参与者均观察到SLR的结果尤为显著。重要的是,尽管在出现目标范式下的伸手反应时(reach RTs)通常明显短于静态目标范式(图3b,黑色线条),但SLR在出现目标范式中的出现并非仅仅由于反应时加快所致。例如,图2中参与者1的数据显示,在伸手反应时范围重叠的情况下,出现目标范式中存在明显的SLR,而静态目标范式中则无。最后,我们还探讨了“远离出现目标移动”的指令如何影响SLR。与先前在静态目标下所发现的结果一致9,在反向伸手条件(anti-reach condition)下,SLR幅度较指向性伸手条件明显减弱(图3c,蓝色线条;另见图2和图4中的平均EMG轨迹)。这表明,出现目标范式可用于研究认知控制的某些方面,本例中即涉及对“朝向或远离出现目标移动”这一指令的整合过程。
我们在图4中展示了来自全部五名参与者的记录数据,以说明在指向与反向抓取条件下,静态目标与出现目标范式中记录到的短潜伏期反应(SLR)特征的变异性(图4中的灰色框表示SLR时间区间)。与参与者1(见图2的前两行)类似,参与者5在指向条件下的出现目标范式中也表现出SLR,但在静态目标范式中未观察到SLR。与参与者2(见图2的后两行)类似,参与者3和4在指向条件下的出现目标范式中也表现出明显更强的SLR,相较于静态目标范式。在图4所示数据中,还有两个特征值得强调。首先,在参与者3、4和5中,我们在出现目标任务的反向抓取变式中观察到更强的SLR,其时间序列ROC值在降至接近0之前峰值超过0.6。在反向抓取条件下朝向刺激出现SLR的现象此前已有报道9,我们已将其与在线校正任务反向变式中手部短暂朝向刺激的运动联系起来3。其次,在出现目标任务的指向条件下,部分参与者(例如参与者1、3和5)中观察到SLR与随后的运动对齐活动之间存在明显分离(可见时间序列ROC在SLR区间达到峰值后短暂下降),但在其他参与者(例如参与者2和4)中,SLR与运动对齐活动则呈现融合趋势。如下文所述,这与SLR检测算法的设计相关。
总体而言,新兴的目标范式在诱发SLR和缩短反应时(RT)方面比使用静态目标的范式更为有效。这一点体现在与静态目标相比,SLR的发生率、幅度均有所提高,且反应时潜伏期更短。
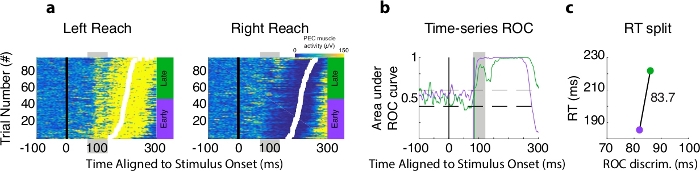
图1:短潜伏期反应(SLR)检测。 来自一名代表性受试者的SLR示例,展示了SLR的检测标准。(a) 在“准备伸手”条件下,右侧胸大肌对右侧或左侧伸手动作的逐次试验募集情况。每一行为一次独立试验。颜色强度表示肌电信号(EMG)活动的幅度。试验按伸手反应时间(白色方框)排序,并以刺激开始时刻对齐(黑线)。SLR表现为由灰色方框标示的垂直条带状活动;注意在向左或向右刺激呈现后,EMG活动分别在约90 ms时程上增强或减弱(时间锁定)。紫色或绿色条表示分别用于构建早期或晚期反应时间组的试验。(b) 时间序列ROC分析,显示(a)中早期(紫色)和晚期(绿色)试验组EMG判别显著的时间点。(c) 对早期(紫色)和晚期(绿色)组,将平均反应时间绘制成ROC判别时间的函数。连接这两个点的直线斜率为83.7˚,表明EMG活动更倾向于与刺激呈现时间对齐,而非运动起始时间。 请点击此处查看此图的放大版本。
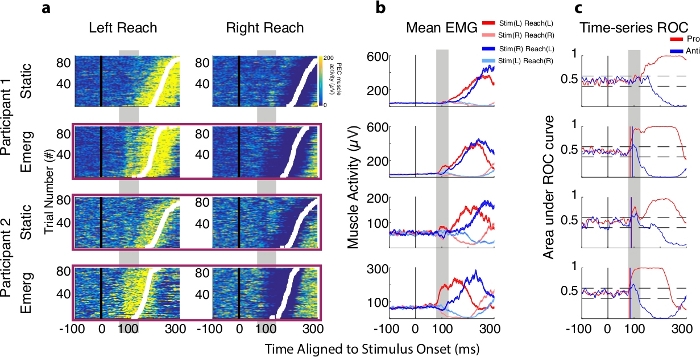
图2:代表性结果。 来自参与者1和2的数据,显示在静态条件下(1)SLRs出现或缺失的变异性st 和 3rd 行),以及在新兴目标范式中SLR出现的一致性(2nd 和 4th 行)。(a) 这些参与者右侧胸大肌的逐次试验招募情况(格式同图1a)。表现出SLR的条件以紫色标出(2nd, 3rd 和 4th 行)。b) EMG 活动的均值 ± 标准误,分别针对同向(红色)和反向(蓝色)运动,按刺激呈现侧进行区分(非偏好方向的运动使用较浅的轨迹)。c) (b) 中所示的促通(红色)和抗通(蓝色)到达的时间序列 ROC 分析。SLR 时期以灰色方框标出;水平虚线位于 0.4 和 0.6 处。垂直的彩色线条(若在促通条件下存在)表示促通(红色)或抗通(蓝色)到达试验的辨别时间。 请点击此处以查看此图的放大版本。
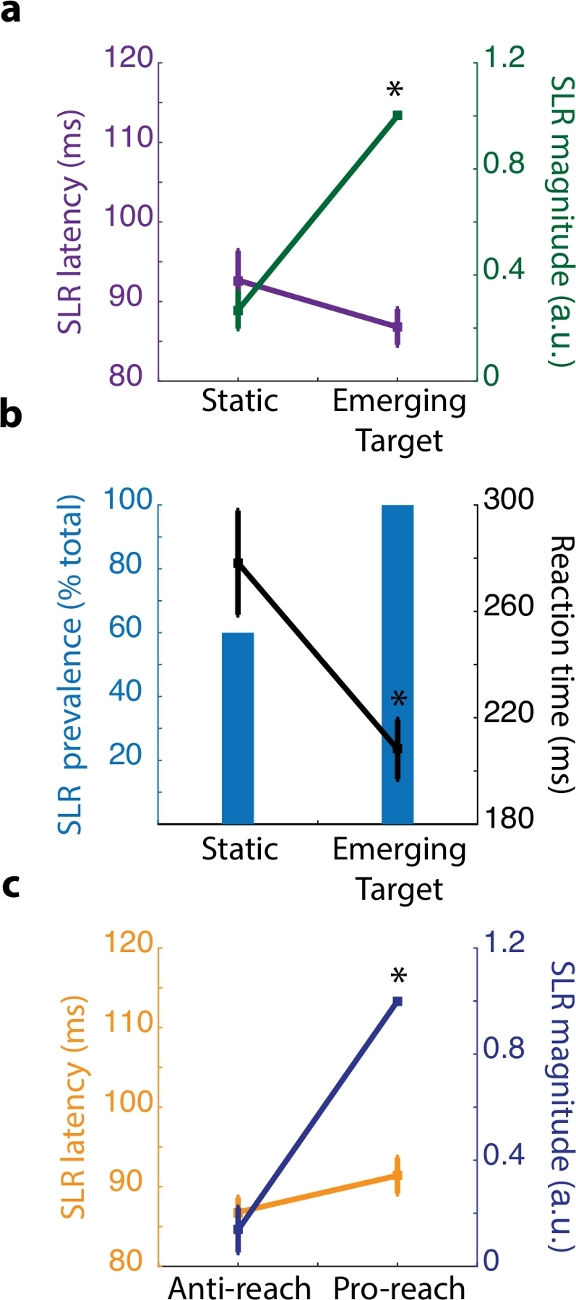
图3:新兴目标范式对SLR特征及伸手反应时的影响。(a)在静态与新兴目标范式下,执行伸手动作时的SLR潜伏期(紫色)和幅度(绿色)。潜伏期定义为连续10个数据点中最早有8个超过ROC阈值0.6的时间点(见方法部分)。SLR幅度定义为在SLR判别后30 ms内,左侧与右侧试验中平均肌电活动的积分面积。所有幅度值均相对于参与者在各条件下的最大值进行归一化处理(例如,数值1表示最大反应)。(b)SLR发生率与伸手反应时。(c)在新兴目标范式下,执行正向伸手(pro-reach)与反向伸手(anti-reach)时的SLR幅度和潜伏期结果。*表示基于非配对t检验,与静态条件或反向条件相比,p<.05,差异具有统计学意义。请点击此处查看该图的放大版本。
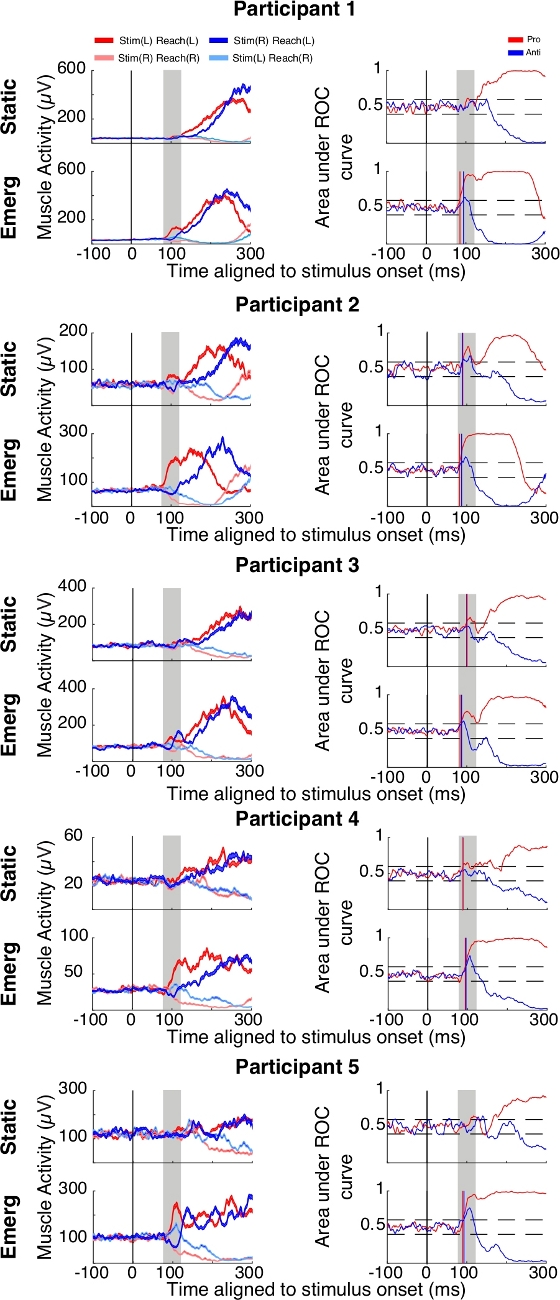
图 4:所有参与者的平均肌电图(EMG)和时间序列ROC分析。左列图示:按刺激呈现侧分离的朝向(红色)和反向(蓝色)运动的EMG活动均值 ± 标准误(SE),较浅色轨迹表示非偏好方向的运动。右列图示:朝向(红色)和反向(蓝色)运动的时间序列ROC分析(如左列图所示)。SLR时段以灰色方框标出;水平虚线位于0.4和0.6处。垂直彩色线(若在朝向条件下存在)表示朝向(红色)或反向(蓝色)运动试验的辨别时间。请点击此处查看该图的放大版本。
补充图1:机器人伸手装置中任务的俯视图。 左下角的大白点代表光电二极管。白色目标(T1)正从倒置的“y”形路径中向左移出。T1右侧的白点表示在视觉引导下进行伸手运动的实时光标(RTC)。此处遮挡物显示为绿色,表示需要执行前瞻性的伸手动作。T0未显示,因其与目标出现时同时消失。 请点击此处下载该图。
讨论
人类在需要时能够产生快速的视觉引导动作,其反应潜伏期接近传入和传出神经传导延迟的最小值。我们此前已将上肢的刺激锁定反应(SLR)描述为一种评估快速视觉运动反应的新指标6,9,10。尽管SLR在逐次试验中可作为视觉刺激影响上肢肌肉募集初始阶段的有效基准,但并非所有受试者都能表现出该反应,且其检测常依赖于侵入性的肌内记录。本文介绍了一种新兴目标范式(补充文件1),并将其结果与静态目标范式下的结果进行了比较。新兴目标范式的优点在个体参与者中尤为明显:在静态范式中未表现出SLR的参与者,在新兴目标范式中却能表现出明显的SLR(例如,图2,参与者1—第1行与第2行对比)。此外,新兴目标范式中出现的SLR幅度远大于其他范式,有时甚至达到与自主运动相当的水平(图2,参与者2;图4,参与者5)。因此,与使用静态目标的范式相比,该范式在增强SLR幅度(图3a)、提高SLR的可检测性(图3b)以及使伸手反应时间缩短约50 ms(图3b)方面均表现出显著效果。新兴目标范式相较于需要飞行中修正的范式也具有优势4,后者是在伸手运动已进行到中途时呈现新刺激。在实验中,当前手部位置的视觉反馈单独或与目标位置变化共同发生改变时,也可能引发正在进行的运动的肌电(EMG)或动力学变化13。尽管这类范式常用于研究快速视觉运动反应,但在这些情况下,由新刺激引发的EMG、动力学和/或运动学活动是叠加在原有运动相关活动之上的。相比之下,在新兴目标范式中,由于刺激出现时参与者仍处于稳定的姿势状态,因此SLR易于识别,即使在单次试验水平上也能清晰分辨。
新兴目标范式的三个最关键方面是:障碍物后隐含运动的运用(3.1.3)、目标出现时间的确定性(3.1.4),以及目标从遮挡物后完全显现(3.1.5)。在这三个方面中,我们推测隐含运动的运用最为重要。隐含运动可在背侧视觉通路的运动相关脑区产生强烈的神经信号,这些信号与可见运动目标所引发的信号无法区分14。我们推测,当隐含运动与障碍物下方目标的突然出现相结合时,所产生的视觉瞬变信号比静态目标范式更强。我们在实施新兴目标范式时,还确保了试次间目标重现时间的高度可预测性。目标在障碍物后的消失与随后的再现,可能类似于中央注视或保持刺激偏移与外周目标呈现之间的“间隙间隔”,这种间隔同样可加快伸手反应时间15,并促进快眼动(express saccades)的发生16,而快眼动是另一种快速视觉运动反应。最后,重要的是目标应从障碍物后完整地出现,而不是以滑动方式逐渐显现。如果目标滑过障碍物,视觉系统最早接收到的刺激将是一个“半月形”刺激,缺乏已知可促进肢体短潜伏期反应(SLRs)更早且更强表达的低空间频率成分10。除了这些关键步骤外,还应将新兴目标的出口位置设置在与所研究肌肉的偏好或非偏好方向相关的位置。引入背景加载力以增强目标肌肉的活动,也有助于检测肢体短潜伏期反应。
在故障排查方面,必须确保每次试验中目标出现的时间是已知的,因为肢体短潜伏期反应(SLR)的潜伏期很短。这一点对于数字显示器尤其重要,因为此类显示器可能在刺激呈现时间上系统性地引入可变延迟,从而影响肌肉活动与关键事件之间的时间精确对齐。在实施任何目标出现实验之前,无论使用何种类型的视觉显示器,我们都建议使用多个光电二极管记录刺激在屏幕多个位置出现的时间(例如,在3.1.6中提到的不可见位置,以及T1将要出现的位置)。如果这两个位置之间刺激出现的时间间隔在各次试验中保持恒定,则在实际实验中,可通过校正T1可能出现的不同位置所特有的延迟,将不可见位置的光电二极管信号作为T1出现的替代指标。我们还建议在实验过程中密切进行EMG活动的实时监测,以观察目标出现前背景EMG活动是否发生变化,或监测与朝向或偏离肌肉偏好运动方向的运动相关的EMG活动变化。
新兴目标范式存在多种可能的修改方式,这些修改有助于进一步理解影响快速视觉运动系统的感官、认知和运动相关因素。在本研究中,我们指导受试者准备朝向(即促进入手运动)或远离(即反向伸手运动)新兴目标进行运动。与先前研究结果9的预期一致,该指令的巩固使受试者能够在不改变短潜伏期反应(SLR)出现时间的情况下降低其反应幅度。这表明,介导SLR的神经中枢可在目标出现之前,由高级脑区通过建立任务设定进行预先调节。该任务还可从多个其他维度进行修改以操控认知因素,例如通过改变目标出现时间的可预测性(即让目标出现的时间更难预测)或空间位置的可预测性(即偏向使目标从某一侧出现,或提供内源性线索提示目标将出现的一侧)。对新兴目标感官参数的操控(例如新兴刺激的速度、对比度、大小或颜色,或是否存在竞争性干扰刺激)也将有助于揭示其潜在的神经机制。在屏障下方呈现一个静态而非移动的目标,也有助于区分目标运动与时间可预测性对肢体短潜伏期反应(SLR)强度的影响。最后,从运动角度而言,新兴目标范式可扩展至双侧伸手运动;而上肢肌肉中稳健SLR的存在,为进一步探究此类信号在躯干或其他肢体肌肉中的分布提供了可能。
这一范式存在一个可能看似矛盾的局限性,即伸手反应时(reach RT)被显著缩短的程度。我们的短潜伏期反应(SLR)检测标准类似于先前研究中所采用的方法12,即分别对反应时短于或长于中位数的两组进行独立的时间序列ROC分析。这种方法要求伸手反应时具有一定程度的变异性;而实际中我们发现,在目标出现范式中,伸手反应时比静态范式更短且变异性更小(静态范式:279 ± 58 ms;目标出现范式:207 ± 34 ms)。事实上,反应时有时缩短至运动相关的EMG活动波列常常与SLR时间窗口重叠。因此,时间序列ROC曲线常直接从接近0.5的值迅速上升至接近1.0,而未表现出在SLR之后短暂下降的特征——而该特征在参考文献8中是SLR检测所必需的(见图4,参与者1、2、4、5)。更重要的是,反应时变异性较小不利于斜率的检测(图1c);反应时缺乏变异性可能导致可检测到的SLR水平降低。我们预计,SLR的检测标准仍将持续发展,并可能需要根据具体实验任务的特点进行优化。其他任务设计的调整方式——例如增加目标重现的时间不确定性,或要求受试者在目标出现后等待短暂时间再行动(例如,等待已出现的目标改变颜色)——可能有助于提高伸手反应时的均值和变异性,从而将SLR期间的神经募集活动与运动起始相关的活动区分开来。第二个尚未被探讨的局限性在于,部分参与者在目标出现范式中可能并不表现出SLR。我们认识到本研究的样本量较小,未来的研究应在更大规模人群中应用目标出现范式。
总之,与使用静态目标的范式相比,新兴目标范式为诱发上肢短潜伏期反应(SLR)提供了一种更为可靠的技术。新兴目标范式框架将通过实现上肢SLR的稳健表达,推动对快速视觉运动反应的研究。尤其值得注意的是,本文报告的所有结果均通过表面记录获得,这使得对那些不太适合进行肌内记录的人群(如儿童、老年人或体弱者)开展SLR研究成为可能。我们还预计,新兴目标范式可拓展至非人灵长类动物研究,并可结合神经生理学技术以探索潜在的神经基础。结合未来在人类中快速探索该任务多种感觉、认知和运动维度的研究,新兴目标范式有望促进对快速视觉运动系统的假设驱动型探索。
披露
作者无任何利益冲突需要披露。
致谢
本研究工作获得了加拿大自然科学与工程研究理事会(NSERC;RGPIN 311680)向 BDC 提供的发现基金,以及加拿大卫生研究院(CIHR;MOP-93796)向 BDC 提供的运行基金支持。RAK 获得了安大略省研究生奖学金的支持,ALC 获得了 NSERC CREATE 基金的支持。本论文中所描述的实验装置得到了加拿大创新基金会的支持。额外支持来自加拿大卓越研究基金(BrainsCAN)。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| Bagnoli-8 台式表面肌电系统 | Delsys Inc. | 可使用其他到达装置 | |
| Kinarm 末端点机器人 | Kinarm, Kingston, Ontario, Canada | 可使用其他到达装置 | |
| MATLAB(版本 R2016a)Stateflow 和 Simulink 应用程序 | The MathWorks, Inc., Natick, Massachusetts, United States | ||
| PROPixx 投影仪 | VPIXX Saint-Bruno, QC, Canada | 这是为 Kinarm 定制的附加组件。可使用其他显示设备。分辨率:1920 x 1080。也可使用标准观察显示器。 |
参考文献
- Veerman, M. M., Brenner, E., Smeets, J. B. J. The latency for correcting a movement depends on the visual attribute that defines the target. Experimental Brain Research. 187 (2), 219-228 (2008).
- Soechting, J. F., Lacquaniti, F. Modification of trajectory of a pointing movement in response to a change in target location. Journal of Neurophysiology. 49 (2), 548-564 (1983).
- Day, B. L., Lyon, I. N. Voluntary modification of automatic arm movements evoked by motion of a visual target. Experimental Brain Research. 130 (2), 159-168 (2000).
- Gaveau, V., et al. Automatic online control of motor adjustments in reaching and grasping. Neuropsychologia. 55 (1), 25-40 (2014).
- Day, B. L., Brown, P. Evidence for subcortical involvement in the visual control of human reaching. Brain A Journal of Neurology. 124, Pt 9 1832-1840 (2001).
- Pruszynski, A. J., et al. Stimulus-locked responses on human arm muscles reveal a rapid neural pathway linking visual input to arm motor output. European Journal of Neuroscience. 32 (6), 1049-1057 (2010).
- Corneil, B. D., Olivier, E., Munoz, D. P. Visual responses on neck muscles reveal selective gating that prevents express saccades. Neuron. 42 (5), 831-841 (2004).
- Wood, D. K., Gu, C., Corneil, B. D., Gribble, P. L., Goodale, M. A. Transient visual responses reset the phase of low-frequency oscillations in the skeletomotor periphery. European Journal of Neuroscience. 42 (3), 1919-1932 (2015).
- Gu, C., Wood, D. K., Gribble, P. L., Corneil, B. D. A Trial-by-Trial Window into Sensorimotor Transformations in the Human Motor Periphery. Journal of Neuroscience. 36 (31), 8273-8282 (2016).
- Kozak, R. A., Kreyenmeier, P., Gu, C., Johnston, K., Corneil, B. D. Stimulus-locked responses on human upper limb muscles and corrective reaches are preferentially evoked by low spatial frequencies. eNeuro. 6 (5), (2019).
- Kowler, E. Cognitive expectations, not habits, control anticipatory smooth oculomotor pursuit. Vision Research. 29 (9), 1049-1057 (1989).
- Goonetilleke, S. C., et al. Cross-species comparison of anticipatory and stimulus-driven neck muscle activity well before saccadic gaze shifts in humans and nonhuman primates. Journal of Neurophysiology. 114 (2), 902-913 (2015).
- Franklin, D. W., Reichenbach, A., Franklin, S., Diedrichsen, J. Temporal evolution of spatial computations for visuomotor control. Journal of Neuroscience. 36 (8), 2329-2341 (2016).
- Krekelberg, B., Vatakis, A., Kourtzi, Z. Implied motion from form in the human visual cortex. Journal of Neurophysiology. 94 (6), 4373-4386 (2005).
- Gribble, P. L., Everling, S., Ford, K., Mattar, A. Hand-eye coordination for rapid pointing movements: Arm movement direction and distance are specified prior to saccade onset. Experimental Brain Research. 145 (3), 372-382 (2002).
- Paré, M., Munoz, D. P. Saccadic reaction time in the monkey: advanced preparation of oculomotor programs is primarily responsible for express saccade occurrence. Journal of Neurophysiology. 76 (6), 3666-3681 (1996).
重印与许可
