为了在组学研究中使用秀丽隐杆线虫(Caenorhabditis elegans,C. elegans),需要一种能够培养大量线虫种群的方法,以便在同一份样品上进行多种平台的检测,实现比较分析。本文介绍了一种在大规模培养板(LSCPs)上培养C. elegans种群并记录其种群生长情况的方法。
本文内容
摘要
摘要
Caenorhabditis elegans(C. elegans)一直是研究发育生物学、衰老、神经生物学和遗传学的重要模式生物。大量关于C. elegans的研究使其成为开展大规模、全生物体研究的理想候选者,可用于解析复杂的生物学组分及其与其他生物之间的关系。为了在协作式组学研究中使用C. elegans,需要一种能够产生大量个体的方法,使得单个样本可以被分割,并在不同平台上进行检测,以实现比较分析。
本文介绍了一种在大规模培养板(LSCP)上培养并收集大量混合发育阶段的 C. elegans 群体,以及后续表型数据的方法。该实验流程可获得足够数量的线虫个体,用于采集表型和群体数据,同时满足各类组学实验(如基因组学、转录组学、蛋白质组学和代谢组学)所需的数据。此外,LSCP 方法对线虫本身的干预极少,操作者准备时间短,能够实现严格的环境控制,并确保在整个研究过程中各样本处理的一致性,从而提高整体实验的可重复性。最后,本文还介绍了记录特定 LSCP 中 C. elegans 各发育阶段群体数量及分布情况的方法。
引言
C. elegans 是一种小型自由生活的线虫,在全球多种自然生境中均有分布1。其易于培养、世代周期短、繁殖系统明确以及身体透明等特点,使其成为发育生物学、衰老、神经生物学和遗传学研究中广泛应用的有力模式生物2,3。大量针对 C. elegans 的研究工作使其成为进行组学研究的理想候选对象,可用于全面关联表型与特定生物体中复杂的生物学组分及其相互关系。
为了在协作组学研究中使用 C. elegans,需要一种能够生成大量混合发育阶段线虫群体的方法,使得单个样本可以被分割并用于多种平台和仪器进行比较分析。建立生成此类样本的流程时,必须充分考虑饮食、环境、应激、种群结构以及样本处理与采集等因素。因此,将标准化且可重复的培养条件整合到大规模流程中至关重要。在 C. elegans 研究中,常用的两种传统培养方法是琼脂培养皿培养和液体培养4。
传统上,当需要大量 C. elegans 时,通常采用液体培养方式进行培养4。在液体培养中获得大量线虫群体的过程涉及多个操作步骤,通常包括使用次氯酸钠同步化处理,以裂解成年 gravid 个体的角质层,释放胚胎,从而获得目标群体规模。然而,使用次氯酸钠同步化时,群体生长依赖于起始数量,因此会影响后续的生长过程和最终群体数量。此外,不同 C. elegans 品系在角质层敏感性、次氯酸钠处理时间以及对次氯酸钠同步化产生的应激反应方面存在差异,导致同时检测多个品系变得困难5,6,7,8,9。
此外,在液体培养中培养线虫需要进行几次传代操作,通常建议在收获前仅培养一代线虫,因为若连续培养多代,容易发生过度拥挤,即使存在食物也可能导致dauer形成10。dauer的形成是通过一些小分子信号物质(如ascarosides)介导的,这类分子常被称为“dauer信息素”11,12,13,14,它们会释放到液体培养基中,影响群体的生长。此外,在液体培养中大规模培养线虫会导致培养物中细菌过度积累,当后续表型分析需要纯净样品时,这将带来困难。最后,当液体培养物被污染时,更难以维持其纯净状态,因为真菌孢子或细菌细胞极易在培养基中扩散15。
培养 C. elegans 的另一种传统方法是在琼脂培养皿上进行。市面上可获得的培养皿可方便地用于培养多代混合发育阶段的线虫,且不会像液体培养那样迅速出现过度拥挤和大量dauer幼虫形成的问题。然而,传统琼脂培养皿培养线虫的一个缺点是,目前 commercially available 的最大规格培养皿若不加入漂白剂同步化步骤,无法为组学研究提供足够数量的线虫群体。综上所述,在琼脂培养皿上培养混合发育阶段的 C. elegans 群体更适合用于获取组学数据,但我们需要一种无需液体培养即可产生极大群体数量的方法。
本文介绍一种在大规模培养板(LSCP)上培养并收集大量混合发育阶段的秀丽隐杆线虫(C. elegans)群体的方法。通过该流程收集样品,可获得足够的样本量,用于获取表型和群体数据,以及进行各类组学实验(i.e.,基因组学、转录组学、蛋白质组学和代谢组学)所需的数据。此外,LSCP 方法对动物的操作极少,用户准备时间短,可实现严格的环境控制,并确保在整个研究过程中每个样本的处理方式一致,从而提高整体实验的可重复性。
方案
1. 对LSCP和设备进行灭菌
- 实验开始前,通过手工清洗、洗碗机清洗及随后的高压灭菌处理来制备玻璃线虫液体培养板(LSCP),以确保玻璃器皿无污染物。高压灭菌后的LSCP应存放于洁净干燥处,直至使用。
注意:确保LSCP及其盖子可耐受洗碗机和高压灭菌处理。 - 通过手工清洗后使用洗碗机清洗来制备LSCP盖子。将LSCP盖子存放于洁净容器中,待需要时取用。
- 在制备线虫生长培养基琼脂(NGMA)当天,先用10%次氯酸钠溶液擦拭LSCP盖子两次,再用70%乙醇擦拭。完成10%次氯酸钠和70%乙醇擦拭后,将LSCP盖子置于超净工作台内的洁净容器中,等待NGMA的制备。
2. 制备线虫生长培养基琼脂糖(NGMA)
- 在搅拌板上,将以下试剂加入已灭菌的 2 L 锥形瓶中,并放入搅拌子:2.5 g 胰蛋白胨、3 g NaCl、7 g 琼脂糖、10 g 琼脂和 975 mL 无菌水16,混合配制 NGMA。确保总体积为 1 L。用胶带将铝箔盖固定在瓶口。
注意:此处所述 NGMA 的制备步骤可制备出足够用于 2.5 个 LSCP 的培养基。本方案可根据实验所需 LSCP 批次大小进行相应调整。 - 在 121 °C 和 21 p.s.i. 条件下,使用液体循环程序高压灭菌 45 分钟。
- 打开水浴锅并设定温度为 50 °C。将已灭菌的 NGMA 放入水浴锅中,冷却至 50 °C。
- 将装有 NGMA 的 2 L 锥形瓶移入超净台或洁净操作区域,并置于搅拌板上。使用温度计监测 NGMA 的温度。
- 当 NGMA 温度降至 50 °C 后,在超净台或洁净操作区域内,使用无菌一次性移液管按以下顺序依次加入:25 mL 1 M KH2PO4(钾磷酸盐缓冲液)、1 mL 胆固醇(5 mg/mL,溶于乙醇)、1 mL 1 M CaCl2、1 mL 1 M MgSO4、1 mL 制霉菌素(10 mg/mL)和 1 mL 链霉素(100 mg/mL)16。
- 将 400 mL NGMA 倒入无菌玻璃 LSCP 中,厚度约为 1.3 cm,在超净台内平面上静置使其凝固,然后重新盖上已灭菌的铝箔盖。
- 待琼脂完全凝固后,移去铝箔,盖上干净的密封盖,将 LSCP 置于 4 °C 保存。NGMA 应在 4 °C 下储存并在 5 天内使用完毕。
3. 在 LSCP 上生成用于 NGMA 的 E. coli 食物
- 为了获得稳定的食源,采用符合中心极限定理的小批量平均概念制备HT115 (DE3) E. coli 菌株批次17。储存于 -80 °C。使用时,将 E. coli 菌种从 -80 °C 取出并解冻18。
注意:在本实验方案中,E. coli 菌种在生物反应器中培养。培养结束时,将培养物按1:50稀释,测得OD600为0.4。因此,培养物的有效OD600为20。随后将细菌离心成沉淀,称重,并以K培养基重悬至浓度为0.5 g/mL(湿重),分装为每份2 mL,然后冷冻保存19。
4. NGMA 上的细菌菌苔
- 在铺制细菌菌苔前,将NGMA LSCP从4 °C移至室温(RT)数小时,使整个LSCP达到室温。
- 从-80 °C取出所需的E. coli菌种储备液,使其融化18。
- 用2 mL无菌K培养基稀释E. coli菌种储备液,使每4 mL悬浮液中含有0.5 g E. coli。小心地将4 mL E. coli悬浮液滴加至NGMA LSCP中央。
- 使用无菌涂布棒将细菌均匀涂布成矩形,边缘周围约留出3.8 cm的无E. coli区域。
- 将接种了E. coli的NGMA LSCP置于超净台中,打开风机,静置1 h,确保E. coli悬浮液完全干燥。
- 待细菌菌苔干燥后,盖紧盖子,于4 °C保存,待用。
5. 切割蠕虫以减少样本间的应激和年龄差异
- 从冻存的线虫品系中划线接种至新铺的6 cm培养皿4该平板将作为“主块”平板。
注意:转移纯合品系的线虫时,分块转移是一种最佳方法20如果品系为杂合子或需要通过挑取和交配来维持,则不建议进行分块传代。分块传代的频率可能需要根据所使用的线虫基因型、选择的培养温度以及后续实验步骤进行优化。 - 在主培养板中充满健康且带有卵的成虫(约3天)并拥有大量 E. coli 草坪仍存在,遵循标准操作 秀丽隐杆线虫 根据WormBook中所述的分块指南,制备共计四块分块平板4.
- 除非另有生长条件说明,否则所有碎块培养板均应存放于20 °C的控温(CT)室内。
注意:如果本实验方案的使用者无法获得文中所述的CT室,建议使用可控制温度的小型培养箱,或尽可能控制环境条件的专用房间。如果上述替代方案均不可行,需注意样品生长的变异程度可能会增大。 - 一旦在4中观察到大量怀卵成虫th 将碎片板移至下一步,进入第6步。
6. 将怀卵成虫点状漂白至LSCP上
注意:该漂白技术用于清除大多数污染物并溶解雌雄同体成虫的角质层,从而释放出胚胎。在胚胎孵化前,漂白液将渗入NGMA中。
- 在进行斑点漂白线虫实验前数小时,将LSCPs恢复至室温。
- 按7:2:1的比例配制ddH₂O、甲醇和乙酸混合溶液2O : 漂白剂 : 5 M NaOH。使用前新鲜配制该碱性次氯酸盐溶液。
注意:在特定实验的整个过程中,应使用同一批次的漂白剂和氢氧化钠,以避免漂白剂批次差异的影响。本方案中使用的漂白剂为5-10%次氯酸钠。 - 点燃本生灯,在继续操作前灼烧线虫挑取工具。挑取新鲜 E. coli 从LSCP上细菌菌苔边缘取无菌接种针。
- 从4条中挑选一条带有卵的成年个体th 用于点状漂白的碎片载玻片。
- 将5 μL碱性次氯酸盐溶液用移液器加入LSCP远离样品的一角 E. coli 菌苔
- 将挑选出的带有卵的成虫放入5 μL碱性次氯酸盐溶液中。轻敲线虫以帮助破坏角质层并释放卵。
- 重复步骤 6.4 – 6.6,共进行 4 次,并将 5 只怀卵成虫均匀放置在周围 E. coli 菌苔。从相同的4个中挑选全部5只怀卵成虫th 将菌落平板进行分块,以确保向特定样本中添加的个体几乎为遗传同源的。
- 将盖子重新放回LSCP上。
- 对所有LSCPs重复上述步骤。
7. 控温(CT)室中线虫的培养
- 点漂白后,将盖子紧密盖在LSCP上,置于设定为20 °C、具有持续气流和12L:12D光周期(12小时光照和12小时黑暗)的CT室中。
- 记录样本放入CT室的时间和位置。
注意:应始终记录样品在房间内的位置,以记录样品在生长过程中可能遇到的任何环境差异。一旦样品进入CT室,应保持在其指定位置,避免扰动。为降低污染风险,禁止在CT室内打开LSCP的盖子。 - 将LSCP带至CT室外的显微镜处,观察细胞群体的生长情况和密度。
注意:每个 秀丽隐杆线虫 菌株和样品的生长情况会有所差异,因此需密切监测样品。尽管建议在CT室中不要干扰LSCP的生长,但实际操作中每2天将LSCP移出CT室并打开盖子以观察样品生长情况。每2天打开一次LSCP的密封盖子也有利于O2 流入LSCP。 - 在收获前,确保LSCP中已充满大量线虫种群。根据以下标准判断LSCP是否已达到可收集状态。
- 确保LSCP中充满带有卵的成虫。
- 确保培养板中含有较大的群体数量 即, 线虫覆盖琼脂的整个表面。
- 确保平板的琼脂表面没有过多的卵(即(此时应有最大数量的线虫孵化)。
- 确保平板具有最少或没有 大肠杆菌 左侧表明,若将线虫在平板上再放置两天,它们将因饥饿而生成dauer幼虫。
注意:尽管大多数LSCP在10至20天之间即可收获,但具体时间取决于菌株和样品。在建立本方案时,应频繁检查每个LSCP,以确定正常的收获时间。
- 在处理不同LSCP菌株之间,使用70%乙醇清洁手套和操作区域,以避免菌株间的交叉污染。
8. 收集 LSCP 样本
- 打开离心机,使其预冷至 4 °C,然后再进行样品收集。
- 为每个待收获的LSCP准备三个50 mL离心管,每管加入50 mL M9溶液。
- 为每个 LSCP 准备一个 15 mL 圆锥形管并做好标记。
注意:所有离心步骤均在15 mL圆锥形试管中进行,因为线虫在这些试管中易于形成沉淀。 - 将50 mL M9溶液(来自步骤8.2中的一个50 mL锥形管)倒入LSCP表面,并轻轻旋转,确保M9溶液覆盖整个NGMA表面。
- 当M9置于LSCP表面时,用M9预润一支无菌刻度移液管。
注意:通过使用M9对无菌血清移液管进行预润洗,可减少线虫黏附在塑料移液管内壁,从而避免样品损失。 - 倾斜LSCP,使M9和线虫群体聚集在LSCP的一角。
注意:在后续步骤中,LSCP 中的 M9 溶液与线虫的混合物将被称为“线虫悬液”。 - 使用已预润洗的血清移液管配合自动移液器,吸取线虫悬液并转移至原始的50 mL锥形管中。当收集到50 mL线虫悬液后,将锥形管置于摇床上,以振荡分散细菌团块和碎片。
- 重复步骤 8.4 至 8.7,每个 LSCP 收集 150 mL 蛔虫悬浮液。
- 从三个50 mL离心管中取15 mL线虫悬液,倒入步骤8.3中预先标记并留出的15 mL离心管中。将该15 mL离心管在884 × g下离心 x g 在 4 °C 下离心 1 分钟。大部分线虫将沉淀至管底。
- 吸除上清液,注意不要扰动虫体沉淀。
- 继续向同一支15 mL离心管中加入约13 mL线虫悬液,重复步骤8.9 和 8.10 直到消耗完全部150 mL线虫悬液。在每次离心之间倒置离心管,并搅动沉淀物,以尽可能洗涤并吸除细菌和碎片。
注意:此步骤中,将三个50 mL离心管中的内容物浓缩至一个15 mL离心管中。 - 向15 mL离心管中加入10 mL干净的M9培养基,通过倒置混匀使线虫沉淀重悬。将15 mL离心管在884 × g下离心 x g 在 4 °C 下离心 1 分钟。吸除上清液,注意不要扰动虫体沉淀。重复两次。
注意:如果样品中存在大量碎片或细菌,请重复步骤 8.12,直至样品洁净。 - 样品清洁后,加入 ddH₂O2O至蠕虫沉淀,总体积为10 mL ddH₂O2O 和蠕虫。通过倒置轻轻振荡蠕虫沉淀。迅速进入步骤 9.1,因为蠕虫必须保持在 ddH₂O 中。2O,5分钟或更短时间,以避免渗透压应激。
注意:将线虫沉淀悬浮于ddH₂O中2O 是后续组学步骤的首选溶剂。如果其他溶剂或缓冲液与特定实验流程相容,也可用于悬浮线虫。
9. 估算种群数量
注意:请快速完成步骤 9.1 至 9.7。在后续步骤中,将步骤 8.13 中 ddH2O 与线虫的混合物称为“线虫样品”。
- 在移液线虫样品前,先用M9缓冲液预润移液器吸头,以防止线虫黏附在塑料吸头内壁,避免样品损失并减少计数误差。
- 取100 μL线虫样品,加入900 μL M9缓冲液稀释。充分混匀后进行连续稀释(1:10、1:100、1:1000)。重复该步骤两次,共获得三组样品重复。
注意:移液操作可能导致样本中线虫数量出现较大差异。在移取所需等分试样前,应确保线虫样本均匀一致。 - 将15 mL离心管置于摇床上,使细胞悬液在取样计数时持续振荡。
- 确保线虫样品充分混匀且均匀。从1:10的线虫样品中吸取5 μL,滴加到显微镜载玻片上,计数线虫数量。若该数量少于约50条,则同时计数1:100和1:1000稀释度的样品;若多于50条,则转至下一个连续稀释度进行计数。
注意:若线虫数量过多无法准确计数,应改用下一梯度稀释液进行计数。 - 对每种稀释度的每个等分试样重复计数3次。计数结束后,对于大多数培养物,将记录总共9次计数结果(即,每个等分试样重复测定3次。
- 对稀释计数取平均值,以确定蠕虫样本的估计种群数量。这些稀释计数将用于确定为后续组学步骤制备目标分装体积所需的蠕虫样本体积。
注意:本实验中制备了约200,000条混合发育阶段的线虫分装样品。此外,另取约50,000条混合发育阶段的线虫分装样品,用于大颗粒流式细胞仪分选(见步骤10)。 - 将线虫样品分成适当等份后,用液氮速冻,并于 -80 °C 保存。
注意:用于大颗粒流式细胞术的等分试样切勿冷冻。
10. (可选)大颗粒流式细胞术样品的制备
注意:步骤10、11和12是作者推荐用于记录样品生长的方法即,种群大小和种群分布 秀丽隐杆线虫 生活史阶段)并确定培养效果。本方案的使用者可根据自身条件,用其他生长效果评估指标替代可选的步骤10、11和12。此处描述步骤10、11和12基于两个原因:第一,便于具备相关设备的研究人员重复执行这些步骤;第二,用于验证本培养方法的有效性。上述步骤9可对线虫总数进行良好估算,以确定分装量,而步骤10则提供了更为定量的指标,用于估算特定样本中线虫的数量及其群体分布。
- 将步骤9.6中预留的约50,000条混合发育阶段的线虫用M9溶液定容至总体积10 mL。
- 配制含有1 mg/mL E. coli 和0.5 μM红色荧光微球1:50稀释液的混合溶液19。
- 取200 μL该溶液加入含10 mL混合发育阶段线虫的M9溶液中,边轻轻振荡孵育20分钟。
- 20分钟后,在4 °C条件下以884 x g离心1分钟。
- 小心吸弃上清液,避免扰动线虫沉淀。
- 用M9溶液将线虫沉淀清洗两次,以去除多余的细菌和红色荧光微球。
- 向线虫沉淀中加入5 mL M9溶液,并观察沉淀是否干净。若沉淀已清洁,再加入5 mL含50 mM叠氮化钠的M9溶液,以使线虫伸直并杀死,便于准确计数和测量尺寸21。
- 记录向样品中加入叠氮化钠的具体时间和日期。
- 将样品置于摇床上暂存,待后续用于大颗粒流式细胞术分析。
注意:已知叠氮化钠会影响线虫的生理状态(例如,体长、代谢和耐热性)。因此,必须准确记录线虫暴露于叠氮化钠的时间,因为这些生理效应在数分钟内即可发生22。鉴于叠氮化钠对线虫已知的生理影响,该处理可能影响后续成像质量,应予以充分考虑。
11. (可选)记录种群分布并准备用于成像的384孔板
注意:步骤11使用大型颗粒流式细胞仪(LPFC)。本方案假定使用者已具备LPFC的基本知识。也可采用其他方法来记录样品的生长情况和种群分布。此处记录的步骤适用于计划在其流程中使用LPFC的用户23。
- 打开、清洁并启动低压流式细胞仪(LPFC),并在分选样本前让激光预热1小时。
- 激光预热后,打开“直方图”剖面并缩放至飞行时间(TOF)为2050。
- 添加一个条形区域到“直方图” 跨越 100 的飞行时间(TOF)范围。第一个条形区域覆盖 50-150 的 TOF。
- 继续创建二十个条形区域,每个区域覆盖100的飞行时间(TOF)范围。这些条形区域将覆盖50–2050的整个TOF范围。参见 补充表1 用于在飞行时间分布中精确划定门控区域。
- 将此直方图设置保存为“实验用于未来的LPFC实验运行。
- 选择已校准的384孔板或将仪器校准至384孔板,用于分配样品。
- 一旦进入校准后的384孔板模板,设置模板将每个在步骤11.3–4中创建的20个条形区域的20个门控对象分别分配到四个孔中(每个门控区域设四个技术重复)。参见 补充表 2 示例布局,展示如何将线虫分配至384孔板中。
- 将第10.9步的样品转移至一个50 mL离心管中,并加入额外的M9溶液,使总体积约为40 mL。
- 根据步骤11.7中设定的参数,自动开始对样品进行分选,同时持续搅拌样品以防止沉降,并将样品中的对象同步分配至已校准的384孔板中。
注意:确保低压力流式细胞仪(LPFC)的流速在每秒15-20个对象之间,并设置不筛选重叠信号。 - 待全部样本分选完成,且已将最大数量的门控区域液滴分配至384孔板后,从LPFC上取下样本,并清洁仪器。
注意:当达到较大的 TOF 区域时,由于该 TOF 区域内的事件数较低,可能难以继续填满 384 孔板。应尽可能填满所有设门的区域,以准确判断其分布位置 秀丽隐杆线虫 在样本耗尽之前,各个生活阶段均位于LPFC分布范围内。 - 放置密封垫 384孔板上的薄膜在成像前保持原位。
注意:分选后应尽快进行平板成像,因为 样品用叠氮化钠处理22在收集的LPFC数据文件中可见红色荧光微球(即 根据每个分选对象发出的红色荧光强度,在输出文本文件中生成pH红数据,以帮助识别哪些对象是活体线虫、死亡线虫、滞育幼虫(dauers)或杂质24.
12. (可选)384孔板成像
注意:步骤12使用平板读取式微共聚焦显微镜。本方案假定操作者已具备微共聚焦显微镜的基本知识。也可采用其他方法对样品的生长情况和种群分布进行记录。
- 使用配备 20 倍物镜的微孔板扫描共聚焦显微镜。
- 打开“Objective and Camera”选项卡,设置为“10x Plan ApoLambda”模式。
- 打开“Camera Binning”选项卡,设置为“2”。
- 打开“Sites to Visit on Plate”选项卡,设置每个孔采集“4”个视野,并设置“overlap sites 10%”,以便后续拼接图像。
- 打开“Wavelength”选项卡,设置为“Brightfield 1”。
- 打开“Illumination”选项卡,设置为“Transmitted light, bright sample”。
- 将 384 孔板放入显微镜中,设置“Z Stack”为“Calculate Offset”,并找到 384 孔板中样品的合适焦平面。
- 在微孔板扫描共聚焦显微镜上运行 384 孔板,每个孔采集四幅图像。
- 将四个图像拼接成一幅完整的图像,每个孔生成一幅图像。
结果
采用 LSCP 方法培养 C. elegans,平均每份样品在 12.2 天内可获得约 240 万条不同发育阶段的线虫。 使用 LSCP 方法培养 C. elegans 可使研究人员以极少的操作和干预获得大量混合发育阶段的 C. elegans 群体,非常适合大规模的组学研究(图 1)。当 LSCP 培养体系中成虫数量众多、种群规模达到较大水平且残留细菌极少时,即可进行线虫收获并估算种群数量。此阶段也可作为质量控制节点,用于评估该种群是否足以用于组学分析流程(图 2)。种群动态受菌株自身特性、菌株行为(例如,具有钻埋行为的菌株通常线虫回收率较低)以及培养效果(例如,污染情况)的影响。LSCP 方法已在 15 株 C. elegans 菌株上进行测试,包括 Caenorhabditis 遗传中心(CGC)的突变株和 Caenorhabditis elegans 自然多样性资源库(CeNDR)的野生型菌株的混合样本25。各菌株基因型详见 补充表 3。
LSCP 方法获得的群体数量范围约为 94,500 至 9,290,000。参考菌株 PD1074 以及各菌株间的平均群体数量约为 240 万条线虫(图 3)。在平均 12.2 天的 LSCP 生长过程中,C. elegans 各菌株间估计的群体数量未发现显著差异(图 4)。PD1074 的 LSCP 培养需要 10 至 14 天时间生长至完整的混合发育阶段群体。PD1074 菌株的平均生长时间为 10 天。生长最慢的菌株最长培养时间为 20 天,而生长最快的菌株最短培养时间为 10 天(图 4)。
因此,通过使用这种LSCP方法,用户可以轻松地将感兴趣的菌株整合到研究中,而无需深入了解发育时间及背景专业知识。需要注意的是,那些需要通过挑取来维持的菌株、存在繁殖力缺陷的菌株、杂合子菌株或具有生长缺陷的菌株,在该流程中可能效果不佳。
大颗粒流式细胞术及样本成像可使用户记录群体分布情况。 多种不同平台可用于检测群体生长是否成功。
为了获得可重复的组学测量结果,培养一致的培养物至关重要。培养物可重复性的指标包括线虫数量以及特定品系的大小分布一致性。我们展示了参考品系PD1074(原始N2 Bristol品系的一个变体)的样本分布情况,使用LPFC23,26和微共聚焦显微镜图像作为生长效果的替代指标。通过对线虫从L1阶段到产卵成虫阶段在LPFC上的分布(图5)、后续成像(图6)以及不同样本间群体分布的变异情况(图7)进行测量,可以看出该流程产生了一个多阶段混合的C. elegans群体。
为了更仔细地观察混合发育阶段样本的群体分布情况,我们通过分析35个PD1074 LSCP中落入飞行时间(TOF)各个区域的线虫百分比,来考察其分布特征。即,体长)分布(图7A,B).
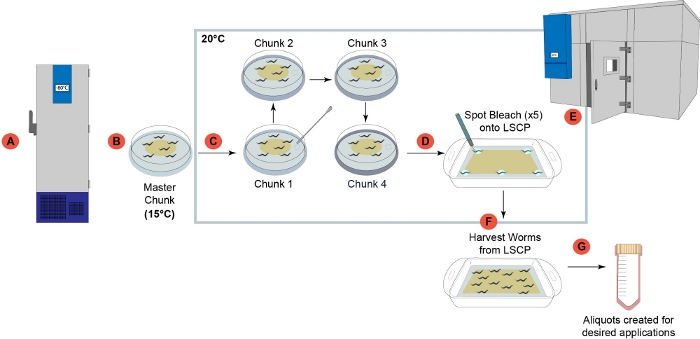
图1:LSCP线虫培养流程概览。(A)菌株收到实验室后,均制备并冻存于-80 °C用于长期保存2。(B)从冻存的线虫原种制备一块“主块”平板,并存放于15 °C,使用时间不超过一个月。(C)每个样品经过连续四次传代扩增,在转入LSCP前以减少代际压力。(D)从步骤(D)的6 cm“第4代传代”平板中挑取5只成年 gravid 成虫,分别点样漂白至LSCP上的五个指定区域。(E)将LSCP置于控温房间中,在20 °C下培养,直至LSCP上充满成虫、种群数量达到较大规模且残留细菌极少。(F)收获并收集线虫种群用于后续步骤。(G)从LSCP中分装样品,并进行速冻,以用于后续所需应用。请点击此处查看该图的放大版本。
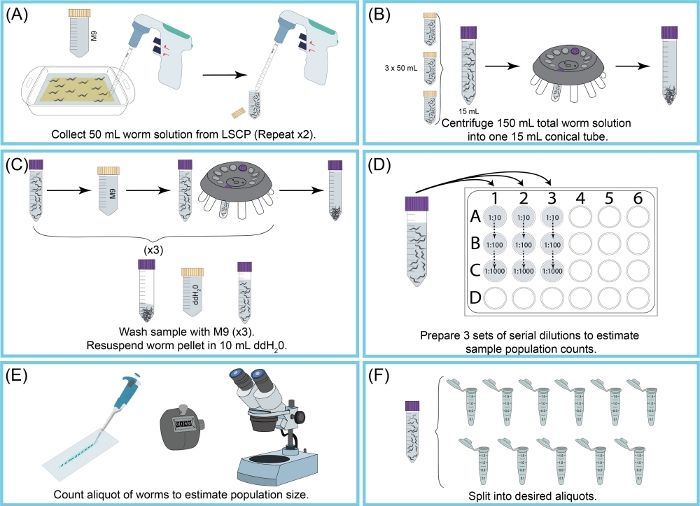
图 2:LSCP 收获及种群数量估算流程概览。(A)使用 50 mL M9 缓冲液冲洗 NGMA 平板表面以收集线虫,将虫悬液转移至 50 mL 锥形管中。步骤(A)重复两次。(B)将 15 mL 虫悬液倒入新的 15 mL 锥形管中,通过离心使线虫沉淀,用移液器小心吸除上清液(含 M9 及碎片),避免扰动虫体沉淀。重复步骤(B),直至收集全部 150 mL 虫悬液。(C)用 M9 缓冲液对虫体沉淀洗涤并离心三次,以去除残留碎片。样品清洁后,将虫体沉淀重悬于 10 mL 去离子水(ddH2O)中。(D)对样品进行系列稀释,以估算线虫种群数量。选择能够准确计数线虫的稀释倍数;所用稀释倍数根据 LSCP 的种群密度而调整。(E)确定稀释倍数后,将该稀释度下三个重复样品中的全部线虫转移至洁净载玻片,在解剖显微镜下进行计数。(F)将样品分装为适当体积的等分试样。请点击此处查看该图的放大版本。
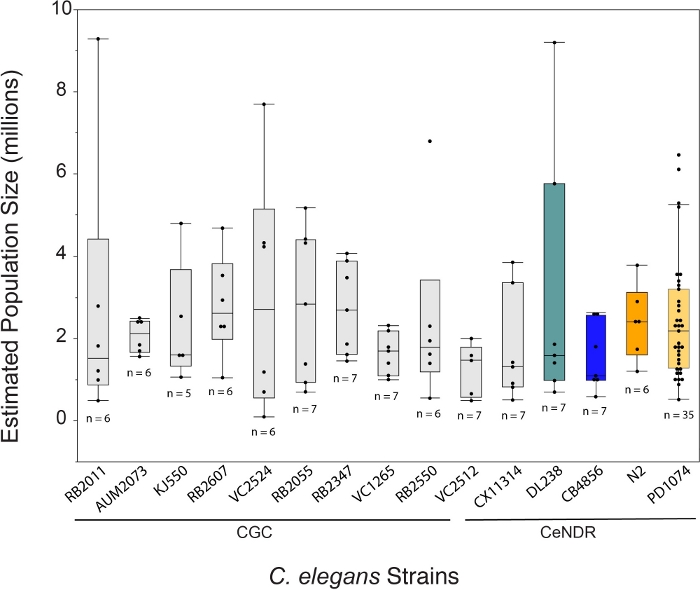
图3:LSCP方法平均获得240万条混合发育阶段的线虫。 LSCP 得到的种群数量在最小种群增长时约为 94,500,在最大种群增长时约为 9,290,000。所有菌株的平均种群数量为 240 万条线虫。下方的条形图 秀丽隐杆线虫 菌株名称表明该菌株是CGC突变体还是CeNDR自然分离株。每种菌株均显示LSCP样本量。采用Tukey HSD检验对所有配对进行比较,不同菌株间估计的种群规模未观察到显著差异 秀丽隐杆线虫 品系(F(14,108) = 0.7, p = 0.77)。彩色条形表示各自的标准颜色显示 秀丽隐杆线虫 菌株表示。 请点击此处以查看此图的放大版本。
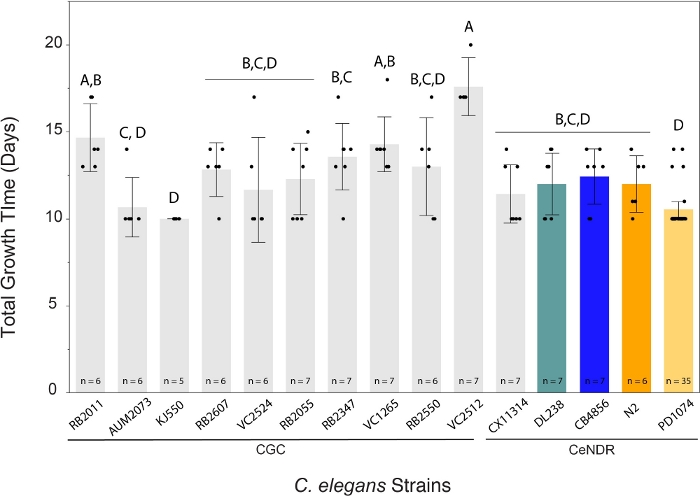
图 4:LSCP 方法在 10 – 20 天内生成了大量混合发育阶段的线虫群体。特定的 C. elegans LSCP 培养至样本中充满成虫、达到较大种群数量,并且细菌菌苔几乎耗尽为止。LSCP 培养至形成完整的混合发育阶段群体所需时间为 10 – 20 天,具体时长因品系而异。各品系的平均生长时间为 12.2 天。图中显示了每个品系的 LSCP 样本数量。每个误差线表示均值加减 1 个标准差。未被相同字母标记的组别之间差异显著。所有组间比较均采用 Tukey HSD 检验。不同 C. elegans 品系在 LSCP 上生长所需时间存在显著差异(F(14,108) = 8.8,p < 0.0001*)。彩色柱状图表示相应 C. elegans 品系的标准颜色展示。 请点击此处查看该图的高清版本。
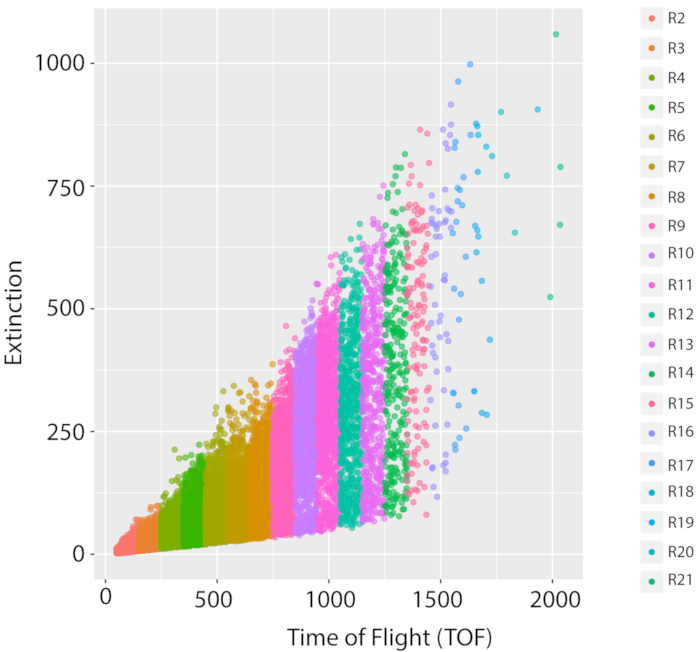
图5:野生型参考菌株PD1074的混合种群及生长测量。 野生型参考菌株(原始N2 Bristol菌株的一个变体,PD1074)一次LSCP生长的代表性LPFC分布图,记录了混合发育阶段种群的大小分布和事件计数。横轴显示被分选线虫的长度(飞行时间,TOF),纵轴显示被分选线虫的光密度(光学灭绝值,EXT)。每个数据点代表样本中记录的一条线虫。用于图像分析的每个TOF区域以不同颜色显示。共创建了二十个TOF区域(R2–R21),TOF范围从50到2050。各TOF区域的详细信息见补充表1。请点击此处查看该图的放大版本。
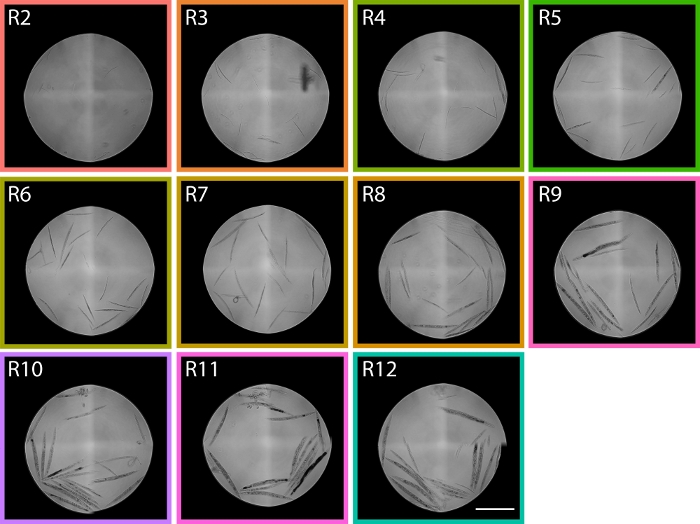
图6:从飞行时间(TOF)区域R2至R12分选的线虫图像,显示PD1074 LPFC分布情况。 在R2区域可识别出L1期幼虫,而在R9区域主要为产卵成虫,涵盖了两个发育阶段的极端情况,从而提供了流式细胞仪分布中各发育阶段大致所处位置的参考。比例尺为1 mm。代表性图像来自图5所示的LPFC分布,彩色框对应于图5中的区域。请点击此处查看该图的放大版本。
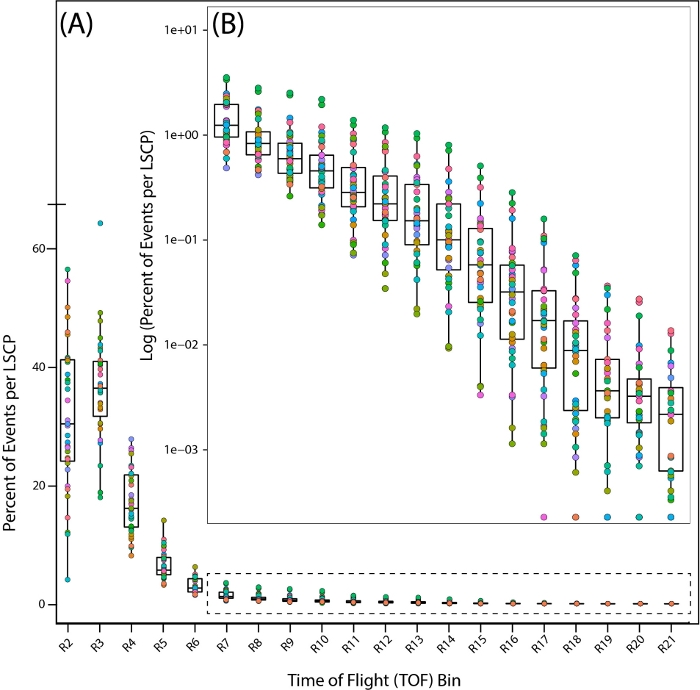
图 7:野生型参考菌株 PD1074 中飞行时间(TOF)区域内的种群分布。线虫在整个 TOF 区域的分布情况,显示了线虫被发现的区域。每个 PD1074 LSCP 以不同的颜色表示。(A)x 轴显示观察并计数 LSCP 的二十个 TOF 区域(R2 – R21),展示整个尺寸分布。y 轴显示来自某一特定 LSCP 的线虫中,其体长落入某一特定 TOF 区域的百分比。(B)由于较少比例的线虫种群分布在 R7-R21 区域之间,因此取每个区域内线虫百分比的对数值以展示种群分布。x 轴显示 R7-R21 TOF 区域,y 轴显示来自某一特定 LSCP 的线虫中,其体长落入某一特定 TOF 区域的百分比的对数值。请点击此处查看该图的放大版本。
补充图1:LSCP生长和处理期间培养条件的平均每日温度(°C)。 在为期六个月的样品生长与采集过程中,持续记录并收集了受控温度(CT)室的报告温度。此处报告的是平均每日温度。在整个项目持续期间,LSCP生长环境的温度之间未观察到显著差异(F(5,24) = 2.59,p = 0.0524)。在六个月的样品生长与传代过程中,整体温度差异不超过0.003 °C。请点击此处下载该图。
补充表1:用于将线虫分选至384孔板以进行成像的飞行时间(TOF)门控区域。 将飞行时间(TOF)范围从50至2050的整个分布划分为多个区间,每个区间的TOF跨度为100。门控区域可根据您的需求进行调整和优化。用于图像分析的每个TOF区域均以不同颜色显示。请点击此处下载该表格。
补充表 2:TOF 区域及重复布局的 384 孔板模板。 每个样本均被分选至 384 孔板中用于成像。针对每个选定分选的区域,建立四个重复。门控区域可根据您的需求进行调整和优化。有关本方案中建立并使用的具体门控区域,请参见补充表 1。用于图像分析的每个 TOF 区域以不同颜色显示。请点击此处下载该表格。
补充表3:本实验方案中使用的C. elegans菌株包含CGC与CeNDR菌株的混合物。 本表列出了菌株、基因型、菌株来源及相关详细信息。 请点击此处下载该表格。
讨论
可使用多种容器作为LSCP。本方案中采用的是标准玻璃烤盘。所用LSCP的外部尺寸为35.56 × 20.32 cm,内部尺寸为27.94 × 17.78 cm,深度约为4.45 cm,并配有匹配的盖子。因此,此处使用的细菌量已针对上述尺寸的LSCP进行了优化,以获得大量处于混合发育阶段的线虫。可根据实验需求调整细菌的体积和浓度。
在LSCP方法的任何步骤中,均可能发生霉菌、真菌或其他细菌来源的污染,因此需谨慎处理样品。在开始实验方案的任何步骤之前,应确保工作区域已用70%乙醇和10%次氯酸钠溶液清洁。如有条件,应对使用过的区域进行30分钟紫外照射,并在每步操作开始前30分钟开启HEPA空气过滤器。
通过在受控环境中培养LSCP(即在设定为 20 °C 的 CT 培养箱中,用户可更方便地监测样品的生长情况并记录可能的污染。若 LSCP 表面发生污染,应尽可能切除污染区域,使样品继续生长;若污染无法控制,则需丢弃样品。必须迅速处理污染,以减少不必要的微生物生长,并确保污染物不会与线虫争夺资源。
本方法适用于希望大规模培养混合种群 C. elegans 的研究人员。尽管在LSCP上培养同步化虫群是可能的(类似于在商业化的培养皿或液体培养中进行的操作),但作者尚未测试该方案。此外,如果用户希望在单个样本中平均培养超过约240万条线虫,则建议采用其他方法4。培养效果取决于所处理的品系。作者成功地在15种 C. elegans 品系的至少五个生物学重复中培养出约240万条线虫的种群,表明该方法具有良好的稳健性。
在开始实验之前请注意,特定线虫的年龄和健康状况可能会影响其繁殖力以及后续的种群增长时间。在将线虫用于本实验流程之前,应确保其处于健康状态,并尽量减少环境压力。假设已制备好菌种样品,并已冷冻保存于 -80 °C,以减少随时间发生的遗传漂变。
根据特定实验的需求,可以在LSCP上调整起始的成年 gravid 线虫数量。改变LSCP上起始的成年 gravid 线虫数量将影响其生长速率,从而改变收获时间。本实验中每个LSCP接种5条成年 gravid 线虫,原因如下:(1)需要一种简单、快速且高效的方法,以便同时将多种 C. elegans 品系接种到LSCP上;(2)减少所挑选的成年 gravid 线虫之间因年龄差异而导致的生长不均一性。
该方法可使用户收获包含所有生命周期阶段的大量线虫群体。目前可用的方法中,收集大规模的秀丽隐杆线虫(C. elegans)样本通常需要通过次氯酸钠同步化处理,以获得下游实验所需数量的线虫。而采用本方法后,现在可以在发酵罐或大规模液体培养中培养出以往所能达到的线虫数量,同时避免了次氯酸钠同步化及相关多次操作步骤带来的困难。我们的实验方案能够高效地针对目标菌株,最大限度减少样本培养过程中的操作时间,并可根据下游流程的需求,分离特定发育阶段的线虫或整个群体。
采用线虫流式细胞仪(LPFC)作为工具,用于记录特定线虫种群(LSCP)中的个体分布与大小。所使用的LPFC为连续流动系统,可根据线虫的大小(飞行时间,TOF)和光密度对其进行分析、分选和分配。当单个线虫通过流动池时,轴向光损失检测器会记录下488 nm固态激光器的信号光被遮挡的程度,持续时间为线虫通过所需的时间,从而获得该线虫的TOF和光密度数据。此外,还可利用荧光收集光学元件和检测器,以最大化每个样本的荧光灵敏度和信号收集效率。LPFC的收集参数将根据具体仪器而有所不同。用户可采用多种平台来获取线虫大小信息,若无LPFC设备,也可使用其他方法,不受本方案限制。
作者正在利用本方法培养的样品,通过液相色谱-质谱联用、核磁共振波谱和RNA测序技术,鉴定多种秀丽隐杆线虫(C. elegans)菌株中的未知代谢物。作者计划在该流程中继续采用此方法培养样品,可针对多种秀丽隐杆线虫(C. elegans)菌株进行实验,因为新关注的菌株可轻松纳入此流程进行处理。
披露
作者无任何利益冲突需要披露。
致谢
我们感谢Edison实验室成员对本手稿提出的有益讨论和反馈意见,特别是B.M. Garcia。部分菌株由CGC提供,CGC由美国国立卫生研究院研究基础设施项目办公室(P40 OD010440)资助;此外,CeNDR也提供了菌株,CeNDR由美国国家科学基金会生命种质资源CSBR 1930382项目资助。本研究得到了美国国立卫生研究院资助项目(U2CES030167)的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 10 mL 无菌刻度移液管 | VWR | 89130-898 | |
| 10 µl 移液器吸头 | VWR | 89079-438 | |
| 100 µl 移液器吸头 | VWR | 89079-442 | |
| 1000 mL 量筒 | VWR | 10124-380 | |
| 1000 µl 移液器吸头 | VWR | 89079-488 | |
| 15 mL 圆底离心管 | VWR | 89039-668 | |
| 190 证明乙醇 | VWR | 89125-166 | |
| 2 L 宽口锥形瓶 | VWR | 75804-654 | |
| 50 mL 圆底离心管 | VWR | 75874-294 | |
| 琼脂 | Sigma | 05040-100G | |
| 琼脂糖 | Sigma | A9539-500G | |
| BVC 控制液流体抽吸系统 | Vacuubrand | ||
| 氯化钙 | Sigma | 449709-10G | |
| 胆固醇 | Sigma | C3045-25G | |
| Clorox 漂白剂 | VWR | 89414-502 | |
| Conviron 控温室 | Conviron | https://www.conviron.com/environmental-rooms | |
| Corning 低体积 384 孔黑板带透明平底聚苯乙烯 TC 处理微孔板 | VWR | 89089-866 | |
| Fisher Scientific Accuspin 3R | Fisher | ||
| 平底 24 孔板 | VWR | 29443-952 | |
| Honeywell True HEPA 空气净化器(465 平方英尺) | Home Depot | 204390560 | |
| HT115 E. coli (DE3) | CGC | HT115(DE3) | https://cgc.umn.edu/strain/HT115(DE3) |
| Kimwipes 纸巾 | VWR | 470224-038 | |
| 大规模培养板(LSCP) | Pyrex | 1090948 | Pyrex 2 夸脱玻璃烤盘,带红色盖子 |
| 硫酸镁 | Sigma | C86677-25G | |
| MgSO4 | VWR | 97062-998 | |
| 显微镜载玻片 | VWR | 16004-422 | |
| Millipore 滤膜 | Millipore | 1.11727.2500 | |
| Molecular Devices ImageXpress | Molecular Devices | 型号:IXMConfocal | https://www.moleculardevices.com/products/cellular-imaging-systems/high-content-imaging/imagexpress-micro-confocal#gref ,作者使用 MetaXpress 软件版本 6.5.4.532 |
| 制霉菌素(10 mg/mL) | Sigma | N6261-25MU | |
| 蛋白胨 | Sigma | P7750-100G | |
| 培养皿(6 cm) | VWR | 25384-092 | |
| 移液控制器 | VWR | 613-4180 | |
| 氯化钾 | Fisher | P217-3 | |
| 磷酸二氢钾 | VWR | 0781-500G | |
| 氢氧化钾 | Fisher | P250-500 | |
| 红色荧光微球 | Polysciences | 19507-5 | |
| 氯化钠 | Sigma | 746398-500G | |
| 氢氧化钠 | Fisher | 111357 | |
| 无水磷酸氢二钠 | Fisher | BP332-500 | |
| 标准 Gilson 移液器套装 | Gilson | FA10002M, FA10004M, FA10006M | |
| 链霉素(100 mg/mL) | Sigma | S6501-25G | |
| Union Biometrica COPAS BioSorter | Union Biometrica | https://www.unionbio.com/biosorter/ ,作者使用:Flow Pilot 软件版本 1.6.1.3 |
参考文献
- Félix, M. A., Braendle, C. The natural history of Caenorhabditis elegans. Current Biology. 20 (22), 965-969 (2010).
- Corsi, A. K. A Transparent window into biology: A primer on Caenorhabditis elegans. WormBook. , 1-31 (2015).
- Brenner, S. The genetics of behaviour. British Medical Bulletin. 29 (3), 269-271 (1973).
- Stiernagle, T. Maintenance of C. elegans. WormBook: The Online Review of C. elegans Biology. , https://www.ncbi.nlm.nih.gov/books/NBK19649/ (2006).
- Xiong, H., Pears, C., Woollard, A. An enhanced C. elegans based platform for toxicity assessment. Scientific Reports. 7 (1), 9839(2017).
- Loer, C. M., et al. Cuticle integrity and biogenic amine synthesis in Caenorhabditis elegans require the cofactor tetrahydrobiopterin (BH4). Genetics. 200 (1), 237-253 (2015).
- Li, Y., Paik, Y. K. A potential role for fatty acid biosynthesis genes during molting and cuticle formation in Caenorhabditis elegans. BMB Reports. 44 (4), 285-290 (2011).
- Meli, V. S., Osuna, B., Ruvkun, G., Frand, A. R. MLT-10 Defines a Family of DUF644 and Proline-rich Repeat Proteins Involved in the Molting Cycle of Caenorhabditis elegans. Molecular Biology of the Cell. 21 (10), 1648-1661 (2010).
- Fritz, J. A., Behm, C. A. CUTI-1: A novel tetraspan protein involved in C. elegans CUTicle formation and epithelial integrity. PloS One. 4 (4), 5117(2009).
- Golden, J., Riddle, D. A pheromone influences larval development in the nematode Caenorhabditis elegans. Science. 218 (4572), 578-580 (1982).
- Jeong, P. Y., et al. Chemical structure and biological activity of the Caenorhabditis elegans dauer-inducing pheromone. Nature. 433 (7025), 541-545 (2005).
- Srinivasan, J., et al. A blend of small molecules regulates both mating and development in Caenorhabditis elegans. Nature. 454 (7208), 1115-1118 (2008).
- Kaplan, F., et al. Ascaroside Expression in Caenorhabditis elegans Is Strongly Dependent on Diet and Developmental Stage. PLoS One. 6 (3), 17804(2011).
- Golden, J., Riddle, D. A pheromone influences larval development in the nematode Caenorhabditis elegans. Science. 218 (4572), 578-580 (1982).
- Çelen, İ, Doh, J. H., Sabanayagam, C. R. Effects of liquid cultivation on gene expression and phenotype of C. elegans. BMC Genomics. 19 (1), 562(2018).
- Andersen, E. C., Bloom, J. S., Gerke, J. P., Kruglyak, L. A Variant in the Neuropeptide Receptor npr-1 is a Major Determinant of Caenorhabditis elegans Growth and Physiology. PLoS Genetics. 10 (2), 1004156(2014).
- Rosenblatt, M. A central limit theorem and a strong mixing condition. Proceedings of the National Academy of Sciences. 42 (1), 43-47 (1956).
- Boyd, W. A., Smith, M. V., Freedman, J. H. Caenorhabditis elegans as a model in developmental toxicology. Methods in Molecular Biology. 889, 15-24 (2012).
- Nika, L., Gibson, T., Konkus, R., Karp, X. Fluorescent Beads Are a Versatile Tool for Staging Caenorhabditis elegans in Different Life Histories. Genes, Genomes, Genetics. 6 (7), 1923-1933 (2016).
- Stiernagle, T. Maintenance of C. elegans. , Available from: http://www.wormbook.org/chapters/www_strainmaintain/strainmaintain.html (2020).
- Denver, D. R., Morris, K., Streelman, J. T., Kim, S. K., Lynch, M., Thomas, W. K. The transcriptional consequences of mutation and natural selection in Caenorhabditis elegans. Nature Genetics. 37 (5), 544-548 (2005).
- Massie, M. R., Lapoczka, E. M., Boggs, K. D., Stine, K. E., White, G. E. Exposure to the metabolic inhibitor sodium azide induces stress protein expression and thermotolerance in the nematode Caenorhabditis elegans. Cell Stress & Chaperones. 8 (1), 1-7 (2003).
- Kevin, S., Pulak, R. Techniques for Analysis, Sorting, and Dispensing of C. elegans on the COPAS Flow-Sorting System. C. elegans. Methods in Molecular Biology. Strange, K. 351, Humana Press. 275-286 (2006).
- Lee, D., et al. Selection and gene flow shape niche-associated variation in pheromone response. Nature Ecology & Evolution. 3 (10), 1455-1463 (2019).
- Cook, D. E., Zdraljevic, S., Roberts, J. P., Andersen, E. C. CeNDR, the Caenorhabditis elegans natural diversity resource. Nucleic Acids Research. 45, 650-657 (2016).
- Nika, L., Gibson, T., Konkus, R., Karp, X. Fluorescent Beads Are a Versatile Tool for Staging Caenorhabditis elegans in Different Life Histories. Genes, Genomes, Genetics. 6 (7), 1923-1933 (2016).
重印与许可
