评估小胶质细胞和脑巨噬细胞的吞噬特性可为分子谱型研究提供重要的功能维度。本文描述了一种经过验证的实验方案,利用流式细胞术快速、可靠地定量检测从小鼠模型中急性分离的小胶质细胞和脑巨噬细胞对荧光微球及淀粉样蛋白β纤维的吞噬作用。
本文内容
摘要
摘要
小胶质细胞与中枢神经系统(CNS)浸润的巨噬细胞统称为中枢神经系统单核吞噬细胞(CNS-MPs),在包括神经退行性疾病和脑卒中在内的多种神经系统疾病中发挥核心作用。CNS-MPs 参与病理性蛋白、细胞碎片以及神经元突触的吞噬清除过程,这些过程各自依赖不同的分子机制。对这些吞噬特性进行表征,可提供一种功能性读出手段,补充通过传统流式细胞术、转录组学和蛋白质组学方法对小胶质细胞进行的分子谱分析。目前对小胶质细胞吞噬功能的分析主要依赖显微镜观察或小鼠新生小胶质细胞的体外培养。前者取样范围有限,而后者则难以真实反映成年个体 CNS-MPs 在体内的实际状态。本文介绍了一种经优化的实验方案,利用流式细胞术对急性分离的小鼠 CNS-MPs 的吞噬特性进行表型分析。该方法通过机械解离结合密度梯度离心技术,从成年小鼠脑组织中急性分离 CNS-MPs,随后将其与荧光微球或荧光标记的 Aβ 纤维共孵育,洗涤后使用针对表面标志物(CD11b、CD45)的抗体组合进行染色标记。利用该方法,可比较脑内常驻小胶质细胞与 CNS 浸润巨噬细胞的吞噬特性,并进一步评估衰老及疾病病理状态对这些吞噬表型的影响。这一快速检测方法亦有望用于对死后或手术获取的人脑组织中急性分离的人源 CNS-MPs 进行功能性表型分析。此外,通过选择性抑制特定的吞噬通路,还可深入研究不同 CNS-MP 亚群介导吞噬作用的具体机制。
引言
中枢神经系统(CNS)的固有免疫细胞主要由小胶质细胞和浸润的单核细胞/巨噬细胞组成,统称为中枢神经系统单核吞噬细胞(CNS-MPs)1。CNS-MPs 参与阿尔茨海默病(AD)、神经炎症性疾病以及脑卒中等多种神经退行性疾病的发生发展过程2,3,4。CNS-MPs 与星形胶质细胞、周细胞和室管膜细胞共同具有吞噬功能5,6。在稳态状态下,CNS-MPs 负责持续监测局部微环境,清除凋亡细胞碎片和异常蛋白,并通过突触修剪重塑神经元连接7,8,9,10。在阿尔茨海默病等神经退行性病变中,CNS-MPs 会呈现出特定的疾病相关分子和功能表型,发挥包括清除聚集的β-淀粉样蛋白(Aβ)和神经元成分、释放炎症性细胞因子和介质等病理作用,从而表现出复杂的促炎性、有害性以及抗炎性、保护性双重功能11,12,13,14。CNS-MPs 对大颗粒物质、细胞碎片、蛋白质及其他病原颗粒的吞噬作用由其细胞表面表达的特异性受体介导9。这些吞噬通路的异常可导致Aβ清除功能障碍并逐渐累积,最终引发阿尔茨海默病中持续加重的神经元损伤4,9。尽管利用转录组学和蛋白质组学方法对CNS-MPs进行分子谱分析已为理解神经系统疾病中CNS-MPs的分子异质性提供了宝贵见解15,16,但目前仍缺乏对CNS-MPs及其亚群吞噬功能特性的系统性功能表征。对CNS-MPs吞噬功能特性的功能学表征可补充分子谱分析策略,有助于更精确的功能表型鉴定,并为评估可纠正疾病模型中吞噬功能障碍的治疗手段的有效性提供支持17。
传统的中枢神经系统髓系细胞(CNS-MPs)吞噬功能检测方法包括将原代小胶质细胞与荧光标记的底物(如Aβ或乳胶/聚苯乙烯颗粒)共同孵育,随后通过免疫荧光显微镜检测荧光底物的摄取情况,以评估吞噬活性18,19,20。已有充分证据表明,CNS-MPs在长期培养条件下会显著改变其形态特征和转录谱型21,22,这限制了对其在中枢神经系统内代表性状态下吞噬特性的研究。采用功能性流式细胞术对急性分离的活体CNS-MPs进行表型分析,可快速评估其吞噬功能,并且相较于显微镜方法,能够检测更大数量的CNS-MPs群体9,23。此外,流式细胞术无需将CNS-MPs进行体外培养,同时为研究不同CNS-MPs亚群的吞噬特性提供了有效平台。本文描述了利用流式细胞术对急性分离的小鼠CNS-MPs吞噬特性进行表型分析的优化实验方案。将吞噬功能检测与流式细胞术相结合,可实现对CNS-MPs吞噬表型与免疫表型的快速多重分析,从而在单细胞分辨率下揭示CNS-MPs内部吞噬功能的异质性。
方案
所有小鼠实验均在获得埃默里大学机构动物护理和使用委员会(IACUC)批准后进行,并严格遵守美国国立卫生研究院《实验动物护理和使用指南》的规定。
1. 分离当天的准备工作
- 准备一个冰桶,用于在整个分离过程中保持所有试剂、缓冲液和细胞悬液处于低温状态。
- 在灌注前30分钟至1小时,将1×磷酸盐缓冲液(PBS)(至少1 L)置于4 °C预冷,并在灌注和分离过程中始终将1× PBS保持在冰上。
- 配制密度梯度介质的工作浓度(称为35% SIP,参见材料表)。
- 在细胞分离前,预先标记实验中使用的所有锥形管和流式细胞术管,以避免处理时间延误。此外,在灌注前还需准备好分离所需的其他所有耗材,例如40 µm细胞筛、注射器和针头。
2. 成年小鼠小胶质细胞的急性分离
- 将成年小鼠置于含异氟烷(5 mL)的玻璃麻醉诱导舱内,直至小鼠停止呼吸且对后肢足垫夹捏无反应,以实现麻醉。
- 使用26 G针头和10 mL注射器,以30 mL冰冷的1× PBS进行心脏灌注,直至无可见血液。
- 使用手术剪将小鼠断头。用小剪刀剪开皮肤,暴露颅骨。按照文献24所述方法去除颅骨,避免损伤脑组织。立即取出脑组织,并转移至置于50 mL锥形管上方的无菌40 µm细胞筛网上。
- 使用3 mL注射器活塞背面将脑组织压过筛网,机械解离全部脑组织。在解离过程中,每次用2 mL冰冷的1× PBS间歇性冲洗细胞筛网和活塞,确保所有组织均通过筛网。
- 用活塞刮擦细胞筛网底部,将残留悬液收集入锥形管中。用冰冷的1× PBS彻底冲洗细胞筛网,并将悬液倒入50 mL锥形管。
注意:当连续处理多只动物时,将细胞悬液置于冰上,直至进一步处理。 - 加入冰冷的1× PBS,使细胞悬液体积达到30 mL,在4 °C下以800 × g离心5分钟。
- 倾去上清液,避免扰动沉淀,用10 mL移液管将沉淀重悬于6 mL 35% SIP中。将细胞悬液与35% SIP的混合物转移至新的15 mL锥形管,在15 °C下以800 × g离心25分钟,不启用刹车。
注意:重悬过程中需特别注意避免引入气泡。过多气泡可能对细胞得率产生不利影响。 - 小心从离心机中取出15 mL锥形管,避免扰动分层,吸除上层漂浮的髓鞘层。
- 用10 mL移液管将细胞悬液与35% SIP的混合物转移至含有30 mL冰冷1× PBS的新50 mL锥形管中,在4 °C下以800 × g离心5分钟。小心倾去上清液,保留细胞沉淀及500‒800 µL的1× PBS。
- 用p1000移液器轻轻吹打,重悬细胞沉淀,并转移至5 mL圆底管中。向圆底管中加入2 mL冰冷的1× PBS,在4 °C下以1,400 × g离心2分钟。迅速倾去上清液,使含CNS-MPs的细胞沉淀保留在约100 µL的1× PBS中(图1)。
3. 吞噬作用实验设置与流式细胞术染色
- 转移 20 µL≈将重悬的 CNS-MPs 细胞悬液(200,000 个细胞)加入至新的 5 mL 圆底试管中,再加入 80 µ冰浴的1 L× PBS。请勿向此管中添加任何荧光底物或流式细胞术抗体。这些细胞用作阴性对照,以确定流式细胞术分析中CNS-MPs的背景荧光。
- 为评估分离所得CNS-MPs的活力,使用基于胺类的活/死细胞染料(例如Fixable Blue UV)。
- 将剩余的细胞沉淀重悬于 500 µ1 L× PBS 并加入 1 µ除阴性对照外,向每个样品管中加入 L 的重悬染料。
- 轻轻涡旋,用铝箔覆盖管子,并在室温下孵育30分钟。随后,加入1 mL的1× 向每管加入 PBS,轻轻涡旋。
- 以 1,400 × g 离心细胞 × g 4℃下离心2分钟 °C. 快速倒出上清液 并用100 μL重悬细胞沉淀 µ1 升× PBS
注意:基于胺的染料将结合到细胞外的 Aβ 纤维可能干扰吞噬作用的实验结果。其他活/死细胞指示剂可能会干扰 Aβ 纤维的荧光信号。β 纤维/微球。因此,建议仅在初步实验中使用活死细胞指示剂,以确定分离所得CNS-MPs的活力。
- 充分涡旋含有PE-聚苯乙烯微球的试管,并加入2 µL≈200 个微球/细胞)至 100 µ流式管中加入细胞悬液,每管1 L,阴性对照除外。轻轻涡旋各管,确保底物与细胞均匀分布,将圆底管置于37℃的无菌湿化培养箱中孵育30分钟。 °5% CO的C2.
- 轻轻涡旋并孵育阴性对照管,以确保阳性与阴性样本之间的实验条件一致。
注意:如果使用 Aβ 使用 HiLyte488 标记的 Aβ 纤维(fibrils)替代 PE-微球(PE-microspheres),制备荧光标记的 Aβ 纤维β 如先前所述的纤维状物9. A的最终浓度β 纤维的浓度为200 µM,然后稀释以制备新鲜的20 µPBS 中的荧光 Aβ 纤维素 M 储存液β 单体。加入12.5 µ20 L µM储备液Aβ 将单体分别加入含有分离细胞的各管中。
- 轻轻涡旋并孵育阴性对照管,以确保阳性与阴性样本之间的实验条件一致。
- 从培养箱中取出细胞,加入 1 mL 的 1× 向每管加入 PBS,轻轻涡旋混匀。以 1,400 × g 离心细胞 × 4℃下,2分钟内离心,转速为g °C,迅速倒出上清液。用1 mL 1重复洗涤一次× PBS,1,400 × g 离心 × g 2 分钟后,倒掉上清液,将细胞沉淀重悬于 100 µ1 升× PBS
注意:每次离心后,必须将细胞置于冰上,以抑制持续的吞噬摄取。 - 将流式细胞术抗体涡旋混匀,并在微型离心机中离心10 s。向每管细胞悬液中加入1 µL 每种 CD11b-APC/Cy7 和 CD45-PE/Cy7 用于 Aβ 吞噬作用检测,或使用CD45-FITC进行PE-微球吞噬检测。轻轻涡旋混匀各管,并在室温避光孵育30分钟。
注意:用户还可以设置一个单独的试管,加入具有强吞噬活性的细胞(如培养的 BV2 小胶质细胞或腹腔巨噬细胞)作为阳性对照,并用 PE-微球及上述流式细胞术抗体进行处理。该样本的数据可用于在预实验中定义指示真实吞噬作用的阳性对照。 - 孵育细胞的同时,使用四个圆底5 mL流式管设置补偿管。充分涡旋震荡补偿微珠,向每管中加入1滴。向各管中加入1 µ向第一管加入 CD11b-APC/Cy7,向第二管加入 CD45-FITC。添加 1 µ向第三管加入L的PE-聚苯乙烯,第四管保留未染色的补偿微珠。将此第四管用作阴性对照,在流式细胞仪上设置补偿面板。
注意:当 Aβ 若使用纤维用于研究吞噬作用,则在第二个试管中加入CD45-PECy7而非CD45-FITC。加入1 µ向第三个补偿管中加入单独的 FITC 标记流式细胞术抗体或 FITC 二抗(任何物种)各 1 L。这一点非常重要,因为微球无法与 A 结合β 纤维,并会在清洗补偿管时被洗去。 - 让补偿微珠与其相应的抗体孵育至少10分钟。孵育后,加入1 mL的1× PBS 加入各管,1,400 x g 离心 g 4℃下离心2分钟 °C,并迅速倒掉上清液。将补偿管置于冰上,并用铝箔覆盖,直至进行流式细胞术。
- 孵育流式细胞术抗体后,用 1 mL 1× PBS。轻轻涡旋并以1,400 × g离心细胞 × g 4℃下离心2分钟 °C. 迅速倒掉上清液,并用 1 mL 重复洗涤一次 1× PBS。离心后,弃去上清液,并将细胞沉淀重悬于100 µ1 升× PBS
- 将样品管置于冰上,并用铝箔覆盖,直至进行流式细胞术。
注意:使用 1× PBS(pH 7.0,不含 Ca)2+/Mg2+ 实验全程使用流式缓冲液。确保流式缓冲液中不含胎牛血清(FBS),以避免可能的微胶质细胞活化。
4. 流式细胞术与分析
- 仪器设置与补偿
注意:本论文中的实验使用配备紫外、紫色、蓝色、黄绿色和红色激光器的流式细胞仪进行。该实验也可适配仅配备蓝色、黄绿色和红色激光器的三激光流式细胞仪。操作仪器前,用户需接受正式培训。- 补充流动鞘液储液罐并开启细胞仪。使用含有 ddH2O 的 5 mL 圆底流式管对细胞仪进行“引液”。登录连接流式细胞仪的计算机上的分析软件。创建一个“实验”,并选择 FSC、SSC、FITC、PECy7 和 APC-Cy7 作为参数。若使用 PE 微球,则在参数面板中选择 PE 代替 PECy7。
- 构建适当的补偿面板。
注意:在我们的实验中,补偿微球的 FSC/SSC 电压通常约为 350/280,而 CNS-MPs 的 FSC/SSC 电压通常约为 320/260。这些数值可能 因不同流式细胞仪而异,需 在正式实验前进行校准。 - 用 500 µL 1× PBS 重悬各补偿微球和细胞悬液管,短暂涡旋后置于冰上。运行未染色微球的阴性对照管,设定合适的电压,使每种荧光染料直方图的峰值低于 102。运行其他单色补偿管,识别其各自明显的阳性峰。
注意:每种荧光染料的阳性峰与阴性峰之间应至少有半对数(以 10 为底)的差异。 - 从每个补偿管记录 5000 个事件,以便计算机自动计算补偿设置。将补偿设置链接至当前实验25。
- 在样本标签下创建一个新的“管”。轻轻涡旋并运行含有未染色 CNS-MPs 的阴性对照管。调节前向散射和侧向散射电压以捕获目标细胞群。记录事件,并按以下说明对活的 CNS-MPs 进行次级设门。
- 保持参数和电压一致,依次记录后续各管的事件,作为独立文件保存。在将每管上机前,轻轻涡旋混匀。
- 设门策略与吞噬作用的测量
- 绘制初始的单核细胞门以捕获所有 CNS-MPs。这些活的单核细胞必须在下一张图中设门,仅包含单个细胞,排除双联体和三联体。
- 将已设门的单个活 CNS-MPs 群体投射到下一张显示 CD11b 和 CD45 荧光信号的图上。
注意:脑内常驻小胶质细胞通常为 CD11b+CD45中间,而浸润的巨噬细胞为 CD11b+CD45高。可在抗体组合中加入 Ly6c 等额外标记,以更明确地区分炎性单核细胞(Ly6c高 和 CD45高)与小胶质细胞(Ly6c低 CD45中间)。 - 根据 图 2F 所示,对相应细胞群应用适当的设门以进一步研究其吞噬作用。
注意:CNS-MPs 的吞噬作用通过其对 Hilyte488/Alexa488(Aβ)或 PE(微球)荧光信号的摄取来衡量。其各自直方图上出现明显的阳性峰表明 CNS-MPs 已吞噬底物。吞噬物质的数量与荧光强度成正比。因此,多个峰的存在应解释为更高的吞噬水平。这些结果可通过免疫组织化学进一步验证。 - 在流式细胞仪上记录完所有样本管后,将数据文件导出为 .fcs 格式以供进一步分析。
- 统计数据分析
- 使用任意流式细胞术分析软件,结合电子表格和统计分析软件进行所有数据分析。
- 将 .fcs 文件导入分析软件,双击第一个文件。将出现一张 显示所有记录
事件的图。按照 图 2 所示的类似 设门策略,依次对 单个活单核细胞设门 ,并在特定 细胞群(例如 CD11b+CD45中间 小胶质细胞 )中研究吞噬作用(图 2H)。
注意:吞噬指数根据摄取荧光标记 Aβ 纤维或 ≥1 个微球的细胞比例进行评估。如先前定义,低水平吞噬为摄取至少 1 个微球,高水平吞噬为>1 个微球的摄取8,9。根据前期实验,使用细胞松弛素 D 抑制肌动蛋白依赖性过程可完全抑制>1 个微球的摄取,部分抑制 1 个微球的摄取9,并完全抑制 Aβ 摄取,从而证实为肌动蛋白依赖性的吞噬摄取,而非被动结合于细胞表面。免疫细胞化学也证实,微球实验中每个连续的峰代表吞噬微球数量的单位性增加8,9。
结果
为了说明急性分离的中枢神经系统髓系细胞(CNS-MPs)吞噬微球和Aβ42纤维的典型结果,本研究从短暂性大脑中动脉闭塞(MCAO)后同侧半球急性分离获得CNS-MPs8。关于MCAO模型中CNS-MPs吞噬特性的详细信息,请参见先前发表的研究8。简言之,在72小时恢复期后,采用机械解离结合密度梯度离心法从新鲜脑组织中急性分离CNS-MPs,并将其与荧光标记的微球或Aβ纤维共同孵育(图1)。随后,使用针对两种表面标志物CD11b和CD45的荧光标记抗体对CNS-MPs进行染色,并通过流式细胞术分析其对微球或Aβ纤维的吞噬摄取情况(图1)。该方案已被用于研究衰老、进行性神经病理变化以及缺血性脑损伤8,9,26过程中吞噬功能的改变,同时也可用于评估神经免疫调节疗法在体内的作用效果9。
用于数据分析的设门策略如图2A所示。首先通过前向散射和侧向散射的散点图设门,圈选存活的中枢神经系统单核细胞(CNS mononuclear cells),其中包括中枢神经系统髓系细胞(CNS-MPs)以及部分淋巴细胞和中性粒细胞。采用本方案获得的单核细胞活力可达96%,随后可进一步设门排除双联体和三联体,以避免分析中可能产生的偏差(图2B)。在选定单细胞后,根据其表面CD11b和CD45的表达情况鉴定CNS-MPs(图2C)。在此策略下,小胶质细胞表现为CD11b+CD45intermediate,而浸润的巨噬细胞为CD11b+CD45high,淋巴细胞则为CD11b-CD45high。本方案可确保分离得到的CNS-MPs具有高活力。如上所述,可使用可固定的活/死染料(如Fixable-blue UV)对活的CNS-MPs进行可靠地二次设门(图2D),以便后续对目标细胞群进行吞噬功能研究。
通过直方图或散点图分析单个活体CNS-MP中的吞噬作用,分别针对相应的荧光标记物(PE-微球;Hilyte488-Aβ纤维)。如上所述,未添加荧光标记物的样本作为阴性对照,用于识别微球(图2D,灰色直方图)和Aβ纤维摄取(图2E,灰色直方图)的阳性峰。PE微球的吞噬摄取表现为PE荧光的多个峰,每个观察到的峰代表CNS-MP吞噬微球数量的单个单位增加。通过分选摄取后荧光强度的各个独立峰,并结合荧光显微镜观察,可确认第一阳性峰中的细胞吞噬了一个PE微球,第二峰中的细胞摄取了两个微球,而更高阶的峰则具有更强的吞噬能力(图2D)。与PE微球实验不同,在Aβ吞噬实验中仅观察到一个绿色荧光的阳性峰(图2E)。基于阴性未染色对照及细胞松弛素D介导的抑制实验,先前研究也已证实Aβ荧光信号提示该过程依赖于肌动蛋白9。
由于流式细胞术能够获取单个细胞的多个维度数据,因此可将吞噬特性与表面标志物表达(如 CD11b、CD45 等)相结合进行分析。基于流式细胞术相较于传统显微镜方法的这一优势,可在实验完成并获取所有原始数据后,对中枢神经系统单核吞噬细胞(CNS-MP)亚群间吞噬摄取能力的差异进行事后分析。根据 CD11b 和 CD45 的表达情况,CNS-MP 可被划分为小胶质细胞(CD11b+CD45intermediate)和浸润性巨噬细胞(CD11b+CD45high),同时可结合 CD11c、Ly6c 和 Ly6g 等其他标志物进一步细分 CNS-MP 群体。对单个单核细胞进行亚群门控,并比较小胶质细胞、浸润性巨噬细胞和淋巴细胞对 PE 微球和 Aβ 的吞噬摄取情况,结果如图 2F‒H所示。与小胶质细胞和巨噬细胞不同,淋巴细胞(CD11b-CD45high)在所有分离细胞中占比不足<5%,其吞噬活性极低。在 CNS-MP 中,小胶质细胞对 PE 微球的吞噬活性略低于巨噬细胞(图 2G),而 CD45high 浸润性巨噬细胞对 Aβ 的摄取能力则显著高于小胶质细胞(图 2H)。此外,读者可参考利用该方法分析急性分离的老年小鼠以及阿尔茨海默病(AD)和缺血性脑卒中模型小鼠的 CNS-MP 和脾细胞吞噬特性的相关研究文献8,9,26。最后,小胶质细胞对 PE 微球和 Aβ 纤维的摄取机制似乎存在差异9。
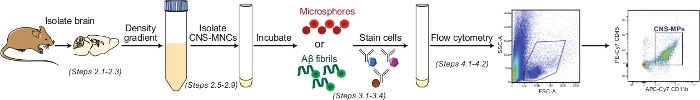
图1:中枢神经系统单核细胞(CNS-MPs)急性分离及吞噬功能检测概览。本流程图总结了从小鼠成年脑组织中分离和纯化CD11b+/CD45+中枢神经系统(CNS)浸润性巨噬细胞(MPs)的实验步骤。首先对新鲜完整的小鼠脑组织进行机械性解离,并通过密度梯度离心获得中枢神经系统单个核细胞(CNS-MCs),随后将细胞与PE标记的微球或Hilyte488标记的Aβ纤维进行孵育。CNS-MCs使用荧光标记抗体染色后,进行流式细胞术分析。请点击此处查看该图的放大版本。

图 2:门控策略及流式细胞术荧光微球与 Aβ 纤维吞噬实验,用于表征急性分离的中枢神经系统髓系细胞(CNS-MPs)。(A)中枢神经系统单核细胞的前向散射(FSC)和侧向散射(SSC)图谱代表性结果。(B)基于 FSC 和 SSC 的中枢神经系统单核细胞(CNS-MCs)单细胞门控策略代表性示意图。(C)利用 CD11b 和 CD45 表面标志物抗体区分单核单细胞。(D)代表性图表显示 CD11b+CD45+ CNS-MPs 中活细胞的比例。(E)代表性流式细胞术直方图显示未染色 CNS-MPs 对藻红蛋白(PE)标记微球吞噬的基线阴性峰(灰色),以及 CNS-MPs 吞噬微球所产生的阳性峰(红色)。多个峰代表细胞吞噬微球数量的不同。(F)代表性流式细胞术直方图显示未染色 CNS-MPs 对 Hiltye488 标记 Aβ 纤维吞噬的基线阴性峰(灰色),以及 CNS-MPs 吞噬 Hiltye488 Aβ 纤维所产生的阳性峰(红色)。(G)利用 CD11b 抗体和 CD45 抗体区分单核单细胞,并显示三种不同的细胞群:CD11b+CD45intermediate(CD11b+CD45int)、CD11b+CD45high 和 CD45only。(H)代表性流式细胞术直方图显示不同 CNS-MP 细胞群对 PE 微球的吞噬情况。(I)代表性流式细胞术直方图显示不同 CNS-MP 细胞群对 Hilyte488 Aβ 纤维的吞噬情况。请点击此处查看该图的放大版本。
讨论
流式细胞术是一种利用荧光标记探针(通常是抗体)来检测细胞表面或细胞内区室中目标蛋白或标志物表达情况的技术。细胞表面或细胞内抗体通常与可被激光激发的荧光染料偶联,这些荧光染料具有独特的发射光谱。通过与这些抗体孵育的细胞,可根据这些标志物的表达模式被分为多个亚群。中枢神经系统单核吞噬细胞(CNS-MPs)主要包括小胶质细胞和浸润中枢神经系统的单核细胞/巨噬细胞。小胶质细胞与中枢神经系统单核细胞/巨噬细胞具有不同的功能和分子特征,且在阿尔茨海默病等疾病状态下这些特性可能进一步发生改变。利用流式细胞术方法,可在最大程度上减少对这些细胞在中枢神经系统内代表性状态的干扰,从而有效表征它们之间的差异。本文描述了一种快速评估急性分离的CNS-MPs吞噬特性的实验方案,避免了传统方法中通常所需的长期培养步骤。
本文所述方法可用于表征中枢神经系统髓系细胞(CNS-MPs)吞噬较大颗粒(如微球)以及蛋白质聚集体(如Aβ纤维)的能力。这两种吞噬过程由不同的受体群介导,如先前研究所示9。此前的研究还证实,这两种底物的摄取均依赖于肌动蛋白,依据是使用细胞松弛素D处理后,细胞无法表现出荧光物质的摄取。与具有吞噬能力的CNS-MPs不同,非吞噬性细胞(如淋巴细胞)在此检测中对微球或Aβ的摄取极少。该流式细胞术检测方法对细胞的取样更为无偏倚,并且相较于传统的显微镜方法,能够更清晰地揭示吞噬特性在亚群水平上的异质性。例如,可以从单个样本中同时比较小胶质细胞、脑浸润巨噬细胞/单核细胞和淋巴细胞,以及其他脑细胞类型(如内皮细胞或星形胶质细胞)的吞噬特性。通过将单细胞水平的吞噬活性与细胞表面表位表达相结合,该检测可进一步用于细分小胶质细胞和巨噬细胞的不同亚表型,并比较稳态下的小胶质细胞与在高龄及神经退行性疾病状态下出现的疾病相关小胶质细胞。先前研究也已表明,CD11b+CD45high巨噬细胞的吞噬能力高于CD11b+CD45int小胶质细胞9。该检测方法还可用于研究在神经退行性疾病9、缺血性卒中8模型中,或任何其他影响脑或脊髓的神经系统疾病模型中,小胶质细胞和脑巨噬细胞吞噬特性的年龄依赖性变化。该检测还可扩展至其他颗粒,包括突触体、神经元、蛋白质聚集体和细菌25。如先前研究所示,也可利用该方法探究特定的吞噬机制。例如,已有数据表明,微球的非特异性摄取需要MARCO和TLR2等受体,而Aβ42纤维的摄取则依赖CD148、CD36和MSR1受体,这凸显了流式细胞术检测在深入理解特定吞噬机制方面的应用价值9。
本实验方案专门用于研究中枢神经系统髓系细胞(CNS-MPs)中的吞噬作用,包括小胶质细胞和浸润的巨噬细胞/单核细胞,因此存在某些注意事项。CNS-MPs 对其微环境极为敏感。通过快速组织处理,最大限度缩短从组织分离到功能检测的总时间,可显著提高这些细胞群体的存活率。其次,采用机械解离法而非酶消化法获得单细胞悬液,有助于保持细胞表面受体的完整性,从而提高检测的灵敏度。本方案在流式细胞术缓冲液中避免使用血清,以防止 CNS-MPs 发生潜在的细胞活化。最后,在与微球或 Aβ 纤维孵育指定时间后,必须将样本置于冰上以终止吞噬活性,这是确保实验一致性和可重复性的关键步骤。该检测方法的局限性在于,分离过程本身产生的剪切应力可能影响功能检测结果,因此研究中必须使用匹配良好的对照,并通过其他正交方法(如免疫组织化学和体外检测)验证关键发现。
通过流式细胞术对中枢神经系统髓系细胞(CNS-MPs)进行功能性吞噬表型分析,其额外优势在于可将实验与荧光激活细胞分选技术相结合,从而分离出不同细胞亚群,用于后续的转录组学或蛋白质组学分析,包括比较高吞噬活性与低吞噬活性的CNS-MPs。该快速方法还有望用于功能表征从新鲜尸检或手术脑组织标本中急性分离的人小胶质细胞和脑巨噬细胞,并可通过抑制特定的吞噬通路,进一步研究脑巨噬细胞亚群在吞噬过程中的具体作用机制。
披露
作者无任何利益冲突需要披露。
致谢
本研究获得了美国国立卫生研究院(NIH)向 Rangaraju 博士(NINDS K08 NS099474-1 和 R01 NS114130-01A1)以及 Rayaprolu 博士(NIA F32AG064862)提供的资助。本研究部分由埃默里大学流式细胞术核心实验室(Emory Flow Cytometry Core, EFCC)支持,该实验室是埃默里整合核心设施(Emory Integrated Core Facilities, EICF)之一,并由埃默里大学医学院提供补贴。额外支持来自佐治亚临床 & 美国国立卫生研究院转化科学联盟(UL1TR002378)。本文内容仅由作者负责,不一定反映NIH的官方观点。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 10倍汉克斯平衡盐溶液(10x HBSS) | ThermoFisher | 14065056 | 4 °C 保存。用于按照方案中所述配制 SIP |
| 1倍汉克斯平衡盐溶液(1x HBSS) | ThermoFisher | 14175095 | 4 °C 保存。用于按照方案中所述配制 35% SIP |
| 1倍磷酸盐缓冲液(PBS) | https://www.sigmaaldrich.com/technical-documents/protocols/biology/western-blotting/buffers-recipes/10x-phosphate-buffered-saline.html 10xPBS 室温保存。将 1 份 10xPBS 与 9 份 MilliQ dH2O 混合,新鲜配制 1xPBS,并在使用前于 4 °C 冷却 1 小时。冷藏前确保 1xPBS 的 pH 值为 7.0。 | ||
| 35% SIP | 配制 20 mL 的 35% SIP,需使用 7 mL SIP 和 13 mL 冰冷的 1× HBSS。配制后置于冰上,待后续处理 | ||
| APC-Cy7 标记大鼠抗 CD11b 抗体 | BD Pharmingen | 557657 | 4 °C 保存,使用时置于冰上,避光。流式细胞术稀释比例为 1:100 |
| FITC 标记大鼠抗小鼠 CD145 抗体 | BD Pharmingen | 553080 | 4 °C 保存,使用时置于冰上,避光。流式细胞术稀释比例为 1:100 |
| LIVE/DEAD 可固定蓝色死细胞染色试剂盒 | ThermoFisher | L34961 | -20 °C 保存。向一管染料中加入 50 µL DMSO,充分涡旋混匀,并以最大转速离心 1 分钟。分装成每份 10µL,-20 °C 保存。每次实验使用新鲜分装的染料,按 1:500 稀释比例加入样品中。 |
| OneComp eBeads 补偿微球 | ThermoFisher | 01-1111-42 | 4 °C 保存,使用前充分涡旋混匀,使用时置于冰上。 |
| PE-Cy7 标记大鼠抗小鼠 CD145 抗体 | BD Pharmingen | 552848 | 4 °C 保存,使用时置于冰上,避光。流式细胞术稀释比例为 1:100 |
| Percoll(pH 8.5–9.5) | Sigma | P1644 | 4 °C 保存。配制 10 mL 标准等渗 Percoll(SIP):使用 9 mL 冷 Percoll 和 1 mL 冷 10× HBSS。 |
| 藻红蛋白偶联微球 | ThermoFisher | F13083 | 4 °C 保存,或使用时置于冰上。 |
| β-淀粉样蛋白(1–42),HiLyte Fluor 488 标记,人源 | AnaSpec | AS-60479-01 | Aβ 纤维的终浓度为 200µM,使用前需进行稀释。-20 °C 保存。每次实验均需新鲜配制工作液。 |
参考文献
- Jordan, F. L., Thomas, W. E. Brain macrophages: questions of origin and interrelationship. Brain Research. 472 (2), 165-178 (1988).
- Heneka, M. T., et al. Neuroinflammation in Alzheimer's disease. Lancet Neurology. 14 (4), 388-405 (2015).
- Jin, R., Yang, G., Li, G. Inflammatory mechanisms in ischemic stroke: role of inflammatory cells. Journal of Leukocyte Biology. 87 (5), 779-789 (2010).
- Hickman, S., Izzy, S., Sen, P., Morsett, L., El Khoury, J. Microglia in neurodegeneration. Nature Neuroscience. 21 (10), 1359-1369 (2018).
- Bellesi, M., et al. Sleep Loss Promotes Astrocytic Phagocytosis and Microglial Activation in Mouse Cerebral Cortex. Journal of Neuroscience. 37 (21), 5263-5273 (2017).
- Sierra, A., Abiega, O., Shahraz, A., Neumann, H. Janus-faced microglia: beneficial and detrimental consequences of microglial phagocytosis. Frontiers in Cellular Neuroscience. 7, 6(2013).
- Janda, E., Boi, L., Carta, A. R. Microglial Phagocytosis and Its Regulation: A Therapeutic Target in Parkinson's Disease. Frontiers in molecular neuroscience. 11, 144(2018).
- Gao, T., et al. Temporal profiling of Kv1. 3 channel expression in brain mononuclear phagocytes following ischemic stroke. Journal of Neuroinflammation. 16 (1), 116(2019).
- Rangaraju, S., et al. Differential Phagocytic Properties of CD45(low) Microglia and CD45(high) Brain Mononuclear Phagocytes-Activation and Age-Related Effects. Frontiers in Immunology. 9, 405(2018).
- Paolicelli, R. C., et al. Synaptic pruning by microglia is necessary for normal brain development. Science. 333 (6048), 1456-1458 (2011).
- Dubbelaar, M. L., Kracht, L., Eggen, B. J. L., Boddeke, E. The Kaleidoscope of Microglial Phenotypes. Frontiers in Immunology. 9, 1753(2018).
- Ransohoff, R. M., El Khoury, J. Microglia in Health and Disease. Cold Spring Harbor Perspectives in Biology. 8 (1), 020560(2015).
- Venegas, C., et al. Microglia-derived ASC specks cross-seed amyloid-beta in Alzheimer's disease. Nature. 552 (7685), 355-361 (2017).
- Sarlus, H., Heneka, M. T. Microglia in Alzheimer's disease. Journal of Clinical Investigation. 127 (9), 3240-3249 (2017).
- Friedman, B. A., et al. Diverse Brain Myeloid Expression Profiles Reveal Distinct Microglial Activation States and Aspects of Alzheimer's Disease Not Evident in Mouse Models. Cell Reports. 22 (3), 832-847 (2018).
- Keren-Shaul, H., et al. A Unique Microglia Type Associated with Restricting Development of Alzheimer's Disease. Cell. 169 (7), 1276-1290 (2017).
- Rangaraju, S., et al. Identification and therapeutic modulation of a pro-inflammatory subset of disease-associated-microglia in Alzheimer's disease. Molecular Neurodegeneration. 13 (1), 24(2018).
- Mutzke, E., Chomyshyn, E., Nguyen, K. C., Blahoianu, M., Tayabali, A. F. Phagocytosis-coupled flow cytometry for detection and size discrimination of anionic polystyrene particles. Analytical Biochemistry. 483, 40-46 (2015).
- Koenigsknecht-Talboo, J., Landreth, G. E. Microglial phagocytosis induced by fibrillar beta-amyloid and IgGs are differentially regulated by proinflammatory cytokines. Journal of Neuroscience. 25 (36), 8240-8249 (2005).
- Pul, R., Chittappen, K. P., Stangel, M. Quantification of microglial phagocytosis by a flow cytometer-based assay. Methods in Molecular Biology. 1041, 121-127 (2013).
- Gosselin, D., et al. An environment-dependent transcriptional network specifies human microglia identity. Science. 356 (6344), (2017).
- Haimon, Z., et al. Re-evaluating microglia expression profiles using RiboTag and cell isolation strategies. Nature Immunology. 19 (6), 636-644 (2018).
- Grasse, M., Rosenkrands, I., Olsen, A., Follmann, F., Dietrich, J. A flow cytometry-based assay to determine the phagocytic activity of both clinical and nonclinical antibody samples against Chlamydia trachomatis. Cytometry A. 93 (5), 525-532 (2018).
- Spijker, S. Dissection of Rodent Brain Regions. Neuroproteomics. Neuromethods. Li, K. 57, (2011).
- Szalóki, G., Goda, K. Compensation in multicolor flow cytometry. Cytometry A. 87 (11), 982-985 (2015).
- Chen, M. J., et al. Microglial ERK activation is a critical regulator of pro-inflammatory immune responses in Alzheimer's disease. J bioRxiv. , 798215(2019).
重印与许可
本文已发表
视频即将推出