追踪单个翻译事件可实现对帽依赖性翻译机制的高分辨率动力学研究。本文中我们展示了一种 体外 基于荧光标记抗体与表位标记新生肽段之间相互作用成像的单分子检测方法。该方法可实现对活性翻译过程中起始及肽链延伸动力学的单分子表征 体外 帽依赖性翻译
方法文章
一个 体外 单分子成像分析帽依赖性翻译动力学实验方法
* These authors contributed equally
本文内容
摘要
摘要
帽依赖性蛋白质合成是真核细胞中主要的翻译途径。尽管已有多种生物化学与遗传学方法被用于深入研究帽依赖性翻译及其调控机制,但对该翻译途径的高分辨率动力学表征仍然缺乏。最近,我们开发了一种体外(in vitro)检测方法,可实现以单分子分辨率测量帽依赖性翻译动力学。该检测基于荧光标记抗体与新生表位标签多肽的结合。通过成像抗体与新生肽–核糖体–mRNA复合物的结合与解离过程,可追踪单个mRNA上的翻译进程。本文中,我们提供建立该检测方法的详细方案,包括mRNA与聚乙二醇化载玻片的制备、翻译的实时成像以及单分子轨迹的分析。该方法能够追踪单个帽依赖性翻译事件,并解析关键的翻译动力学参数,如起始速率与延伸速率。该检测方法可广泛应用于不同的翻译系统,将为帽依赖性翻译动力学及翻译调控机制的体外(in vitro)研究提供广泛支持。
引言
真核系统中的翻译主要通过7-甲基鸟苷(m7G)帽依赖性途径1研究表明,真核生物翻译的起始步骤是限速步骤,也是调控的常见靶点2,3,4. 基于帽结构的翻译机制已通过遗传学方法被广泛研究5,生化6,7,8,结构的9,以及基因组学10 整体方法。尽管这些方法已鉴定出多种调控帽依赖性起始的机制,但由于分辨率的限制,它们只能对异质且不同步的起始事件产生的信号进行集合平均。最近,单个 体内 通过检测荧光抗体与新生多肽上表位的结合,可对翻译事件进行可视化观察11,12,13,14然而,这些新方法在解析单个起始事件方面也存在局限性,因为必须有多个荧光标记的抗体结合到新生肽链上,才能从较高的细胞内荧光背景中分辨出单个翻译事件。在许多生物学相互作用中,解析单个动力学事件为理解复杂的多步骤且重复的生物学过程提供了关键见解,而这些过程在分子水平上难以实现同步。为了更深入地理解帽依赖性起始及其调控机制,亟需能够追踪单个翻译事件动态变化的新方法。
我们最近开发了一种 体外 一种以单分子分辨率测量帽依赖性起始动力学的检测方法15考虑到该起始途径中涉及的大量已知和未知蛋白质因子3,16单分子检测技术被开发为可与现有技术兼容 体外 无细胞翻译系统,可保留细胞因子并维持高效的翻译活性17,18,19,20,21,22,23,24,25此外,无细胞翻译系统的使用使得单分子观测结果与以往的群体实验结果之间能够进行更为兼容的比较。该方法可将新的单分子动力学信息直接整合到现有的帽依赖性起始机制框架中。为建立单分子检测体系,对传统的无细胞翻译系统进行了三方面的改造:在报告mRNA开放阅读框(ORF)的起始位置插入一段编码表位的序列;对报告mRNA的3′端进行生物素标记,以实现mRNA末端与单分子检测表面的固定;并在翻译提取物中添加荧光标记的抗体。这些改造仅需常规的分子生物学技术及普遍可得的试剂即可完成。此外,这些修饰以及单分子成像条件均能保持群体无细胞翻译反应的翻译动力学特性15.
在此实验中(图1),5′端加帽且3′端生物素标记的报告mRNA被固定于流式室内的链霉亲和素包被检测表面。随后将流式室填充含有荧光标记抗体的无细胞翻译混合物。当mRNA翻译进行至表位序列下游约30–40个密码子时26,27,表位从核糖体出口通道暴露出来,可与荧光标记的抗体发生相互作用。该相互作用迅速,通过单分子荧光成像技术可检测到这一过程,从而在无细胞翻译活跃进行时以单分子分辨率追踪翻译动力学。该检测方法应具有广泛的应用价值 体外 帽依赖性翻译动力学及其调控机制的研究,特别是针对具有功能性整体组分的系统 体外 检测
建立该单分子检测方法的前提是具备一个可正常工作的无细胞体外翻译体系,该体系可使用 commercially available 的翻译提取物,或按照先前描述的方法制备的提取物来实现。28真核生物翻译提取物可从多种细胞中获得,包括真菌、哺乳动物和植物细胞28成像需要配备可调激光强度和入射角的全内反射荧光显微镜(TIRF)、电动样品台、自动化流体系统以及样品温度控制装置。此类要求在现代 体外 单分子TIRF实验可采用不同方式实现。本文所述实验使用一种基于物镜的TIRF系统,该系统由 commercially available 显微镜、软件及附件组成,具体清单见下文 材料表.
方案
1. 报告基因mRNA的制备
- 通过在编码“无标签”报告mRNA的DNA转录模板中插入一个编码N端表位标签的序列,对该模板进行改造,以生成编码“带标签”报告mRNA的DNA转录模板(图2A).
注意:由于3xFLAG/抗FLAG相互作用具有更高的灵敏度且3xFLAG标签较短,建议本实验采用该组合。然而,本实验也可兼容其他表位/抗体组合。 - 使用线性化DNA模板和标记与非标记RNA的合成 体外 转录试剂盒(参见 材料表)。通常使用 10–20 pmol 的 体外 转录的RNA足以进行后续的RNA加工,从而实现系统的单分子研究。
- 对RNA的5′端进行加帽(图2B)与一个 m7G加帽试剂盒(参见 材料表按照制造商的建议进行。
- 生物素标记RNA 3′末端(图2B) 使用生物素标记试剂盒(参见 材料表按照试剂盒说明书进行操作。采用苯酚-氯仿抽提法纯化RNA,随后使用离心柱进一步纯化。用10–20 μL无RNase的水洗脱RNA。未加帽的输入RNA回收率约为40–50%。
- 通过变性丙烯酰胺凝胶电泳及RNA染色评估RNA的完整性与浓度,方法如前所述29.
- 进行大规模无细胞翻译30 使用3′端生物素标记的报告mRNA,以确认修饰后的mRNA保留了感兴趣的翻译特性。例如,可通过在无帽和有帽报告mRNA的全细胞无细胞翻译反应中测量并比较报告基因活性来验证帽依赖性翻译(参见 代表性结果).
2. 流动腔室的制备
- 根据显微镜物镜规格说明书选择合适的盖玻片厚度。对于物镜型或棱镜型全内反射荧光(TIRF)成像系统,选择玻璃或石英载玻片31分别。
- 进行盖玻片和载玻片的清洗、硅烷化、聚乙二醇化(PEGylation)及腔室组装 参照 Chandradoss 等人所述的实验方案32 并作如下修改。
- 将带有钻孔的载玻片在10%碱性液体洗涤剂(v/v)中清洗20分钟,并辅以超声处理。从后续所有清洗步骤开始,将载玻片与盖玻片合并处理。
- 省略丙酮清洗步骤。将Piranha蚀刻孵育时间从20分钟延长至1小时。第一轮PEG化孵育3小时。第二轮PEG化使用MS(PEG)进行孵育。4 3小时。
3. 仪器设备准备
- 在进行单分子实验前至少3小时,打开显微镜培养箱并将气流调至低速,以避免对实验造成过度的声学干扰。将培养箱温度设定为无细胞翻译系统的最佳工作温度。
注意:翻译过程对温度极为敏感。每种细胞提取物系统均有其特定的最佳反应温度。反应温度的表征是构建整体无细胞翻译系统的关键步骤。本单分子检测应在与相应整体翻译条件相同且最优的温度下进行。 - 在进行单分子实验前至少1小时,按下激光器箱后方的激光电源按钮开启激光,转动激光安全钥匙,并按下启动按钮;开启显微镜,轻触触摸屏控制面板,选择成像模式、物镜和滤光片组。
- 通过按下电源按钮,依次开启EMCCD相机、Prior载物台控制器和注射泵。开启计算机,并运行软件 Andor Solis(软件1)以控制EMCCD相机,TirfCtrl(软件2)以控制激光器,PriorTest(软件3)以控制电动载物台,以及Coolterm以控制注射泵。在开始数据采集前,确保相机已冷却并稳定至其指定的工作温度。
- 在软件2中,确认已为激光波长、物镜类型以及玻璃和样品的折射率设置正确的参数。点击连接按钮。为设定激光强度,点击激光波长旁边的控制按钮,然后在弹出的激光控制窗口中拖动强度滑块。通过拖动光纤位置滑块或输入相应的穿透深度,将激光设定至所需角度。确保勾选快门框,以便在不进行成像时使激光保持在关闭模式。
注意:通过勾选或取消勾选快门框来打开或关闭激光快门。在初次建立检测体系时,应测试不同的激光强度和入射角度,以实现最佳的单分子检测效果。最佳激光强度需在获得明亮的单分子荧光信号与避免荧光染料快速漂白之间取得平衡。应将入射角度调至超过临界角,以降低来自扩散标记抗体的高荧光背景,直至能清晰分辨与mRNA结合的抗体。作为参考,在一项研究中15,使用标记比率为每抗体2–7个染料的Cy3标记抗FLAG抗体时,将532 nm激光在物镜处设定为10 μW,激光入射角设定为71.5°。 - 在软件1中,在采集模式下选择动力学模式,输入曝光时间、动力学序列长度和EM增益值等参数。选择保存路径并为数据图像文件命名。
- 将注射泵设定为中等至较快的流速,用于后续的管路清洗步骤。
用移液器吸取一份70%乙醇至微量离心管中,将注射泵管路末端插入乙醇溶液,使用Coolterm在“吸取”和“推出”模式之间切换三次,以清洗管路。随后用无RNase水重复该步骤。
注意:管路长度必须足够长,以确保在第5步中加入的翻译混合物仅接触管路,而不接触注射器活塞。此处的冲洗体积应大于第5步中推出的翻译混合物体积,以确保第5步中的翻译混合物始终与已消毒的管路接触。 - 完成最后一次水冲洗并推出液体后,用干净的纸巾轻拭管路末端,去除管路内部残留的水分。将管路末端置于干净的微量离心管中,保持其干燥状态。
4. 3′端生物素标记mRNA的固定
- 在使用前,将细胞提取物和翻译反应混合液保持在干冰上冷冻。其余冷冻试剂解冻后置于冰上保存。
- 将流动室放入显微镜样品架中,盖玻片一侧朝下,并用胶带固定。对于未使用的流道入口和出口,使用胶带覆盖密封。
- 向流道中加入相对于流道体积1.5倍体积的0.2 mg/mL链霉亲和素溶液(此比例同样适用于步骤4和步骤5中的其他操作),室温孵育10分钟。
- 为去除未结合的链霉亲和素,每次用3倍流道体积的T50洗涤缓冲液(20 mM Tris HCl,pH 7.0,50 mM NaCl,0.2 U/μL RNase抑制剂)洗涤流道,共洗涤三次。
注意:必须防止废液倒流回流道中。如果流道出口未连接至废液收集管,请在出口附近放置折叠的纸巾以吸收流出的液体。 - 将翻译提取物和混合液从干冰转移至冰上,使其解冻。
- 在物镜上滴加一滴浸油。将装有流动室的显微镜样品架放入显微镜载物台。调节物镜接近盖玻片,直至物镜上的浸油与盖玻片接触。移动样品台,使流道位置正对物镜镜头下方。
- 在软件2中打开激光快门,并调节激光强度。
- 在显微镜控制触摸屏上,选择 Focus 选项卡,点击 Focus Search 和 Start 按钮。当成功找到焦平面时会发出蜂鸣声。
- 在软件1中以 Live 模式成像流道表面。通过触摸屏上的微调步进控制调节物镜位置,优化焦距以获得更清晰的图像。
- 在软件3中移动载物台,评估流道检测表面不同区域的荧光背景水平。若荧光背景较低,可继续实验;若荧光背景过高,则应考虑弃用该流动室。
- 在软件2中关闭激光快门。
- 用移液器吸出流道中的T50洗涤缓冲液,立即加入2倍体积的生物素化mRNA溶液至流道中,孵育15分钟。
注意:对于每一批制备的mRNA,应测试mRNA浓度和孵育时间,以达到单分子检测所需的mRNA表面密度。合适的mRNA表面密度可使抗体结合后产生的荧光点重叠率不超过约5%(参见 代表性结果)。作为起始参考,建议使用浓度为2–20 nM的生物素化mRNA。 - 每次用3倍体积的翻译兼容缓冲液洗涤流道,共洗涤三次。
5. 用于单分子检测的翻译反应体系配制及向流动通道的递送
- 在冰上,按照步骤1.7的批量翻译方案,在微量离心管中配制3倍体积的翻译混合液30,但省略mRNA,并补充优化浓度的荧光标记抗体。短暂离心微量离心管,使翻译混合液沉降至管底。
注意:在建立检测方法时,需测试不同抗体浓度。最佳浓度应表现为抗体在检测表面的非特异性结合量较低,且对新生肽段的结合速度较快(有关检测校准的详细信息,请参见步骤7.1和7.2)。 - 将翻译混合液转移至0.7 mL微量离心管盖内。将注射泵设置为“吸取”模式,将泵管末端插入翻译混合液中,启动注射泵吸取,使翻译混合液进入泵管。随后将注射泵切换至“分配”模式,并将流速调节至适合输送翻译混合液的最佳速率。
注意:在将翻译混合液转移至泵管过程中,应避免产生气泡。吸取时避免将翻译混合液吸入未在步骤3.6中进行灭菌和冲洗的管段。在建立检测方法时,需测试不同的输送流速以确定最佳流速(有关检测校准的详细信息,请参见步骤6.2)。 - 若泵管末端与翻译混合液之间存在间隙,启动注射泵,使翻译混合液流至管端,然后停止注射泵。
- 将泵管末端插入流动通道的入口。连接时应避免将气泡引入翻译混合液中。通过将定制的金属支架拧紧在显微镜样品载物板上,以固定连接部位。检查显微镜的焦平面及成像区域的荧光情况。
注意:可使用先前描述的定制部件将泵管夹紧在流动池上33。其他类型的流体系统也可用于本检测34。连接前后视野应基本一致。若连接后出现更多荧光点,则翻译混合液可能从输送管路泄漏。根据具体应用,泄漏了翻译混合液的通道可能需要弃用。 - 确认视频采集参数设置正确,并已输入适当的文件名和保存路径。
- 移动载物台,使成像区域位于流动通道检测表面的中心。在显微镜控制触摸屏上,选择连续自动对焦(Continuous AF)选项卡,点击对焦搜索(Focus Search)和开始(Start)按钮,以在实验过程中维持焦平面位置。当成功实现对焦时,会发出蜂鸣声。
- 在软件2中打开激光快门。在软件1中点击采集信号(Take Signal)按钮开始记录。记录约5秒后,在Coolterm中输入运行(Run)命令,将翻译混合液送入流动通道。以0.5–2秒/帧的时间分辨率持续记录,最长可达2小时。
注意:最大数据采集时长取决于翻译提取物随时间推移失去活性的速度,可通过使用荧光素酶报告基因mRNA进行批量无细胞翻译反应,并在不同时间点测定翻译反应中的荧光素酶活性来方便地表征35。 - 数据采集完成后,关闭激光,关闭显微镜控制触摸屏上的连续自动对焦(Continuous AF),并拆下流动池上的管路。
- 用移液器从流动通道入口吸出翻译混合液,转移至微量离心管中,并将管子浸入液氮中快速冷冻。随后于-80 °C保存。
- 用无RNase水冲洗注射泵管路3次,再用70%乙醇冲洗3次。最后将70%乙醇吸入注射泵管路中用于保存。
- 关闭显微镜及所有附件设备,清理实验台。
6. 数据分析
注意:本实验的数据显示分析需要采用单分子生物物理研究中的常用方法。所有计算密集型步骤均可使用现有的算法和软件完成(相关步骤下文已提供参考文献)。
- 可选:如适用,将获取的图像序列文件转换为与所选图像处理软件或编程语言兼容的格式。
- 确定翻译反应的起始点及试剂交换时间。
注意:由于翻译混合液中存在扩散的荧光抗体,成像区域的背景荧光强度在通道内从翻译兼容缓冲液切换至翻译混合液的过程中会逐渐升高。翻译反应的起始点定义为试剂交换完成的时刻。该完成时刻可通过在递送翻译混合液期间测量背景荧光强度,并识别荧光强度增长趋于平稳的时间点来确定15,如下所述。- 计算每帧图像的总荧光计数,并绘制相应的时间变化曲线。在时间曲线图中识别总荧光信号的突然上升阶段。
注意:总荧光信号的增加是由于试剂交换过程中荧光标记抗体浓度逐渐升高所致。 - 识别总荧光上升阶段的终点,并将此时间点设为翻译反应的起始点(即时间零点)。同时确定总荧光上升阶段的起始和终止时间点,并将两者之间的时间差定义为试剂交换时间。
注意:试剂交换的总持续时间取决于流动通道的尺寸和所选流速。在试剂交换完成前,部分翻译因子可能已开始与mRNA结合,这可能会降低所测定首轮起始时间的分辨率。因此,建议在建立实验体系时测试不同流速,并选择能够在3–4秒内完成试剂交换的流速,以匹配0.5–2秒/帧的数据采集速度。
- 计算每帧图像的总荧光计数,并绘制相应的时间变化曲线。在时间曲线图中识别总荧光信号的突然上升阶段。
- 可选:进行视频漂移校正。
注意:由于显微镜部件及附件可能发生漂移,数据图像中结合抗体的位置可能随时间发生变化。若在视频中可明显观察到漂移现象,则在进一步数据分析前需进行校正。目前已有多种空间漂移校正算法和脚本可供使用36,37,38。- 在每一帧图像中,寻找像素计数的局部最大值,以像素级精度确定每帧中结合抗体的位置。设定像素计数阈值,确保仅选择明显高于背景噪声的信号点。
- 计算相邻两帧图像之间各个抗体位置在每个方向上的变化量。
- 分别针对每个方向,绘制相邻帧间抗体位置变化的直方图,并对每个直方图进行高斯拟合,将峰中心位置作为相邻帧之间的方向性漂移量。
- 为抵消观测到的漂移,将每帧图像沿相反方向移动相应的漂移量。
- 构建单分子轨迹。
注意:已有检测/追踪软件可用于识别亮斑并从图像序列中提取其荧光强度39,40。- 按照步骤6.3.1所述方法确定抗体位置。
注意:建议进行视觉检查,以确保所选阈值不会导致颗粒过度或不足识别。可通过将识别出的质心位置叠加至各帧图像上,并直观评估其匹配程度来实现(参见代表性结果)。 - 整合所有帧中识别出的颗粒,并去除重复的颗粒位置。
- 目视检查结合抗体的图像,选择一个正方形区域,该区域包含明显高于背景且代表单个结合抗体的像素。
注意:点扩散函数(即单分子对应的正方形大小)由光学系统和探测器像素尺寸决定。 - 对于每个颗粒位置,通过计算其周围正方形区域内所有像素的总强度,逐帧构建单分子轨迹。轨迹需针对每个位置、每一帧以及整个数据视频进行构建。
- 按照步骤6.3.1所述方法确定抗体位置。
- 可选:应用非线性前后向滤波器41以降低单分子轨迹中的背景噪声。
- 可选:使用现有的步进检测算法42,43,44,45对轨迹进行数字化处理。
注意:步进检测算法的选择取决于单分子动力学的复杂程度。在最简单的情况下(即仅存在孤立核糖体翻译,无多聚核糖体形成)且信噪比较高时,对荧光计数应用阈值即可充分识别单分子轨迹中抗体结合与解离事件的发生时间。建议对每种实验条件下至少100条轨迹进行目视检查,以确保步进检测策略正确识别了轨迹中的步进事件。 - 通过数字化轨迹或对未数字化轨迹应用阈值,确定每条轨迹中首次抗体结合事件的时间(即首次到达时间,t1)。
注意:可在不同翻译条件下比较首次到达时间分布的中位数。或者,可将首次到达时间分布拟合为偏移的(三参数)对数正态函数,以确定其平均值15 <t1>。由于首次到达时间分布通常呈偏态且具有长尾特征,不应直接对观测到的首次到达时间取算术平均值来计算均值。 - 可选:停留时间分析及平均肽链合成速率的计算。
- 利用数字化轨迹识别每条轨迹中的单核糖体(单个核糖体)翻译事件,并通过计算相应抗体结合与解离事件之间的时间差,得到单次结合事件的停留时间。
注意:当多个分子事件在时间上重叠时,用于轨迹数字化的步进检测算法通常可靠性较低。因此,建议在停留时间分析中排除多聚核糖体事件。对于富含多聚核糖体事件而单核糖体事件较少的高活性翻译系统,可使用标记与未标记抗体的混合物,以提高在单分子轨迹中观察到孤立翻译事件的概率。 - 将分布拟合为对数正态函数,并利用拟合函数计算平均停留时间。
注意:由于停留时间分布通常呈偏态且具有长尾特征,不建议通过直接平均观测到的停留时间来计算均值。 - 通过从开放阅读框(ORF)密码子总数中减去表位氨基酸长度与35(新生肽链在核糖体出口通道内的平均氨基酸长度)之和,确定在抗体结合停留期间翻译的氨基酸数量。
- 为确定平均肽链合成速率,将翻译的氨基酸数量除以平均停留时间。
- 利用数字化轨迹识别每条轨迹中的单核糖体(单个核糖体)翻译事件,并通过计算相应抗体结合与解离事件之间的时间差,得到单次结合事件的停留时间。
- 可选:计算平均首轮起始时间(<t1_I>)。
注意:在起始动力学研究中,通常有意保持起始位点序列环境和编码序列等起始与延伸条件一致。因此,步骤6.7中获得的平均首次到达时间<t1>可直接用于计算不同条件下首轮起始动力学的变化。以下校正仅在需要确定首轮起始时间的实际数值时才必要。- 将表位长度与35(新生肽链在核糖体出口通道内的平均氨基酸长度)之和除以平均肽链合成速率(来自步骤6.8.4),计算该N端区域的平均肽链延伸时间(<t1_tag>)。
- 由于首次到达时间等于首轮起始时间与t1_tag之和,因此从平均首次到达时间<t1>中减去<t1_tag>,即可得到平均首轮起始时间<t1_I>:<t1_I> = <t1> - <t1_tag>
7. 检测校准
注意:在首次建立该检测方法时,需执行以下校准步骤。
- 为检测抗体结合特异性,分别对未带标签和带标签的 mRNA 执行第 4 和第 5 节中的实验步骤(图 2)。在含有相应 mRNA 的通道中,抗体结合水平分别代表抗体对检测表面的非特异性结合程度以及对新生肽段的特异性结合程度。
注意:建议特异性结合与非特异性结合的比值应 >10,可通过不同的表面钝化策略、较低的抗体浓度或较高的 mRNA 表面密度来提高该比值。 - 为测量抗体结合速率,在第 4 步和第 5 步之间增加一个额外步骤。
- 在完成第 4 步后,将通道与不含抗体的翻译混合物孵育,以预先生成 mRNA/核糖体/肽段复合物。
- 随后进行第 5 步,将含有抗体的翻译混合物注入通道中。
- 通过对首次到达时间直方图进行指数拟合,量化抗体对预先生成的新生肽段的平均结合速率。
注意:抗体对预先生成肽段的结合应迅速,通常在数秒量级,且应快于翻译动力学过程。可使用较高浓度的抗体以提高抗体结合速率。
- 荧光标记抗体的光稳定性。
- 按照第 2 步的方案制备载玻片,但跳过 PEG 化步骤。在硅烷化处理后组装流动室。硅烷涂层可有效促进抗体非特异性地结合至检测表面。
- 将荧光标记的抗体加入通道中,使其在检测表面达到单分子密度的非特异性结合。首先将荧光标记抗体用 T50 洗涤缓冲液高度稀释后加入,随后逐步提高抗体浓度,直至达到所需的单分子密度。
- 对检测表面进行成像,直至大多数抗体荧光信号不再可检测。
- 绘制随时间变化的可见抗体总数曲线,以评估因荧光染料光漂白导致的抗体荧光信号衰减速率。
注意:抗体标记通常使每个抗体携带多个荧光分子。单个抗体在所有连接的荧光染料均发生光漂白之前仍可被检测到。
结果
按照所述方案,可在3'端固定化的报告mRNA进行活跃的无细胞翻译过程中,以单分子分辨率对单个抗体与新生N端标记多肽的相互作用进行成像(图1)。本研究使用三种合成mRNA进行了一项最小化的示范实验:LUC(编码无标签的荧光素酶)、LUCFLAG(编码3xFLAG标签荧光素酶)以及hp-LUCFLAG(在5'前导区含有稳定茎环结构的LUCFLAG)(图2C)。使用编码荧光素酶的mRNA可实现单分子观测结果与整体发光测量数据之间的比较。通过变性聚丙烯酰胺凝胶电泳(PAGE)和RNA染色评估3'端生物素化mRNA的完整性。高质量的mRNA应呈现单一清晰条带,不应出现额外的快速迁移信号(图3A)。本实验采用酿酒酵母(Saccharomyces cerevisiae)翻译提取物,其制备方法依据先前报道并经过修改的方案3015。利用酵母提取物和生物素化LUCFLAG mRNA进行无细胞翻译反应的整体荧光素酶活性测量显示,含有m7G帽结构的mRNA相比无帽结构mRNA可显著促进LUCFLAG mRNA的翻译(图3B)。
对于单分子成像,翻译反应体系中添加了67 nM的Cy3标记抗FLAG抗体(Cy3-αFLAG)。该抗体具有较高的标记比率,每个抗体分子上带有2-7个染料分子。532 nm激光在物镜处的功率设定为10 μW。激光入射角设定为71.5˚,高于本实验装置的临界角63.8˚。在含有mRNA但未添加翻译反应混合物的检测表面,观察到极低水平的荧光信号(图4A)。对于尺寸约为2 mm(宽)× 50 μm(深)× 24 mm(长)的微流道,以150 μl/min的流速输送试剂时,试剂交换时间为3–4秒。在翻译反应混合物输送后5秒内,由于荧光抗体的扩散,背景荧光水平上升。在向含有LUCFLAG mRNA的微流道中加入翻译反应混合物约2分钟后,视野中开始出现Cy3荧光点,并持续累积约30分钟(图4B)。使用不含3xFLAG标签的LUC mRNA检测非特异性抗体结合水平(图2C),结果显示其保持在极低水平15。在优化的激光入射角下,mRNA/核糖体/肽链结合的Cy3-αFLAG信号清晰可见;而在较低的激光入射角下,高背景荧光可能掩盖目标信号(图4C)。
为分析Cy3-αFLAG结合事件,需对整段视频中选定的Cy3-αFLAG斑点(图5A)逐帧计算其荧光强度,然后连接各帧数据形成强度轨迹(图5B)。原始轨迹可能呈现噪声较多,可使用非线性前后向滤波器进行优化,以降低背景噪声41。进一步优化可采用步进检测算法对轨迹进行数字化处理42。在所有轨迹中,由于翻译混合物中存在扩散的荧光抗体,在试剂更换过程中会普遍出现背景荧光水平的上升(图5B)。抗体与新生多肽链的结合会导致荧光强度瞬时升高,而抗体/多肽复合物从mRNA上的解离则会引起荧光强度瞬时下降(图5B)。
抗体结合的停留时间可用于测量开放阅读框的总解码时间。开放阅读框的停留时间直方图 LUCFLAG mRNA 符合对数正态分布(图6A) 并产生每秒 2.5 ± 0.1 个氨基酸的肽链合成速率15. 首次到达时间直方图拟合为平移后的(三参数)对数正态函数(图6B)。首个肽链合成事件的到达时间直方图分布广泛,表明单个mRNA的翻译活性具有高度异质性。该直方图显示,单个mRNA上首次肽链合成事件的 LUCFLAG mRNA 分子的合成可能在翻译混合物递送后最早2分钟、最晚20分钟开始图6B)。与翻译相比 LUCFLAG mRNA,首次到达时间直方图与 hp-LUCFLAG mRNA 翻译显示出较慢的抗体结合(图7A)。然而,利用这些相同mRNA的无细胞翻译反应进行整体发光测量,并不能分辨翻译动力学的差异(图7B,C这些结果表明,与整体动力学荧光素酶活性检测相比,我们的方法在检测起始动力学微小变化方面具有更高的分辨率。
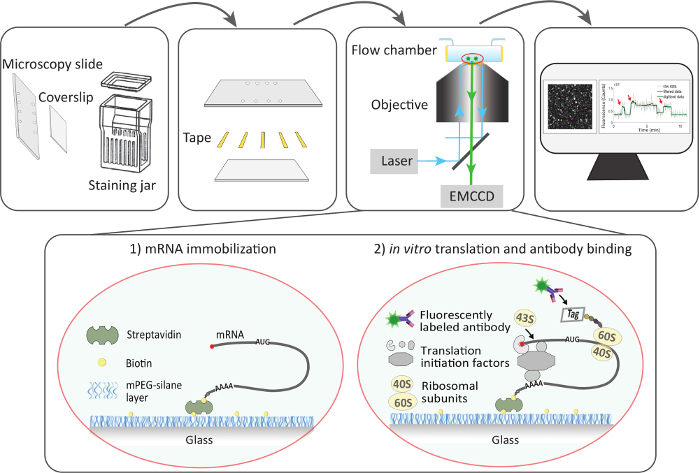
图 1:实验流程图。 示意图展示了盖玻片和载玻片的制备、单分子反应室组装、TIRF 成像与数据采集以及数据分析步骤。TIRF 成像步骤包括 mRNA 在流动通道中固定和翻译过程的示意图。图中还标示了检测表面组分、荧光标记抗体以及细胞提取物组分。请点击此处查看此图的放大版本。
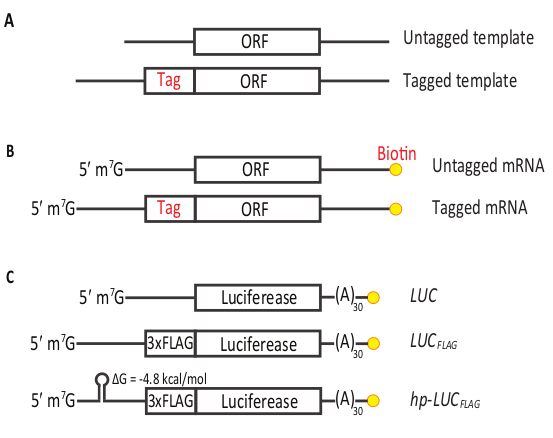
图2:单分子检测中的mRNA设计。(A)为了将整体翻译检测改造为单分子检测,对整体报告基因ORF的DNA模板进行了修饰,插入了N端表位标签序列,从而生成编码带标签报告蛋白的ORF。图中显示了ORF及N端标签编码区域。(B)mRNA在5′端进行m7G加帽,以实现帽依赖性翻译,并在3′端进行生物素化,以便将其固定于单分子检测表面。图中在无标签和带标签的ORF RNA上标出了5′-m7G帽结构和3′-生物素。(C)使用编码荧光素酶的mRNA来验证单分子检测方法。LUC 和 LUCFLAG mRNA 分别编码不含和含有N端3xFLAG标签的荧光素酶。hp-LUCFLAG mRNA 还包含一个额外插入序列,可在 LUCFLAG mRNA 的5′-前导序列中引入发夹二级结构。图中标出了发夹结构的热稳定性、3′-poly(A)尾和3′-生物素。这三种mRNA均包含一个30 nt的3′-poly(A)尾,以提高帽依赖性翻译的效率。请点击此处查看该图的放大版本。
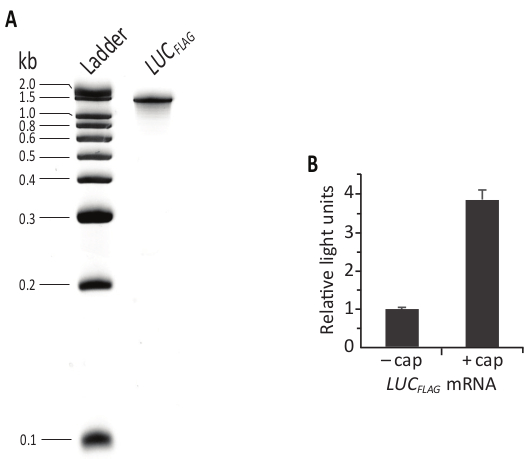
图3:单分子报告mRNA的完整性及整体翻译情况。(A)单分子报告mRNA的变性PAGE成像结果。将5′-m7G加帽并3′-生物素标记的LUCFLAG mRNA与RNA ladder一同上样至变性10%聚丙烯酰胺凝胶中。(B)单分子报告mRNA在整体无细胞翻译反应中保持5'帽依赖性。将缺失(–cap)或含有(+ cap)5′-m7G帽结构的3′-生物素标记LUCFLAG mRNA在酿酒酵母(S. cerevisiae)翻译提取物中于25 °C孵育30分钟进行翻译。通过两次独立反应测定荧光素酶活性,并以–cap mRNA的活性为1.0进行归一化处理。误差线表示均值的标准差。请点击此处查看该图的放大版本。
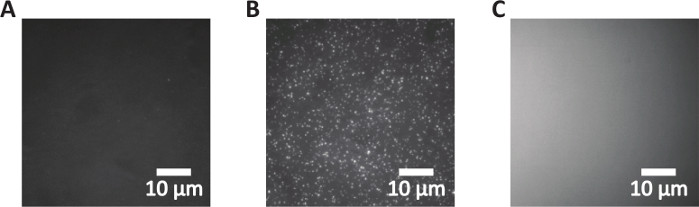
图4:含有固定化mRNA的检测表面成像。(A)在无翻译反应混合物条件下的背景荧光。(B)在翻译反应混合物加入后30分钟,采用优化的激光入射角所观察到的Cy3荧光点。(C)在翻译反应混合物加入后30分钟,采用较低激光入射角所成像的视野。请点击此处查看该图的放大版本。
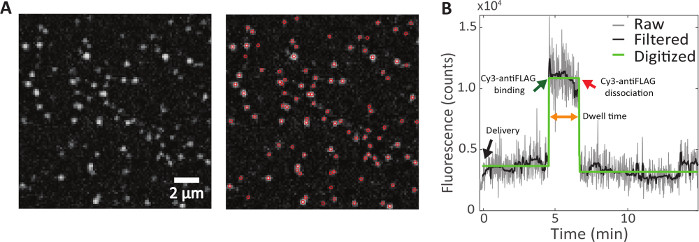
图5:图像分析。(A)视野中未进行(左图)和已进行(右图)斑点筛选的Cy3斑点。(B)选定Cy3斑点的单分子轨迹示例。黑色箭头表示在加入翻译反应混合物时,由于抗体扩散导致背景荧光上升。绿色箭头表示Cy3-αFLAG结合后荧光强度突然增强。红色箭头表示Cy3-αFLAG/新生肽段从mRNA上解离后荧光强度突然下降。双向箭头表示Cy3-αFLAG结合事件的停留时间。图中同时标示了原始数据、滤波后数据和数字化数据。请点击此处查看该图的放大版本。
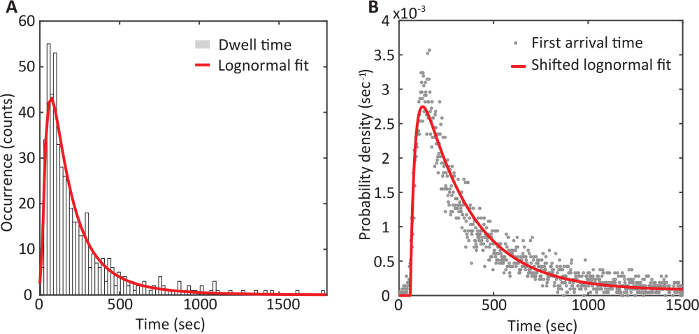
图 6:Cy3-αFLAG 与 LUCFLAG mRNA 翻译的结合动力学分析。(A)Cy3-αFLAG 结合停留时间直方图符合对数正态分布。(B)Cy3-αFLAG 结合首次到达时间直方图符合偏移(三参数)对数正态函数。经许可改编自 Wang 等人15。请点击此处查看此图的放大版本。
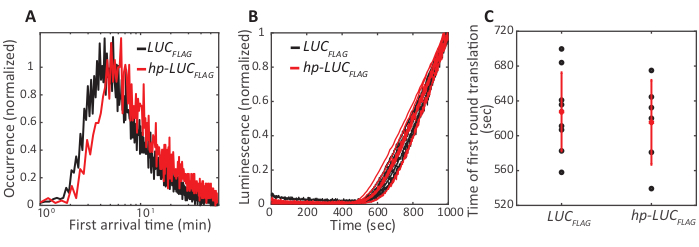
图7:单分子检测方法在起始动力学分析上的分辨率高于整体发光检测方法。(A)Cy3-αFLAG结合LUCFLAG和hp-LUCFLAG mRNA翻译过程中的首次到达时间直方图显示,mRNA 5′-前导区中的小发夹结构导致翻译起始速度减慢。轨迹总数N = 10650(LUCFLAG),来自3个数据集的合并结果;N = 4079(hp-LUCFLAG),来自2个数据集的合并结果。(B,C)整体荧光素酶活性检测的动力学测量未能分辨LUCFLAG(N = 9个数据集)与hp-LUCFLAG(N = 6个数据集)mRNA翻译在起始动力学上的差异。(B)整体发光动力学曲线。(C)通过高斯拟合对(B)中发光动力学曲线的二阶导数进行分析,从而确定首轮翻译时间的散点图,方法详见Vassilenko et al.46。图(C)中的红圈和红线分别表示计算所得首轮翻译时间的平均值和标准差。改编自Wang等15,经许可使用。请点击此处查看该图的放大版本。
讨论
与典型的相比 体外 TIRF单分子实验,此处所述检测方法因使用细胞提取物和高浓度荧光标记抗体而更加复杂。与通常仅进行一轮表面聚乙二醇化(PEGylation)的做法相比,第二轮PEGylation(步骤2)可显著降低抗体对检测表面的非特异性结合15荧光抗体的高浓度扩散会导致极强的荧光背景,从而掩盖抗体结合的单分子检测信号。为降低该荧光背景,需将激光入射角调至远高于临界角(步骤3.4)。抗体检测还可能因荧光染料的过度不稳定而受限,这会限制对结合停留时间的定量分析能力。当遇到此问题时,应将荧光染料替换为光稳定性更高的荧光染料,例如与三重态猝灭剂偶联的荧光染料。47,或降低激光照射强度。尽管氧气清除系统通常用于 体外 单分子实验中抑制荧光团光漂白的方法48,49该检测方法无需使用任何氧气清除系统,即可提供非常宽泛的检测窗口15此外,除氧系统会显著降低真核细胞无细胞翻译效率。因此,在本实验中使用除氧系统前应谨慎评估其影响。
需要指出的是,由于该检测方法具有单分子分辨率,试剂制备中的微小差异均可能被检测到。例如,重复制备的翻译提取物可能表现出不同的活性,而这些差异在群体检测方法中可能无法被察觉。此外,翻译提取物及其他试剂的冻融循环会迅速削弱翻译活性。我们建议在规划系统性研究之前,先使用易获取的材料进行小规模预实验以测试实验条件。对于系统性研究,建议大规模制备翻译试剂,对易受冻融影响的试剂采用单次使用分装,并确保实验步骤操作的一致性。将翻译提取物在液氮中速冻并保存于 -80 ˚C 条件下,至少两年内其活性损失最小。采取这些措施可有效抑制实验变异,提高单分子检测的稳健性。
由于该方法结合了现有的大量无细胞翻译系统和 体外 单分子成像技术,本文不讨论这两个领域中的通用性问题。此类通用问题的示例包括报告mRNA或PEG化盖玻片制备质量差,以及细胞提取物翻译活性低。本文将聚焦于该方法特有的问题。除方案中已讨论的若干技术问题外,另一个可能的问题是:在预期具有较高活性的翻译条件下,流动通道中抗体结合信号弱或无结合信号。对此有多种排查可能性。可通过将互补且带有荧光标记的DNA寡核苷酸与固定在检测表面的mRNA退火,然后对荧光标记的DNA:RNA双链进行成像,以评估生物素化mRNA在检测表面固定效率。翻译反应体系及生物素化报告mRNA的质量可通过整体翻译实验进行检测。此外,在mRNA固定的流动通道中完成翻译反应后,可将反应液从通道中移出,并用于报告基因活性检测,以确认通道内翻译是否发生。如有必要,可在通道内翻译反应中使用过高的mRNA表面密度,以便于通过报告基因活性检测更易检测到信号。
该实验方法的主要局限性在于其对起始动力学的分辨率。在此实验中,直接获得的实验输出——首次到达时间——包含了第一轮起始时间以及翻译表位和额外35个密码子所需的肽链延伸时间。尽管可以通过校正来消除肽链延伸时间的影响(步骤6.9),但该方法最适合测量以分钟为量级的起始动力学过程,这似乎是帽依赖性起始的一种普遍特性15。从实验角度看,该方法易于调整以研究其他起始机制。然而,如果某种起始机制的发生速度极快,处于秒级量级,则该方法难以分辨其起始动力学。
此处描述的单分子方法结合了单分子成像与基于提取物的翻译体系,可实现对单个帽依赖性翻译事件在实时及活跃的无细胞翻译过程中的检测。该检测方法能够便捷地从整体翻译实验过渡到单分子实验,同时保持整体翻译的动力学特征。因此,单分子动力学观测结果可直接与相应的整体实验结果进行对照解读。此前的方法,包括近期开发的 体内 方法11,12,13,14,缺乏对单个翻译起始事件进行动力学测量的分辨率,并且需要基于实验可观测量对翻译机制作出假设,才能提取起始时间的平均值。本文介绍的单分子方法首次提供了一种无需假设的途径,用于量化活性帽依赖性翻译的平均起始时间。此外,尽管已有研究利用发光检测法进行整体动力学测量,迄今获得了最定量且最系统的帽依赖性翻译动力学的整体表征46,50,此处描述的单分子检测方法比整体检测方法在测量平均起始动力学变化方面具有更高的灵敏度图7此外,单分子数据保留了单个mRNA翻译的随机性和异质性,而这些特性在群体测量中会被平均化而丢失。翻译动力学的单分子分辨率可用于系统的动力学分析,揭示其他方法无法获得的翻译机制见解。
该检测方法可与目前常用于翻译研究的生化和遗传学方法兼容。例如,可通过制备特定因子缺失的提取物,并补充野生型或突变型因子,来研究该因子在翻译过程中的功能。此外,通过添加荧光标记的因子,有望研究因子结合与翻译进程之间的动力学关系。利用两组不同的表位/抗体组合,本实验方案有可能从单色检测扩展为双色检测,从而实现对两个不同编码序列的同步检测。这种改进将能够追踪不同阅读框的翻译过程,并可用于移码和起始位点选择的研究。 alternatively,双色系统也可用于检测抗体与上游和下游开放阅读框编码的带标签多肽之间的相互作用,从而监测单个 mRNA 上游和下游的翻译事件。这些扩展应用可支持多种机制性研究,用于探究帽依赖性翻译及其调控机制。
披露
作者无任何利益冲突需要披露。
致谢
本工作由美国国立卫生研究院 [R01GM121847]、纪念斯隆-凯特琳癌症中心(MSKCC)支持基金/核心基金(P30 CA008748)以及 MSKCC 功能基因组学计划资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 100倍油镜,数值孔径 1.49 | Olympus | UAPON 100XOTIRF | |
| 丙烯酰胺/双丙烯酰胺(40%,19:1) | Bio-Rad | 161-0144 | |
| 碱性液体洗涤剂 | Decon | 5332 | |
| 氨基硅烷(N-(2-氨乙基)-3-氨丙基三甲氧基硅烷) | UCT Specialties, LLC | A0700 | |
| Andor ixon Ultra DU 897V EMCCD | Andor | DU-897U-CSO-#BV | |
| Andor Solis 软件 | Andor | 用于控制 Andor EMCCD | |
| 带通滤光片 | Chroma | 532/640/25 | |
| 带通滤光片 | Chroma | NF03-405/488/532/635E-25 | |
| 生物素-PEG-SVA | Laysan Bio Inc | Biotin-PEG-SVA | |
| 辅酶A游离酸 | Prolume | 309-250 | |
| Coolterm 软件 | 用于控制注射泵 | ||
| 台式计算机 | Dell | 用于控制显微镜、相机、载物台和泵 | |
| 二向色镜 | Semrock | R405/488/532/635 | |
| Direct-zol RNA 微量提取试剂盒 50RNX | Fisher Scientific | NC1139450 | |
| 双荧光素酶报告基因检测系统 | Promega | E1910 | |
| 环氧树脂 | Devcon | 14250 | |
| 萤火虫荧光素 D-荧光素游离酸 | Prolume | 306-250 | |
| 冰醋酸 | Fisher Scientific | BP1185500 | |
| 过氧化氢 | Sigma-Aldrich | 216763-500ML | |
| 浸油 | Olympus | Z-81226A | 低自发荧光 |
| 荧光素酶检测系统 | Promega | E1500 | |
| MEGASCRIPT T7 转录试剂盒 | Thermo fisher | AM1334 | |
| 甲醇 | Fisher Scientific | MMX04751 | |
| 显微镜 | Olympus | IX83 | |
| 显微镜载玻片 | Thermo Scientific | 3048 | |
| 单克隆抗FLAG M2-Cy3抗体 | Sigma-Aldrich | A9594 | |
| mPEG-SVA | Laysan Bio Inc | mPEG-SVA-5000 | |
| MS(PEG)4 | Thermo Scientific | 22341 | |
| NaCl (5M) | Thermo Scientific | AM9760G | |
| 1.5号显微镜盖玻片 | Fisherband | 12-544-C | |
| Olympus 激光器,532 nm,100 mW | Olympus 数字激光系统 | CMR-LAS 532nm 100mW | |
| Olympus TirfCtrl 软件 | Olympus | 用于控制激光强度和入射角度 | |
| 光学平台 | TMC 振动控制 | 63-563 | 带振动隔离功能 |
| 苯酚-氯仿-异戊醇混合液 | Sigma-Aldrich | 77617-100ml | |
| Pierce RNA 3'端生物素标记试剂盒 | Thermo Scientific | 20160 | |
| 氢氧化钾颗粒 | Sigma-Aldrich | P1767-500G | |
| Prior 电动XY平移载物台 | Prior | PS3J100 | |
| Prior PriorTest 软件 | Prior | 用于控制 Prior 电动载物台 | |
| 重组RNasin核糖核酸酶抑制剂 | Promega | N2515 | |
| 载物台培养箱 | In vivo scientific (World Precision Instruments) | 98710-1 | 配有定制亚克力笼 |
| 染色缸 | Fisher Scientific | 08-817 | |
| 链霉亲和素 | Thermo Scientific | 43-4301 | |
| 硫酸 | Fisher Scientific | A300212 | |
| SYBR Green II | Fisher Scientific | S7564 | |
| 注射器 | Hamilton | 1725RN | |
| 注射泵 | Harvard apparatus | 55-3333 | |
| Tris (1M),pH = 7.0 | Thermo Scientific | AM9850G | |
| 超声波清洗仪 | Branson | CPX1800H | |
| 尿素 | Sigma-Aldrich | U5378-500G | |
| 痘苗病毒加帽系统 | New England Biolabs | M2080S | |
| Zymo-Spin IC 柱 | Zymo Research | C1004 |
参考文献
- Hinnebusch, A. G. The scanning mechanism of eukaryotic translation initiation. Annual Review of Biochemistry. 83, 779-812 (2014).
- Gebauer, F., Hentze, M. W. Molecular mechanisms of translational control. Nature Reviews Molecular Cell Biology. 5, 827-835 (2004).
- Jackson, R. J., Hellen, C. U., Pestova, T. V. The mechanism of eukaryotic translation initiation and principles of its regulation. Nature Reviews Molecular Cell Biology. 11, 113-127 (2010).
- Silvera, D., Formenti, S. C., Schneider, R. J. Translational control in cancer. Nature Reviews Cancer. 10, 254-266 (2010).
- Saini, A. K., Nanda, J. S., Lorsch, J. R., Hinnebusch, A. G. Regulatory elements in eIF1A control the fidelity of start codon selection by modulating tRNA(i)(Met) binding to the ribosome. Genes and Development. 24, 97-110 (2010).
- Algire, M. A., et al. Development and characterization of a reconstituted yeast translation initiation system. RNA. 8, 382-397 (2002).
- Amrani, N., Ghosh, S., Mangus, D. A., Jacobson, A. Translation factors promote the formation of two states of the closed-loop mRNP. Nature. 453, 1276-1280 (2008).
- Pisarev, A. V., Unbehaun, A., Hellen, C. U., Pestova, T. V. Assembly and analysis of eukaryotic translation initiation complexes. Methods in Enzymology. 430, 147-177 (2007).
- Hinnebusch, A. G. Structural insights into the mechanism of scanning and start codon recognition in eukaryotic translation initiation. Trends in Biochemical Sciences. 42, 589-611 (2017).
- Iwasaki, S., Ingolia, N. T. The growing toolbox for protein synthesis studies. Trends in Biochemical Sciences. 42, 612-624 (2017).
- Morisaki, T., et al. Real-time quantification of single RNA translation dynamics in living cells. Science. 352, 1425-1429 (2016).
- Wang, C., Han, B., Zhou, R., Zhuang, X. Real-time imaging of translation on single mRNA transcripts in live cells. Cell. 165, 990-1001 (2016).
- Wu, B., Eliscovich, C., Yoon, Y. J., Singer, R. H. Translation dynamics of single mRNAs in live cells and neurons. Science. 352, 1430-1435 (2016).
- Yan, X., Hoek, T. A., Vale, R. D., Tanenbaum, M. E. Dynamics of translation of single mRNA molecules in vivo. Cell. 165, 976-989 (2016).
- Wang, H., Sun, L., Gaba, A., Qu, X. An in vitro single-molecule assay for eukaryotic cap-dependent translation initiation kinetics. Nucleic Acids Research. 48, 6(2020).
- Aitken, C. E., Lorsch, J. R. A mechanistic overview of translation initiation in eukaryotes. Nature Structural & Molecular Biology. 19, 568-576 (2012).
- Anderson, C. W., Straus, J. W., Dudock, B. S. Preparation of a cell-free protein-synthesizing system from wheat germ. Methods in Enzymology. 101, 635-644 (1983).
- Erickson, A. H., Blobel, G. Cell-free translation of messenger RNA in a wheat germ system. Methods in Enzymology. 96, 38-50 (1983).
- Iizuka, N., Najita, L., Franzusoff, A., Sarnow, P. Cap-dependent and cap-independent translation by internal initiation of mRNAs in cell extracts prepared from Saccharomyces cerevisiae. Molecular and Cellular Biology. 14, 7322-7330 (1994).
- Iizuka, N., Sarnow, P. Translation-competent extracts from Saccharomyces cerevisiae: effects of L-A RNA, 5' cap, and 3' poly(A) tail on translational efficiency of mRNAs. Methods. 11, 353-360 (1997).
- Jackson, R. J., Hunt, T. Preparation and use of nuclease-treated rabbit reticulocyte lysates for the translation of eukaryotic messenger RNA. Methods in Enzymology. 96, 50-74 (1983).
- Sachs, M. S., et al. Toeprint analysis of the positioning of translation apparatus components at initiation and termination codons of fungal mRNAs. Methods. 26, 105-114 (2002).
- Tarun, S. Z., Sachs, A. B. A common function for mRNA 5' and 3' ends in translation initiation in yeast. Genes and Development. 9, 2997-3007 (1995).
- Wang, Z., Sachs, M. S. Ribosome stalling is responsible for arginine-specific translational attenuation in Neurospora crassa. Molecular and Cellular Biology. 17, 4904-4913 (1997).
- Wang, Z., Sachs, M. S. Arginine-specific regulation mediated by the Neurospora crassa arg-2 upstream open reading frame in a homologous, cell-free in vitro translation system. Journal of Biological Chemistry. 272, 255-261 (1997).
- Fedyukina, D. V., Cavagnero, S. Protein folding at the exit tunnel. Annual Review of Biophysics. 40, 337-359 (2011).
- Jha, S., Komar, A. A. Birth, life and death of nascent polypeptide chains. Biotechnology Journal. 6, 623-640 (2011).
- Gregorio, N. E., Levine, M. Z., Oza, J. P. A user's guide to cell-free protein synthesis. Methods and Protocols. 2, 24(2019).
- Zhovmer, A., Qu, X. Proximal disruptor aided ligation (ProDAL) of kilobase-long RNAs. RNA Biology. 13, 613-621 (2016).
- Wu, C., Sachs, M. S. Preparation of a Saccharomyces cerevisiae cell-free extract for in vitro translation. Methods in Enzymology. 539, 17-28 (2014).
- Zhao, R., Rueda, D. RNA folding dynamics by single-molecule fluorescence resonance energy transfer. Methods. 49, 112-117 (2009).
- Chandradoss, S. D., et al. Surface passivation for single-molecule protein studies. Journal of Visualized Experiments. (86), e50549(2014).
- Deindl, S., Zhuang, X. Monitoring conformational dynamics with single-molecule fluorescence energy transfer: applications in nucleosome remodeling. Methods in Enzymology. 513, 59-86 (2012).
- Greene, E. C., Wind, S., Fazio, T., Gorman, J., Visnapuu, M. L. DNA curtains for high-throughput single-molecule optical imaging. Methods in Enzymology. 472, 293-315 (2010).
- Gaba, A., Wang, Z., Krishnamoorthy, T., Hinnebusch, A. G., Sachs, M. S. Physical evidence for distinct mechanisms of translational control by upstream open reading frames. The EMBO Journal. 20, 6453-6463 (2001).
- Schaffer, B., Grogger, W., Kothleitner, G. Automated spatial drift correction for EFTEM image series. Ultramicroscopy. 102, 27-36 (2004).
- Wang, Y., et al. Localization events-based sample drift correction for localization microscopy with redundant cross-correlation algorithm. Optics Express. 22, 15982-15991 (2014).
- Sugar, J. D., Cummings, A. W., Jacobs, B. W., Robinson, B. D. A free Matlab script for spacial drift correction. Microscopy Today. 22, 40-47 (2014).
- Chenouard, N., et al. Objective comparison of particle tracking methods. Nature Methods. 11, 281-289 (2014).
- Meijering, E., Dzyubachyk, O., Smal, I. Methods for cell and particle tracking. Methods in Enzymology. 504, 183-200 (2012).
- Chung, S. H., Kennedy, R. A. Forward-backward non-linear filtering technique for extracting small biological signals from noise. Journal of Neuroscience Methods. 40, 71-86 (1991).
- Ensign, D. L., Pande, V. S. Bayesian detection of intensity changes in single molecule and molecular dynamics trajectories. Journal of Physical Chemistry B. 114, 280-292 (2010).
- Blanco, M., Walter, N. G. Analysis of complex single-molecule FRET time trajectories. Methods in Enzymology. 472, 153-178 (2010).
- Shuang, B., et al. Fast step transition and state identification (STaSI) for discrete single-molecule data analysis. The Journal of Physical Chemistry Letters. 5, 3157-3161 (2014).
- White, D. S., Goldschen-Ohm, M. P., Goldsmith, R. H., Chanda, B. Top-down machine learning approach for high-throughput single-molecule analysis. Elife. 9, 53357(2020).
- Vassilenko, K. S., Alekhina, O. M., Dmitriev, S. E., Shatsky, I. N., Spirin, A. S. Unidirectional constant rate motion of the ribosomal scanning particle during eukaryotic translation initiation. Nucleic Acids Research. 39, 5555-5567 (2011).
- Zheng, Q., et al. Ultra-stable organic fluorophores for single-molecule research. Chemical Society Review. 43, 1044-1056 (2014).
- Aitken, C. E., Marshall, R. A., Puglisi, J. D. An oxygen scavenging system for improvement of dye stability in single-molecule fluorescence experiments. Biophysical Journal. 94, 1826-1835 (2008).
- Shi, X., Lim, J., Ha, T. Acidification of the oxygen scavenging system in single-molecule fluorescence studies: in situ sensing with a ratiometric dual-emission probe. Analytical Chemistry. 82, 6132-6138 (2010).
- Berthelot, K., Muldoon, M., Rajkowitsch, L., Hughes, J., McCarthy, J. E. Dynamics and processivity of 40S ribosome scanning on mRNA in yeast. Molecular Microbiology. 51, 987-1001 (2004).
重印与许可
