本文介绍了一种将冷冻样品低温转移至动态核极化(DNP)魔角旋转(MAS)核磁共振(NMR)探头的实验方案。该方案包括实验前转子的储存方法,以及实验前后样品活性检测的操作步骤。
方法文章
将低温样品装入魔角旋转核磁共振波谱仪并保持细胞活性的方法
* These authors contributed equally
本文内容
摘要
摘要
动态核极化(DNP)可显著提高魔角旋转(MAS)核磁共振(NMR)波谱法的灵敏度。这种灵敏度的提升随温度降低而增强,在大多数商用DNP配备的NMR波谱仪的工作温度(约100 K)下,其增益足以实现对极低浓度分子的研究。这使得在冷冻保存的细胞中,能够在天然环境中以内源性表达水平开展大分子的原位结构生物学研究成为可能。然而,常规DNP MAS NMR样品处理过程中的冷冻速率超过了细胞冷冻保存所需的速率,导致细胞完整性与活性的丧失。本文介绍了一种详细的实验方案,用于将哺乳动物细胞的冷冻样品制备并低温转移至MAS NMR波谱仪中。
引言
将动态核极化技术引入魔角旋转核磁共振波谱法后,可使魔角旋转核磁共振(MAS NMR)的灵敏度提高数个数量级。这使得在生理浓度或接近生理浓度的条件下检测生物分子成为可能。动态核极化(DNP)能够提供足够的灵敏度,以在复杂的生物环境中检测同位素标记的蛋白质,其浓度可低至内源性水平(约 1 µM)1。由于目前已建立完善的实验方案,可将同位素标记的分子引入未标记的哺乳动物细胞,同时不损害细胞活性,因此有望在天然环境中以内源性水平研究同位素富集的生物分子。此外,由于DNP增强效应在较低温度下更为高效2,3,4,DNP-MAS NMR实验所采用的温度恰好与哺乳动物细胞长期保存所需的温度条件相吻合5。然而,传统的将样品装入DNP-MAS NMR谱仪的方法会导致样品经历剧烈的温度变化,从而导致哺乳动物细胞破裂。
魔角旋转核磁共振(MAS NMR)实验要求样品绕魔角旋转,且旋转频率需等于或高于各向异性相互作用的强度,以便将其平均至零,通常至少为 4 kHz,且往往更高6,7,8,9。因此,样品需装入具有鳍状尖端的转子中,该尖端通过气流驱动转子旋转,转子另一端设有标记,以便利用转速计监测旋转频率。对于大多数 MAS NMR 仪器,样品转移是通过将转子从仪器外部注入核磁共振探头末端的定子中完成的,注入时使用干燥空气或氮气气流。当转子进入定子后,定子将转子固定在魔角位置,随后由空气涡轮机构推动转子旋转。独立的气体气流分别用于支撑、驱动及控制转子的温度。将转子插入核磁共振波谱仪并实现稳定的魔角旋转,需要精密加工的驱动尖端,并对各气体气流的温度和压力进行精确控制。尽管存在这些技术要求,但对于商用室温应用的 MAS NMR 探头而言,转子插入及实现稳定旋转在很大程度上已实现自动化。
然而,低温应用的情况更为复杂。用于低温实验的样品通常在室温下插入谱仪,并在定子内进行冷冻。在最初一分钟内,样品温度迅速下降(> −100 °C/min),而系统温度需要数分钟才能达到平衡。由于温度与压力之间的相互影响,低温实验中的样品插入和接近目标魔角旋转(MAS)速度通常需要手动操作。尽管需要人工干预,但在仪器内部冷冻转子仍具有优势,因为它可最大限度地减少水分和冷凝物进入探头,这对于实现成功旋转至关重要。环境湿气不仅可能在气路中形成冷凝或结冰而造成堵塞,转子表面的冷凝或结霜还可能在机械上阻碍魔角旋转(MAS)的进行。因此,低温魔角旋转核磁共振(MAS NMR)的样品通常在仪器内部以超过 -100 °C/min 的速率进行冷冻。
如果降温速度缓慢,哺乳动物细胞在冻融循环中可以保持其完整性5,10,11,12,降温速率等于或慢于 1 °C/min。另一种情况下,若降温速率极快13,14,15,即快于 104 °C/min,细胞同样可保持其完整性。介于上述两种极端之间的降温速率会导致细胞内外形成冰晶,从而引起细胞破裂和死亡,即使存在冷冻保护剂也无法避免16。室温转子置于预冷探头中时的样品降温速率正处于这两个极端之间。因此,为了研究低温保存的完整且具有活性的哺乳动物细胞,样品必须在转移至仪器前完成冷冻,并在转移过程中避免温度波动,以防样品受损,同时防止转子上结霜而影响其旋转。本方案描述了一种无霜、预冷转子插入低温魔角旋转核磁共振(MAS NMR)系统的方法,用于研究低温保存的完整且具有活性的哺乳动物细胞样品。此处所述的低温样品转移方法最初为活体完整细胞的核磁共振表征而开发,但也适用于任何可能因温度波动而影响样品完整性的系统。这包括多种复杂体系,例如用于捕获反应中间体并进行化学与结构表征的冷冻猝灭反应17,18、酶学研究19,20或蛋白质折叠过程分析21,22。
方案
1. 哺乳动物细胞的培养与冷冻保护
- 培养和收获哺乳动物细胞
- 解冻一份冻存的人胚胎肾细胞(HEK 293)。
- 将 HEK 293 细胞在生长培养基(例如含 10% 胎牛血清和 1% 青霉素-链霉素的 DMEM)中,于 37 °C、5% CO2 条件下,在 100 mm 培养皿中培养 2 至 3 代(7–10 天)。
- 将细胞传代至 150 mm 培养皿中继续培养,直至细胞融合度达到 90–95%。
注意:一个融合度 > 90% 的 150 mm 培养皿所获得的细胞足以填充两个直径为 3.2 mm 的蓝宝石转子。 - 使用 4 mL 胰蛋白酶(见材料表)和 10 mL 培养基收获细胞。将细胞悬液转移至无菌 15 mL 锥形离心管中,在室温下以 673 x g(1000 rpm)离心 5 分钟,弃去上清液。
- 用磷酸盐缓冲液(PBS)(pH 7.4,−CaCl2,−MgCl2)洗涤细胞沉淀。
- 细胞的冷冻保护
- 在微量离心管中收集 50 µL 细胞沉淀。另取一管,配制 50 µL PBS 与 18 µL 甘油的混合液。
- 将甘油-PBS 混合液加至细胞沉淀上方,通过轻弹管壁轻轻混匀,使 50 µL 细胞沉淀与 68 µL 甘油-PBS 混合液充分重悬,直至无细胞团块残留。
注意:也可使用移液器轻柔吹打重悬细胞,但需确保不破坏细胞完整性。
2. 在核磁共振转子中冷冻保存哺乳动物细胞
- 将细胞转移至3.2 mm蓝宝石转子中。
- 制作漏斗:剪去200 µL移液器吸头的尖端,并将剪切后的吸头窄端插入3.2 mm转子中。
- 将细胞通过放置在转子上的漏斗转移至转子内。将带有漏斗的转子放入微量离心管中,在室温下以673 x g离心2–3分钟,使细胞沉淀至转子底部。
- 去除转子中的上清液及任何多余的样品。重复此两步操作,直至细胞完全填满转子。
注意:可选步骤,在冷冻前测定样品的细胞活力。取10 µL多余的细胞沉淀重悬于100 µL无FBS的DMEM培养基中。取10 µL悬液与0.4%台盼蓝溶液混合,立即使用自动细胞计数仪评估细胞活力。稀释细胞时仅使用无FBS的培养基,因为血清会干扰台盼蓝染色。 - 使用市售的装填工具,用硅胶塞将转子密封。
- 将陶瓷驱动头垂直向下压紧,关闭转子。避免触碰驱动头侧面的精细翅片。
- 用银色永久性记号笔标记蓝宝石转子底缘的一半,用黑色永久性记号笔标记转子底缘的另一半,以便在波谱仪内准确监测转子的旋转情况。
注意:转子标记的缺陷将导致无法准确计数旋转频率,从而无法实现稳定的旋转。由于记号笔无法在冷冻后的转子上书写,且转子升温会破坏样品完整性,因此在冷冻前完成标记是关键步骤。
- 在3.2 mm蓝宝石转子内对细胞进行冷冻保存。
- 在低温冻存管(见材料表)的盖子下方和底部放置由组织纸或纸巾制成的缓冲垫。
注意:组织纸可防止转子标记因碰撞冻存管内壁而受损。 - 将3.2 mm蓝宝石转子放入垫有组织纸的低温冻存管中,确保标记端朝向冻存管底部。
- 通过将冻存管放入控速降温容器(-1 °C/min)中,缓慢冷冻转子,并将容器置于-80 °C冰箱中至少3小时。
- 将含有冷冻转子的低温冻存管转移至液氮中长期保存。
- 在低温冻存管(见材料表)的盖子下方和底部放置由组织纸或纸巾制成的缓冲垫。
3. 将冷冻样品转移至核磁共振波谱仪的低温环境
- 将冷冻样品转运至核磁共振实验中心。
- 将装有冷冻转子的低温冻存管转移至盛有液氮的小型杜瓦瓶中,运送至核磁共振设施。
- 将冷冻转子转移至液氮浴中。
- 将500 mL至1 L的液氮倒入一个干燥、带保温层的宽口泡沫塑料杜瓦瓶中。
- 将转子从冷冻小瓶转移至装有液氮的宽口泡沫杜瓦瓶中。
- 用手从转运杜瓦瓶中取出冻存管,并将其保持在液氮液面之上,以保护其免受大气环境影响。
- 手持冻存管,管口略向下倾斜,拧开管盖,使转子滑入液氮浴中。
注意:一旦旋开盖子,转子必须在1秒内迅速从冷冻小瓶落入液氮浴中,以防止冷凝物在转子表面聚集。液氮蒸发后会在宽口泡沫杜瓦瓶内形成“氮气云”,可在转子浸入液氮前防止其表面产生冷凝。若转子暴露于空气中的时间过长,可能导致水分在转子壁上冷凝并重新凝结成冰。
- 将转子低温转移至核磁共振样品捕集器。
- 将1.5 mL 微量离心管浸入液氮浴中预冷。切勿封闭管盖。
注意:在将转子转移至微量离心管前,需检查转子状态。使用镊子夹住转子,将其置于液氮液面下方,检查转子上的标记是否完整,管壁是否形成冰沉积物,以及驱动尖端是否完好。转子管壁上的冰晶沉积物呈白色粉末状。操作时务必仅夹持转子本体,切勿夹持驱动尖端。避免镊子尖端刮损转子上的标记。 - 在液氮浴液面以下,使用镊子将转子转移至微量离心管中,使驱动端朝向微量离心管底部,标记面朝向管口。
注意:镊子在浸入液氮或接触转子前,务必先将其干燥。 - 使用镊子夹住装有转子的离心管管颈,将其浸入液氮中。
- 用另一把镊子做好准备 将核磁共振样品捕集器浸入液氮浴中,并倾斜放置,使其与微型离心管呈锐角。
注意:尽量减少样品捕集器与液氮接触的时间,以避免O形圈冻结。如果O形圈冻结,将很难把捕集器插入光谱仪中。
- 将1.5 mL 微量离心管浸入液氮浴中预冷。切勿封闭管盖。
- 从核磁共振样品捕获器到核磁共振波谱仪的低温转子转移
注意:此步骤需要两人协作,一人操作冷冻柜,另一人将样品从液氮转移至探针中。- 按下冷冻柜上的“EJECT”按钮,将冷冻柜置于弹出模式。
注意:喷射模式会将干燥且低温的氮气以高压从探针处排向大气,以防止大气中的湿气进入。 - 将转子转移至核磁共振样品收集器中。
- 将核磁共振样品捕集器的开口端插入微型离心管中,操作时仍需保持在液氮液面以下。
- 将微量离心管和核磁共振样品捕集器同时抬起,使转子落入样品捕集器中。若转子卡在样品捕集器边缘,可轻轻摇晃核磁共振样品捕集器和微量离心管。
- 将空的微量离心管放置在核磁共振样品收集器顶部,以遮挡转子免受空气影响。
- 从探头中取出另一个空的核磁共振样品收集器,并将其放在地板上。
- 将装有转子的核磁共振样品捕集器转移到空闲的手中,取下微量离心管,并立即将其插入探头中。
注意:如果 O 型圈冻结,将难以拧紧样品收集器。请持续施力,直至其滑入到位。 - 示意操作冷冻柜的人员“停止弹出”并“插入”。
注意:插入模式用于引导转子从样品捕获器进入探针。 - 通过调节低温柜控制的轴承气和驱动气压力,将样品转子加速至目标转速(例如 12 kHz)。(例如:首先立即将轴承气压力升至约 200 mBar,驱动气压力升至 10 mBar;待样品开始旋转后,将轴承气升至 1000 mBar,驱动气升至 200 mBar;当转速趋于稳定后,将轴承气进一步升至 2400 mBar,并在数分钟内将驱动气从 200 mBar 逐步升至 1700 mBar。VT 冷却气流量保持恒定,约为 1070 L/h。)
注意:从液氮浴中取出微量离心管和核磁共振样品捕集器时,应确保微量离心管内含有足量液氮以完全浸没转子。将转子转移至核磁共振样品捕集器后,应尽快将其插入谱仪中,尽量缩短转移时间。步骤 3.4 中的所有操作应在 30 秒内完成。
- 按下冷冻柜上的“EJECT”按钮,将冷冻柜置于弹出模式。
4. 从核磁共振波谱仪中低温取出样品
- 液氮浴和冷冻小瓶的准备
- 将 500 mL - 1 L 液氮倒入宽口泡沫杜瓦瓶中,并将该液氮浴置于光谱仪下方。
- 预冷冷冻小瓶。将装有少量滤纸的空冷冻小瓶浸入液氮浴中进行冷却。
- 转子从探头到冷冻小瓶的低温转移
- 通过逐步降低驱动气和轴承气流量,将转子转速降至 0 kHz,然后切换至弹射模式将转子弹出。
- 保持弹射模式开启,从探头上取下样品收集器,直接将转子投入盛有液氮的宽口泡沫杜瓦瓶中。
- 使用预冷过的镊子,在液氮液面下将转子转移至已预冷的冷冻小瓶中。
- 盖上冷冻小瓶盖。将小瓶盖浸入液氮中进行预冷。从液氮浴中取出装有转子和液氮的冷冻小瓶,并用预冷的小瓶盖盖紧。注意不要完全拧紧瓶盖,以便气化的氮气能够安全释放。
- 将冷冻小瓶重新浸入液氮中。样品可转移至长期液氮储存环境,或立即取出进行后续分析。
5. 转子拆封与活力测定
- 解冻转子并测定细胞活力
- 将无血清培养基(DMEM)或 PBS 预热至 37 °C。
- 从液氮中取出转子,移除驱动头和硅胶塞。
注意:蓝宝石是优良的导热材料。避免用手指接触转子,因为热量传递可能导致局部冻融现象,从而影响细胞活力。
- 测定细胞活力
- 向转子中的冷冻细胞沉淀加入 20 µL 预热的培养基,重悬细胞。用移液器吸取悬液,并与 100 µL 培养基混合。
- 取 10 µL 细胞悬液,与等体积的 0.4% 台盼蓝溶液(v/v)混合。室温孵育 30 秒至 1 分钟。
- 使用自动细胞计数仪测定细胞活力。
结果
将哺乳动物细胞的预冷冻样品以低温插入方式装入核磁共振(NMR)波谱仪,可在整个NMR实验过程中维持细胞活性。图1展示了将冷冻样品转移至预冷却NMR探头的低温操作示意图。可通过多种方法评估细胞的存活率与完整性。本文采用基于染料的标准方法检测细胞膜完整性,该方法与其他检测手段具有良好的一致性23。完整细胞对台盼蓝具有不通透性,而细胞膜完整性受损的细胞则可被台盼蓝穿透。可通过自动细胞计数仪快速测定台盼蓝可穿透与不可穿透的细胞数量。根据本文所述方案,在进行魔角旋转NMR(MAS NMR)后(即步骤5.2.3)的哺乳动物细胞对台盼蓝的通透性,与未经历任何温度变化前的细胞(即步骤2.1.3)相近。然而,若细胞采用缓慢冷冻方式,并在插入前升温至室温(即在将转子升温至室温后再插入冷却探头,执行至步骤3),则通过台盼蓝染色检测的细胞存活率会下降至不足10%(图2)。因此,若在波谱仪内部进行冷冻会导致细胞膜完整性的丧失,而将哺乳动物细胞的冷冻样品以低温方式插入则可在整个NMR实验过程中维持细胞活性。
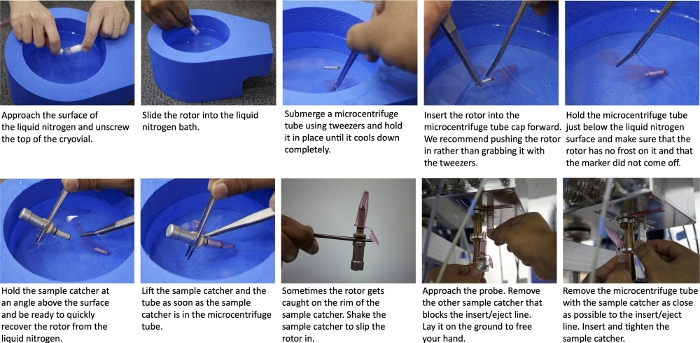
图 1:将冷冻样品转移至预冷核磁共振探头的示意图。(A)接近液氮表面,拧开低温小瓶的瓶盖。(B)将转子滑入液氮浴中。(C)使用镊子将微量离心管浸入液氮,并固定位置直至其完全冷却。(D)将转子插入微量离心管中,驱动端朝向管底。使用镊子时应推动而非夹取。(E)将微量离心管保持在液氮浴液面稍下方,目视检查转子,确保其无霜且标记清晰。(F)将样品捕集器倾斜置于液面之上。(G)一旦样品捕集器进入微量离心管内,立即将其与管子一同从液氮中取出。(H)若转子卡在边缘,轻摇样品捕集器。(I)从探头中取出空的样品捕集器,并将其放置在地面上。(J)从样品捕集器中取出内含转子的微量离心管,插入探头,拧紧样品捕集器,并按下控制台上的“INSERT”按钮。请点击此处查看该图的放大版本。
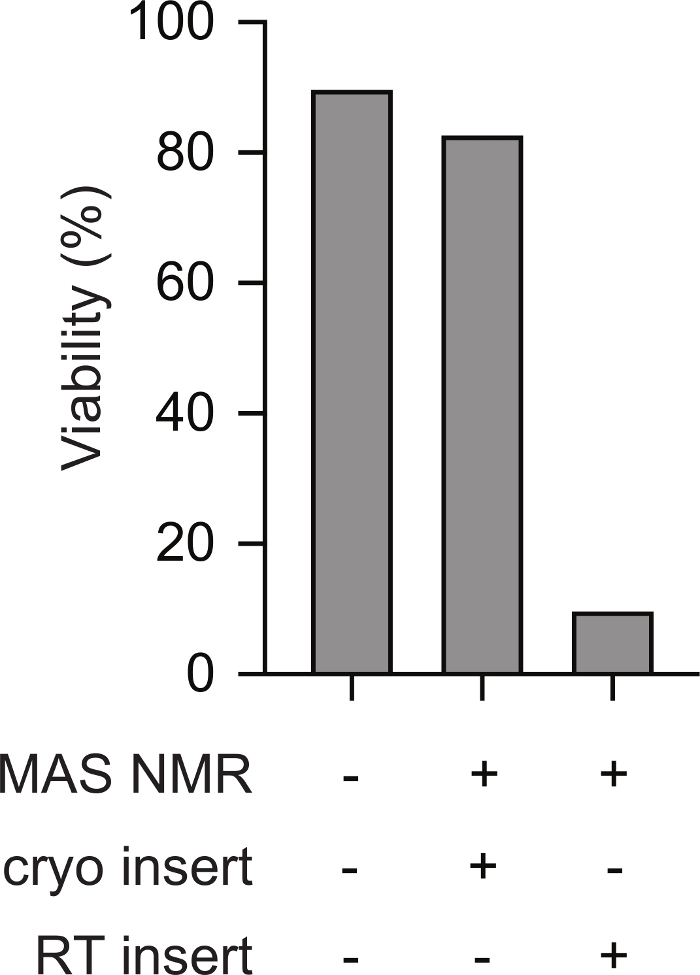
图 2:哺乳动物细胞预冷冻样品的低温插入,所得细胞完整性测量结果与从未冷冻过的哺乳动物细胞样品相似。从未冷冻过的样品(例如步骤 2.1.3)中台盼蓝不可渗透细胞的百分比,与魔角旋转核磁共振(MAS NMR)后样品(例如步骤 5.2.3,12 kHz MAS)的细胞百分比相似。经过慢速冷冻(例如步骤 3)并在插入已预冷至 100 K 的核磁共振仪器前恢复至室温的细胞,在 12 kHz MAS 条件下进行 MAS NMR 后,完整细胞的百分比较低。请点击此处查看该图的放大版本。
讨论
将冷冻样品低温转移至核磁共振(NMR)波谱仪中,可成功维持冷冻哺乳动物细胞在NMR数据采集过程中的活性。该方法的成功性已通过魔角旋转(MAS)NMR前后细胞活性的测量结果得到验证。该策略具有成功性和普适性,适用于任何温度波动可能影响样品完整性的体系。本方案以HEK 293细胞系为例进行操作。由于多种哺乳动物细胞系的冷冻保存条件非常相似,此处报道的条件很可能适用于其他细胞体系;然而,可能需要对冷冻保护剂、样品体积和冷冻速率等参数进一步优化,以达到相同的效果。
通过在核磁共振实验后更快地拆卸转子,可进一步优化该方法。目前这一步骤尚未达到最佳状态,其操作过程会影响细胞的存活率。在将细胞重新悬浮于培养基之前,必须从转子中移除驱动头和硅塞。在拆卸驱动头和硅塞时,若用手握住转子,会导致样品解冻不均匀,因此缩短转子操作时间有助于提高细胞存活率。开发转子支架或其他辅助工具,以促进均匀解冻并快速移除驱动头和硅塞,将有助于更准确地评估核磁共振实验后的细胞存活情况。
本文所述的低温样品装载方法仅适用于那些在探头置于核磁共振(NMR)磁体孔径内时仍支持样品插入和弹出的NMR探头。尽管外部样品插入和弹出是商用动态核极化(DNP)系统的标准配置,但定制探头并不总是具备此功能。此外,针对低温样品装载的该方法可能需要针对适配不同尺寸转子的NMR探头进行某些修改。本实验方案已针对3.2 mm转子优化,若样品捕集器的外径超过微量离心管的内径(例如步骤3.4.2),则可能需要进行调整。
随着动态核极化(DNP)技术在魔角旋转核磁共振(MAS NMR)中的应用,现在已有可能在内源性生理浓度下检测蛋白质及其他生物大分子24,25,26。这为在天然环境中研究生物分子提供了可能。在整个实验过程中维持细胞的完整性和活性,对于将波谱学的实验结果与生物学现象相联系至关重要。对于含有纯化蛋白质或细胞裂解液的样品,非受控冷冻通常不会影响样品质量7,27,尽管已有迹象表明,即使在纯化体系中,冷冻速率也可能是一个重要变量28。然而,若要确保哺乳动物细胞样品的细胞完整性与活性,以便正确解释实验结果,则必须采用受控速率进行冷冻。本文介绍了一种将哺乳动物细胞样品进行冷冻并转移至预冷却的DNP MAS NMR仪器中的操作方案,该方案可避免可能造成损伤的温度波动,支持对活细胞进行检测。
披露
作者无任何利益冲突需要披露。
致谢
本工作获得了癌症研究预防基金的资助 &德克萨斯州再生医学研究所 [RR150076]、美国国家科学基金会 [1751174]、美国国立卫生研究院 [NS-111236]、韦尔奇基金会 [1-1923-20170325]、卢佩·默乔森基金会、泰德·纳什长寿基金会和亲属基金会(西尔学者项目)对 K.K.F. 提供了资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.4% 台盼蓝染色液 | Invitrogen | T10282 | |
| 100 mm 细胞培养皿 | Thomas Scientific | 430167 | |
| 150 mm 细胞培养皿 | Nunc | 157150 | |
| 3.2 mm 宝石转子 | Bruker | ||
| 45 ° 角度镊子 | Hampton Research | HR4-859 | |
| AMUPol | Cortecnet | C010P005 | |
| 黑白银色标记笔 | Sharpie | ||
| 盖帽移除工具 | Bruker | HZ16913 | |
| 细胞培养级水 | HyClone | SH30529.03 | |
| 陶瓷帽 | Cortecnet | HZ12372 | |
| CoolCell | Corning/ Biocision | UX-04392-00 (Corning) / BCS-405 (Bioscion) | |
| Countess 细胞计数板 | Invitrogen | C10288 | |
| Countess II 全自动细胞计数仪 | Invitrogen | AMQAF1000 | |
| 低温冻存管 | Nalgene | 03-337-7Y | |
| d8-甘油 | Aldrich | 447498 | |
| 氘代氧化物,99.8% 原子 D | Aldrich | 756822-1 | |
| DMEM | Gibco | 10569-010 | |
| 配备频率匹配速调管的 DNP 核磁共振系统 | Bruker | ||
| 泡沫杜瓦瓶 | Spearlab | FD-800 | |
| Kimwipes 纸巾 | Kimwipes | ||
| 装填工具 | Bruker | ||
| 青霉素-链霉素溶液(Pen-Strep) | Gibco | 15140-122 | |
| 粉末状 PBS | VWR | VWRRV0780 | |
| 质子化 PBS | Gibco | 10010-023 | |
| 硅胶塞 | Bruker | B7089 | |
| 标准样品管镊子 | |||
| Tryp-L | Gibco | 12605010 |
参考文献
- Costello, W. N., Xiao, Y., Frederick, K. K. DNP-Assisted NMR Investigation of Proteins at Endogenous Levels in Cellular Milieu. Methods Enzymology. 615 (1), 373-406 (2019).
- Hall, D. A., et al. Polarization-Enhanced NMR Spectroscopy of Biomolecules in Frozen Solution. Science. 276 (5314), 930-932 (1997).
- Akbey, Ü, Oschkinat, H. Structural biology applications of solid state MAS DNP NMR. Journal of Magnetic Resonance. 269 (1), 213-224 (2016).
- Matsuki, Y., et al. Helium-cooling and -spinning dynamic nuclear polarization for sensitivity-enhanced solid-state NMR at 14T and 30K. Journal of Magnetic Resonance. 225 (1), 1-9 (2012).
- Miyamoto, Y., Ikeuchi, M., Noguchi, H., Hayashi, S. Long-term Cryopreservation of Human and other Mammalian Cells at -80 °C for 8 Years. Cell Medicine. 10 (1), 1-7 (2018).
- Lopez del Amo, J. M., Schneider, D., Loquet, A., Lange, A., Reif, B. Cryogenic solid state NMR studies of fibrils of the Alzheimer's disease amyloid-β peptide: perspectives for DNP. Journal of Biomolecular NMR. 56 (4), 359-363 (2013).
- Gupta, R., et al. Dynamic nuclear polarization enhanced MAS NMR spectroscopy for structural analysis of HIV-1 protein assemblies. The Journal of Physical Chemistry B. 120 (2), 329-339 (2016).
- Lim, B. J., Ackermann, B. E., Debelouchina, G. T. Targetable Tetrazine-Based Dynamic Nuclear Polarization Agents for Biological Systems. ChemBioChem. 21 (9), 1315-1319 (2020).
- Jaudzems, K., et al. Dynamic nuclear polarization-enhanced biomolecular NMR spectroscopy at high magnetic field with fast magic-angle spinning. Angewandte Chemie International Edition. 57 (25), 7458-7462 (2018).
- Chaytor, J. L., et al. Inhibiting ice recrystallization and optimization of cell viability after cryopreservation. Glycobiology. 22 (1), 123-133 (2012).
- Mazur, P. Kinetics of water loss from cells at subzero temperatures and the likelihood of intracellular freezing. The Journal of General Physiology. 47 (2), 347-369 (1963).
- Lovelock, J. E., Bishop, M. W. H. Prevention of Freezing Damage to Living Cells by Dimethyl Sulphoxide. Nature. 183 (4672), 1394-1395 (1959).
- Bald, W. B. The relative merits of various cooling methods. Journal of Microscopy. 140 (1), 17-40 (1985).
- Akiyama, Y., Shinose, M., Watanabe, H., Yamada, S., Kanda, Y. Cryoprotectant-free cryopreservation of mammalian cells by superflash freezing. Proceedings of the National Academy of Sciences. 116 (16), 7738-7743 (2019).
- Shi, M., et al. High-throughput non-contact vitrification of cell-laden droplets based on cell printing. Scientific Reports. 5 (1), 17928(2015).
- Pegg, D. E. Principles of cryopreservation. Methods in Molecular Biology. 1257, 3-19 (2015).
- Ramilo, C., et al. Detection of the covalent intermediate of UDP-N-acetylglucosamine enolpyruvyl transferase by solution-state and time-resolved solid-state NMR spectroscopy. Biochemistry. 33 (50), 15071-15079 (1994).
- Jeon, J., Thurber, K. R., Ghirlando, R., Yau, W. M., Tycko, R. Application of millisecond time-resolved solid state NMR to the kinetics and mechanism of melittin self-assembly. Proceedings of the National Academy of Sciences. 116 (34), 16717(2019).
- Pievo, R., et al. A rapid freeze-quench setup for multi-frequency EPR spectroscopy of enzymatic reactions. Chemphyschem. 14 (18), 4094-4101 (2013).
- Cherepanov, A. V., de Vries, S. Microsecond freeze-hyperquenching: development of a new ultrafast micro-mixing and sampling technology and application to enzyme catalysis. Biochimica et Biophysica Acta (BBA) - Bioenergetics. 1656 (1), 1-31 (2004).
- Hu, K. N., Tycko, R. What can solid state NMR contribute to our understanding of protein folding. Biophysical Chemistry. 151 (1), 10-21 (2010).
- Hu, K. N., Yau, W. M., Tycko, R. Detection of a transient intermediate in a rapid protein folding process by solid-state nuclear magnetic resonance. Journal of the American Chemical Society. 132 (1), 24-25 (2010).
- Johnson, S., Nguyen, V., Coder, D. Assessment of cell viability. Current Protocols in Cytometry. 64 (1), 1-26 (2013).
- Frederick, K. K., et al. Sensitivity-enhanced NMR reveals alterations in protein structure by cellular milieus. Cell. 163 (3), 620-628 (2015).
- Van Der Cruijsen, E. A. W., et al. Biomolecular DNP-supported NMR spectroscopy using Site-directed spin labeling. Chemistry. 21 (37), 12971-12977 (2015).
- Schlagnitweit, J., et al. Observing an antisense drug complex in intact human cells by in-cell NMR spectroscopy. ChemBioChem. 20 (19), 2474-2478 (2019).
- Debelouchina, G. T., et al. Dynamic nuclear polarization-enhanced solid-state NMR spectroscopy of GNNQQNY nanocrystals and amyloid fibrils. Physical Chemistry Chemical Physics : PCCP. 12 (22), 5911-5919 (2010).
- Schmidt, T., et al. Submillisecond freezing permits cryoprotectant-free EPR doubled electron-electron resonance spectroscopy. ChemPhysChem. 21, 1224-1229 (2020).
重印与许可
