本方案描述了利用透射 illumination 辅助显微解剖法分离代表生精上皮周期特定阶段的成年小鼠生精小管节段及其内部细胞类型,并对压片标本和完整的小管节段进行后续免疫染色的方法。
本文内容
摘要
摘要
精子发生是一种独特的分化过程,最终形成体内最特化的细胞类型之一——精子。生殖细胞的分化发生在体细胞性支持细胞的细胞质囊袋内,这些支持细胞可同时容纳4到5代生殖细胞,并协调和同步其发育过程。因此,生精小管横切面中生殖细胞类型的组成是恒定的,这些细胞组合也被称为生精上皮周期的各个阶段(I–XII)。重要的是,由于不同阶段的生精小管在透射光照下具有不同的光吸收/散射特性,且沿小管走向按数字顺序依次排列,因此也可通过完整生精小管的透射光特征来识别其阶段。本文介绍了一种基于透射光照辅助显微解剖的方法,用于分离代表小鼠生精上皮周期特定阶段的生精小管片段。首先在解剖显微镜下观察生精小管的光吸收模式,随后切割代表特定阶段的小管片段,并用于后续实验。本文还描述了针对特定阶段压片样本以及完整小管片段的免疫染色实验方案。该方法使研究人员能够聚焦于精子发生特定阶段所发生的生物学事件,从而为精子发生的发育学、毒理学和细胞学研究及其分子机制的探索提供了独特的工具。
引言
精原细胞从二倍体分化为成熟单倍体精子的过程 即,精子发生是一个复杂的过程,发生在性成熟个体睾丸生精小管的上皮中1A1型精原细胞的有丝分裂后代首先连续分裂五次,以扩增进入分化阶段的细胞群体,随后作为初级精母细胞进入减数分裂,最终产生单倍体的精子细胞。圆形精子细胞进一步分化为精子, 即,精子形成过程涉及细胞形态的复杂变化,包括细胞核的压缩以及顶体和鞭毛等精子特异性结构的构建。在小鼠中,整个精子发生过程需要35天才能完成2,3.
在任一特定位置,生精上皮可容纳多达五个不同分化阶段的生殖细胞群,以及生殖系干细胞/前体细胞和体细胞性支持细胞(Sertoli cells)1不同的生精细胞形成同心层结构,其组成具有可预测性,且在特定发育阶段的单倍体细胞总是与特定类型的精母细胞和精原细胞相伴存在。4,5因此,生精小管的任何横截面都包含组成恒定的生殖细胞群体。这些特定的细胞组合被定义为生精上皮的各个阶段。阶段 本身 不呈现静止的类似检查点的状态,而是随着生殖细胞群体同步分化而持续发育1,2,6在小鼠中,共有12个阶段(I-XII)2 沿曲细精管的纵轴呈节段性排列,并按一定顺序依次排列,从而形成生精上皮波,或称生精波7,8,9 (图1)。精子发生过程需经历四个周期,其间包含不同分化阶段的生精细胞所形成的层次化细胞层或细胞群。 任何生精小管横截面中的生精上皮周期在时间上彼此相隔一个生精周期。该周期的长度因物种而异,在小鼠中每个周期持续8.6天10.
根据生精小管上皮在睾丸组织切片中的细胞组成和排列结构,可以确定各个阶段5(图1 和 图2)。然而,组织学分析费时费力,需要固定和染色处理,因此无法应用于 活体组织。重要的是,借助周期中不同阶段所表现出的独特光吸收/散射模式,也可在解剖显微镜下对活体组织进行分期(图2)。各个阶段对光的吸收和散射能力,取决于该阶段所含晚期减数分裂后精子细胞的染色质凝集程度以及这些细胞成束排列的紧密程度7,11。精子细胞的分化过程,即精子形成(i.e., spermiogenesis),进一步分为16个发育步骤,包括8个圆形精子细胞阶段(第1–8步)和8个伸长精子细胞阶段(第9–16步)的分化过程(图1)。第9–11步的伸长精子细胞(IX–XI期)染色质凝集程度较低,因此吸收的光量较少。染色质凝集始于第11步精子细胞(XI期),而第15–16步的伸长精子细胞(IV–VIII期)则含有完全凝集的染色质,因而 表现出最强的光吸收能力(图3)。染色质必须高度凝集,才能紧密地包装进入精子头部。其他影响光吸收模式的因素还包括伸长精子细胞在上皮中的位置(基部与顶部)以及伸长精子细胞的成束情况(在II–V期尤为明显)11(图3)。在解剖显微镜下,这些细胞束在小管中央呈现为斑点,在边缘则呈现为条带,且染色质越凝集,斑点或条带的颜色就越深11。
本文介绍了利用透射照明辅助显微解剖法分离代表生精上皮周期特定阶段的曲细精管节段。分离后,这些分期明确的管段可进行多种下游分析,包括生化水平的RNA和蛋白质分析12,13,14,15、流式细胞术16、离体管段培养ex vivo17以及免疫染色18。本文还提供了详细的下游操作方案,用于制备压片法单层结构的分期管段,以进行活细胞形态学分析及后续免疫染色,同时也包括曲细精管节段的整体免疫染色。整个工作流程的概要见图4。
透射光辅助显微解剖法能够借助各发育阶段细胞组成的同步性,准确定位并分离处于特定分化阶段的生殖细胞。尤为重要的是,该方法还可在活体组织中研究精子发生过程中依赖于发育阶段的事件。鉴于目前缺乏可扩展的 体外 用于精子发生研究的模型,该方法还具有独特优势,可对特定阶段的生精小管节段进行靶向的短期发育及毒理学研究 离体12,17虽然本文以小鼠为例描述该方法,但相同的操作流程可应用于任何生精小管上皮阶段呈纵向和节段性排列的哺乳动物物种,例如大鼠。4,7,15,19,20.
方案
实验室小鼠的饲养及所有动物实验均按照图尔库大学关于实验动物护理和使用的相关指南和规定进行。
1. 显微解剖用曲细精管的制备
- 通过 CO₂ 处死一只成年雄性小鼠(≥8 周龄,睾丸重量根据品系和年龄在 80–120 mg 之间)2 窒息后颈椎脱位。
注意:小鼠应已达到性成熟,最好至少8周大。幼年小鼠的透光模式与成年小鼠不同,因为生精上皮的波状结构尚未完全建立,且第一次生精波的发生时间也存在差异。21,22. 延长期精子细胞缺失于 <4周龄雄性小鼠因不适用于透射光辅助显微解剖,故不可采用。所有具有正常精子发生的品系小鼠均可使用。 - 用70%乙醇喷洒腹部腹侧。使用无菌剪刀在腹盆腔做V形切口,打开腹盆腔。
- 用无菌镊子牵拉附睾脂肪垫,找到睾丸,用剪刀解剖分离,并将其置于含有PBS的无菌100 mm培养皿中。
注意:为保持无菌,确保所有实验器材和手术工具均为无菌状态。 - 使用尖头剪刀在睾丸上剪开一个小口,以去除睾丸外膜 白膜,包裹睾丸的厚纤维膜。然后用镊子撕开白膜,用镊子挤压将曲细精管挤出,并弃去白膜。
注意:在弃去外膜时,某些后续应用可能会从中受益 睾丸动脉 与白膜一同去除,避免损伤曲细精管。 - 将曲细精管转移至新的培养皿中,并加入足量无菌 PBS 以覆盖培养皿底部。随后,轻轻将曲细精管拉开,注意避免损伤管状结构。
注意:过度的机械应力会影响透射照明模式,并损害组织的活性及其细胞结构。从这一步开始,小管也可直接用于全-mount 免疫染色,无需进行分期(3B)。有时,通过加入针对不同分化阶段精原细胞中表达的蛋白(如 SALL4、c-KIT 和 DNMT3A)的抗体,即可在后续回顾性地确定生精上皮分期。18,23精原细胞的密度是一个相对可靠的分期指标(图2).
2. 透射光辅助显微解剖
- 用胶带将培养皿牢固地固定在解剖显微镜的载物台上。
注意:必须将培养皿牢固地用胶带固定,以防止其移动,从而避免已收集的不同时期的曲细精管节段发生混合。 - 为揭示处于焦点下的曲细精管的光吸收模式,需确保样本从下方 illumination,光线穿过样本。 即,进行透射 illumination。
注意:所吸收/散射的光量与伸长精子细胞中染色质的凝聚程度及其在生精小管内的束状排列程度成正比:染色质越凝聚,吸收的光越多。 即,颜色显得更深。 - 了解不同阶段光吸收模式的描述,如所述 图2, 图5A 和 图 S1 使用精细镊子小心移动小管束。
注意:这些阶段始终按照逻辑顺序依次进行,形成生精上皮波。然而,需要了解的是,生精波的方向偶尔会发生逆转,随后又恢复原方向(也称为波动性调制)。4,9),有时会使操作复杂化。此外,各个阶段的长度(以小管的毫米数计)差异较大。 - 使用带钩尖的镊子小心提起目标小管,然后用显微解剖剪剪取适当长度的节段(参见 补充视频 1镊子尖端的钩状结构便于提起和固定小管,同时有助于避免挤压小管。
注意:切割片段的长度取决于下游应用。若需收集特定发育阶段的肾小管片段用于蛋白质或RNA分析12,13 (II–V、VII–VIII 和 IX–XI, 图5B)长度通常为2–5 mm。当采用标准的苯酚-氯仿提取法时,每1 mm生精小管可获得约200 ng RNA。对于阶段性生精小管节段的整体染色,节段的长度应为 >5 mm。制作压片时,组织片段的长度不应超过1–2 mm,因为若片段过长,中间的细胞可能无法逸出。在培养皿下使用毫米刻度尺以准确测量小管长度。
3. 不同样品的免疫染色
- 压片制备:阶段验证与免疫染色
注意:可通过将特定阶段的小管片段置于载玻片上,加盖盖玻片进行压片,从而利用相差显微镜对活细胞进行形态学分析,并进一步开展免疫染色。建议初学者在熟悉透射光辅助显微解剖法时采用此方法来验证各阶段。- 使用移液器吸取10 μL体积,收集小管片段并转移至载玻片上。
- 小心地将盖玻片(20 mm × 20 mm)盖在小管上进行压片。细胞将从小管中流出,形成单层活细胞。在盖玻片边缘放置滤纸,以促进细胞扩散。注意避免过度挤压,以保持细胞活性。
- 在显微镜下观察细胞铺展情况。使用40倍物镜的相差显微镜,通过观察存在的细胞类型来确认阶段识别(图2,图S2)。
- 当细胞从小管两端铺展形成圆形单层后,用镊子夹住载玻片,将其浸入盛有液氮的容器中,保持10秒。也可将载玻片置于干冰板上进行冷冻。
- 使用解剖刀轻轻撬开并移除盖玻片。
- 立即进行固定处理,迅速将载玻片放入盛有90%乙醇的容器中固定2–5分钟。
注意:确保压片样本在放入90%乙醇前未解冻。也可使用其他固定剂,如丙酮,固定10分钟。 - 空气干燥后,可在室温(RT)下短期保存(数天内),或于-80 °C长期保存。
- 进行免疫染色时,用4%多聚甲醛(PFA)在室温下后固定样本10分钟。
- 用PBS冲洗,并在含0.1% Triton X-100的PBS中透化处理5分钟。
- 用PBS冲洗,并在每个压片样本周围用疏水笔画一圈。
- 在疏水圈内加入50–100 μL含10% BSA(牛血清白蛋白)和0.1% Tween的PBS缓冲液(PBST),在室温下封闭30分钟。
- 吸除BSA溶液,加入用10% BSA-PBST稀释的一抗,室温孵育1小时。
- 用PBST洗涤3次,每次5分钟。
- 加入用10% BSA-PBST稀释的二抗进行孵育。
注意:如需染色顶体,可用Rhodamine标记的花生凝集素抗体(PNA,1:1000)替代特异性一抗和二抗,在含10% BSA的PBST中室温孵育1小时(图S3)。 - 用PBST洗涤3次,每次5分钟,再用PBS冲洗,最后用含DAPI的封片剂封片。
- 生精小管整体免疫染色
注意:以下方案描述的是已分阶段的小管片段(来自步骤2.4)的整体染色流程。若研究者希望对未分阶段的小管(来自步骤1.5)进行整体染色,请注意步骤3.2.1和3.2.7中的说明。- 使用移液器将小管片段(来自步骤2.4)转移至含有冰浴PBS的15 mL锥形管中,置于冰上静置沉降。
注意:若使用来自步骤1.5的未分阶段小管,需在培养皿中通过反复吹打(将液体吹入并吸出倾斜的培养皿数次)进行分离。使用剪去尖端的1 mL移液枪头。此步骤旨在打开组织结构,但应避免过度吹打以免损伤小管。沉降过程需数十秒,小管碎片、间质细胞及细胞碎片将留在上清液中。 - 小心用移液器或抽吸装置去除上清液(SN)。加入10 mL冰浴PBS,轻轻翻转混匀。
- 静置沉降后,如前去除上清液。
- 加入5 mL 4% PFA,在+4 °C条件下于旋转摇床上固定5小时(20–30 rpm)。
注意:固定时间取决于目标蛋白及其亚细胞定位。对于核蛋白和胞质蛋白,通常2小时固定已足够;而对于膜标记物(如GFRα1,即GDNF家族受体α1;图6A,B),建议延长固定时间至最多6小时。 - 静置沉降后,如前去除上清液(PFA),加入10 mL PBS并翻转试管进行短暂冲洗。
- 静置沉降后,如前去除上清液,并在+4 °C条件下于旋转摇床上用PBS洗涤至少3次,每次不少于10分钟,随后进行染色或于+4 °C保存。
注意:若操作环境无菌且洁净,样本可保存并使用数周。另可加入叠氮化钠至终浓度0.02%(w/v)(由2%母液稀释),以帮助保存小管,再于+4 °C储存。 - 使用1 mL移液器将10–20段固定后的小管转移至2 mL圆底离心管中。静置沉降后去除上清液。
注意:若处理的是未经分阶段的长小管,可将小管倒入培养皿中,使用显微解剖剪和镊子将其剪成约5–20 mm的片段。过长的片段在染色过程中易缠绕,而过短的片段则容易丢失。 - 加入1 mL含2% BSA和10% FBS(胎牛血清)的PBS缓冲液(含0.3% Triton X-100,简称PBSX),在室温下于旋转摇床上封闭至少1小时(20–30 rpm)。
- 用1 mL PBSX冲洗,吸除上清液,加入250 μL用1% BSA-PBSX稀释的一抗(稀释比例通常为1:100–1:2000),在室温下孵育2小时,或于+4 °C孵育过夜,同时置于旋转摇床上(20–30 rpm)。
- 用移液器吸除抗体溶液,如上用1 mL PBSX冲洗小管,随后在室温下于旋转摇床上用PBSX洗涤3次,每次1小时(20–30 rpm)。
注意:完成第一次洗涤后,样本可根据需要在+4 °C过夜保存。 - 去除上清液,加入250 μL用1% BSA-PBSX稀释的二抗(通常为荧光标记抗体,稀释比例1:500),用铝箔包裹避光,在室温下于旋转摇床上孵育1小时(20–30 rpm)。
- 重复步骤3.2.10。
- 最后去除上清液,将小管转移至载玻片上。使用加样枪头轻轻分离并将其排列成线性条带。吸除多余缓冲液,加入封片剂并加盖盖玻片。
注意:排列过程中应避免小管干燥。大多数情况下无需使用DAPI对细胞核进行复染。可用指甲油密封盖玻片边缘,防止样本干燥和降解。载玻片可在成像前于+4 °C保存1–2周。
- 使用移液器将小管片段(来自步骤2.4)转移至含有冰浴PBS的15 mL锥形管中,置于冰上静置沉降。
结果
借助透射照明辅助对小鼠曲细精管进行成功分期和显微解剖,主要取决于找到合适的照明条件和适用的解剖显微镜,以及识别各分期特有特征的能力。VII–VIII期因上皮顶端表面排列着大量完全凝集的伸长精子细胞而呈现均匀深暗的外观(图5A 和 图S1)。在精子释放(spermiation)后,成熟精子进入管腔,此时上皮中不再含有凝集的伸长精子细胞,因此IX–XI期的曲细精管呈现非常浅淡的外观。在透射照明下观察曲细精管时,最容易识别的特征是精子释放点(图5A 和 图S1 中的星号所示),即从深暗区域(VII–VIII期)突然过渡到浅淡区域(IX–XI期)的位置。浅淡区域之后是弱斑区(weak spot zone,XII–I期)。斑点状外观源于凝集染色质的伸长精子细胞成束排列的结构特征。在随后的强斑区(strong spot zone,II–V期),这些细胞束变得更加明显。此外,精子细胞束向位于基膜附近的Sertoli细胞核迁移,在透射照明下表现为II–V期曲细精管呈现条纹状外观(图2、图5A,B 和 图S1)。至VI期时,细胞束最终分散,正在凝集的伸长精子细胞移向管腔侧,并在VIII期从上皮中释放。
通过压片标本的相差显微镜观察,可准确验证小管节段的具体发育阶段(图2 和 图S2)。压片标本中的具体阶段可根据第1–8步圆形精子细胞顶体的发育情况、伸长精子细胞中染色质浓缩的状态以及精子细胞束的存在来判定16(图3 和 图S2)。此外,早期细胞类型(如B型精原细胞以及细线期或偶线期初级精母细胞)的存在,可根据其形态学特征加以识别,也可辅助阶段的判定。粗线期初级精母细胞的细胞核在VI期左右体积增大,这一特征也可为分期提供额外参考。
分阶段压片制备可用于通过免疫染色研究生精上皮中目标蛋白的表达与定位。由于各阶段的细胞组成明确,可实现对细胞类型特异性表达的精确分析。通过共染顶体,可进一步增强对阶段特异性表达的分析例如,结合PNA)可实现对圆形精子细胞分化各个阶段的可视化观察。文中提供了不同阶段经PNA染色的顶体代表性图像。 图S3顶体染色也可用于回溯性确定生精上皮周期的阶段。然而,与随意使用未分期的片段相比,借助透射光辅助的分期方法能够更简便、快速地找到目标阶段。
生精小管全组织染色通常用于研究与生精上皮基底膜相接触的细胞类型,这些细胞位于小管侧(精原细胞、前细线期精母细胞和塞尔托利细胞;图6A,B)或间质侧(管周肌样细胞和管周巨噬细胞;图6C 和 图S4A)24。然而,该方法也可用于研究位于上皮更深层的细胞或结构,例如血睾屏障(Espin,图S4B)或减数分裂后生精细胞(顶体标记物PNA,图S4C)。若使用未分期的小管片段,可通过针对正在分化的精原细胞(A1、A2、A3、A4、In 和 B;统称为Adiff)中表达的某种蛋白的抗体,回溯性地估算特定发育阶段(图2)。此分期方法依赖于同步发育的Adiff细胞密度,这些细胞在第一次精子发生分化周期中以阶段依赖的方式经历六次有丝分裂1,每次分裂后同步发育的Adiff精原细胞数量翻倍1,25。然而,由于缺乏针对不同世代Adiff细胞的特异性标记物,且对Adiff密度的评估可能存在误差,因此回溯性分期的准确性低于透射照明辅助分期。
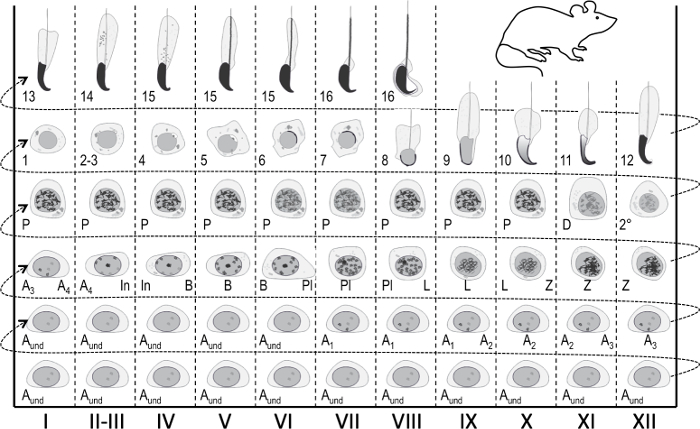
图1:小鼠精子发生分期用曲细精管上皮周期示意图。垂直列显示曲细精管上皮周期不同阶段(以罗马数字I–XII标记)的细胞组合。最幼稚的生殖细胞位于底部,而最成熟的位于顶部。要追踪生殖细胞的分化进程,需从左至右、从下至上进行观察。曲细精管上皮的一个周期是指按数值顺序连续出现的完整阶段序列。Aund,未分化精原细胞;A1–4,A1–A4型精原细胞;In,中间型精原细胞;B,B型精原细胞;Pl,前细线期初级精母细胞;L,细线期初级精母细胞;Z,偶线期初级精母细胞;P,粗线期初级精母细胞;D,双线期初级精母细胞;2°,次级精母细胞及减数分裂过程。阿拉伯数字1–16表示减数分裂后精子细胞成熟的各个步骤(精子形成)。请点击此处查看该图的放大版本。
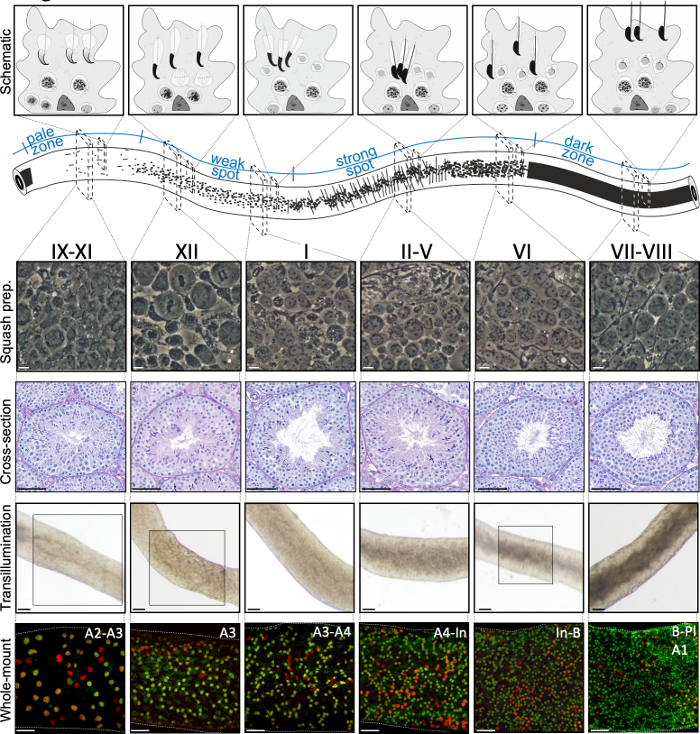
图 2:小鼠生精上皮周期各阶段的细胞组合。生精上皮周期的各个阶段按逻辑顺序依次排列,从而在生精小管的纵轴上形成生精波。上图展示了不同阶段的生殖细胞组合,以及各类细胞在支持细胞(浅灰色)胞质凹陷中的位置。生精小管示意图展示了生精波以及透射光照下浅色区、弱亮点区、强亮点区和暗区的特定透光模式。从每个标注的阶段中,展示了压片标本的活细胞相差显微图像以及过碘酸-希夫(PAS)染色的睾丸横切面图像。下方两组图像显示了生精小管节段经透射光照(上)或使用针对SALL4(红色,全精原细胞标记物)和DNMT3A(绿色,Adiff标记物)抗体染色(下)后的结果。阶段IX-XI、XII和VI的透光模式以方框区域标出。透光吸收模式(上)和DNMT3A阳性分化型精原细胞的密度(下)均可用于确定生精周期的(大致)阶段。连续世代的Adiff被称为A1–A4型、中间型(In)和B型精原细胞。每一次分裂均使其精原细胞密度加倍。在阶段VI–VIII,当观察到减数分裂前细线期精母细胞(Pl)时,生精上皮基底膜上的细胞密度达到最高。比例尺:压片标本为10 μm,其余为50 μm。请点击此处查看该图的放大版本。
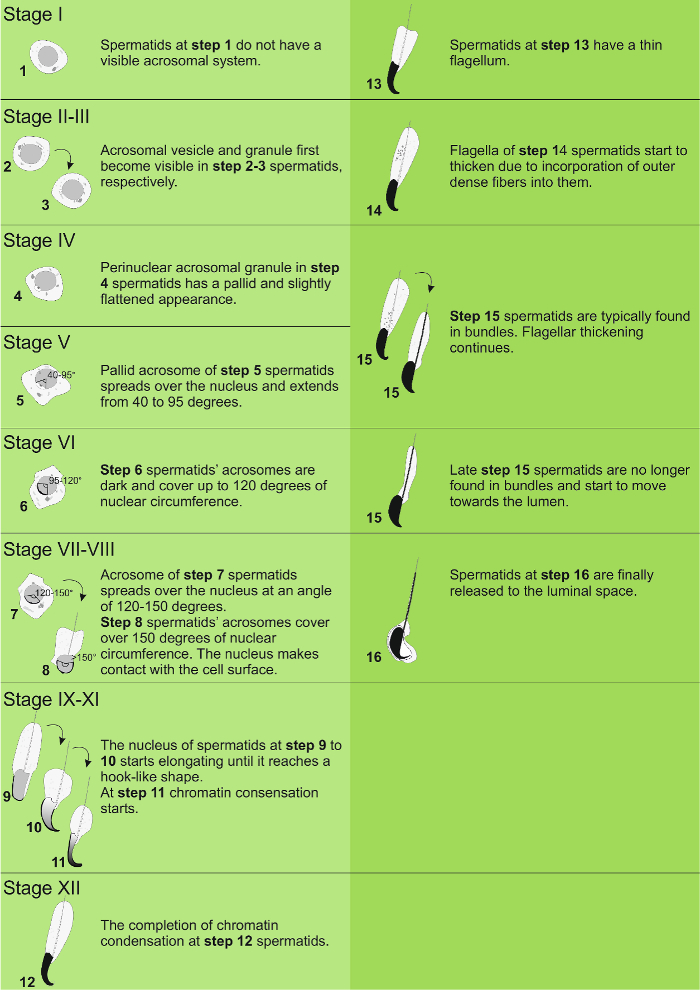
图3:精子形成过程的各个阶段。 精子细胞在精子形成不同阶段的典型特征。请点击此处查看该图的放大版本。
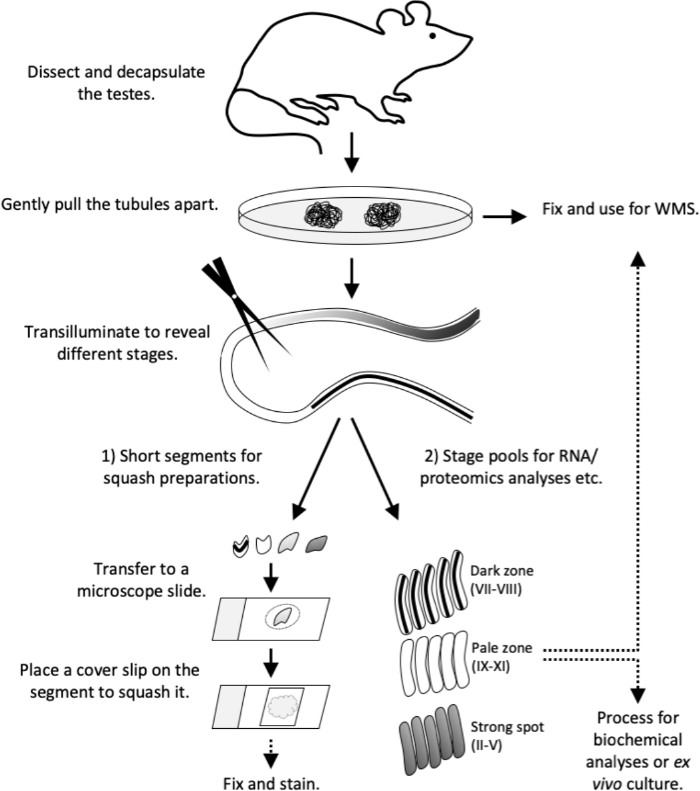
图4:本研究的工作流程。透射照明模式已在成年(>8周龄)小鼠中完全建立。处死小鼠后立即进行睾丸解剖和去囊操作。在培养皿中轻柔地将曲细精管分开。固定曲细精管用于整体染色,或直接进行透射照明观察。在透射照明下:1)切取特定发育阶段的短段曲细精管,用于压片制备(质量控制或免疫染色);或 2)切取较长的管段以收集不同阶段的组织池,用于RNA和蛋白质组学分析、组织培养或整体染色。将短段曲细精管转移至载玻片上,加入10 µL PBS。盖上盖玻片,挤出细胞并形成活细胞单层。在显微镜下观察细胞类型,随后固定并染色。WMS,整体染色。请点击此处查看该图的放大版本。
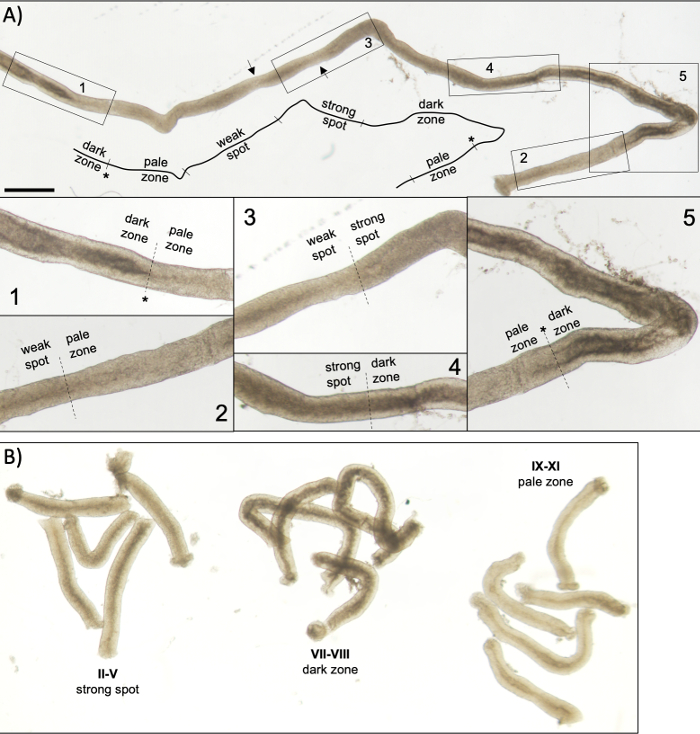
图5:成年小鼠生精小管在透射显微镜下的图像。(A)在透射照明下观察到的一段较长的生精小管,显示出生精上皮的波浪状结构。根据精子细胞中染色质的凝聚程度及其在上皮内的定位,可识别出四个不同的区域:暗区(VII–VIII期)、浅区(IX–XI期)、弱区(XII–I期)和强区(II–VI期)。星号表示精子释放位点。箭头指示弱区中两个因小管受到机械应力而呈现浅色的短片段。比例尺:500 μm。插图1–5为选定小管片段的高倍放大图像。(B) 汇集的生精小管片段,分别代表强区(II–V期)、暗区(VII–VIII期)和浅区(IX–XI期)。请点击此处查看该图的放大版本。
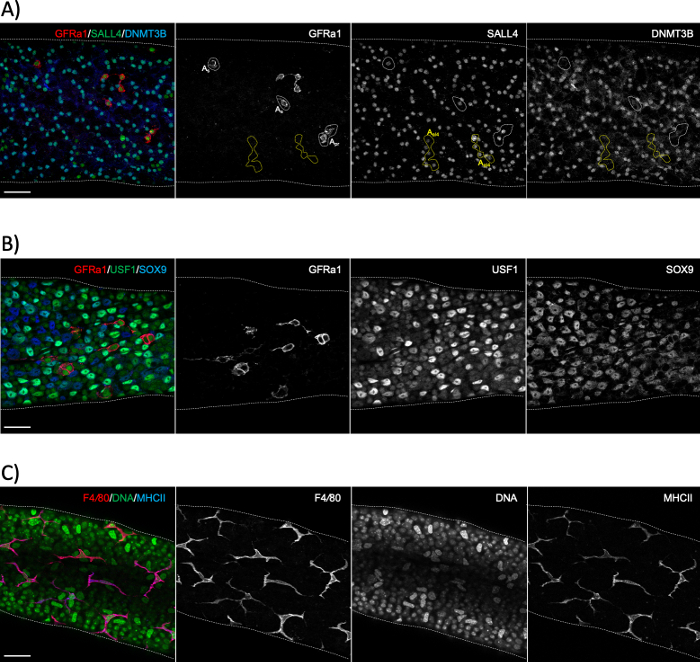
图6:使用精原细胞、支持细胞和管周巨噬细胞标志物进行的整体组织免疫染色。(A)代表生精上皮XI–II期的一段组织的整体染色,使用针对GFRα1(红色)、SALL4(绿色)和DNMT3B(蓝色)的抗体。染色结果显示了三种不同的精原细胞群体:单个孤立(As)或成对(Apr)的未分化干细胞型精原细胞(GFRα1+/SALL4+/DNMT3B-;白色虚线区域),短链状合胞体(此处为4个排列的细胞;Aal4)前体精原细胞(GFRα1-/SALL4+/DNMT3B-;黄色虚线区域),以及正在分化的精原细胞(GFRα1-/SALL4+/DNMT3B+)。SALL4+/DNMT3B+ 的细胞为A3–A4型精原细胞。(B)使用针对GFRα1(红色)、USF1(绿色)和SOX9(蓝色)抗体对完整生精小管进行染色。GFRα1标记精原细胞中的干细胞亚群。USF1在精原细胞和SOX9+的支持细胞中均有表达。(C)成年小鼠的管周巨噬细胞对F4/80(红色)和MHCII(蓝色)均呈阳性。DAPI标记DNA(绿色)。明亮且较大的核为管周肌样细胞的细胞核。比例尺:50 μm。 请点击此处查看该图的放大版本。
图S1:透射照明下观察到的曲细精管长片段,显示生精上皮的波状结构。 根据精子细胞中染色质的凝聚程度及其在上皮内的定位,可识别出四个不同的区域:弱斑区(XII–I期)、强斑区(II–VI期)、暗区(VII–VIII期)和亮区(IX–XI期)。精子释放点(星号)可被识别为暗区突然转变为亮区的位置。比例尺:500 μm。插图1–4为选段曲细精管区域的更高倍放大图像。 请点击此处下载该图。
图S2:不同生精上皮周期阶段的活细胞单层相位差显微镜图像。(A)I期。第1步的圆形精子细胞仍缺乏顶体结构,其特征为具有一个小型圆形细胞核(红色圆圈),内含一个明显的单一染色中心(白色箭头)。细胞质中的色体小体表现为紧贴核膜的深色颗粒(蓝色箭头)。支持细胞核(白色圆圈)包含三个深色焦点:一个大核仁及其两侧的两个卫星染色中心。在压片标本中,支持细胞通常不易观察到,但有时会随生精细胞一同从曲细精管中流出。(B)II–IV期。在第4步的圆形精子细胞(红色圆圈)中,顶体结构(红色箭头)表现为附着于核膜上的浅白色略扁囊泡。伸长中的精子细胞成束排列,并已形成粗大的鞭毛(白色箭头),提示精子尾部中段存在线粒体鞘。粗线期精子细胞(PSpc)的细胞核大小约为圆形精子细胞的两倍,其核内分布着深色的染色质区域。(C)V–VI期。在第5–6步的圆形精子细胞(红色圆圈)中,顶体进一步压扁并延展覆盖于细胞核表面(红色箭头)。面向顶体的核膜区域因顶体附着板(acroplaxome)的存在而呈现深色,该结构为顶体膜与核膜之间富含蛋白质的板状结构。伸长中的精子细胞从束状结构中释放(白色箭头)。上皮中常可见粗线期精子细胞(PSpc)。(D)VII–VIII期。顶体(红色箭头)在核膜上表现为深色衬里并带有白色阴影,完全伸展并几乎覆盖第7–8步圆形精子细胞(红色圆圈)整个顶端区域。此阶段的特征是成熟精子细胞(白色箭头)在压片标本的多个区域中数量丰富。粗线期精子细胞(PSpc)的细胞核在发育过程中体积增大,在VII–VIII期比此前各期更大。粗线期精子细胞(PSpc)核内的深色染色质区域因高度转录活性和减数分裂事件而呈现模糊状。(E)X期。第10步精子细胞核(白色箭头)已开始伸长,但染色质尚未凝集。顶体在核顶端开始形成钩状结构(红色箭头)。粗线期精子细胞(PSpc)的细胞核显得非常大,因其正准备进行减数分裂。(F)XII期。XII期的特征是存在减数分裂中期板(白色虚线圆圈)。具有典型凝集染色质模式的小型圆形细胞为偶线期精子细胞(ZSpc),其姐妹染色体正在配对,以启动联会复合体的形成。比例尺:10 μm。请点击此处下载该图。
图S3:基于顶体和细胞核染色鉴定生精上皮周期的阶段。 用丙酮固定的压片样本经Rhodamine标记的PNA和DAPI染色。I期:在第1步的圆形精子细胞中尚无顶体,而在伸长阶段的精子细胞中可检测到完全发育的顶体。II–IV期:顶体发育始于圆形精子细胞中前顶体/顶体颗粒的出现。在第3步精子细胞中,细胞核表面的顶体小泡呈圆形,随后在第4步精子细胞中变扁。V期:顶体所占据的角度从40度延伸至最大95°。VI–VII期:顶体所占据的角度从95度扩展到120度。VIII–IX期:在第8步精子细胞(VIII期)中顶体完全伸展,细胞核向细胞顶端极化并接触质膜(未示出)。至IX期时,精子细胞核发生变形,首次可见背侧和腹侧表面。X–XI期:精子细胞显示出背侧角度。XII期:此阶段最显著的特征是出现减数分裂图像;白色箭头指示中期板。同时可见带有顶体的伸长精子细胞。比例尺:10μm。请点击此处下载该图。
图S4:非常规标记物的整体染色。(A) α-平滑肌肌动蛋白(aSMA)由曲细精管周围肌样细胞表达。(B) Espin 定位于支持细胞的紧密连接处,参与构成血睾屏障。(C) PNA 定位于精子细胞的顶体。比例尺:50 μm。请点击此处下载该图。
补充视频1:切割代表生精上皮VII-VIII期的曲细精管短段。 请点击此处下载该视频。
讨论
上述透射照明辅助显微解剖方法为精子发生过程的研究提供了一种按生精上皮周期分期进行的分析策略。精子发生是一个高度同步化的过程,精子分化过程中的所有关键步骤均以依赖于特定分期的方式进行调控和执行,例如分化命运决定(VII-VIII期)、减数分裂启动(VII-VIII期)、减数分裂过程(XII期)、精子细胞伸长启动(VIII期)以及精子释放(VIII期)1,26,27。分期定向分析为研究仅局限于精子发生特定阶段的生物学事件提供了强有力的工具,因而能够精确识别这些仅出现在生精上皮周期特定阶段的现象。掌握该方法需要一定练习,同时使用高质量的解剖显微镜和适当的照明条件是成功的关键。将该方法纳入日常研究工具体系,有望显著提升男性生殖功能研究的影响力和生物学相关性,使精子发生过程中分子事件的解析更加精确。
我们研究过的所有野生型小鼠品系在生精小管上皮周期各阶段均表现出相似的透射光模式,并具有保守的细胞关联特征。只要生殖细胞的精子发生分化过程与野生型小鼠无明显差异,该规律同样适用于我们研究过的所有基因敲除小鼠模型。此外,该方法也可推广至其他具有生精小管上皮周期阶段纵向节段性排列特征的物种7。然而,对于生精周期阶段非节段性排列的物种(如人类),则不适用。鉴于染色质在伸长精子细胞中的凝聚过程对定义透射光模式具有关键作用,任何对该过程的调控异常都必然会影响本方法的应用效果。在幼年小鼠和年轻成年小鼠(5–6周龄)中,透射光模式尚未完全建立,因此应仅使用8周龄以上的小鼠。还需注意的是,挤压或牵拉曲细精管会不可避免地影响透射光模式,因其会破坏生精上皮内的细胞结构排列。
分离的曲细精管片段也可进行培养,从而实现 离体 观察和操控与精子发生偶联的过程,包括减数分裂。为确保组织的活性并防止RNA和蛋白质降解,样本应在小鼠处死后2小时内完成采集和处理。对于 离体 生精小管片段的培养中,从处死动物到开始培养的时间不应超过1小时。通常情况下,小管片段的完整性可维持长达72小时。 体外 如果收获得当。
利用压片标本的相差显微镜观察,可以验证甚至更精确地界定生精上皮周期的阶段16。该显微技术在活细胞上进行,为分析提供了额外维度,能够观察特定精子发生阶段中细胞器或细胞的运动28,29,30。相差显微镜可提供精确的分期结果,用于后续免疫染色,从而在精子发生过程中对蛋白质表达及定位动态进行极为详细的分析,包括阶段特异性的变化。
尽管压片制备会使细胞脱离上皮环境,但曲细精管节段的整体免疫染色能够使生精细胞在其生理环境中被研究。因此,与横切面免疫染色相比,整体染色制备可能更有利于清晰展示曲细精管的结构及其细胞间连接。尤为重要的是,在免疫染色前通过透射照明辅助对管段进行分期,可提供特定节段所处发育阶段的信息,从而显著增强该方法的实用性。整体染色是研究位于曲细精管周边细胞(如管周肌样细胞、管周巨噬细胞和精原细胞)的有力工具,同时也可能为减数分裂及减数分裂后生殖细胞的研究提供新的视角。
披露
作者无任何利益冲突需要披露。
致谢
本工作由芬兰科学院基金 [315948、314387 号,授予 N.K.];西格丽德·尤塞柳斯基金会 [授予 N.K.、J.T.];埃米尔·阿尔托宁基金会 [授予 J.-A.M.、T.L.];图尔库分子医学博士培养项目 [S.C.-M.、O.O.] 资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 牛血清白蛋白 (BSA) | Sigma | A9647 | |
| 20x20 mm 盖玻片 | Menzel Gläser | 11961988 | |
| 15 ml 圆底离心管(Falcon) | Sarstedt | 62.554.502 | |
| 胎牛血清 (FBS) | Biowest | S1810 | |
| 记号笔(ImmEdge) | Vector Laboratories | H-4000 | |
| Superfrost Plus 载玻片 | Thermo Scientific | 22-037-246 | |
| 多聚甲醛 (PFA) | Electron Microscopy Sciences | 15714 | |
| 100 mm 培养皿 | Greiner | 664160 | |
| 磷酸盐缓冲液 (PBS) | Gibco | 11503387 | |
| ProLong Diamond 抗荧光淬灭封片剂 | Thermo Fisher | P36962 | |
| 罗丹明标记的花生凝集素 (PNA) | Vector Laboratories | RL-1072 | |
| Triton X-100 | Sigma | 93443 | |
| Tween-20 | Sigma | P2287 |
参考文献
- Mäkelä, J. A., Toppari, J. Testis Physiology: Seminiferous Cycle. Encyclopedia of Reproduction. , Elseiver. (2018).
- Oakberg, E. F. Duration of spermatogenesis in the mouse and timing of stages of the cycle of the seminiferous epithelium. The American Journal of Anatomy. 99 (3), 507-516 (1956).
- Clermont, Y. Kinetics of spermatogenesis in mammals: seminiferous epithelium cycle and spermatogonial renewal. Physiological Reviews. 52 (1), 198-236 (1972).
- Perey, B., Clermont, Y., Leblond, C. The wave of the seminiferous epithelium in the rat. American Journal of Anatomy. 108 (1), 47-77 (1961).
- de Lima e Martins Lara, N., Costa, G., Avelar, G., Lacerda, S., Hess, R., França, L. Testis Physiology-Overview and Histology. Encyclopedia of Reproduction. , ELseiver. (2018).
- Leblond, C. P., Clermont, Y. Definition of the stages of the cycle of the seminiferous epithelium in the rat. Annals of the New York Academy of Sciences. 55 (4), 548-573 (1952).
- Parvinen, M. Regulation of the seminiferous epithelium. Endocrine Reviews. 3 (4), 404-417 (1982).
- Kotaja, N., et al. Preparation, isolation and characterization of stage-specific spermatogenic cells for cellular and molecular analysis. Nature Methods. 1 (3), 249-254 (2004).
- Nakata, H., Sonomura, T., Iseki, S. Three-dimensional analysis of seminiferous tubules and spermatogenic waves in mice. Reproduction. 154 (5), Cambridge, England. 569-579 (2017).
- Russell, L. D., Ettlin, R. A., SinhaHikim, A. P., Clegg, E. D. Histological and histopathological evaluation of the testis. , Cache River Press. Clearwater, FL. (1990).
- Parvinen, M., Hecht, N. B. Identification of living spermatogenic cells of the mouse by transillumination-phase contrast microscopic technique for "in situ" analyses of DNA polymerase activities. Histochemistry. 71 (4), 567-579 (1981).
- Ventelä, S., Mäkelä, J. A., Kulmala, J., Westermarck, J., Toppari, J. Identification and regulation of a stage-specific stem cell niche enriched by Nanog-positive spermatogonial stem cells in the mouse testis. Stem Cells. 30 (5), Dayton, Ohio. 1008-1020 (2012).
- Faisal, I., et al. Transcription factor USF1 is required for maintenance of germline stem cells in male mice. Endocrinology. 160 (5), 1119-1136 (2019).
- Wright, W. W., et al. Identification of stage-specific proteins synthesized by rat seminiferous tubules. Biology of Reproduction. 29 (1), 257-270 (1983).
- Johnston, D. S., et al. Stage-specific gene expression is a fundamental characteristic of rat spermatogenic cells and Sertoli cells. Proceedings of the National Academy of Sciences of the United States of America. 105 (24), 8315-8320 (2008).
- Toppari, J., Bishop, P. C., Parker, J. W., diZerega, G. S. DNA flow cytometric analysis of mouse seminiferous epithelium. Cytometry. 9 (5), 456-462 (1988).
- Mäkelä, J. A., et al. Hedgehog signalling promotes germ cell survival in the rat testis. Reproduction. 142 (5), Cambridge, England. 711-721 (2011).
- La, H. M., et al. Identification of dynamic undifferentiated cell states within the male germline. Nature Communications. 9 (1), 04827(2018).
- Toppari, J., Parvinen, M. In vitro differentiation of rat seminiferous tubular segments from defined stages of the epithelial cycle morphologic and immunolocalization analysis. Journal of Andrology. 6 (6), 334-343 (1985).
- Parvinen, M., Vanha-Perttula, T. Identification and enzyme quantitation of the stages of the seminiferous epithelial wave in the rat. The Anatomical Record. 174 (4), 435-449 (1972).
- Kluin, P. M., Kramer, M. F., de Rooij, D. G. Spermatogenesis in the immature mouse proceeds faster than in the adult. International Journal of Andrology. 5 (3), 282-294 (1982).
- Yoshida, S., et al. The first round of mouse spermatogenesis is a distinctive program that lacks the self-renewing spermatogonia stage. Development. 133 (8), Cambridge, England. 1495-1505 (2006).
- Chan, A. L., et al. Germline stem cell activity is sustained by SALL4-dependent silencing of distinct tumor suppressor genes. Stem Cell Reports. 9 (3), 956-971 (2017).
- Lokka, E., et al. Generation, localization and functions of macrophages during the development of testis. Nat Commun. 11 (1), 4375(2020).
- Mäkelä, J. A., Toppari, J. Testis physiology: Spermatogenic cell syncytium. Encyclopedia of Reproduction. , Elseiver. (2018).
- Griswold, M. D. Spermatogenesis: The commitment to meiosis. Physiological Reviews. 96 (1), 1-17 (2016).
- Mäkelä, J. A., Toppari, J. Spermatogenesis. Endocrinology of the Testis and Male Reproduction. , 1-39 (2017).
- Ventela, S., Toppari, J., Parvinen, M. Intercellular organelle traffic through cytoplasmic bridges in early spermatids of the rat: mechanisms of haploid gene product sharing. Molecular Biology of the Cell. 14 (7), 2768-2780 (2003).
- Parvinen, M., Parvinen, L. M. Active movements of the chromatoid body. A possible transport mechanism for haploid gene products. The Journal of Cell Biology. 80 (3), 621-628 (1979).
- Parvinen, M., Söderström, K. O. Chromosome rotation and formation of synapsis. Nature. 260 (5551), 534-535 (1976).
重印与许可
