活体成像是研究健康与疾病状态下生物学的有力工具。本方案描述了使用标准双光子显微镜对小鼠视网膜进行经瞳孔成像的方法。同时展示了多种活体成像技术,用于对视网膜中多个细胞群体进行荧光标记。
本文内容
摘要
摘要
视网膜将来自环境的光信号转化为电信号,并传递至大脑。视网膜疾病较为常见,可导致视力障碍和失明。了解此类疾病的进展机制对于制定新的治疗方法至关重要。在活体中 在疾病动物模型中进行显微成像是一种理解神经退行性病变的有力工具,已推动了从阿尔茨海默病到中风等多种疾病治疗的重要进展。由于视网膜是唯一可通过光学方法直接接触的中枢神经系统结构,因此天然适用于活体成像。然而,晶状体和角膜的固有光学特性为有效成像带来了一定挑战。
本方案概述了在活体小鼠视网膜中以细胞分辨率进行细胞群体和结构的双光子成像的方法,适用于急性及慢性成像实验。文中展示了利用腺相关病毒(AAV)载体、转基因小鼠和无机染料等多种标记技术对视网膜神经节细胞(RGC)、无长突细胞、小胶质细胞以及血管进行成像的实例。重要的是,这些技术可推广至视网膜中所有细胞类型,并描述了获取其他感兴趣细胞群体的建议方法。此外,还详细介绍了用于图像展示和定量分析的手动图像后处理示例策略。这些技术可直接应用于健康与疾病状态下视网膜功能的研究。
引言
活体可视化中枢神经系统通常需要侵入性操作,例如颅骨变薄以及植入玻璃窗或光学中继透镜。视网膜是神经系统中唯一无需侵入性制备即可直接观察的结构,因为它天然接收来自环境的光线。由于视网膜具有便捷的光学可及性,使其成为研究中枢神经系统的理想模型系统。
活体荧光成像技术已用于在青光眼1,2、视神经损伤1,3,4和脑卒中5的小鼠模型中追踪视网膜神经节细胞(RGC)的死亡过程,以及在退行性疾病中监测小胶质细胞活化6,7,8和血管结构的变化9。内在信号也可用于可视化视锥视杆细胞10,11,12和视网膜色素上皮细胞13。多种视网膜活体成像方法采用专为眼科用途设计的高度专业化设备6,或经过高度改造的光学系统,以校正角膜和晶状体的固有像差8,9,11,12,13,14。
本实验方案展示了一种在细胞分辨率下对视网膜中荧光信号进行活体成像的方法,该方法采用基本手段部分校正小鼠眼球前段光学系统的影响。该策略仅需对常用于脑部活体成像的多光子显微镜系统进行微小调整即可实现。由于该方法搭建简便,且小鼠所受应激较小,因此适用于进行急性及慢性时间序列的延时成像实验。此外,基于遗传学标记或有机染料的标记方法可用于标记视网膜中的特定组分,包括视网膜神经节细胞(RGCs)、无长突细胞、小胶质细胞以及血管系统,这些方法均与本成像技术兼容,可实现对视网膜功能关键细胞类型与结构的活体观察。这些工具亦可进一步拓展,用于标记视网膜中大多数其他神经元类型以及胶质细胞和血管组分。
方案
注意:以下实验步骤均遵循圣路易斯华盛顿大学机构动物照护与使用委员会的指导方针。有关本研究中所用试剂、仪器和动物的详细信息,请参见材料表。
1. 腺相关病毒注射
注意:在具有限制性表达模式的 Cre 转基因小鼠品系中,可实现视网膜特定细胞的标记。本部分描述了通过玻璃体内注射递送编码荧光蛋白的 AAV 载体,该荧光蛋白的表达依赖于 Cre,从而标记特定的视网膜细胞。从小鼠(雄性和雌性)4 周龄开始进行注射。
- 制备微移液针
- 使用微移液针拉制仪制备硼硅酸盐玻璃毛细管针。将玻璃毛细管装入微移液针拉制仪中,进行斜率测试(Ramp Test),记录所得数值。弃去用于斜率测试的玻璃毛细管。
- 采用以下参数拉制微移液针:加热温度:斜率测试值减10;拉力:55;速度:65;时间:120;气压:500;拉制开始时的气压作用时间:20。
注意:不同拉制仪可能需要调整参数。 - 在解剖显微镜下,使用剃刀刀片在拉制后的微移液针尖端处切割,切割位置应选择在玻璃尖端受力时轻微偏转的位置,距离锥形末端约10 mm处。以锐角进行切割,使切口形成斜面尖端。弃去钝头的尖端。
- 制备注射用注射器
- 将截断的玻璃微移液针插入一段长2 cm的乙烯-醋酸乙烯酯(EVA)塑料管(内径0.05",外径0.09")中。将该段管子的另一端连接至一段长20 cm的EVA管(内径0.02",外径0.06")。
- 将管路连接至带有22 G固定针头的50 μL玻璃注射器。取出玻璃注射器的推杆,使用25 G注射器针头将矿物油注入注射器及相连管路中,从后方填充。在微移液针尖端保留约4 mm的空气间隙。
- 玻璃体内注射AAV
- 按照机构规定的活体手术操作规程,采用标准无菌技术进行玻璃体内注射,包括佩戴无菌外科手套、洁净实验服、口罩,使用无菌操作区域及经高压灭菌的器械。
- 从-80 °C保存条件下取出一份AAV载体,置于冰上解冻。解冻后,在2,000 × g条件下离心10秒,以去除可能存在的气泡。
- 遵循机构动物研究委员会关于麻醉和管制药品的指导原则。使用30 G皮下注射针,按0.1 mL/10 g体重剂量向腹腔(IP)注射氯胺酮/赛拉嗪混合液(生理盐水中含氯胺酮10 mg/mL,赛拉嗪1 mg/mL;对小鼠的有效剂量为:氯胺酮100 mg/kg,赛拉嗪10 mg/kg)。将小鼠放回笼中,等待5分钟使麻醉生效。
- 使用30 G皮下注射针,按0.1 mL/10 g体重剂量皮下注射美洛昔康(0.5 mg/mL溶于0.9%氯化钠溶液)。
- 通过检测角膜反射以及尾部和足趾夹捏的回缩反射来评估麻醉深度。若尾部和足趾回缩反射消失后仍存在角膜反射,可在每只眼睛中滴加一滴0.5%丙帕卡因溶液,等待10秒。
- 将小鼠侧卧置于体视显微镜下。使用微型鳄嘴止血钳夹住眼眶上下方的皮肤,并将钳子固定在内眦处,使眼球部分从眼眶中向外移位。
- 用连接玻璃注射器的切割微移液针穿刺侧部巩膜,穿刺点位于角膜缘后方约1–2 mm处。避免损伤紧邻角膜缘后方呈环形走行的血管系统。穿刺时针头应与巩膜垂直,并在刺穿巩膜后立即轻微回撤微移液针,以防损伤晶状体。
- 使用玻璃注射器的推杆抽出1–2 μL玻璃体液,其体积大致等于拟注射的液体量。将微移液针从眼中退出,并排出所抽取的玻璃体液。
- 用1–2 μL AAV填充微移液针尖端,在病毒载体与矿物油之间保留约4 mm的空气间隙,以避免混合。将微移液针插入第一次穿刺在巩膜上形成的孔中,缓慢推动玻璃注射器的推杆,在20–30秒内完成病毒载体的注射。观察微移液针尖端内病毒载体的液面位置,注意在空气进入眼内之前停止注射。
- 保持微移液针在同一位置10秒,然后将其撤出。取下鳄嘴止血钳。
- 向注射眼涂抹土霉素/多粘菌素B抗生素眼膏。将小鼠置于加热垫上,监测其从麻醉中恢复的情况(参见3.4.3)。
- 将小鼠送回饲养笼,并按照机构指南进行术后护理。在成像前给予2–3周时间,以实现病毒介导的荧光蛋白表达。
2. 显微镜设置
注意:显微镜光路示意图见图1。
- "常开"设备:这些仪器应始终保持开启状态,除非正在进行调整或维护。将激光冷却系统的高温设定为20.0 °C。打开超快钛宝石激光器的主电源,等待系统启动过程完成,然后将"Laser Enable"钥匙转至"On"位置。
- 发射光路配置
- 根据目标荧光染料,使用适当的二向色镜和带通滤光片组合来配置荧光发射收集光路。
注:本文中,Twitch2b成像使用包含505长通二向色镜以及480/40和535/30带通滤光片对的滤光片组。GFP成像使用红/绿滤光片组,包含560长通滤光镜及525/50和605/70带通滤光片。Evans Blue成像使用560短通滤光片。更换发射滤光片时,发射光路会暴露于杂散环境光下,可能损坏光电倍增管(PMT)。在调整收集光路前,请确保关闭PMT并关闭室内照明,以避免光照对PMT功能造成不利影响。
- 根据目标荧光染料,使用适当的二向色镜和带通滤光片组合来配置荧光发射收集光路。
- 启动图像采集
注:双光子激光直接照射具有危险性,尤其对眼睛而言,因为远红光不会引发眨眼反射。必须采取适当措施,确保激光在光路中封闭,并设置安全保护机制,防止用户通过目镜或物镜发射光受到照射。用户应清楚了解激光在何种条件下会从物镜发出,并采取适当预防措施,避免暴露于此类危险中。- 打开数据采集设备、计算机、Pockels盒、显微镜和载物台控制器、机械快门控制器以及PMT主电源。在准备进行图像采集且确保PMT不受杂散光照射之前,保持PMT处于"Disabled"状态。在计算机上打开激光控制界面和图像采集软件。通过计算机界面开启激光,并确认锁模状态。
- 设置所需的激光波长。通过打开激光快门,确认激光已进入Pockels盒,并等待30分钟使激光功率稳定。
- 在物镜处测量激光功率并设定最大激光百分比
注:在测量激光功率期间,激光辐射会从物镜发出。请关闭显微镜封闭罩帘,并在启用成像快门前佩戴适当的眼部防护装备。在系统初次安装时测量激光功率,建立每个目标波长的输出功率曲线,并在此后每月测量一次,以验证激发功率的稳定性。- 打开光功率计,选择与激光波长对应的测量波长。将光功率计探头放置在显微镜载物台上,并在X-Y方向上将其移动至物镜正下方。使用Z方向的电动聚焦驱动装置,降低物镜,直到功率计探头位于物镜下方约1 mm处。
- 将显微镜激发光路从落射荧光照明切换至激光。启用机械快门。
- 在图像采集软件中启动点扫描,以打开成像快门,使激光照射到光功率计上。在扫描软件中将激光功率设为100%。优化功率计探头的X-Y和Z位置,直至获得最高的激光功率读数。
- 在Pockels盒上从0.1%到100%范围内测量物镜处的激光功率,每隔10%记录一次数据。记录物镜处功率达到45 mW时对应的Pockels盒百分比,并将该值设为图像采集软件中的最大激光功率。
注:经组织学染色在成像两周后评估,活体小鼠视网膜成像中未引起目标组织可见损伤的最高功率为45 mW。当物镜处使用55 mW进行成像后,视网膜明显损伤已可辨识。 - 禁用成像快门,并将激发光路恢复至落射荧光模式。
3. 图像采集前小鼠的准备
- 用于成像的小鼠麻醉
注意:确保正确使用废气清除系统,以减少异氟烷暴露。确保麻醉诱导室的排气口连接至被动废气过滤罐,小鼠麻醉鼻罩的出口连接至由气体抽吸装置提供真空的主动废气过滤罐。请遵循制造商关于监测过滤罐重量以进行更换的指南。- 使用上述步骤1.3.3中所述的氯胺酮/赛拉嗪混合物对小鼠进行麻醉。或者,如果在成像过程中(成像时间>30分钟)也使用异氟烷维持麻醉,则可通过吸入异氟烷诱导麻醉。将小动物麻醉仪设置为以0.5 L/min的流速向诱导室输送5%异氟烷与室内空气的混合气体。将小鼠放入诱导室,并等待15秒使其进入麻醉状态。
- 将异氟烷蒸发器切换至0%,并将麻醉气流导向鼻罩。对诱导室执行5秒的"O2冲洗"。将小鼠从诱导室中取出,并固定于头部固定装置(见第3.3节),连接鼻罩。
- 使用1%异氟烷与室内空气的混合气体(流速0.5 L/min)维持麻醉。在整个麻醉过程中每5分钟监测一次呼吸频率,并调整异氟烷浓度以维持约60次/分钟的呼吸频率。
注意:这些参数(异氟烷浓度、流速)也可用于由氯胺酮/赛拉嗪混合物诱导的麻醉维持。
- 瞳孔散大
- 配制含1% w/v阿托品和2.5% w/v盐酸去氧肾上腺素的水溶液。将散瞳液在避光条件下室温保存。
- 使用一次性移液器滴管,向待成像的每只眼睛滴加一滴散瞳液。关闭室内灯光,等待5分钟使瞳孔充分散大。瞳孔散大后,用无绒纸巾吸除残留的散瞳液。
注意:确保散瞳液不进入鼻腔。 - 向每只待成像的眼睛滴加大量润滑性眼用凝胶。若需对双眼成像,则在非成像眼的眼凝胶上覆盖一小片塑料保鲜膜以防止脱水。若仅对单眼成像,则在非成像眼使用润滑性眼膏。
- 成像时小鼠的定位
- 为将小鼠固定在成像用头部固定装置上,旋转固定装置的主臂,使耳棒低于水平方向倾斜60°或更大角度。将下耳道针固定在向内伸出位置,上耳道针置于回缩位置。
- 使小鼠面朝咬杆,将一侧耳朵套入伸出的下针,并将针插入耳道。松开固定上耳道针的螺丝,将针伸入另一侧耳道,然后拧紧螺丝以固定头部。
- 将咬杆向小鼠头部方向滑动。轻轻抬高小鼠头部,然后将小鼠上颌门齿放入咬杆的孔中。轻力回拉咬杆以固定头部,并通过拧紧螺丝固定咬杆位置。
- 若使用异氟烷,在固定小鼠门齿前,先将鼻罩通过其插槽滑入咬杆。按照步骤3.3.3固定并拧紧咬杆位置。通过鼻罩上表面的两个螺丝拧紧鼻罩,使其紧密贴合小鼠鼻部,但不压迫吻部。
- 将固定于头部固定装置中的小鼠转移至物镜下方的显微镜载物台上。旋转头部固定装置的主臂,使眼睛瞳孔垂直向上,与光路对齐(图2)。
- 将一片#1.5盖玻片放入紧凑型滤光片支架中,并将支架连接至显微镜载物台。将盖玻片缓慢下移接近眼球,接触润滑性眼用凝胶,使盖玻片水平地位于角膜正上方(图2)。确保盖玻片不接触角膜。
注意:在显微镜上,确保激发光路设置为落射荧光模式,发射光路设置为目镜观察模式。以最低功率开启落射荧光照明器并打开照明器快门。选择与待成像荧光染料相匹配的落射荧光激发波长和荧光滤光片。 - 使用载物台控制和电动聚焦驱动调节载物台的X-Y方向和物镜的Z轴位置,直至宽场激发光完全覆盖角膜。通过目镜观察,继续调节载物台的Z轴位置,直至视网膜中的荧光细胞或结构清晰对焦。若样品信号亮度不足以通过目镜分辨单个细胞或目标结构,可适当增加落射荧光照明器的功率。
注意:若难以定位视网膜,虹膜是一个高对比度的 解剖标志,可用于定位 ,然后向下聚焦至视网膜。此步骤还可用于验证瞳孔是否已充分散大。 - 获取与小鼠晶状体共轴的成像区域。利用头部固定装置的多自由度调节功能调整小鼠角度,直至在调节焦平面时仅出现离焦光斑的扩大或缩小。关闭落射荧光照明器并关闭照明器快门。
注意:在Z轴方向扫描焦平面时,若离焦光出现明显的X-Y方向视差,表明视网膜未与成像光路共轴。
4. 双光子图像采集
- 图像设置与采集参数
注意:关闭室内灯光,并遮挡房间内的杂散光源。确保落射荧光照明器已关闭,且照明器快门处于关闭状态。- 将激发光路切换至激光,发射光路切换至光电倍增管(PMTs)。
- 在图像采集软件中,设置帧大小为 512 × 512,帧平均值为 3。将每层步进设为 -8 µm。设定 z 轴步进从堆栈顶部开始并向下推进,以最小化双光子激光对光感受器的激活。
注意:减小步长可提高Z轴分辨率,但会延长成像时间;在此成像配置下,8 µm的步长已足以分辨细胞胞体。 - 打开并启用光电倍增管(PMTs),将PMT电压调节至680 V,并启用激发光快门。
注意:带电源的光电倍增管(PMT)易受光照损伤。确保落射荧光照明器已关闭,显微镜遮光罩已拉上,且室内灯光已关闭。 - 开始对目标组织进行活体成像预览,起始激光功率为1%。自动调节显示亮度以观察目标细胞或结构。自动调节扫描相位。若目标组织信号微弱或不清晰,逐步提高激光功率百分比,直至结构可见,但不得超过步骤2.4.4中设定的45 mW限值。
注意:对于16位图像,在包含目标结构的Z平面中自动调整亮度时,若显示值约为1000,则表明样品亮度充足。 - 在X-Y方向上移动显微镜载物台,使目标成像区域居中,然后调节至Z平面,使目标结构清晰对焦。
注意:在视神经乳头附近成像可使其作为慢性成像实验中明确的解剖标志。 - 如果这是长期延时成像实验,请在采集计算机上打开先前的图像,并将其作为参考以定位相同的感兴趣区域。确保当前成像角度与之前图像的角度相近,以便以最小的视差获取同一组细胞。
注意:可能需要进一步调整小鼠头部位置,以成像与先前时间点相同的细胞图3). - 通过导航至成像区域最上方和最下方的感兴趣Z平面来设定成像堆栈的Z轴范围,并采集图像。图像采集完成后,关闭光电倍增管(PMTs)和发射光快门。将发射光路切换回目镜,激发光路切换至落射荧光照明。将小鼠从显微镜载物台上取下。
- 系统软件与硬件关闭
- 退出图像采集软件。在计算机界面中关闭激光器。按照与启动顺序相反的顺序关闭硬件,但以下情况除外: "常开模式" 设备。
- 小鼠恢复
- 从显微镜载物台上取下头部固定装置和小鼠。如适用,将异氟烷挥发罐调至0%。从小鼠头部固定装置中取出小鼠。
- 用无绒纸巾轻轻擦去眼用润滑凝胶,并在双眼涂抹白凡士林-矿物油润滑眼膏。将小鼠置于循环温水加热垫(设定为37 °C)上,持续照看小鼠并监测其呼吸频率,直至小鼠苏醒并恢复自主活动能力。随后将小鼠放回饲养笼中。
- 若适用,在玻璃体内注射后24小时评估动物活动性及发病情况。研究结束后,以三溴乙醇过量(250 mg/kg)处死小鼠,并用4%多聚甲醛进行心脏灌流,以保存视网膜组织。
5. 图像处理与分析
- 拆分并合并多通道数据
- 由于某些图像采集软件以交错格式存储多通道图像,需使用 Fiji(https://imagej.net/Fiji)等软件打开 .tif 图像文件,以分离各通道。
- 在 Fiji 的 图像 菜单中,选择 堆栈 | 工具 | 拆分交错图像。输入图像包含的通道数量,然后点击 确定。
- 要将分离的通道合并为单个文件,请转至 图像 | 颜色 | 合并通道。将拆分后的图像通道分别放入不同的颜色通道中,点击 确定 以生成多通道合成图像。将该合成图像另存为新的 .tif 文件。
- 多通道图像中荧光强度的定量分析
注意:可使用 Fiji 在单个图像平面中对指定兴趣区域(ROI)内的荧光强度进行定量分析。通过在同一 ROI 内测量合成图像不同通道的荧光强度,可实现比率型信号的定量分析。对于长期成像实验,建议使用基于激发或发射比率输出的生物传感器。- 在 Fiji 中,进入 分析 | 工具 | ROI 管理器。在 Fiji 中打开合成图像,滚动至与目标结构对应的 z 切片,使用 选区工具(如矩形选区、椭圆选区、多边形选区)勾画出兴趣区域(ROI)。
- 按键盘上的 T 键将每个选区添加到 ROI 管理器中。完成所有 ROI 选择后,在 ROI 管理器中点击 测量,以记录各 ROI 的数据,如 面积 和 平均强度值。
- 将 结果 窗口中当前所选通道的测量数据复制到电子表格中。切换至 合成图像 窗口中的下一个 通道,点击 测量,以获取同一组 ROI 在该通道中的测量数据。在 ROI 管理器 中,进入 更多 | 保存,将 ROI 保存为 .zip 文件。
- 用于展示的最大强度投影
- 为展示图像数据,可在 Fiji 中使用 Z 投影功能。在 图像 菜单中,选择 堆栈 | Z 投影。仅选择包含兴趣区域的帧,以降低背景干扰。
- 若需去除光电倍增管(PMT)散粒噪声,可使用 中值滤波功能。在 处理 菜单中,选择 处理 | 滤波 | 中值。选择 1.0 的半径值,以保留空间细节。
- 为生成针对单个细胞的最大强度投影,可重复此过程,仅选择与目标细胞对应的图像帧。
注意:此方法可显著提升解析细胞树突结构的能力(图 4)。荧光强度的测量应在单个图像平面中进行,而非在最大强度投影图像上进行。
结果
通过简单改装一台基础的双光子显微镜,可采用多种转基因、病毒载体或无机染料标记方法,在活体条件下特异性地可视化视网膜中的多种细胞类型和结构。为了观察视网膜神经节细胞(RGCs)和无长突细胞,分别向VGlut2-Cre和VGat-Cre转基因小鼠玻璃体内注射一种依赖Cre的AAV表达载体,该载体编码Twitch2b——一种基于细胞质荧光共振能量转移(FRET)的Ca2+传感器,包含青色和黄色荧光蛋白(分别为CFP和YFP)以及肌钙蛋白的Ca2+结合结构域15。在VGlut2-Cre小鼠中,RGC的胞体清晰可辨,且轴突束通常也明显可见(图3)。
需要注意的是,在VGlut2-Cre小鼠中,轴突的走行轨迹以及血管系统的负像使得视神经乳头的识别变得非常直观,这在慢性成像实验中可作为重要的解剖标志(图3)。尽管无长突细胞的亮度低于视网膜神经节细胞(RGCs),这可能与其胞体较小和/或AAV转导效率较低有关,但其胞体在内核层中仍然清晰可见。与RGCs不同,无长突细胞的神经突起更多见于内丛状层(图4)。在Cx3cr1-GFP转基因小鼠品系中可对视网膜小胶质细胞进行成像6。小胶质细胞与血管系统相关联,因此在延时成像实验中能够准确定位同一区域。
该方法可用于追踪小胶质细胞精细突起的动态变化,此操作在单平面图像中具有更高的空间分辨率,或可针对单个细胞制备最大强度投影图像(图5)。由于小鼠晶状体引起的光学像差导致轴向分辨率较差,因此无法在z轴方向上观察到精细结构。为了确定该成像技术是否能够观察到细胞超微结构的退行性改变,向玻璃体注射1 µL 50 mM的N-甲基-D-天冬氨酸(NMDA)以诱导兴奋性毒性损伤。注射后一天,小胶质细胞表现出突起缩短或阿米巴样形态(图5),与既往报道一致16。需要注意的是,在Cx3cr1-GFP转基因小鼠品系中,细胞群体中荧光蛋白的表达比使用AAV介导的荧光蛋白表达盒实验更为均匀且完整。在实验设计时,应权衡标记的多样性与稀疏性与完全性及均匀性之间的优缺点。
为了标记视网膜血管系统(如先前所述8),在成像前30–60分钟,向小鼠腹腔注射200 µL伊文思蓝染料(20 mg/mL,溶于无菌生理盐水)。这导致从视神经乳头发出的血管呈现强烈标记(图6)。令人意外的是,单次注射后的荧光信号可持续至少七天。采用两种不同方法来估算活体图像的尺寸。首先,使用共聚焦显微镜对同一视网膜区域在活体状态下以及固定后展平的视网膜全层标本中进行成像(图7)。从四个不同的活体样本中随机选择细胞对,在共聚焦扫描图像中测量细胞对之间的实际距离,并与活体图像中的像素距离进行匹配,从而计算出在1倍数字放大倍率下,每个像素的平均大小为0.99 µm。通过类似的方法将活体图像与共聚焦全层视网膜扫描图像进行关联后发现,单次头部定位可实现对约650 mm2视网膜区域的成像。
沿一个扭转轴重新调整头架位置,可暴露视网膜上一段长度为2.2 mm的线性区域(未显示)。此外,1或 2 µm 将直径荧光微球注入小鼠眼内,并通过体内成像图像的10倍数字放大线扫描,以其半高全宽测定其直径。该方法得到的像素尺寸估计值略大,但变异程度较高。图7总体而言,在体内实验完成后对整体样本进行共聚焦成像,是为单个图像确定尺度的最一致方法,因为角膜和晶状体特性的差异可能导致不同样本间的图像尺度发生变化。
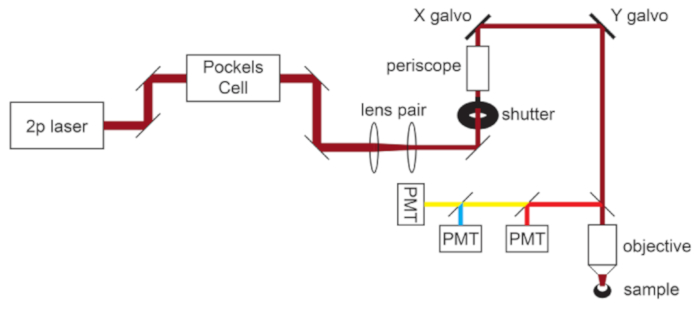
图1:光路示意图。 本实验方案所用双光子显微镜的基本组件包括用于调节激光功率的普克尔斯盒、一对用于缩小激光束直径以匹配显微镜物镜后孔径的透镜,以及一对用于光束偏转的检流计扫描镜。在每个主要光学元件前均设有一对转向镜。焦平面由驱动物镜座的电机控制。通过更换二向色镜和阻挡滤光片,可针对不同荧光团定制发射光路。图中展示了一种用于青色/黄色/红色成像的通用配置,其中短通二向色镜将红光引导至第一个PMT,而长通二向色镜配合适当的带通滤光片用于分离青色和黄色发射光。缩写:PMT = 光电倍增管。 请点击此处查看该图的放大版本。
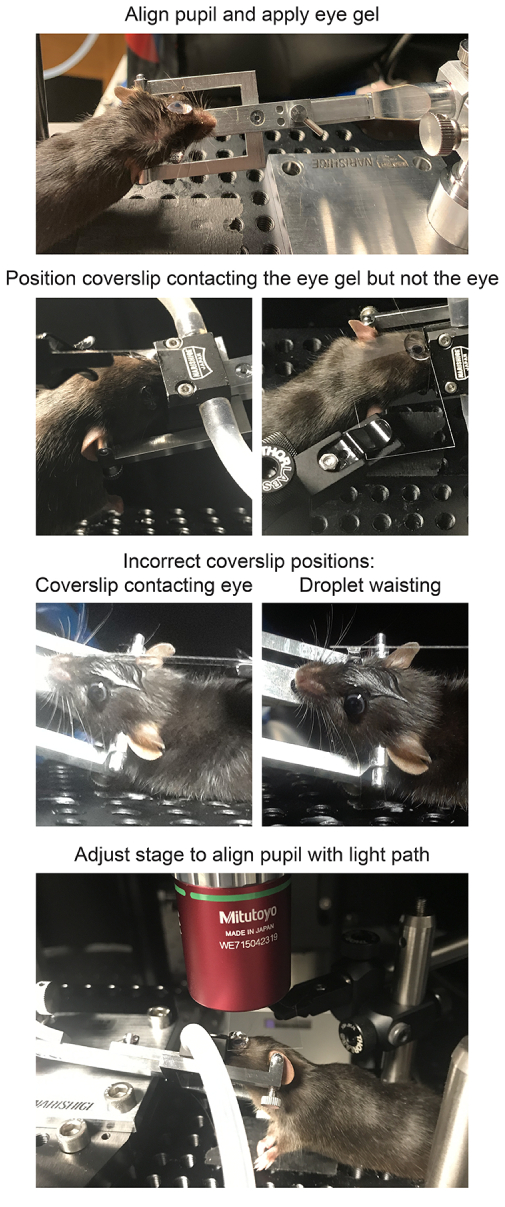
图2:活体成像中小鼠的定位。 为使小鼠瞳孔与光路同轴,首先将麻醉后的小鼠固定于头部固定装置中,调整头部的旋转角度和倾斜角度,在眼球表面滴加一大滴润滑性眼用凝胶,然后将小鼠放置于成像台上。将盖玻片安装在盖玻片夹持器中,使其垂直于光路,并缓慢下降至接近眼部。盖玻片不应接触角膜或小鼠头部(左图),否则会出现盖玻片弯曲变形。但盖玻片也应足够接近,以避免液滴出现缩颈现象(右图),因为这会对样本产生缩小成像的效果。在滴加凝胶浸没介质并固定好盖玻片后,应移动载物台,使其精确地位于显微镜物镜正下方。 请点击此处查看该图的放大版本。
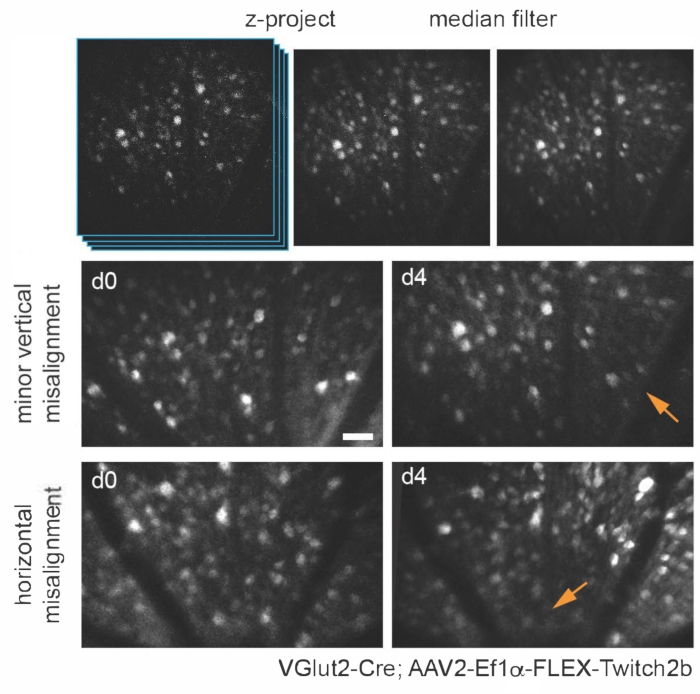
图3:视网膜神经节细胞成像。 为展示图像,采用包含目标细胞的z平面进行最大强度投影,并对所得图像进行中值滤波以去除光电倍增管(PMT)的散粒噪声。图中展示了在VGlut2-Cre转基因小鼠中通过注射AAV-EF1α-FLEX-Twitch2b标记的两个视网膜神经节细胞示例,具体显示的是CFP信号。图像分别在相隔四天的两次成像会话中获取,利用血管标志物精确定位至视盘附近同一区域。视盘位于图像底部。尽管两个样本在方向上存在一定差异(信号强度降低的区域以箭头标示),但大多数细胞在两个时间点均可见。比例尺 ≈ 50 µm。缩写:PMT = photomultiplier tube;AAV = adeno-associated virus;EF1α = elongation factor-1alpha;FLEX = flip-excision;VGlut2 = vesicular glutamate transporter 2;CFP = cyan fluorescent protein。 请点击此处查看该图的放大版本。
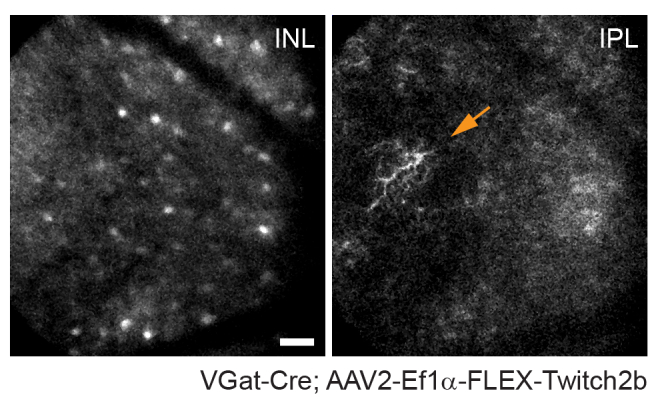
图4:成像无长突细胞。 通过向VGat-Cre转基因小鼠注射AAV-EF1α-FLEX-Twitch2b标记无长突细胞。图中特异性显示Twitch 2b的CFP信号。小范围最大强度投影聚焦于内核层深度,可观察到无长突细胞的胞体,而聚焦于内丛状层则可分辨无长突细胞的神经突起(箭头所示)。视神经乳头位于图像右侧。比例尺 ≈ 50 µm。缩写:AAV = 腺相关病毒;EF1α = 延伸因子-1α;FLEX = 翻转-切除系统;VGat = 囊泡γ-氨基丁酸转运体;CFP = 青色荧光蛋白;INL = 内核层;IPL = 内丛状层。 请点击此处查看该图的放大版本。
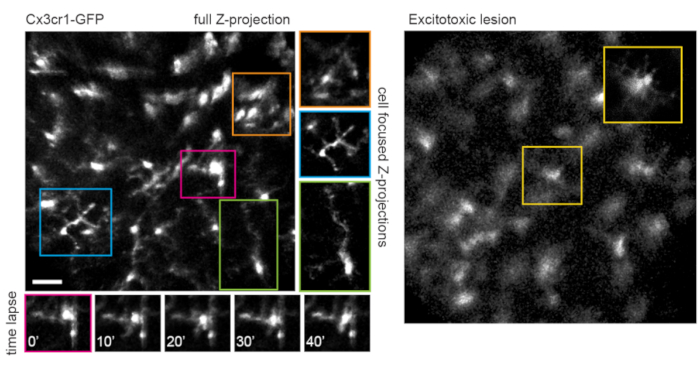
图 5:小胶质细胞成像。 使用转基因小鼠品系 Cx3cr1-GFP 标记小胶质细胞。全扫描体积的最大强度投影显示了大量小胶质细胞,其中一些细胞的精细突起结构清晰可辨。请注意,由于该区域存在视差,视野左下部的细胞在最大强度投影中的形变小于右上部的细胞。仅包含目标细胞的最大强度投影可显著减少此类视差影响(中间图,以对应颜色框出)。此外,该成像策略可记录小胶质细胞精细突起动态重塑的过程(下排图像)。相比之下,在通过玻璃体内注射 50 mM NMDA 诱导兴奋性毒性损伤后一天,可见许多小胶质细胞呈现短突起或阿米巴样形态(右侧)。比例尺 = 约 50 µm。缩写:GFP = 绿色荧光蛋白;Cx3cr1 = Cx3 化学趋化因子受体 1;NMDA = N-甲基-D-天冬氨酸。 请点击此处查看该图的放大版本。
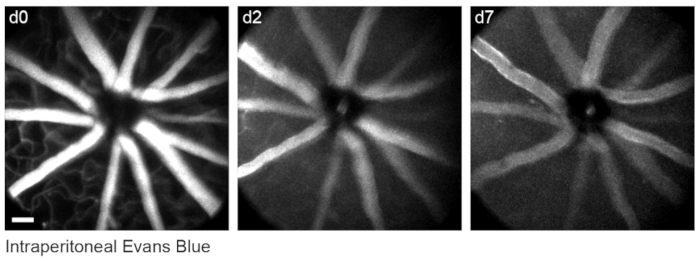
图6:标记血管解剖标志。 在首次成像前30–60分钟,向小鼠腹腔注射200 µL浓度为20 mg/mL的伊文思蓝染料。全层最大强度投影图像显示视网膜血管系统中存在持续至少七天的荧光信号。比例尺 ≈ 50 µm。请点击此处查看该图的放大版本。

图7:图像尺寸。 通过向VGlut2-Cre转基因小鼠玻璃体内注射AAV-EF1α-FLEX-Twitch2b标记视网膜神经节细胞,并在活体状态下进行成像,随后在视网膜固定并制备为全层铺片后,使用共聚焦激光扫描显微镜对同一区域进行成像。两幅图像均显示黄色荧光蛋白通道。彩色箭头对指示两种制备方法中的同一个细胞(上图)。玻璃体内注射的直径为2 µm的荧光微球在活体状态下的单平面图像(左下图)。由于微球未沉降,始终处于运动状态,因此无法测量轴向分辨率。像素尺寸根据每组2-4个视网膜的活体荧光微球全宽半高测量值或相关共聚焦测量值计算得出(右下图)。比例尺 = 50 µm。缩写:AAV = adeno-associated virus;EF1α = elongation factor-1alpha;FLEX = flip-excision;VGlut2 = vesicular glutamate transporter 2。 请点击此处查看该图的放大版本。
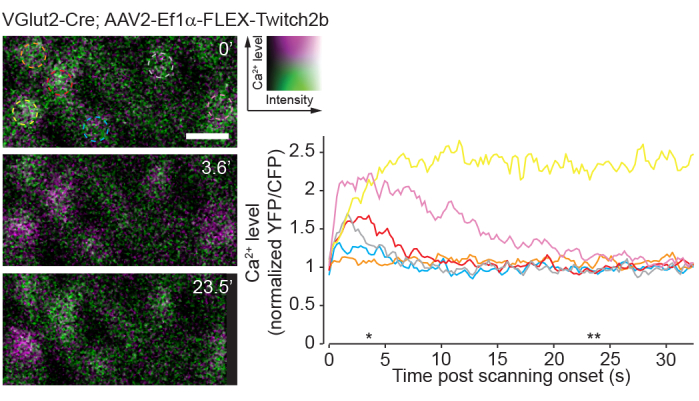
图8:双光子扫描诱导的钙离子活性。 通过向VGlut2-Cre转基因小鼠注射AAV-EF1α-FLEX-Twitch2b标记视网膜神经节细胞,YFP以品红色伪染,CFP为绿色,在单一焦平面以4.22 Hz频率进行时间序列成像。所有RGCs的起始YFP/CFP比值相似。大多数细胞表现出FRET比值升高(橙色细胞除外),其中一个细胞在整个时间序列中维持较高的YFP/CFP比值(黄色细胞)。YFP/CFP比值已归一化至第一帧的平均值,彩色圆圈与对应的彩色轨迹相匹配。星号表示左侧显示代表性图像的时间点。比例尺 = 20 µm。缩写:AAV = adeno-associated virus;EF1α = elongation factor-1alpha;FLEX = flip-excision;VGlut2 = vesicular glutamate transporter 2;YFP = yellow fluorescent protein;CFP = cyan fluorescent protein;RGCs = retinal ganglion cells;FRET = fluorescence resonance energy transfer。 请点击此处查看该图的放大版本。
讨论
本文所述的双光子成像方法可实现对小鼠视网膜的长期活体成像。在异氟烷麻醉下,可对视网膜同一区域连续重复成像长达6小时或更久。还可利用细胞和血管标志物在不同时间点定位相同的成像区域,实现多日成像(图3)。将透明凝胶浸润结合盖玻片的方法用于此目的,此前已被应用于多种实验操作,包括视网膜下注射时的视网膜可视化、激光诱导的视网膜损伤模型以及眼底成像20,21,22。
眼睛的解剖结构为活体成像带来了独特的挑战,因为小鼠角膜和晶状体具有较高的光学屈光力,若不进行校正,会阻碍通过瞳孔直接成像。其他一些活体成像方法依赖于使用平凹接触镜来校正小鼠眼球前部光学系统7,17,18,19。 仅在角膜处进行光学校正的情况下,小鼠晶状体的高屈光力不可避免地导致一定程度的视差,尤其是周边扫描区域的结构,在不同Z平面表现为X-Y方向的拉伸和位移。为了最大限度地减少与图像视差相关的X和Y方向畸变,必须使小鼠眼球的方向调整至成像区域视网膜的切平面与显微镜光路垂直。本文所述的装置有助于精确调节眼球角度以实现这种对准。一种可沿两个轴旋转的可调节小鼠头部固定装置,使实验者在沿Z轴扫描时能够方便地手动调整眼球角度,以减小视差。这种倾斜调节还可规避瞳孔的视场光阑效应,从而实现更大范围视网膜的成像。头部固定装置还能显著减少由呼吸引起的运动伪影。
在连续成像过程中,必须注意保持小鼠眼睛的透明性,因为眼睛混浊会导致图像质量下降。在成像过程中频繁重新涂抹润滑凝胶,并在每次成像后使用眼膏,有助于防止眼睛干燥并出现混浊。部分角膜混浊可在24-48小时后自行消退。本方案中所述使用透明凝胶和盖玻片的方法,可实现与隐形眼镜相当的图像质量和像差校正效果7,同时无需重新调整盖玻片即可更方便地调节眼睛角度。此外,凝胶可持续为眼睛提供水合作用,使得急性成像过程可持续数小时。最后,由于盖玻片不与角膜直接接触,对眼睛造成的刺激极小,有助于在重复成像实验中维持良好的光学清晰度。
该方法的一个局限性在于光学像差未能完全校正。尽管由于严重的视差会显著降低轴向分辨率,但仍可在单幅图像平面中获得细胞体的定量测量结果。需要注意的是,由于视网膜神经元的荧光信号强度依赖于样本在此方法中的对准情况,因此在长期比较不同成像时段样本的实验中,基于激发和发射比率的荧光探针更为合适。在系统层面校正光学像差的一种方法是自适应光学技术,该技术可实现视网膜的亚细胞分辨率8,9,14,21。然而,自适应光学需要高度专业化的设备以及丰富的实施经验。
双光子活体成像的替代方法 视网膜成像技术包括共聚焦显微镜和检眼镜检查6该方法可轻松适用于宽场或 共聚焦显微镜。单光子成像可能更具稳健性,并且由于双光子激光需要较高能量才能通过角膜和晶状体有效实现双光子效应,因此单光子成像对视网膜造成损伤的风险较低。为避免双光子激光损伤,最大激光功率的阈值应通过成像实验结束后对视网膜全层标本进行免疫染色检测所成像层中各类细胞类型来经验性确定。在本研究使用的系统中,视网膜神经节细胞(RGC)使用广谱RGC标记物Rbpms进行标记,结果显示在成像功率达45 mW时RGC密度正常,而55 mW则导致RGC显著丢失(未显示)。
单光子成像的一个缺点是,与双光子成像相比,该方法会强烈激活视网膜的固有视觉回路23。以往使用视网膜全层铺片或眼球杯制备的实验表明,双光子激光扫描引发的回路激活主要是瞬时的24。此处利用Ca2+传感器Twitch2b对RGC活性进行成像显示,激光扫描的启动会诱导Ca2+水平升高,在大多数RGC中,该水平在5–20秒内恢复至基线(图8)。鉴于本方案中使用的激光功率处于先前报道体内 视网膜光反应实验所用的范围8,目前描述的方法可能适用于视网膜回路活性的记录。 这些因素对于可能受回路活性影响的实验尤为重要。
本方案展示了两种视网膜神经元——RGCs 和无长突细胞的活体成像。其他主要细胞类型的类似标记也可实现,包括水平细胞(Cx57-Cre25)、双极细胞(Chx10-Cre26;mGluR6-GFP27)、视锥光感受器(S-或 M-视蛋白-Cre28)、视杆光感受器(Nrl-Cre29)、Müller 胶质细胞(Foxg1-Cre26)以及周细胞(NG2-DsRed9)。已有转基因小鼠可用于标记 RGCs 的特定亚群(例如,KCNG4-Cre 标记 αRGCs30;OPN4-Cre 标记 ipRGCs31;JAM-B-CreER 标记 J-RGCs32)以及无长突细胞(例如,ChAT-Cre 标记星爆型无长突细胞26,以及利用神经肽启动子驱动元件标记多种无长突细胞亚型3,34)。病毒载体可用于靶向特定细胞群体,以替代转基因小鼠。玻璃体内注射携带广泛表达 CAG 启动子元件的 AAV2 几乎仅标记 RGCs、无长突细胞和水平细胞25。将修饰后的 AAV2.7m8-Y444F 衣壳与工程化 mGluR6 启动子构建体联用,可实现 ON 双极细胞的广泛标记35。AAV 的视网膜下注射可富集光感受器细胞,其中血清型 AAV2/5 的转导效率最高36。修饰后的 AAV6 衣壳蛋白 Shh10 与胶质纤维酸性蛋白启动子元件联用,已被证明对 Müller 胶质细胞具有特异性37。
以完全无创的方式观察中枢神经系统中的细胞,可用于研究神经回路的基本特性8以及神经退行性变的机制3,4,5,6,38。许多致盲性疾病会靶向视网膜中的细胞群体,而小鼠体内的成像方法已被用于研究视神经损伤1,3,4、黄斑变性13、中风5、青光眼2,6以及葡萄膜炎7。此外,许多中枢神经系统的神经退行性疾病在视网膜中也有表现,包括阿尔茨海默病39、多发性硬化40和帕金森病41。因此,这种易于实现的视网膜活体成像技术可作为研究多种神经退行性疾病的重要工具。
披露
作者无任何利益冲突需要披露。
致谢
本研究得到了防盲研究基金会(Research to Prevent Blindness Foundation)的资助(P.R.W. 获得职业发展奖,圣路易斯华盛顿大学医学院眼科与视觉科学系获得无限制资助)、国家青光眼研究项目(BrightFocus基金会下属项目)以及麦克唐奈细胞与分子神经生物学中心的支持。Z.W. 获得了机构国家研究服务奖 T32 EY013360 的资助。本研究还得到了华盛顿大学医学院希望中心病毒载体核心实验室的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| #1.5 盖玻片 | ThermoFisher | 152440 | Richard-Allan #1.5 24 mm × 40 mm |
| 50 mL 玻璃注射器 | Hamilton | 80950 | 22G 嵌入式针头 |
| 腺相关病毒(AAV2) | 希望中心病毒核心实验室 | NA | |
| 麻醉空气泵 | RWD生命科学 | R510-30 | |
| 阿托品 | Sigma | A0132 | 用于瞳孔扩张溶液 |
| 基础小型动物麻醉设备 | RWD生命科学 | R500IE | |
| 硼硅酸盐玻璃毛细管 | Sutter | B150-86-10 | 外径 1.50 mm,内径 0.86 mm,长度 10 cm |
| CFP/YFP滤光片组 | 色度 | 定制 | 480/40,505 长通,535/30 |
| ChromoFlex - 双通道PMT检测单元 | 科学仪器公司 | S-MPLG-1002 | |
| 循环加热泵 | 布雷因特里科学公司 | tp-700 | 设定为37 °C |
| 保鲜膜 | VWR | 10713-916 | |
| 紧凑型滤器支架 | ThorLabs | DH1 | 将盖玻片置于小鼠眼睛上方 |
| Cx3cr1-GFP 转基因小鼠(B6.129P2(Cg)-Cx3cr1tm1Litt/J) | 杰克逊实验室 | 005582 | |
| 数据采集控制器机箱 | 国家仪器公司 | PXIe-1073 | |
| 数据采集设备 | 国家仪器公司 | BNC-2090A | |
| 伊文思蓝染料 | Fisher Scientific | AAA1677409 | |
| 带数字化仪的 FPGA 模块 | 国家仪器公司 | NI-5734 | |
| 气体抽排装置 | RWD生命科学 | R546W | |
| GenTeal 重度润滑眼用凝胶 | 爱尔康 | (来自当地药店) | 用于成像过程中 |
| GFP/Red滤光片组 | 色度 | 定制 | 535/30,560 长通,605/70 |
| 加热垫 | McKesson 医疗与外科 | 190147 | |
| HyperScope 启动光学组件,用于与普克尔斯盒配合使用 | Scientifica | S-MP-101080 | |
| HyperScope 主模块 | 科学仪器公司 | S-MP-100466 | |
| HyperScope 扫描路径 | 科学仪器公司 | S-MP-100406 | |
| HyperScope X 扫描振镜模块 | Scientifica | MP-100443 | |
| ImageJ Fiji 软件 | 免费软件 | ||
| 异氟烷 | Patterson Veterinary | NDC 14043-704-06 | |
| 异氟烷气体过滤罐(主动吸附) | RWD生命科学 | R510-31 | |
| 异氟烷气体过滤罐(被动式废气清除) | RWD生命科学 | R510-31S | |
| 盐酸氯胺酮(100 mg/mL) | Vedco | NDC 50989-161-06 | |
| M32 至 M26 转接器 | ThorLabs | M32M26S | |
| MaiTai GUI 软件 | Spectra-Physics | NA | |
| MATLAB 软件 | MathWorks | NA | R2015b |
| 美洛昔康(5 mg/mL) | 勃林格殷格翰 | NDC 0010-6013-01 | 镇痛剂 |
| 显微镜物镜 | Edmund Optics | 46-404 | Mitutoyo WE715042319 |
| 微移液管拉制仪 | Sutter | Flaming/Brown 型 P-97 拉针仪 | |
| 矿物油 | Fisher | BP2629-1 | |
| 迷你斗牛犬止血钳 | Fine Science Tools | 18053-28 | |
| 微型EVA管 0.02" ID,0.06" 光密度 | McMaster Carr | 1883T1 | |
| 微型EVA管 0.05" ID,0.09" 光密度 | McMaster Carr | 1883T4 | |
| 小鼠头部固定器 | Narishige | SGM-4 | |
| 5号镊子 | Fine Science Tools | 11251-10 | |
| 视神经柱 1/2" | ThorLabs | TR3-P5 | |
| 光学功率计套件 | ThorLabs | PM100D | |
| pE-300 Ultra LLG 递送 | 科学仪器公司 | COO-LED3ULLGs | |
| 盐酸去甲肾上腺素 | Sigma | P6126 | 用于瞳孔扩张溶液 |
| 普克尔斯盒 | 锥光系统 | 350-80-02 | |
| 普克尔斯盒放大器 | Conoptics | Model 302RM | |
| 盐酸丙帕卡因 | Sigma | 1571001 | 用于眼球固定 |
| 红色 & 远红短通滤光片立方体 | 染色 | 定制 | 560 短通 |
| 旋转 1/2" 后夹 | ThorLabs | SWC | |
| ScanImage 软件包 | Vidrio Technologies | 免费软件 | 图像采集软件;版本 5.4.0(2018);需要 MATLAB |
| 氯化钠溶液,无菌(0.9%) | Fresenius Kabi | NDC 63323-186-01 | |
| 体视显微镜 | Leica | S9 E | |
| 台式离心机 | 牛津 | Benchmate C8 | |
| 土霉素/多粘菌素B抗生素眼膏 | Zoetisus | NA | 玻璃体内注射后使用 |
| ThermoRack 冷却系统 | 固态冷却系统 | ThermoRack 401 | 设为20 °C |
| 超快钛宝石激光器 | Spectra-Physics | Mai Tai DeepSee | |
| Vgat-Cre 转基因小鼠 (Slc32a1tm2(cre)Lowl/J) | 杰克逊实验室 | 016962 | |
| VGlut2-Cre 转基因小鼠 (Slc17a6tm2(cre)Lowl/J) | 杰克逊实验室 | 016963 | |
| 用于活体成像的VivoScope | 科学仪器公司 | S-MPVS-1200-00P | |
| 白色凡士林-矿物油润滑眼膏 | 麦粒肿 | NA | 成像后使用 |
| 盐酸赛拉嗪(20 mg/mL) | 阿克恩 | NDC 59399-110-20 |
参考文献
- Smith, C. A., Chauhan, B. C. In vivo imaging of adeno-associated viral vector labelled retinal ganglion cells. Scientific Reports. 8 (1), 1490(2018).
- Liu, H., Ding, C. Establishment of an experimental glaucoma animal model: A comparison of microbead injection with or without hydroxypropyl methylcellulose. Experimental and Therapeutic Medicine. 14 (3), 1953-1960 (2017).
- Chauhan, B. C., et al. Longitudinal in vivo imaging of retinal ganglion cells and retinal thickness changes following optic nerve injury in mice. PLoS One. 7 (6), 40352(2012).
- Leung, C. K., et al. Longitudinal profile of retinal ganglion cell damage after optic nerve crush with blue-light confocal scanning laser ophthalmoscopy. Investigative Ophthalmology & Visual Science. 49 (11), 4898-4902 (2008).
- Murata, H., et al. Imaging mouse retinal ganglion cells and their loss in vivo by a fundus camera in the normal and ischemia-reperfusion model. Investigative Ophthalmology & Visual Science. 49 (12), 5546-5552 (2008).
- Bosco, A., Romero, C. O., Ambati, B. K., Vetter, M. L. In vivo dynamics of retinal microglial activation during neurodegeneration: confocal ophthalmoscopic imaging and cell morphometry in mouse glaucoma. Journal of Visualized Experiments. (99), e52731(2015).
- Bremer, D., et al. Longitudinal Intravital Imaging of the Retina Reveals Long-term Dynamics of Immune Infiltration and Its Effects on the Glial Network in Experimental Autoimmune Uveoretinitis, without Evident Signs of Neuronal Dysfunction in the Ganglion Cell Layer. Frontiers in Immunology. 7, 642(2016).
- Qin, Z., et al. Adaptive optics two-photon microscopy enables near-diffraction-limited and functional retinal imaging in vivo. Light: Science & Applications. 9, 79(2020).
- Schallek, J., Geng, Y., Nguyen, H., Williams, D. R. Morphology and topography of retinal pericytes in the living mouse retina using in vivo adaptive optics imaging and ex vivo characterization. Investigative Ophthalmology & Visual Science. 54 (13), 8237-8250 (2013).
- Williams, D. R. Imaging single cells in the living retina. Vision Research. 51 (13), 1379-1396 (2011).
- Carroll, J., Neitz, M., Hofer, H., Neitz, J., Williams, D. R. Functional photoreceptor loss revealed with adaptive optics: an alternate cause of color blindness. Proceedings of the National Academy of Sciences of the United States of America. 101 (22), 8461-8466 (2004).
- Rossi, E. A., et al. Imaging retinal mosaics in the living eye. Eye. 25 (3), 301-308 (2011).
- Rossi, E. A., et al. In vivo imaging of retinal pigment epithelium cells in age related macular degeneration. Biomedical Optics Express. 4 (11), 2527-2539 (2013).
- Geng, Y., et al. Adaptive optics retinal imaging in the living mouse eye. Biomedical Optics Express. 3 (4), 715-734 (2012).
- Thestrup, T., et al. Optimized ratiometric calcium sensors for functional in vivo imaging of neurons and T lymphocytes. Nature Methods. 11 (2), 175-182 (2014).
- Takeda, A., et al. Microglia mediate non-cell-autonomous cell death of retinal ganglion cells. Glia. 66 (11), 2366-2384 (2018).
- Ikeda, W., Nakatani, T., Uemura, A. Cataract-preventing contact lens for in vivo imaging of mouse retina. Biotechniques. 65 (2), 101-104 (2018).
- Palczewska, G., Kern, T. S., Palczewski, K. Noninvasive two-photon microscopy imaging of mouse retina and retinal pigment epithelium. Retinal Degeneration. Methods in Molecular Biology. Weber, B. H. F., Langmann, T. 1834, Humana. New York, NY, USA. 333-343 (2019).
- Wahl, D. J., Jian, Y., Bonora, S., Zawadzki, R. J., Sarunic, M. V. Wavefront sensorless adaptive optics fluorescence biomicroscope for in vivo retinal imaging in mice. Biomedical Optics Express. 7 (1), 1-12 (2016).
- Park, S. W., Kim, J. H., Park, W. J., Kim, J. H. Limbal approach-subretinal injection of viral vectors for gene therapy in mice retinal pigment epithelium. Journal of Visualized Experiments. (102), e53030(2015).
- Biss, D. P., et al. In vivo fluorescent imaging of the mouse retina using adaptive optics. Optics Letters. 32 (6), 659-661 (2007).
- Shah, R. S., Soetikno, B. T., Lajko, M., Fawzi, A. A. A mouse model for laser-induced choroidal neovascularization. Journal of Visualized Experiments. (106), e53502(2015).
- Palczewska, G., et al. Human infrared vision is triggered by two-photon chromophore isomerization. Proceedings of the National Academy of Sciences of the United States of America. 111 (50), 5445-5454 (2014).
- Euler, T., et al. Eyecup scope--optical recordings of light stimulus-evoked fluorescence signals in the retina. Pflügers Archive-European Journal of Physiology. 457 (6), 1393-1414 (2009).
- Zhang, Y., et al. Elevating Growth Factor Responsiveness and Axon Regeneration by Modulating Presynaptic Inputs. Neuron. 103 (1), 39-51 (2019).
- Ivanova, E., Hwang, G. S., Pan, Z. H. Characterization of transgenic mouse lines expressing Cre recombinase in the retina. Neuroscience. 165 (1), 233-243 (2010).
- Morgan, J. L., Dhingra, A., Vardi, N., Wong, R. O. Axons and dendrites originate from neuroepithelial-like processes of retinal bipolar cells. Nature Neuroscience. 9 (1), 85-92 (2006).
- Akimoto, M., et al. Transgenic mice expressing Cre-recombinase specifically in M- or S-cone photoreceptors. Investigative Ophthalmology & Visual Science. 45 (1), 42-47 (2004).
- Brightman, D. S., Razafsky, D., Potter, C., Hodzic, D., Chen, S. Nrl-Cre transgenic mouse mediates loxP recombination in developing rod photoreceptors. Genesis. 54 (3), 129-135 (2016).
- Duan, X., et al. Subtype-specific regeneration of retinal ganglion cells following axotomy: effects of osteopontin and mTOR signaling. Neuron. 85 (6), 1244-1256 (2015).
- Ecker, J. L., et al. Melanopsin-expressing retinal ganglion-cell photoreceptors: cellular diversity and role in pattern vision. Neuron. 67 (1), 49-60 (2010).
- Kim, I. J., Zhang, Y., Yamagata, M., Meister, M., Sanes, J. R. Molecular identification of a retinal cell type that responds to upward motion. Nature. 452 (7186), 478-482 (2008).
- Akrouh, A., Kerschensteiner, D. Morphology and function of three VIP-expressing amacrine cell types in the mouse retina. Journal of Neurophysiology. 114 (4), 2431-2438 (2015).
- Zhu, Y., Xu, J., Hauswirth, W. W., DeVries, S. H. Genetically targeted binary labeling of retinal neurons. Journal of Neuroscience. 34 (23), 7845-7861 (2014).
- Lu, Q., et al. AAV-mediated transduction and targeting of retinal bipolar cells with improved mGluR6 promoters in rodents and primates. Gene Therapy. 23 (8-9), 680-689 (2016).
- Surace, E. M., Auricchio, A. Versatility of AAV vectors for retinal gene transfer. Vision Research. 48 (3), 353-359 (2008).
- Yao, K., et al. Wnt regulates proliferation and neurogenic potential of Muller glial cells via a Lin28/let-7 miRNA-dependent pathway in adult mammalian retinas. Cell Reports. 17 (1), 165-178 (2016).
- Williams, P. R., et al. A recoverable state of axon injury persists for hours after spinal cord contusion in vivo. Nature Communications. 5, 5683(2014).
- Cheung, C. Y., et al. Microvascular network alterations in the retina of patients with Alzheimer's disease. Alzheimer's & Dementia. 10 (2), 135-142 (2014).
- Kerrison, J. B., Flynn, T., Green, W. R. Retinal pathologic changes in multiple sclerosis. Retina. 14 (5), 445-451 (1994).
- Sung, M. S., et al. Inner retinal thinning as a biomarker for cognitive impairment in de novo Parkinson's disease. Scientific Reports. 9 (1), 11832(2019).
重印与许可
