本文描述了一种多功能微流控装置,该装置能够利用逆扩散法实现酶的结晶,通过浸泡法将底物引入晶体,并在室温下对芯片内的晶体进行连续分析,从而测定酶与底物复合物的三维结构。
本文内容
摘要
摘要
制备出良好衍射质量的晶体,并在X射线分析前妥善处理这些晶体,是生物晶体学研究中的两个关键步骤。我们描述了一种多功能的微流控芯片,可通过高效的对流扩散法实现晶体的生长。微流控通道提供的无对流环境非常有利于晶体生长,并有助于将底物扩散至结晶酶的活性位点。在本示例中,我们将该方法应用于嗜冷细菌Planococcus halocryophilus的CCA添加酶。在完成结晶以及底物扩散/浸泡后,通过在室温下对芯片内多个晶体进行连续晶体学分析,测定了该酶与底物复合物的晶体结构。整个过程无需对晶体进行任何操作,因而能够完整保持样品本真的衍射特性。
引言
晶体学是一种解析生物大分子三维结构的方法。了解酶如何选择和加工其底物,这一方法至关重要。测定晶体结构需要对目标大分子进行结晶,并对晶体进行处理,以便通过X射线衍射进行分析1。晶体的制备与操作都是关键但极为精细的步骤,可能影响晶体质量及其衍射特性,从而影响最终三维结构的分辨率(即准确性)。为了便于高质量晶体的制备,并减少不必要的操作以保持其衍射性能,我们设计了一种用户友好且多功能的微流控装置,称为ChipX2,3,4。
本文将演示如何使用常规实验室材料将蛋白质溶液加载到ChipX通道中,通过逆扩散法进行晶体生长。由于结晶剂扩散形成浓度梯度,该结晶方法可在含有酶溶液的微流控通道内高效筛选过饱和状态及潜在的成核条件5,6。
芯片装置结构简单,仅使用常规实验室移液器,无需任何昂贵设备。当晶体在ChipX中生长后,可通过扩散方式引入酶的配体。随后,在室温下利用同步辐射X射线源,对芯片通道内的一系列晶体进行衍射数据收集。本文所述的结构研究成功解析了tRNA成熟酶在无配体状态及其与类似物结合状态下的结构。 通过浸泡引入其CTP底物。这种被称为CCA添加酶的蛋白质可在tRNA的3'端聚合CCA三核苷酸尾。通过序列晶体学获得的两张三维图像的比较揭示了配体结合所引发的局部构象变化,其条件相较于冷冻晶体学更为接近生理状态。本视频所述方案普遍适用于任何生物分子,无论是蛋白质、核酸或多组分复合物。
方案
1. 在 ChipX 中设置结晶实验
注意:ChipX 微流控装置可向作者索取。芯片的描述见图1。用于引发结晶的含结晶剂(或结晶诱导剂)溶液可为商用来源,也可由实验人员自行配制。
- 加载生物分子样品
注意:在ChipX每个通道的直段部分进行单个对流扩散实验实际所需的样品体积为300 nL。但为方便操作,建议加载5 µL,以完全填充八个通道,同时考虑其弯曲段长度和进样口死体积的差异。- 使用标准10 µL移液器和吸头吸取5 µL酶溶液。
- 将吸头垂直插入样品进样口,并注入溶液,直至八个通道均被充满至另一端(结晶剂储液池入口)。
- 在样品进样口注入1 µL石蜡油,以使各通道相互隔离。
- 使用标准10 µL移液器,从每个通道末端的结晶剂储液池中回收多余的溶液。
- 用一块1 cm × 1 cm的封口膜密封样品进样口。
- 加载结晶溶液
- 使用标准10 µL移液器和吸头吸取5 µL结晶溶液。储液池体积为10 µL,但仅加载一半体积可避免用封口膜密封时发生溢出,并便于后续浸泡实验中添加配体。若初始结晶条件是通过气相扩散法获得的,则应将结晶剂浓度提高1.5–2倍。每个储液池中的溶液可以不同(在本示例中,全程使用1 M磷酸氢二铵、100 mM醋酸钠,pH 4.5)。
- 将移液器吸头朝向储液池漏斗形区域的通道入口处,以避免加样时产生气泡。气泡会阻碍两种溶液之间的接触,并影响结晶剂向通道内的扩散。
- 将结晶剂溶液注入储液池中。
- 用一块2.5 cm × 1 cm的封口膜密封储液池。
- 将芯片在20 °C下孵育(温度可根据目标分子调整,通常在4至37 °C之间4)。
2. 用于荧光检测的羧基罗丹明蛋白标记
注意:此步骤为可选步骤。必须在上样前完成,以利于通过荧光检测芯片中的晶体。微量荧光标记的详细方法由 Pusey 及其同事7描述。所有步骤均在室温下进行。
- 将5 mg羧基罗丹明酯粉末溶于1 mL无水二甲基甲酰胺中,分装成每份0.6 µL,于-20 °C保存。
- 配制1 M、pH 8.75的硼酸钠储备液。
- 将上述储备液稀释,配制成0.05 M、pH 8.75的反应缓冲液。
- 用800 µL反应缓冲液冲洗脱盐柱(分子量截留值7 kDa,体积0.5 mL)。
- 以1400 × g离心1分钟,弃去滤液。
- 重复此操作两次(步骤2.4–2.5),以洗涤脱盐柱。
- 将80 µL以储存缓冲液溶解的蛋白质加至脱盐柱上(如需增加体积,可将蛋白质稀释至最低1 mg/mL)。
- 以1400 × g离心1分钟。此步骤旨在将蛋白质从储存缓冲液转移至反应缓冲液中。
- 收集流出液(含反应缓冲液中的蛋白质),并与0.6 µL羧基罗丹明溶液混合。
- 室温孵育5分钟。
- 同时,用储存缓冲液冲洗脱盐柱3次,每次以1400 × g离心1分钟,并弃去滤液。
- 将反应液加至脱盐柱上。
- 以1400 × g离心1分钟,收集流出液(即储存缓冲液中的标记蛋白质溶液)。
- 向储备蛋白质溶液中添加0.1–1 %(w/w)的标记蛋白质。
- 按照第1节所述设置ChipX结晶实验。
- 使用520 nm波长光源激发荧光探针,检测实验中是否存在蛋白质晶体。
3. 晶体观察
注意:除非需要控制温度,ChipX 设备即使内部含有晶体,也可无需特殊护理进行操作。
- 使用任意体视显微镜检查 ChipX 中结晶实验的结果。其外形尺寸符合标准显微镜载玻片规格,可兼容各类显微系统及载物台夹持器。
- 从结晶剂浓度最高的储液池开始,依次检查微流控通道内的内容,直至结晶剂浓度最低的样品入口。ChipX 材料对可见光透明,兼容偏振片使用,也可用于紫外光照下通过色氨酸固有荧光识别蛋白质晶体8。
- 利用通道旁压印的标签记录晶体位置,或使用永久性记号笔在芯片表面晶体旁绘制彩色标记点以标定位置。
4. 配体浸泡晶体
注意:此步骤为可选步骤。用于将配体、酶底物或重原子引入晶体中,应在X射线分析前至少24-48小时进行,以允许化合物沿通道扩散并进入晶体内部。
- 轻轻移除储液池上的密封胶带。
- 使用 10 µL 微量移液器,在一个或多个储液池中加入最多 5 µL 的配体溶液(示例中,向储液池加入 3 µL 的 10 mM 胞苷-5'-[(α,β)-亚甲基]三磷酸(CMPcPP)溶液,以达到 3.75 mM 的终浓度)。CMPcPP 是 CTP 的一种不可水解类似物,而 CTP 是该酶的天然底物。
- 用一块 2.5 cm × 1 cm 的胶带密封储液池。
- 将芯片置于受控温度条件下孵育 24–48 小时,以使配体在芯片的通道中充分扩散。
5. 通过序列晶体学进行晶体分析
注意:本实验步骤的这一部分需要根据光束线设置以及晶体的衍射特性进行相应调整。此处仅根据在X06DA光束线(SLS,瑞士维利根)进行的实验,提供晶体学分析的一般性指导。
- 将ChipX安装到光束线测角仪上
注意:ChipX支架的3D打印文件见参考文献4。- 关闭光束线的低温气流。本实验在室温下进行。
- 将ChipX安装在专用支架上,使含有待分析晶体的微通道位于支架中心。该ChipX支架4 无需螺丝或其他附加部件,因其设计可与ChipX完美贴合。
- 将支架连接至测角仪。
- 数据采集
- 将ChipX最厚的一层(顶层,图1)朝向直射光束方向放置,最薄的一面则位于晶体后方,以最大限度减少衍射信号的衰减,如参考文献3所述。
- 为避免ChipX与周围部件(光束挡板、准直器)发生碰撞,将测角仪 的旋转范围限制在±30°以内(0°对应通道垂直于X射线束的方向)。
- 借助沿通道压印的标签确定晶体位置。
- 选择一个晶体位置。
- 通过标准的低剂量网格/光栅扫描或一键式程序对晶体进行居中定位(视频展示了一个网格扫描示例)。
- 在-30°至+30°范围内采集衍射数据。
- 移动芯片后,在同一通道内的另一个晶体上重复步骤5.2.4–5.2.6。
- 手动将另一个ChipX通道重新对准支架中心,并继续对该通道内的晶体进行数据采集。
- 使用标准晶体学软件包和流程对数据进行处理与合并,进而求解并精修结构。
结果
本文所述的微流控芯片旨在便于在室温下进行结晶实验的设置和晶体分析。上述及视频中描述的实验步骤已应用于嗜冷细菌Planococcus halocryophilus的CCA添加酶的结构表征研究中。该酶属于一个必需的聚合酶家族,能够利用CTP和ATP催化在tRNA上逐个添加3'端CCA序列9,10。
首先利用该芯片通过逆扩散法为酶制备晶体,以进行结构分析。具体操作中,通过芯片样品入口单次注入,将酶溶液加载至八个微流控通道(结晶室)中(见图1)。所用酶溶液浓度为5.5 mg/mL,溶剂为储存缓冲液,其中含有20 mM Tris/HCl(pH 7.5)、200 mM NaCl和5 mM MgCl2。此步骤使用标准10 µL微量移液器手动完成。随后,将结晶溶液(100 mM乙酸钠,pH 4.5,1 M磷酸氢二铵)加入通道另一端的储液池中。
上样过程简单,不超过五分钟(图2)。随后,结晶剂扩散进入通道,在其中形成浓度梯度,从而触发晶体的成核与生长。该梯度动态演化,探索一系列过饱和状态5,6,直至通道与储液池之间的结晶剂浓度达到平衡。结晶实验通常在显微镜下观察2至4周,以追踪晶体生长情况。在20 °C孵育数天后,CCA添加酶的双锥形晶体在整个通道中出现(图3)。对蛋白质进行可选的荧光标记7,可极大地方便蛋白质晶体的识别,并将其与盐晶体区分开来(图4)。
我们利用芯片通道中的扩散环境,将底物递送至催化晶体形成的酶。在本实验中,向储液池溶液中加入CTP类似物CMPcPP,终浓度为3.75 mM(图5)。该步骤在晶体学分析前两天进行,以使CMPcPP有足够时间到达并占据酶的催化位点,后续晶体结构结果也证实了这一点(见下文)。
我们使用3D打印机以聚乳酸材料制造了一个芯片支架(图6)。该支架可利用标准磁性接头将芯片安装在测角仪上,从而能够方便地在X射线光束中对芯片进行定位和移动,使晶体进入衍射位置。数据收集策略需根据光束线特性和晶体性质进行相应调整。对于CCA加成酶,数据分别在瑞士光源(SLS)的X06DA和X10SA光束线上采集,X射线波长为1.0 Å,探测器分别为Pilatus 2M-F和6M像素探测器。在室温下,对每颗晶体采集30–60°的旋转数据,每幅图像的旋转步长为0.1°或0.2°,曝光时间为0.1 s(见表1)。部分数据集被单独处理,并在因辐射损伤导致衍射图样分辨率开始下降时进行截断(通过信噪比  和CC1/2降低以及高分辨率壳层中Rmeas 升高来判断)。完整的数据集通过合并5颗晶体的数据重新构建(表1)。晶体结构通过分子置换法获得,采用标准的晶体学软件包和流程进行数据处理11和结构精修12。酶本身及其与CMPcPP复合物的结构比较揭示了底物结合过程中CCA加成酶活性位点发生的局部构象变化(图7)。

图 1:ChipX 设计。 该芯片由顶部的环烯烃共聚物(COC)层(厚度:1 mm)构成,其上压印有八条微流控通道和储液池。整个芯片通过一层厚度为 0.1 mm 的 COC 密封。所有通道在左侧共用一个样品入口,用于同时注入样品;右侧则分别连接独立的储液池,用于加载结晶溶液。这些通道即为芯片的实际结晶室,长度为 4 cm,横截面为 80 µm × 80 µm。沿通道压印的标签(A1、A2、A3 等)有助于在显微镜下定位晶体,并便于准备数据采集用的样品列表。ChipX 的尺寸与标准显微镜载玻片相同(7.5 cm × 2.5 cm)。请点击此处查看该图的放大版本。

图 2:在 ChipX 中设置结晶实验。 1) 使用标准的 10 µL 移液器和枪头,加入 5–6 µL 酶溶液。2) 将枪头垂直插入样品入口,并将溶液注入八个通道中。3) 用移液器吸取 1 µL 石蜡油。4) 将枪头垂直插入样品入口,并注入石蜡油,以使各通道相互隔离。5) 用一小片胶带密封入口。6) 使用标准的 10 µL 移液器和枪头,吸取 5 µL 结晶溶液。每个储液池中的溶液可以不同(例如,来自筛选试剂盒)。7) 将移液枪头对准储液池漏斗状区域的通道入口处(以避免加样时产生气泡),注入结晶液。8) 用一小片胶带密封储液池,并将芯片在受控温度下孵育。请点击此处查看该图的高清版本。
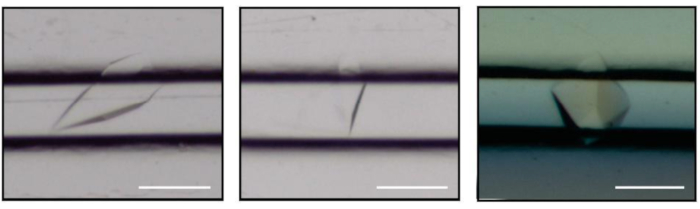
图3:在ChipX微流控通道中通过反向扩散法培养的CCA添加酶晶体。 标尺为0.1 mm。请点击此处查看该图的放大版本。
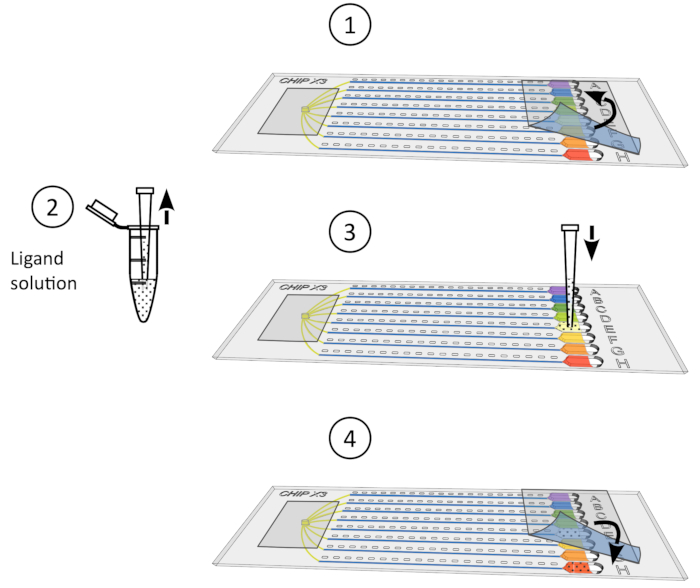
图4:晶体浸泡实验流程。 1) 轻轻揭去储液池上的封口膜。2) 使用10 µL微量移液器,向每个储液池中加入最多5 µL的配体溶液。3) 将配体加入一个或多个储液池中。4) 用封口膜重新密封储液池,并在受控温度下孵育芯片24–48小时,之后进行数据采集。请点击此处查看该图的高清版本。
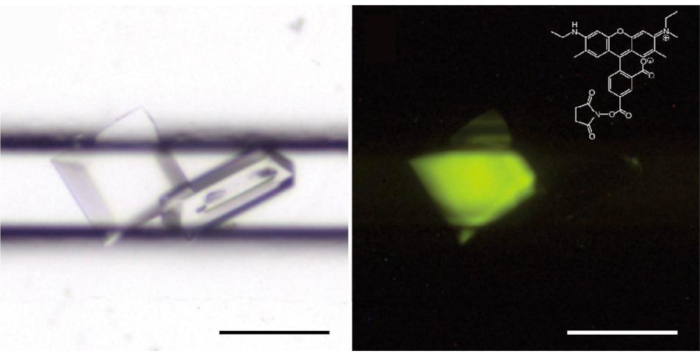
图 5:荧光标记可区分蛋白质(左)与盐(右)晶体。 CCA-添加酶溶液中含有0.4 %(w/w)以羧基罗丹明标记的蛋白质。右侧晶体使用波长为520 nm的光源照射,并通过550 nm长通滤光片(LP550)采集图像;(插图)羧基罗丹明-琥珀酰亚胺酯的结构。请点击此处查看该图的放大版本。
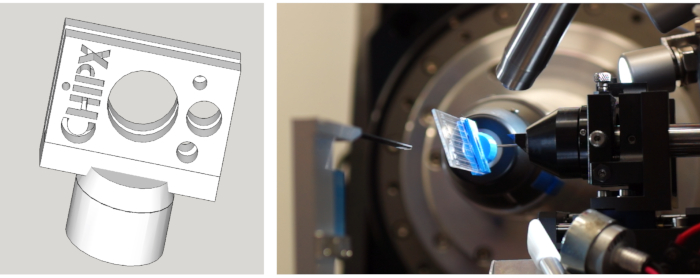
图6:(左)ChipX样品托架的示意图;(右)在瑞士(Villigen)保罗谢勒研究所SLS光源X06DA光束线上,ChipX安装于测角仪上用于连续晶体分析的实物图。 请点击此处查看该图的高清版本。

图7:CCA加尾酶在无配体状态(粉红色)及其与CTP类似物复合状态(绿色)下活性位点的比较。尽管酶的整体构象未受影响,但CMPcPP配体的结合伴随着活性位点内侧链的轻微重排。2Fo-Fc电子密度图(蓝色)等高线水平设为1.2 sigma。差值电子密度图(绿色)等高线水平设为4 sigma,证实了配体存在于活性位点中。请点击此处查看该图的放大版本。
| 结晶样品 | CCA添加酶 | CCA添加酶 + CMPcPP |
| 晶体分析 | ||
| X射线光束线 | SLS – X06DA | SLS – X10SA |
| 波长 (Å) | 1.000 | 1.000 |
| 温度 (K) | 293 | 293 |
| 探测器 | Pilatus 2M-F | Pilatus 6M |
| 晶体-探测器距离 (mm) | 300 | 400 |
| 收集的晶体数量 | 6 | 14 |
| 筛选的晶体数量 | 5 | 5 |
| 每张图像的旋转范围 (°) | 0.1 | 0.2 |
| 每张图像的曝光时间 (s) | 0.1 | 0.1 |
| 筛选的图像数量 | 1000 | 540 |
| 总旋转范围 (°) | 100 | 108 |
| 空间群 | P43212 | P43212 |
| a, c (Å) | 71.5, 293.8 | 71.4, 293.6 |
| 平均镶嵌度 (°) | 0.04 | 0.04 |
| 分辨率范围 (Å) | 46 – 2.54 (2.6 – 2.54) | 48 – 2.3 (2.4 – 2.3) |
| 总衍射点数 | 176105 (9374) | 232642 (32937) |
| 唯一衍射点数 | 23922 (1598) | 34862 (4066) |
| 数据完整性 (%) | 90.6 (84.6) | 99.5 (100.0) |
| 冗余度 | 7.5 (6.0) | 6.7 (8.1) |
| 8.1 (1.3) | 6.9 (0.7) |
| Rmeas (%) § | 18.6 (126.0) | 18.0 (231.2) |
| CC1/2 (%) £ | 98.7 (55.0) | 98.7 (46.9) |
| Wilson图计算的整体B因子 (Å2) | 57.4 | 60.6 |
| 晶体学精修 | ||
| 反射数,工作集 / 测试集 | 23583 / 1180 | 34840 / 3405 |
| 最终Rcryst (%) / Rfree (%) | 18.8 / 21.4 | 20.0 / 22.9 |
| 非氢原子数:总体 / 蛋白质 / 配体 / 溶剂 | 2998 / 2989 / 0 / 9 | 3057 / 2989 / 29 / 10 |
| 键长 (Å) / 键角 (°) 的均方根偏差 | 0.009 / 1.23 | 0.010 / 1.22 |
| 平均B因子 (Å2):总体 / 蛋白质 / 配体 / 溶剂 | 60.1 / 60.1 / 0 / 52.7 | 62.5 / 62.6 / 60.1 / 55.5 |
| Ramachandran图:最适构象 (%) / 允许构象 (%) | 98.1 / 1.9 | 97.2 / 2.8 |
| PDB编号 | 6IBP | 6Q52 |
表 1:数据收集与精修统计
§ 无冗余性依赖的 Rmeas = Σhkl(N/N-1)1/2Σi | Ii(hkl)- (hkl)>| / ΣhklΣi Ii(hkl),其中 N 为数据多重性17。
£ 低数据 在外壳中(<2.0)是根据CC1/2标准(数据集两个随机半集之间的相关性)纳入的 > 50%),如 Karplus 所提出 & Diederichs 18.
讨论
当前生物晶体学的标准方案包括使用悬滴扩散法或批量法等方法制备晶体13, 14,随后将晶体转移至微环中进行低温冷冻15, 16 ,然后在低温条件下利用氮气射流进行衍射分析。相比之下,ChipX3无法实现晶体的直接冷冻,且晶体无法从其微流控通道中取出,这可被视为该系统的局限性。然而,本文所述方案提供了一条完全集成的流程,用于在室温条件下(即更接近生理条件)测定晶体结构。尽管在室温下收集数据会导致辐射损伤增加19,但这一效应被快速的数据采集(每颗晶体仅收集最多60°的旋转数据)以及多个部分数据集的合并所抵消。ChipX的设计与材料均经过优化,以减少背景散射和衍射信号衰减3,且可在晶体尺寸相当于通道一半大小(40 µm)时仍成功进行数据收集4。
总之,该实验方案的主要优势如下:晶体在无对流环境(微流控通道)中生成,这一条件非常有利于高质量晶体的生长。ChipX 中实施的对流扩散法在筛选过饱和度范围方面效率很高;结晶剂向芯片通道内的扩散形成浓度梯度和过饱和波,有助于确定合适的成核与生长条件5晶体从不直接操作,而是在芯片内原位进行分析,以保持其真实的衍射特性(即不会因物理接触或低温冷冻而改变晶体镶嵌性)。20衍射分析在沿芯片通道分布的一系列晶体上进行,采用低剂量曝光以最小化辐射损伤,并通过合并来自该系列晶体的部分数据来组装完整的数据集。ChipX 的标准尺寸和简单设计将使其在未来能够完全自动化 原位 使用同步辐射或XFEL设施进行数据收集。本方案的所有步骤均在ChipX中完成。从实验人员的角度来看,芯片的设置操作简单,仅需使用常规移液器即可完成,无需任何额外设备。样品入口处的树状通道连接设计可最大限度减少系统的死体积,这对于难以纯化或仅有有限数量的样品尤为重要。
综上所述,在ChipX中实现的芯片实验室方法通过逆扩散结晶和晶体结构测定,简化并高效地实现了从样品到其三维结构的微型化过程,能够在单一装置中完成整个流程。该方法具有广泛的适用性,为室温下常规的序列生物晶体学研究提供了一种用户友好且成本效益高的解决方案。
披露
作者无任何利益冲突需要披露。
致谢
作者感谢瑞士光源(瑞士维利根)为本项目在X10SA(PXII)和X06DA(PXIII)光束线上分配的机时,感谢Alexandra Bluhm在结构精修方面的贡献,Clarissa Worsdale参与配音录制,以及François Schnell(斯特拉斯堡大学)在视频剪辑和音效方面的协助。本工作得到了法国国家科学研究中心(CNRS)、斯特拉斯堡大学、LabEx联盟"NetRNA"(ANR-10-LABX-0036_NETRNA)、斯特拉斯堡大学卓越计划(IdEx)框架下法国国家“未来投资”计划("Investissements d'Avenir")为R.dW提供的博士生资助、法德大学(UFA-DFH,项目编号CT-30-19)为K.R.提供的博士生资助,以及德国研究基金会(Deutsche Forschungsgemeinschaft,项目编号Mo 634/10-1)的资助。作者还受益于PROCOPE Hubert Curien合作项目(法国外交部与德国学术交流中心共同支持)。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| Axioscope A1 体视显微镜 | Zeiss | 晶体观察 (步骤 3) | |
| 羧基罗丹明琥珀酰亚胺酯 | Invitrogen | C-6157 | 蛋白质标记(步骤 2) |
| CMPcPP | Jena Bioscience | NU-438 | 晶体浸泡(步骤 4) |
| Crystal clear 封膜胶带 | Hampton Research | HR3-511 | ChipX 封装 (步骤 1) |
| 石蜡油 | Hampton Research | HR3-411 | ChipX 加载 (步骤 1) |
| Ultimaker 2 extended+ | Ultimaker | 3D 打印机 — 代表性结果 | |
| 紫外光源 | Xtal Concepts Gmbh | XtalLight100c | 晶体观察 (步骤 3) |
| Zeba 旋转脱盐柱,7K 分子量截留 | ThermoFisher Scientific | 89882 | 蛋白质标记 (步骤 2) |
参考文献
- Giegé, R., Sauter, C. Biocrystallography: past, present, future. HFSP Journal. 4 (3-4), 109-121 (2010).
- Dhouib, K., et al. Microfluidic chips for the crystallization of biomacromolecules by counter-diffusion and on-chip crystal X-ray analysis. Lab on a Chip. 9 (10), 1412-1421 (2009).
- Pinker, F., et al. ChipX: A Novel Microfluidic Chip for Counter-Diffusion Crystallization of Biomolecules and in Situ Crystal Analysis at Room Temperature. Crystal Growth & Design. 13 (8), 3333-3340 (2013).
- de Wijn, R., et al. A simple and versatile microfluidic device for efficient biomacromolecule crystallization and structural analysis by serial crystallography. IUCrJ. 6 (3), 454-464 (2019).
- García-Ruiz, J. M. A supersaturation wave of protein crystallization. Journal of Crystal Growth. 232 (1-4), 149-155 (2001).
- Otálora, F., Gavira, J. A., Ng, J. D., García-Ruiz, J. M. Counterdiffusion methods applied to protein crystallization. Progress in Biophysics and Molecular Biology. 101 (1-3), 26-37 (2009).
- Pusey, M., Barcena, J., Morris, M., Singhal, A., Yuan, Q., Ng, J. Trace fluorescent labeling for protein crystallization. Acta Crystallographica Section F Structural Biology Communications. 71 (7), 806-814 (2015).
- Meyer, A., Betzel, C., Pusey, M. Latest methods of fluorescence-based protein crystal identification. Acta Crystallographica Section F Structural Biology Communications. 71 (2), 121-131 (2015).
- Betat, H., Rammelt, C., Mörl, M. tRNA nucleotidyltransferases: ancient catalysts with an unusual mechanism of polymerization. Cellular and Molecular Life Sciences. 67 (9), 1447-1463 (2010).
- Ernst, F. G. M., Erber, L., Sammler, J., Jühling, F., Betat, H., Mörl, M. Cold adaptation of tRNA nucleotidyltransferases: A tradeoff in activity, stability and fidelity. RNA Biology. 15 (1), 144-155 (2018).
- Kabsch, W. XDS. Acta Crystallographica. Section D, Biological Crystallography. 66 (2), 125-132 (2010).
- Adams, P. D., et al. PHENIX: a comprehensive Python-based system for macromolecular structure solution. Acta Crystallographica. Section D, Biological Crystallography. 66 (2), 213-221 (2010).
- Dessau, M. A., Modis, Y. Protein Crystallization for X-ray Crystallography. Journal of Visualized Experiments. (47), e2285(2011).
- Sauter, C., Lorber, B., McPherson, A., Giegé, R. Crystallization - General Methods. International Tables of Crystallography, Vol. F, Crystallography of Biological Macromolecules. Arnold, E., Himmel, D. M., Rossmann, M. G. , 99-120 (2012).
- Garman, E. "Cool" crystals: macromolecular cryocrystallography and radiation damage. Current Opinion in Structural Biology. 13 (5), 545-551 (2003).
- Li, D., Boland, C., Aragao, D., Walsh, K., Caffrey, M. Harvesting and Cryo-cooling Crystals of Membrane Proteins Grown in Lipidic Mesophases for Structure Determination by Macromolecular Crystallography. Journal of Visualized Experiments. (67), e4001(2012).
- Diederichs, K., Karplus, P. A. Improved R-factors for diffraction data analysis in macromolecular crystallography. Nature Structural Biology. 4 (4), 269-275 (1997).
- Karplus, P. A., Diederichs, K. Linking Crystallographic Model and Data Quality. Science. 336 (6084), 1030-1033 (2012).
- de la Mora, E., Coquelle, N., Bury, C. S., Rosenthal, M., Holton, J. M., Carmichael, I., Garman, E. F., Burghammer, M., Colletier, J. -P., Weik, M. Radiation damage and dose limits in serial synchrotron crystallography at cryo- and room temperatures. Proceedings of the National Academy of Sciences of the United States of America. 117 (8), 4142-4151 (2020).
- Nave, C. A. Description of Imperfections in Protein Crystals. Acta Crystallographica. Section D, Biological Crystallography. 54 (5), 848-853 (1998).
重印与许可
