本文描述了利用荧光脂质探针和脂质体来确定某种蛋白质是否提取并转运磷脂酰丝氨酸或磷脂酰肌醇4-磷酸的实验方案 体外.
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
方法文章
基于荧光的膜间磷脂酰丝氨酸/磷脂酰肌醇-4-磷酸交换测量方法
* These authors contributed equally
本文内容
摘要
摘要
近年来,人们发现进化上保守的氧化固醇结合蛋白(oxysterol-binding protein, OSBP)相关蛋白(ORP)/OSBP同源蛋白(Osh)家族中的多个成员代表了一类新型的脂质转移蛋白(lipid transfer protein, LTP),可在酵母和人类细胞中将磷脂酰丝氨酸(phosphatidylserine, PS)从内质网(endoplasmic reticulum, ER)转移至质膜(plasma membrane, PM)。 通过 PS/磷脂酰肌醇4-磷酸(PI(4)P)交换循环。该发现有助于更深入理解对信号传导过程至关重要的PS在细胞内的分布方式,以及这一过程与磷脂酰肌醇(PIP)代谢之间关联的研究。新型基于荧光的实验方案的开发在这一新细胞机制的发现与表征过程中发挥了关键作用。 体外 在分子水平上。本文描述了两种荧光标记脂质探针 NBD-C2 的制备与应用乳糖 和 NBD-PHFAPP,用于检测某种蛋白质提取磷脂酰丝氨酸(PS)或磷脂酰肌醇-4-磷酸(PI(4)P)的能力,以及在人工膜之间转移这些脂质的能力。首先,本方案描述了如何制备、标记并获得这两种构建体的高纯度样品。其次,本文阐述了如何结合荧光酶标仪使用这些传感器,以Osh6p为实例,检测目标蛋白是否能够从脂质体中提取PS或PI(4)P。最后,本方案展示了如何利用标准荧光分光光度计,通过荧光共振能量转移(FRET)技术,精确测定由特定脂质组成脂质体之间的PS/PI(4)P交换动力学,并计算脂质转移速率。
引言
真核细胞不同膜之间及膜内脂质的精确分布1,2 具有深远的生物学意义。解析LTPs的功能机制是细胞生物学中的一个重要课题3,4,5,6,以及 体外 这些方法在解决这一问题方面具有重要价值7,8,9,10,11。在此,一种 体外, 提出了一种基于荧光的策略,该策略在证实多种ORP/Osh蛋白介导细胞膜间磷脂酰丝氨酸(PS)与磷脂酰肌醇-4-磷酸(PI(4)P)交换的过程中发挥了关键作用12 从而构成一类新的LTPs。PS是一种阴离子型甘油磷脂,在真核细胞膜脂质总量中占2-10%13,14,16它在内质网和质膜之间呈梯度分布,分别占甘油磷脂的5-7%和最高达30%17,18,19此外,磷脂酰丝氨酸(PS)主要富集于质膜的胞质侧小叶。PS 在质膜中的这种富集及其分布的不对称性,对细胞信号传导过程至关重要。19由于PS分子带负电荷,质膜的胞质侧脂质单层比其他细胞器的胞质侧脂质单层具有更高的负电性。1,2,19,20。这能够实现招募, 通过 静电作用力,如豆蔻酰化富含丙氨酸的C-激酶底物(MARCKS)等信号蛋白的静电作用力21,肉瘤病毒癌基因(Src)22,Kirsten大鼠肉瘤病毒癌基因(K-Ras)23以及Ras相关C3肉毒杆菌毒素底物1(Rac1)24 含有带正电荷的氨基酸序列和脂质尾部。
PS 也能以立体选择性方式被常规蛋白激酶 C 识别 通过 一个C2结构域25然而,磷脂酰丝氨酸(PS)在内质网中合成26,表明其必须被转运至质膜后才能发挥功能。此前尚不清楚这一过程是如何实现的19 直到发现酵母中的 Osh6p 和 Osh7p 能将磷脂酰丝氨酸(PS)从内质网(ER)转移至质膜(PM)27这些脂质转移蛋白(LTPs)属于真核生物中进化上保守的一个蛋白家族,该家族的原型成员是OSBP,其包含一系列整合了OSBP相关结构域(ORD)的蛋白质(人类中的ORPs,酵母中的Osh蛋白),该结构域具有容纳脂质分子的结合口袋。Osh6p和Osh7p仅由一个ORD构成,其结构特征特异性地适应于结合磷脂酰丝氨酸(PS)并在膜之间转移该脂质。然而,这些蛋白如何将PS从内质网(ER)定向转移至质膜(PM)尚不清楚。Osh6p和Osh7p能够捕获PI(4)P作为替代性脂质配体12在酵母中,PI(4)P 在高尔基体和质膜中由磷脂酰肌醇(PI)合成 分别由PI 4-激酶Pik1p和Stt4p催化生成。相比之下,内质网(ER)膜中不存在PI(4)P,因为该脂质被Sac1p磷酸酶水解为PI。因此,在ER/高尔基体和ER/质膜(PM)界面均存在PI(4)P浓度梯度。Osh6p和Osh7p将磷脂酰丝氨酸(PS)从内质网转移至质膜 通过 利用这两种膜之间存在的 PI(4)P 梯度进行 PS/PI(4)P 交换循环12.
在一个循环中,Osh6p 从内质网提取磷脂酰丝氨酸(PS),在质膜处将 PS 与磷脂酰肌醇-4-磷酸(PI(4)P)交换,并将 PI(4)P 转运回内质网以提取另一个 PS 分子。Osh6p/Osh7p 与 Ist2p 相互作用28, 少数能够连接内质网膜与质膜并使其紧密靠近,从而在酵母中形成内质网-质膜接触位点的蛋白质之一29,30,31此外,Osh6p 与带负电荷膜的结合在其提取出一种脂质配体后会立即减弱,这是由于构象变化改变了其静电特性所致。32这有助于缩短 Osh6p 在膜上的停留时间,从而维持其脂质转移活性的效率。结合与 Ist2p 的结合,该机制可使 Osh6p/7p 在内质网与质膜接触界面快速而准确地执行脂质交换。在人类细胞中,ORP5 和 ORP8 蛋白在内质网-质膜接触位点执行磷脂酰丝氨酸/磷脂酰肌醇-4-磷酸(PS/PI(4)P)的交换 通过 不同的机制33它们具有一个类似于 Osh6p 的中央 ORD 结构域,但可直接锚定在内质网上 通过 C端跨膜区段33 并与质膜结合 通过 一个N端Pleckstrin同源(PH)结构域,可识别PI(4)P和PI(4,5)P233,34,35ORP5/8 利用 PI(4)P 转运 PS,已有研究表明 ORP5/8 还可调节质膜上的 PI(4,5)P₂2 水平,并可能调节信号通路。相应地,PI(4)P 和 PI(4,5)P 的减少2 PS水平升高会降低ORP5/ORP8的活性,因为这些蛋白以依赖磷脂酰肌醇磷酸(PIP)的方式与质膜(PM)结合。异常升高的PS合成(可导致Lenz-Majewski综合征)通过ORP5/8影响PI(4)P水平36当两种蛋白质的活性均被抑制时,磷脂酰丝氨酸(PS)在质膜(PM)上的丰度降低,从而减弱信号蛋白的致癌能力。37.
相反,ORP5的过表达似乎会促进癌细胞的侵袭和转移过程38。因此,ORP5/8活性的改变可通过影响脂质稳态而显著改变细胞行为。此外,ORP5和ORP8定位于内质网-线粒体接触位点,并维持部分线粒体功能,这可能通过向线粒体提供磷脂酰丝氨酸(PS)实现39。另外,ORP5还定位于内质网-脂滴接触位点,通过PS/PI(4)P交换将PS递送至脂滴40。本文所述的策略旨在检测(i)从脂质体中提取PS和PI(4)P,以及(ii)脂质体间PS和PI(4)P的转运,该方法最初用于建立和分析Osh6p/Osh7p的PS/PI(4)P交换活性12,32,并已被其他研究团队用于分析ORP5/ORP835及其他脂质转运蛋白(LTPs)的活性10,41。该方法基于使用荧光酶标仪、标准L型荧光分光光度计,以及两种分别可检测PS和PI(4)P的荧光探针NBD-C2Lact 和NBD-PHFAPP。
NBD-C2乳糖 对应于乳粘素(lactadherin)糖蛋白的C2结构域,该结构域经重新设计,在假定的磷脂酰丝氨酸(PS)结合位点附近引入了一个独特的溶剂暴露性半胱氨酸残基;一个对极性敏感的NBD(7-硝基苯并-2-氧杂-1,3-二唑)荧光探针共价连接至该残基图1A)12更准确地说,将乳粘素(Bos taurus,UniProt: Q95114,残基270-427)的C2结构域克隆至pGEX-4T3载体中,以实现其与谷胱甘肽S-转移酶(GST)的融合表达 大肠杆菌C2乳糖 将序列进行突变,以丙氨酸残基取代两个溶剂可及的半胱氨酸残基(C270、C427),并在假定的PS结合位点附近区域引入一个半胱氨酸残基(H352C突变),后者可随后用N,N'-二甲基-N-(碘乙酰基)-N'-(7-硝基苯并-2-氧杂-1,3-二唑-4-基)乙二胺(IANBD)进行标记 12在GST蛋白与C2结构域N端之间存在一个凝血酶切割位点。主要优势在于该结构域能在Ca²⁺存在下选择性识别磷脂酰丝氨酸(PS)。2+-独立的方式,与其他已知的C2结构域或膜联蛋白A5相反42NBD-PHFAPP 源自人类PH结构域 四磷酸肌醇适配蛋白1(FAPP1),经重新设计后包含一个位于PI(4)P结合位点附近、暴露于溶剂的单个半胱氨酸,可标记NBD基团图1A)43人源FAPP蛋白PH结构域的核苷酸序列(UniProt: Q9HB20,片段[1-100])已克隆至pGEX-4T3载体中,用于与GST标签串联表达。该PHFAPP 序列已进行修饰,以在蛋白质的膜结合界面内插入一个独特的半胱氨酸残基43此外,在凝血酶切割位点与PH结构域的N端之间引入了一个九氨基酸残基的连接序列,以确保蛋白酶能够有效接触切割位点。
为了测量NBD-C2从脂质体中的提取情况乳糖 与含有少量磷脂酰丝氨酸(PS)的磷脂酰胆碱(PC)脂质体混合。由于该探针对PS具有亲和性,因此会结合到脂质体上,当NBD荧光基团接触到膜的疏水环境时,其极性发生变化,导致荧光发生蓝移并增强。若通过化学计量的LTP几乎完全提取了PS,则探针无法与脂质体结合,NBD荧光信号降低(图1B)32该信号差异被用于判断是否存在长时程增强(LTP)例如, Osh6p)提取PS。NBD-PH也采用类似策略。FAPP 测量PI(4)P的提取图1B),如先前所述12,32. 设计了两种基于FRET的检测方法,用于(i)测量PS从LA 至 LB 分别模拟内质网膜和质膜的脂质体,以及(ii)PI(4)P逆向运输。这些实验在相同条件下进行(即, 相同的缓冲液、温度和脂质浓度)以检测PS/PI(4)P交换. 为了测量PS的转运,使用NBD-C2乳糖 与L混合A 由磷脂酰胆碱组成并掺入5 mol%磷脂酰丝氨酸和2 mol%荧光罗丹明标记的磷脂酰乙醇胺的脂质体 (Rhod-PE)-和LB 掺入5 mol% PI(4)P的脂质体
在零时刻,Rhod-PE 的 FRET 会淬灭 NBD 荧光。如果磷脂酰丝氨酸(PS)从 L 转运A 至 LB 脂质体例如, 注射Osh6p后,由于NBD-C2的转位,迅速发生去淬灭现象乳糖 L中的分子A 至 LB 脂质体图1C)。根据可接触的PS量,NBD-C2乳糖 在整个实验过程中基本保持在膜结合状态12因此,NBD信号的强度与NBD-C2的分布直接相关乳糖 L之间A 和 LB 脂质体,并可轻松进行归一化处理以确定转移的PS量。为测量PI(4)P在相反方向的转移,使用NBD-PHFAPP 与L混合A 和 LB 脂质体;因为它仅与L结合B 含有PI(4)P但不含Rhod-PE的脂质体,其荧光强度较高。若PI(4)P被转移至LA 脂质体,它会转位至这些脂质体,并因与Rhod-PE发生FRET而导致信号减弱(图1C)。信号经过归一化处理,以确定转移的PI(4)P量43.
访问受限。请登录或开始试用以查看此内容。
方案
1. NBD-C2Lact 的纯化
注意:尽管本方案详细描述了使用细胞破碎仪裂解细菌的方法,但也可修改为采用其他裂解策略(例如, 使用高压匀浆器)。在纯化初期,必须使用新鲜脱气、过滤并添加了2 mM二硫苏糖醇(DTT)的缓冲液,以防止半胱氨酸氧化。然而,在蛋白质标记步骤中,必须彻底去除DTT。许多操作步骤需在冰上或冷室中进行,以避免蛋白质降解。在实验方案的不同阶段,需采集30 µL体积的样品用于分析 使用15%丙烯酰胺凝胶进行十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE),以检测纯化过程的进展。将足量的变性Laemmli上样缓冲液与各等份样品混合,于95 °C加热。待冷却后,于-20 °C冻存管中,直至分析。
- GST-C2 的表达乳糖 在 大肠杆菌
- 将20 µL BL21 Gold感受态细胞与18 µL无菌水混合。然后加入2 µL pGEX-C2质粒DNA乳糖 质粒(约65 ng/µL)与细菌混合,通过电穿孔法进行转化。用150 µL高压灭菌的Lennox Lysogeny-Broth重悬细菌 (LB) 培养基(10 g/L 胰蛋白胨,5 g/L 酵母提取物,5 g/L NaCl 溶于去离子水,不含葡萄糖)。将细菌置于 2 mL 带盖微量离心管中,在 37 °C 下培养 1 小时。
- 在125 mL无菌锥形瓶中,加入25 mL LB培养基(添加50 µg/mL氨苄青霉素)和150 µL细菌悬液。将锥形瓶置于37 °C摇床中,于185 rpm振荡条件下过夜培养细菌。
- 将500 mL LB培养基加入两个无菌的2 L锥形瓶中,每瓶添加50 µg/mL氨苄青霉素,并接种5 mL预培养菌液。在37 °C、220 rpm振荡条件下培养细菌。
- 定期在波长(λ)600 nm处测定悬浮液的光密度(OD)。当OD值达到约0.6–0.7时,向每个烧瓶中加入500 µL 1 M异丙基-β-D-硫代半乳糖苷(IPTG)储备液,以诱导GST-C2的表达。乳糖以 185 rpm 的转速在 37 °C 下振荡培养 4 小时。
- 转移每个烧瓶中的内容物 转移到聚丙烯离心管中。将两个离心管在4600 × g条件下离心30分钟 g 在 4 °C 下离心以沉淀细菌。弃去上清液,将每份沉淀重悬于 50 mL 冷的磷酸盐缓冲液(PBS)中。
- 将每个瓶子中的细菌悬液转移至50 mL锥形离心管中。将两支离心管在2300 × g条件下离心30分钟。 g 在 4 °C 条件下. 移去上清液,将每管含有细菌沉淀的样品于 -20 °C 保存。
- C2 的纯化乳糖
- 在冰上,用50 mL缓冲液(含50 mM Tris-HCl,pH 7.4,和150 mM NaCl,以下简称TN缓冲液)分别填充两个50 mL圆锥形离心管,该缓冲液需预先经膜抽滤真空过滤除菌并脱气。
- 在每个试管中配制裂解缓冲液时,通过轻微超声或涡旋振荡将一片不含乙二胺四乙酸的蛋白酶抑制剂混合片溶解于TN缓冲液中。加入其他抗蛋白酶试剂(10 µM 谷氨酰胺对硝基苯胺、1 µg/mL 胃蛋白酶抑制剂A 和 10 µM 磷酸拉米同)。重要的是,向缓冲液中添加 2 mM DTT。
- 将步骤1.1.6中制备的两管细菌沉淀分别加入裂解缓冲液,使每管终体积达到30 mL,在冰上缓慢解冻10分钟。用不锈钢刮勺压碎每管中的沉淀,并通过涡旋振荡管子和/或使用移液控制器与25 mL移液管反复吹打悬浮液,直至形成均匀的悬浮体系。
- 使用预冷的细胞破碎仪进行裂解(参见 材料表通过将30 mL样品加入储液器中,并以1.6 bar的压力在连续模式下运行破碎循环,进行裂解。收集裂解液至同一离心管中,将管子置于冰上,并立即加入250 µL用异丙醇配制的200 mM苯甲基磺酰氟(PMSF)储备液。
- 按照相同步骤裂解另一个样品。用剩余的裂解缓冲液冲洗细胞破碎仪,并收集洗涤液以调节每个裂解液的体积(约30 mL)至终体积50 mL。
- 每份裂解液中补充 5 mM MgCl2,加入20 µg/mL的DNA酶I以片段化DNA,从而降低样品黏度。冰上孵育30分钟。取样用于凝胶分析。
- 将每份50 mL裂解液转移至预冷的聚碳酸酯超速离心管中(共两支,参见 材料表)。在 186,000 × g 在4 °C下使用超速离心机离心至少1小时。
- 与离心步骤同时,将1.4 mL含有与4%琼脂糖珠偶联的谷胱甘肽的悬液分装至两个50 mL圆锥形离心管中,每管加入20 mL含1 mM DTT的TN缓冲液(TND缓冲液),在1200 × g 5 分钟,弃去上清液。重复此洗涤步骤两次。
- 离心细菌裂解液后,从上清液中取出30 µL样品,并将每个超速离心管中的上清液转移至含有洁净磁珠的相应50 mL锥形离心管中。进行凝胶分析时,用50 mL TND缓冲液重悬其中一个超速离心管中的沉淀碎片,并收集30 µL样品。
- 将试管置于旋转仪上,在 4 °C 下旋转 3–4 小时,以获得均匀的珠悬浮液。将珠悬浮液汇集至一个空的 25 mL 层析柱。让凝胶珠自然沉降,通过重力流去除缓冲液和未结合的蛋白质。从洗脱液中取样用于分析。
- 用 20 mL TND 缓冲液重悬珠子,并通过重力流收集洗脱液。重复此步骤两次,以彻底洗涤珠子。合并收集的洗脱液,并保留 30 µL 样品用于后续分析。
注意:短暂静置后,取约 2 mL 珠子悬浮液,加入 GST-C2乳糖 附着在柱底的沉淀物。 - 向两个 2 mL 带盖微型离心管中各加入 1 mL 磁珠悬浮液。用 TND 缓冲液将每管补至终体积 1.970 mL。从其中一管取 30 µL 样品用于后续分析(B1 样品)。加入 10 µL 10 mM CaCl₂2 溶液和25 µL人凝血酶蛋白酶原液(0.02 U/µL)。
- 将两个试管置于4 °C旋转仪上过夜,使凝血酶切割C2上的GST标签乳糖 结构域。第二天,在每个试管中,将10 µL 200 mM PMSF溶液与珠子悬浮液混合,以抑制凝血酶活性。
- 将离心管在700 × g 5 分钟后收集上清液,其中含有可溶性 C2乳糖 从每根离心管中收集上清液,避免吸取磁珠。将上清液汇集至一个置于冰上的2 mL螺口微量离心管(E1洗脱液)中。
- 向每管中加入 1 mL TND 缓冲液以重悬珠子,并进行洗涤;重复步骤 1.2.14。此步骤需再重复三次,以最大限度回收蛋白。每次将收集的上清液合并至新的 2 mL 管中(分别为 E2、E3、E4 和 E5 洗脱液),并取等分试样用于后续分析。完成洗涤步骤后,从珠子悬液中取等分试样(B2 试样)。
- 采用15%丙烯酰胺凝胶对纯化流程不同步骤中收集的30 µL样品进行SDS-PAGE分离分析。
- 通过收集所有上清液来去除可能存在的污染珠即将步骤 1.2.14 和 1.2.15 中收集的溶液(约 10 mL)加入一个 10 mL 层析柱中。通过重力流收集流出液,并保留柱底的珠状物。
- 浓缩 C2乳糖 使用截留分子量(MWCO)为3 kDa的离心过滤装置,在2300 × g离心速度下进行样品处理 g当蛋白样品体积浓缩至约1 mL时,停止浓缩操作。
- NBD-C2的制备与纯化乳糖
- 平衡脱盐柱(参见材料清单) 材料表) 用 TN 缓冲液平衡柱子。加入 1 mL 浓缩的 C2 上样乳糖 样品。待样品完全进入凝胶床后,向柱中加入1.5 mL新鲜脱气的不含DTT的TN缓冲液,通过重力流将洗脱液收集至2 mL带盖微型离心管中。
- 将50 µL洗脱液用TN缓冲液稀释至终体积300 µL,以纯TN缓冲液作为空白对照,在230至450 nm范围内测定吸光度光谱。测定C2乳糖 基于在 280 nm 处测得的吸光度计算浓度, extinction coefficient ε 为 44,920 M-1.cm-1.
- 对C2进行标记乳糖 带有NBD荧光团的构建体,将蛋白质与十倍摩尔过量的 N,N'-二甲基-N-(碘乙酰基)-N'-(7-硝基苯并-2-氧杂-1,3-二唑-4-基)乙二胺(IANBD酰胺)
- 将1 mg IANBD溶解于无水二甲基甲酰胺(DMF)中,注意用于标记C2的DMF最终体积乳糖 构建物体积不得超过蛋白样品体积的5%(v/v)。
- 为了确定DMF的体积(VDMF) 为溶解 IANBD,首先使用公式计算标记蛋白质所需的 IANBD 量(m,以 mg 为单位) 1.
m = 10,000 × C × V × MWIANBD (1)
其中 C 为 C2 的浓度乳糖 在步骤1.3.2中测得,V为C2的体积乳糖 样品,以及分子量IANBD 是荧光染料的分子量(420 g/mol)。 - 计算 VDMF 通过使用公式 2 (含 m0=1)和 3.
VDMF= (m0/m) × VIANBD (2)
VIANBD=0.05 × V (3)
其中 m0 是 IANBD 粉末的质量(单位为 mg),以及 VIANBD 是需加入C2的IANBD溶液的体积乳糖 样品 - 加入体积 VIANBD 新鲜配制的IANBD溶液加入至C2乳糖 样品在避光条件下,使用恒温混匀仪于25 °C、800–900 rpm振荡反应30分钟。随后将反应液置于冰上继续反应90分钟。在此期间,用10 mL TN缓冲液清洗一个超滤离心管(截留分子量=3 kDa)。
- 加入L-半胱氨酸(摩尔量为IANBD的10倍)至反应混合物中,以灭活游离的IANBD。
- 向NBD-C2中加入15 mL TN缓冲液乳糖 溶液,并转移NBD-C2乳糖 将溶液加入离心过滤装置中,通过在2300 × g条件下离心浓缩样品至2 mL,以分离大部分游离的NBD与蛋白质。 g重复此洗涤步骤两次。将样品置于2 mL带盖离心管中,在19,000 × g条件下离心10分钟。 g 在 4 °C 下离心以沉淀可能的聚集体,并收集上清液。
- 将50 µL洗脱液用TN缓冲液稀释至终体积300 µL。以浓缩过程中收集的洗脱液作为空白对照,测定230至650 nm范围内的吸收光谱。测定NBD-C2乳糖 使用波长 λ=280 和 495 nm 处的最大吸光度及消光系数 ε=44,920 M⁻¹cm⁻¹ 测定浓度-1.cm-1 (蛋白质)和 25,000 M-1厘米-1 (NBD 荧光团)
注意:如果两个浓度值相近,则表明 C2乳糖 构建体以1:1的比例用NBD基团标记。 - 如果 NBD-C2乳糖 若根据NBD吸光度测得的浓度超过根据色氨酸(Trp)残基吸光度估算的浓度,请重复步骤1.3.5 以进一步去除游离的NBD。
- 向样品中加入甘油,使其终浓度为10%(v/v),以对NBD-C2进行冷冻保护乳糖 在闪冻过程中构建样品。测定最终蛋白质浓度。
- 将蛋白样品分装至0.5 mL的压盖微量离心管中,每管50 µL。用液氮速冻后,于-80 °C保存。
2. NBD-PHFAPP 的纯化
注意:PHFAPP 的制备与标记过程与NBD-C2Lact 完全相同,直至第1.3.4步将NBD-C2Lact 溶液转移至离心过滤装置。从该步骤开始,请遵循下述方案。
- 浓缩步骤完成后,将 2 mL NBD-PHFAPP 在 4 °C 避光保存,保存时间不超过 1 天,随后进行凝胶过滤层析。在进行凝胶过滤层析前,需检查离心管底部是否存在橙色沉淀(浓缩过程中发生聚集)。若存在沉淀,需在 4 °C 下以 540,000 × g 离心 10 分钟,并对上清液进行凝胶过滤层析纯化。
注意:凝胶过滤层析使用预先用 TND 缓冲液平衡的交联葡聚糖-丙烯酰胺共聚物填料柱(见材料表),在快速蛋白液相色谱系统(见材料表)上进行。层析柱需避光操作。流速设定为 1 mL/min,通过检测柱流出液在 λ=280 nm(蛋白质)和 480 nm(NBD)处的吸光度变化来监测 NBD-PHFAPP 构建体的洗脱情况。- 将装入 2 mL 进样环中的 NBD-PHFAPP 样品注入层析柱,并立即开始收集每管 2.5 mL 的洗脱组分。
- 将对应于 280 nm 和 480 nm 处主峰的所有洗脱组分取样,在 15% SDS-PAGE 凝胶上进行分析。每管组分取 25 µL,与 15 µL Laemmli 上样缓冲液混合,加热后上样至凝胶。
注意:当约 150 mL 缓冲液流经层析柱后,会在 280 nm 和 480 nm 处同时出现一个主峰。 - 合并仅含有 NBD-PHFAPP 蛋白(约 12.2 kDa)的组分,并加入甘油至终浓度为 10%(v/v)。使用截留分子量为 3 kDa 的离心过滤装置,在 2300 × g 离心条件下将样品浓缩至终体积 1 mL。
- 分装保存,并参照 NBD-C2Lact 的方法记录吸光度光谱。使用消光系数 ε = 29,450 M-1·cm-1,根据在 λ=280 nm 处测得的吸光度值计算蛋白浓度。
3. 用于PS和PI(4)P提取或转移实验的脂质体的制备
注意:除非另有说明,所有步骤均在室温下进行。操作有机溶剂、旋转蒸发仪和液氮时需谨慎。
- 配制新鲜的、经滤过和脱气的 50 mM 4-(2-羟乙基)-1-哌嗪乙磺酸(HEPES)-氢氧化钾(KOH),pH 7.4,含 120 mM 醋酸钾(HK)的缓冲液。
- 对于每种类型的脂质体,从储备液中精确量取不同脂质,于25 mL梨形玻璃烧瓶中混合表1)。加入纯氯仿,将每种混合物的体积调至1 mL。用脂质体名称标记每个烧瓶。用铝箔包裹含有掺入Rhod-PE的脂质混合物的烧瓶。
- 将烧瓶置于旋转蒸发仪上。在25 °C下,以500 rpm的转速进行真空干燥,至少持续30分钟。对于含有PI(4)P的脂质膜,先在32–34 °C下轻轻旋转预热烧瓶5分钟,使PI(4)P与其他脂质充分混合,然后再对烧瓶抽真空以去除溶剂,最终在烧瓶内壁形成一层干燥的脂质膜。
- 将烧瓶从旋转蒸发仪上取下,放入真空干燥箱中抽真空45分钟,以去除残留的微量溶剂。向烧瓶中加入2 mL HK缓冲液,并向溶液中加入数粒直径为4 mm的玻璃珠。轻轻涡旋振荡烧瓶2分钟,使脂质充分重悬,制备脂质浓度为4 mM的多层脂质体(MLVs)。将MLVs分装为每份0.5 mL,置于1.5 mL螺口微量离心管中。
- 将管子进行5次冻融循环(分别使用液氮和37 °C水浴)。挤出脂质体,或于-20 °C保存。
- 使用微型挤出器制备脂质体(即, 根据制造商的说明,使用200 nm直径的均一圆柱形孔径聚碳酸酯滤膜,将多层脂质体(MLVs)制备成大单层脂质体(large unilamellar vesicles)。
- 制备每种类型的脂质体时,需将至少250 µL相应MLV悬浮液进行挤出。若脂质体含有Rhod-PE,则将其在4 °C避光保存。脂质体应在2天内使用。
| 脂质组成(摩尔/摩尔) | 脂质 | |||||
| 脂质体名称 | DOPC (25 mg/mL) | POPS (10 mg/mL) | 16:0 Liss Rhod-PE (1 mg/mL) | C16:0/C16:0-PI(4)P (1 mg/mL) | ||
| 提取实验 | 含2 mol% PS的脂质体 | PC/PS 98/2 | 247 µL | 12.5 µL | ||
| 含2 mol% PI(4)P的脂质体 | PC/PI(4)P 98/2 | 247 µL | 153 µL | |||
| PC脂质体 | PC 100 | 252 µL | ||||
| 转运实验 | LA | PC/PS/Rhod-PE 93/5/2 | 234 µL | 31.4 µL | 200 µL | |
| LA 不含PS | PC/Rhod-PE 98/2 | 247 µL | 200 µL | |||
| LB | PC/PI(4)P 95/5 | 237 µL | 383 µL | |||
| LB 不含PI(4)P | PC 100 | 252 µL | ||||
| LA-Eq | PC/PS/PI(4)P/Rhod-PE 93/2.5/2.5/2 | 234 µL | 15.7 µL | 200 µL | 191 µL | |
| LB-Eq | PC/PS/PI(4)P 95/2.5/2.5 | 239 µL | 15.7 µL | 191 µL | ||
表1:制备脂质体所需脂质储备液的体积。缩写: PS = 磷脂酰丝氨酸;PC = 磷脂酰胆碱;PI(4)P = 磷脂酰肌醇-4-磷酸;Rhod-PE = 罗丹明标记的磷脂酰乙醇胺;DOPC = 二油酰基磷脂酰胆碱;POPS = 1-棕榈酰-2-油酰-sn-甘油-3-磷酸-L-丝氨酸;16:0 Liss Rhod-PE = 1,2-二棕榈酰-sn-甘油-3-磷脂酰乙醇胺-N-(丽丝胺罗丹明B磺酰基)。
4. PS 或 PI(4)P 提取的测定
注意:必须使用黑色96孔板和配备单色器的荧光酶标仪进行测量,单色器用于荧光激发和发射,且带宽可调。
- 制备新鲜的、经过滤和脱气的 HK 缓冲液,并添加 1 mM MgCl2(即 HKM 缓冲液)。制备纯 PC 脂质体以及掺入 2 mol% PS 或 2 mol% PI(4)P 的 PC 脂质体(最终脂质浓度为 4 mM,参见表 1)。
注意:实验过程中,始终将挤出后的脂质体悬液置于室温下保存,蛋白质则需置于冰上。此外,需避免脂质探针暴露于光照下。 - 进行 PS 提取实验时,在一个孔中加入含 2 mol% PS 的脂质体(最终脂质浓度为 80 µM,可接触的 PS 浓度为 0.8 µM)与 NBD-C2Lact(最终浓度为 250 nM),总体积为 100 µL。在第二个孔中加入等量的含 PS 脂质体(80 µM,2 mol% PS)和 NBD-C2Lact(250 nM),并加入 3 µM 的脂质转移蛋白(LTP)(以 Osh6p 作为阳性对照,或使用待研究的蛋白)。
注意:Osh6p 完成脂质提取所需的孵育时间约为 5 分钟。 - 在第三个孔中加入 NBD-C2Lact(250 nM)与纯 PC 脂质体(80 µM)的混合物。第四个孔中仅加入纯 PC 脂质体(80 µM)。重复步骤 4.2–4.3,再制备三组各四个孔的样品。
- 对每个孔,在 25 °C 下以 490 nm 激发(带宽 5 nm),记录 505 至 650 nm 的 NBD 发射光谱(带宽 5 nm)。对每组数据,用其他孔的光谱减去仅含脂质体孔的光谱背景。
注意:F 和 Fmax 分别表示在存在或不存在 LTP 时,含 PS 脂质体在 536 nm 处测得的荧光强度,而 F0 表示在相同波长下纯 PC 脂质体的荧光强度。对于每组实验,蛋白提取的可接触 PS 百分比可通过以下公式计算:
100 × (1 - ((F - F0) / (Fmax - F0))) (4) - 进行 PI(4)P 提取实验时,制备掺入 2 mol% PI(4)P 的脂质体,并使用 NBD-PHFAPP 探针进行检测。对照实验的设置及提取百分比的计算方法与上述 PS 实验相同。
注意:脂质体和蛋白的浓度与 PS 提取实验中所用一致。
5. 磷脂酰丝氨酸转运的实时测量
注意:使用配备有温控样品池架和磁力搅拌器的标准荧光分光光度计(90°模式)记录脂质转移动力学。为准确获取数据,关键在于将样品始终维持在恒定温度(根据蛋白质来源,设定在25至37 °C之间)例如,酵母或人类)并持续搅拌。以下方案用于测量圆柱形石英比色皿中600 µL样品的脂质转运。
- 配制新鲜的脱气过滤HKM缓冲液。将含有挤出脂质体的离心管置于室温下保存。对于含有Rhod-PE标记脂质体的离心管,需用铝箔包裹和/或存放在不透明盒子中,以防止光漂白。
- 将激发和发射单色器分别调节至 λ = 460 nm(窄带宽,1–3 nm)和 λ = 530 nm(宽带宽,≥ 10 nm)。设置采集时间为 25 min,时间分辨率 ≤ 1 s。
- 在石英比色皿中,加入30 µL的LA 脂质体悬液和NBD-C2的体积乳糖 在预热的 HKM 缓冲液中配制储备液,制备含有 200 µM 总脂质和 250 nM NBD-C2 的 570 µL 样品乳糖加入一个小型磁力搅拌子,将比色皿置于荧光仪样品槽中。
- 样品热平衡后(3-5 分钟),启动测量。1 分钟后,加入 30 µL 的 LB 向样品中加入脂质体悬液(总脂质终浓度为 200 µM)。3 分钟后,加入 LTP 使终浓度为 200 nM,继续采集信号 21 分钟。
- 进行平行实验以标准化NBD信号。混合30 µL的LA-Eq 含250 nM NBD-C2的脂质体悬液乳糖 在570 µL HKM缓冲液中。1分钟后,加入30 µL LB-Eq 脂质体悬液
注意:L 的脂质组成A-Eq 和 LB-Eq 脂质体与L的相似性A 和 LB 转移实验中使用的脂质体,每种均含有2.5 mol% PS和2.5 mol% PI(4)P。因此,测得的NBD信号记为FEq,对应于PS在L之间完全平衡时应测量的信号A 和 LB 通过转移过程制备脂质体。 - 将使用目标LTP测得的动力学曲线转换,以确定从L转移的PS量(单位:µM)A 至 LB 随时间推移的脂质体。使用以下公式对曲线中的每个数据点(F)进行归一化。
F正常 = (F-F0)/(FEq-F0) (5)
其中 F0 对应于添加LTP前的NBD信号,以及FEq 是步骤 5.5 中测得的信号。
注意:从L转移的PS量(以 µM 计)A 至 LB 脂质体对应于2.5 × F标准, 考虑到平衡状态对应于可及的磷脂酰丝氨酸(PS)分子中有一半位于脂质体外层的情况A 脂质体,(即,相当于总脂质(0.5 × 200 µM)的 5 mol%)已转移至 LB 脂质体
6. PI(4)P 转运的实时测量
- 设定荧光计参数(激发波长、发射波长、带宽、采集时间、时间分辨率),如同PS转移实验中的设置。同样,使用相同的缓冲液、比色皿和脂质体,在持续搅拌及相同温度条件下进行实验。
- 在比色皿中,加入 30 µL 的 LB 脂质体悬液和NBD-PHFAPP 用预热的HKM缓冲液定容至终体积570 µL(总脂质浓度200 µM,NBD-PH浓度250 nM)FAPP)。样品达到热平衡后,开始测量,1分钟后加入30 µL LA 脂质体悬液。3分钟后,加入目标LTP(终浓度为200 nM),并记录信号。
- 进行第二次实验以标准化NBD信号。混合30 µL的LB-Eq 含250 nM NBD-PH的脂质体悬液FAPP 在570 µL HKM缓冲液中。1分钟后,加入30 µL LA-Eq 脂质体悬液
注意:此处将NBD信号称为FEq,对应于PI(4)P在L之间完全平衡时应测量的值A 和 LB 脂质体 - 将动力学曲线转换以确定从L转移的PI(4)P量(单位:µM)B 至 LA 随时间变化的脂质体。每个数据点(F)均使用公式进行归一化处理 5 其中 F0 对应于添加LTP之前的NBD信号,以及FEq 是步骤 6.3 中测得的信号。
注意:从L转移的PI(4)P量(以µM计)B 至 LA 脂质体对应于2.5 × F标准, 考虑到平衡状态对应于L双层外小叶中所含PI(4)P的一半B 脂质体即, 0.5 × 5 µM)已转移至LA 脂质体
7. 动力学曲线分析
- 通过测定LTP注入比色皿后最初几秒内将脂质从一个脂质体群转移到另一个脂质体群的速度,来量化该LTP的效率。
- 对转移动力学的初始数据点进行线性回归,得到斜率。将斜率值除以反应混合物中LTP的浓度,以确定每单位时间(分钟或秒)每蛋白转移的脂质分子数量 。
访问受限。请登录或开始试用以查看此内容。
结果
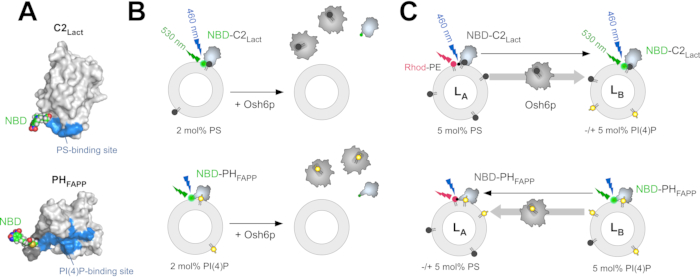
图1:荧光脂质传感器的描述及 体外 检测方法 (ANBD-C2的三维模型乳糖 和 NBD-PHFAPP 基于牛乳粘素C2结构域的晶体结构(PDB ID: 3BN6)48)以及人源FAPP1蛋白PH结构域的NMR结构(PDB ID: 2KCJ)46)。一个 N,N'-二甲基-N-(硫代乙酰基)-N'-(7-硝基苯并...
访问受限。请登录或开始试用以查看此内容。
讨论
这些检测的结果直接依赖于荧光脂质传感器的信号。因此,将这些探针以1:1的比例与NBD标记,并确保不含游离NBD荧光染料污染的纯化步骤,是本方案中的关键环节。同时,必须检测待研究的脂质转移蛋白(LTP)是否正确折叠且未发生聚集。在提取检测中所使用的LTP量必须等于或高于可及的磷脂酰丝氨酸(PS)或磷脂酰肌醇-4-磷酸(PI(4)P)分子的数量,以准确评估该LTP是否能有效提取这些脂质。事实上,NBD-C2Lact和NBD-PHFAPP分别与PS和PI(4)P结合,其结合曲线符合经典的饱和结合模式。鉴于它们各自对PS和PI(4)P的亲和力,即使脂质体中含有微量残留的这些配体,这些探针仍会大量结合在脂质体上。这可能导致错误结论,即某种LTP无法有效提取这些脂质。本方案采用标准且可商业获得的磷脂酰胆碱(PC)、PS和PI(4)P亚型,分别为18:1/18:1-PC、16:0/18:1-PS和16:0/16:0-PI(4)P。 如先前报道所述,使用具有其他酰基链组成的脂质种类进行实验可能会得到不同的结果12,
访问受限。请登录或开始试用以查看此内容。
披露
作者声明不存在利益冲突。
致谢
我们感谢 A. Cuttriss 博士对本文手稿的仔细校对。本工作由法国国家研究署资助项目 ExCHANGE(ANR-16-CE13-0006)以及法国国家科学研究中心(CNRS)资助。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| L-半胱氨酸 ≥97%(FG) | Sigma | W326305-100G | 用去离子水配制10 mM的L-半胱氨酸储备液。分装后于-20 °C保存 |
| 2 mL 棕色小瓶,带PTFE/橡胶内衬,用于CHCl3中脂质的储存 | Wheaton | W224681 | |
| 直径4 mm玻璃珠 | Sigma | Z265934-1EA | |
| 50 mL 锥形离心管 | Falcon | ||
| ÄKTA 纯化仪 | GE healthcare | FPLC | |
| 铝箔 | |||
| Amicon Ultra-15 超滤离心管,截留分子量为3 kDa和10 kDa | Merck | UFC900324, UFC901024 | |
| Amicon Ultra-4 超滤离心管,截留分子量为3 kDa和10 kDa | Merck | UFC800324, UFC801024 | |
| 氨苄青霉素 | 用过滤除菌的水配制50 mg/mL的储备液,并于-20 °C保存 | ||
| 亮肽素(Bestatin) | Sigma | B8385-10mg | |
| BL21 Gold 感受态细胞 | Agilent | ||
| C16:0 Liss (Rhod-PE)溶于CHCl3(1 mg/mL) | Avanti Polar Lipids | 810158C-5MG | |
| C16:0/C16:0-PI(4)P | Echelon Lipids | P-4016-3 | 将1 mg C16:0/C16:0-PI(4)P粉末溶于250 µL甲醇和250 µL CHCl3中,再用CHCl3补至1 mL,溶液应变为澄清 |
| C16:0/C18:1-PS(POPS)溶于CHCl3(10 mg/mL) | Avanti Polar Lipids | 840034C-25mg | |
| C18:1/C18:1-PC(DOPC)溶于CHCl3(25 mg/mL) | Avanti Polar Lipids | 850375C-500mg | |
| CaCl2 | Sigma | 用去离子水配制10 mM的CaCl2储备液 | |
| 细胞破碎仪 | Constant Dynamics | ||
| 氯仿(CHCl3),RPE-ISO级 | Carlo Erba | 438601 | |
| 不含EDTA的蛋白酶抑制剂混合物(Complete EDTA-free protease inhibitor cocktail) | Roche | 5056489001 | |
| 去离子水(Milli-Q水) | |||
| 二甲基甲酰胺(DMF),无水,>99%纯度 | |||
| 重组DNA酶I,无RNA酶,粉末状 | Roche | 10104159001 | |
| DTT | Euromedex | EU0006-B | 用Milli-Q水配制1 M的DTT储备液。 分装为1 mL每管,于-20 °C保存 |
| Econo-Pac层析柱(1.5 × 12 cm) | Biorad | 7321010 | |
| 2 mm电穿孔比色皿 | Ozyme | EP102 | |
| Eppendorf 2510电穿孔仪 | Eppendorf | ||
| 固定角转子Ti45及Ti45离心管 | Beckman | 用于细菌裂解液的离心 | |
| 玻璃注射器(10、25和50 µL),用于荧光实验 | Hamilton | ||
| 玻璃注射器(25、100、250、500和1000 µL),用于处理脂质储备液 | Hamilton | 1702RNR, 1710RNR, 1725RNR, 1750RN type3, 1001RN | |
| 谷胱甘肽Sepharose 4B珠 | GE Healthcare | 17-0756-05 | |
| 甘油(99%纯度) | Sigma | G5516-500ML | |
| 带盖溶血管 | |||
| HEPES,>99%纯度 | Sigma | H3375-500G | |
| Illustra NAP 10脱盐柱 | GE healthcare | GE17-0854-02 | |
| 异丙基-β-D-硫代半乳糖苷(IPTG) | Euromedex | EU0008-B | 用Milli-Q水配制1 M的IPTG储备液。分装为1 mL每管,于-20 °C保存 |
| 乙酸钾(K-Acetate) | Prolabo | 26664.293 | |
| 不含葡萄糖的Lennox LB培养基 | 用Milli-Q水配制并高压灭菌 | ||
| 液氮 | Linde | ||
| 甲醇(MeOH)≥99.8% | VWR | 20847.24 | |
| MgCl2 | Sigma | 配制2 M的MgCl2溶液,用0.45 µm滤膜过滤 | |
| 96孔黑色非结合型聚苯乙烯微孔板 | Greiner Bio-one | 655900 | |
| Mini-Extruder,配有两个1 mL气密型Hamilton注射器 | Avanti Polar Lipids | 610023 | |
| 基于单色仪的荧光酶标仪 | TECAN | M1000 Pro | |
| N,N'-二甲基-N-(碘乙酰基)-N'-(7-硝基苯并-2-氧杂-1,3-二唑-4-基)乙二胺(IANBD酰胺) | Molecular Probes | 将25 mg IANBD溶于2.5 mL二甲基亚砜(DMSO)中,分装为25管,每管100 µL,置于1.5 mL螺口管中。盖子不要完全拧紧。然后用冻干机除去DMSO,每管得到1 mg干燥的IANBD。将管子密封后避光保存于-20 °C | |
| NaCl | Sigma | S3014-1KG | |
| PBS | 137 mM NaCl,2.7 mM KCl,10 mM NaH2PO4,1.8 mM KH2PO4,高压灭菌后于4 °C保存 | ||
| 梨形玻璃烧瓶(25 mL,14/23,Duran玻璃) | Duran Group | ||
| 胃蛋白酶抑制剂(Pepstatin) | Sigma | p5318-25mg | |
| pGEX-C2LACT 质粒 | 可向本实验室申请获取 | ||
| pGEX-PHFAPP质粒 | 可向本实验室申请获取 | ||
| 苯甲基磺酰氟(PMSF)≥98.5%(GC) | Sigma | P7626-25g | 用异丙醇配制200 mM的PMSF储备液 |
| 磷酰胺(Phosphoramidon) | Sigma | R7385-10mg | |
| 聚碳酸酯滤膜(直径19 mm),孔径0.2 µm | Avanti Polar Lipids | 610006 | |
| Poly-Prep层析柱(床体积0–2 mL,带10 mL储液槽) | Biorad | 7311550 | |
| 预滤器(直径10 mm) | Avanti Polar Lipids | 610014 | |
| PyMOL | http://pymol.org/ | 构建蛋白质的三维模型(图1A) | |
| 用于紫外/可见光荧光检测的石英比色皿(最小体积600 µL) | Helma | ||
| 石英比色皿 | Helma | ||
| 冷冻离心机 Eppendorf 5427R | Eppendorf | ||
| 旋转蒸发仪 | Buchi | B-100 | |
| 螺口微量离心管(1.5 mL) | Sarsted | ||
| 小型聚四氟乙烯(PTFE)磁力搅拌子(5 × 2 mm) | |||
| 快封微量离心管(0.5、1和2 mL) | Eppendorf | ||
| SYPRO Orange | 用于SDS-PAGE凝胶中蛋白质的荧光染色 | ||
| 恒温混匀仪(Thermomixer) | Starlab | ||
| 人血浆凝血酶(THROMBIN, FROM HUMAN PLASMA) | Sigma | 10602400001 | 将20单位溶于1 mL Milli-Q水中,分装为25 µL每管,置于0.5 mL Eppendorf管中。冻干后于-80 °C保存 |
| Tris,超纯 | MP | 819623 | |
| 超速离心机 L90K | Beckman | ||
| 紫外/可见光吸收分光光度计 | SAFAS | ||
| 带温控样品池和搅拌装置的紫外/可见光荧光分光光度计 | Jasco 或 Shimadzu | Jasco FP-8300 或 Shimadzu RF-5301PC | |
| 真空室 | |||
| 水浴锅 | Julabo | ||
| XK 16/70层析柱,填充Sephacryl S200HR | GE healthcare |
参考文献
- Drin, G. Topological regulation of lipid balance in cells. Annual Review of Biochemistry. 83, 51-77 (2014).
- Bigay, J., Antonny, B. Curvature, lipid packing, and electrostatics of membrane organelles: defining cellular territories in determining specificity. Developmental Cell. 23 (5), 886-895 (2012).
- Prinz, W. A. Lipid trafficking sans vesicles: where, why, how. Cell. 143 (6), 870-874 (2010).
- Holthuis, J. C., Menon, A. K. Lipid landscapes and pipelines in membrane homeostasis. Nature. 510 (7503), 48-57 (2014).
- Wong, L. H., Copic, A., Levine, T. P. Advances on the transfer of lipids by lipid transfer proteins. Trends in Biochemical Sciences. 42 (7), 516-530 (2017).
- Wong, L. H., Gatta, A. T., Levine, T. P. Lipid transfer proteins: the lipid commute via shuttles, bridges and tubes. Nature Reviews Molecular Cell Biology. 20 (2), 85-101 (2019).
- Iaea, D. B., Dikiy, I., Kiburu, I., Eliezer, D., Maxfield, F. R. STARD4 membrane interactions and sterol binding. Biochemistry. 54 (30), 4623-4636 (2015).
- Wilhelm, L. P., et al. STARD3 mediates endoplasmic reticulum-to-endosome cholesterol transport at membrane contact sites. The EMBO Journal. 36 (10), 1412-1433 (2017).
- Bian, X., Saheki, Y., De Camilli, P. Ca(2+) releases E-Syt1 autoinhibition to couple ER-plasma membrane tethering with lipid transport. The EMBO Journal. 37 (2), 219-234 (2018).
- Horenkamp, F. A., Valverde, D. P., Nunnari, J., Reinisch, K. M. Molecular basis for sterol transport by StART-like lipid transfer domains. The EMBO Journal. 37 (6), 98002(2018).
- Jentsch, J. A., et al. Structural basis of sterol binding and transport by a yeast StARkin domain. The Journal of Biological Chemistry. 293 (15), 5522-5531 (2018).
- Moser von Filseck, J., et al. INTRACELLULAR TRANSPORT. Phosphatidylserine transport by ORP/Osh proteins is driven by phosphatidylinositol 4-phosphate. Science. 349 (6246), 432-436 (2015).
- Daum, G., et al. Systematic analysis of yeast strains with possible defects in lipid metabolism. Yeast. 15 (7), 601-614 (1999).
- Ejsing, C. S., et al. Global analysis of the yeast lipidome by quantitative shotgun mass spectrometry. Proceedings of the National Academy of Sciences of the United States of America. 106 (7), 2136-2141 (2009).
- Leidl, K., Liebisch, G., Richter, D., Schmitz, G. Mass spectrometric analysis of lipid species of human circulating blood cells. Biochimica et Biophysica Acta. 1781 (10), 655-664 (2008).
- Sampaio, J. L., et al. Membrane lipidome of an epithelial cell line. Proceedings of the National Academy of Sciences of the United States of America. 108 (5), 1903-1907 (2011).
- Vance, J. E., Steenbergen, R. Metabolism and functions of phosphatidylserine. Progress in Lipid Research. 44 (4), 207-234 (2005).
- Zinser, E., et al. Phospholipid synthesis and lipid composition of subcellular membranes in the unicellular eukaryote Saccharomyces cerevisiae. Journal of Bacteriology. 173 (6), 2026-2034 (1991).
- Leventis, P. A., Grinstein, S. The distribution and function of phosphatidylserine in cellular membranes. Annual Review of Biophysics. 39, 407-427 (2010).
- Yeung, T., et al. Membrane phosphatidylserine regulates surface charge and protein localization. Science. 319 (5860), 210-213 (2008).
- Kim, J., Shishido, T., Jiang, X., Aderem, A., McLaughlin, S. Phosphorylation, high ionic strength, and calmodulin reverse the binding of MARCKS to phospholipid vesicles. Journal of Biological Chemistry. 269 (45), 28214-28219 (1994).
- Sigal, C. T., Zhou, W., Buser, C. A., McLaughlin, S., Resh, M. D. Amino-terminal basic residues of Src mediate membrane binding through electrostatic interaction with acidic phospholipids. Proceedings of the National Academy of Sciences. 91 (25), 12253-12257 (1994).
- Gal Bivona, T., et al. PKC regulates a farnesyl-electrostatic switch on K-Ras that promotes its association with Bcl-XL on mitochondria and induces apoptosis. Molecular Cell. 21 (4), 481-493 (2006).
- Finkielstein, C. V., Overduin, M., Capelluto, D. G. Cell migration and signaling specificity is determined by the phosphatidylserine recognition motif of Rac1. The Journal of Biological Chemistry. 281 (37), 27317-27326 (2006).
- Bolsover, S. R., Gomez-Fernandez, J. C., Corbalan-Garcia, S. Role of the Ca2+/Phosphatidylserine Binding Region of the C2 Domain in the Translocation of Protein Kinase Cα to the Plasma Membrane. Journal of Biological Chemistry. 278 (12), 10282-10290 (2003).
- Vance, J. E., Tasseva, G. Formation and function of phosphatidylserine and phosphatidylethanolamine in mammalian cells. Biochimica et Biophysica Acta. 1831 (3), 543-554 (2013).
- Maeda, K., et al. Interactome map uncovers phosphatidylserine transport by oxysterol-binding proteins. Nature. 501 (7466), 257-261 (2013).
- D'Ambrosio, J. M., et al. Osh6 requires Ist2 for localization to ER-PM contacts and efficient phosphatidylserine transport in budding yeast. Journal of Cell Science. 133 (11), 243733(2020).
- Manford, A. G., Stefan, C. J., Yuan, H. L., Macgurn, J. A., Emr, S. D. ER-to-plasma membrane tethering proteins regulate cell signaling and ER morphology. Developmental Cell. 23 (6), 1129-1140 (2012).
- Collado, J., et al. Tricalbin-mediated contact sites control ER curvature to maintain plasma membrane integrity. Developmental Cell. 51 (4), 476-487 (2019).
- Hoffmann, P. C., et al. Tricalbins contribute to cellular lipid flux and form curved ER-PM contacts that are bridged by rod-shaped structures. Developmental Cell. 51 (4), 488-502 (2019).
- Lipp, N. F., et al. An electrostatic switching mechanism to control the lipid transfer activity of Osh6p. Nature Communications. 10 (1), 3926(2019).
- Chung, J., et al. INTRACELLULAR TRANSPORT. PI4P/phosphatidylserine countertransport at ORP5- and ORP8-mediated ER-plasma membrane contacts. Science. 349 (6246), 428-432 (2015).
- Sohn, M., et al. PI(4,5)P2 controls plasma membrane PI4P and PS levels via ORP5/8 recruitment to ER-PM contact sites. The Journal of Cell Biology. 217 (5), 1797-1813 (2018).
- Ghai, R., et al. ORP5 and ORP8 bind phosphatidylinositol-4, 5-biphosphate (PtdIns(4,5)P 2) and regulate its level at the plasma membrane. Nature Communications. 8 (1), 757(2017).
- Sohn, M., et al. Lenz-Majewski mutations in PTDSS1 affect phosphatidylinositol 4-phosphate metabolism at ER-PM and ER-Golgi junctions. Proceedings of the National Academy of Sciences of the United States of America. 113 (16), 4314-4319 (2016).
- Kattan, W. E., et al. Targeting plasma membrane phosphatidylserine content to inhibit oncogenic KRAS function. Life Science Alliance. 2 (5), 00431(2019).
- Du, X., Turner, N., Yang, H. The role of oxysterol-binding protein and its related proteins in cancer. Seminars in Cell & Developmental Biology. 81, 149-153 (2018).
- Galmes, R., et al. ORP5/ORP8 localize to endoplasmic reticulum-mitochondria contacts and are involved in mitochondrial function. EMBO reports. 17 (6), 800-810 (2016).
- Du, X., et al. ORP5 localizes to ER-lipid droplet contacts and regulates the level of PI(4)P on lipid droplets. The Journal of Cell Biology. 219 (1), 201905162(2020).
- Wang, H., et al. ORP2 delivers cholesterol to the plasma membrane in exchange for phosphatidylinositol 4, 5-bisphosphate (PI(4,5)P2). Molecular Cell. 73 (3), 458-473 (2019).
- Kay, J. G., Grinstein, S. Sensing phosphatidylserine in cellular membranes. Sensors (Basel). 11 (2), 1744-1755 (2011).
- Moser von Filseck, J., Vanni, S., Mesmin, B., Antonny, B., Drin, G. A phosphatidylinositol-4-phosphate powered exchange mechanism to create a lipid gradient between membranes. Nature Communications. 6, 6671(2015).
- Wills, R. C., Goulden, B. D., Hammond, G. R. V. Genetically encoded lipid biosensors. Molecular Biology of the Cell. 29 (13), 1526-1532 (2018).
- Raychaudhuri, S., Im, Y. J., Hurley, J. H., Prinz, W. A. Nonvesicular sterol movement from plasma membrane to ER requires oxysterol-binding protein-related proteins and phosphoinositides. The Journal of Cell Biology. 173 (1), 107-119 (2006).
- Lenoir, M., et al. Structural basis of wedging the Golgi membrane by FAPP pleckstrin homology domains. EMBO reports. 11 (4), 279-284 (2010).
- Liu, Y., Kahn, R. A., Prestegard, J. H. Interaction of Fapp1 with Arf1 and PI4P at a membrane surface: an example of coincidence detection. Structure. 22 (3), 421-430 (2014).
- Shao, C., Novakovic, V. A., Head, J. F., Seaton, B. A., Gilbert, G. E. Crystal structure of lactadherin C2 domain at 1.7A resolution with mutational and computational analyses of its membrane-binding motif. The Journal of Biological Chemistry. 283 (11), 7230-7241 (2008).
- Lipp, N. F., Ikhlef, S., Milanini, J., Drin, G. Lipid exchangers: cellular functions and mechanistic links with phosphoinositide metabolism. Frontiers in Cell and Developmental Biology. 8, 663(2020).
- Venditti, R., et al. Molecular determinants of ER-Golgi contacts identified through a new FRET-FLIM system. The Journal of Cell Biology. 218 (3), 1055-1065 (2019).
- Pemberton, J. G., et al. Defining the subcellular distribution and metabolic channeling of phosphatidylinositol. The Journal of Cell Biology. 219 (3), (2020).
- Nakanishi, H., de los Santos, P., Neiman, A. M. Positive and negative regulation of a SNARE protein by control of intracellular localization. Molecular Biology of the Cell. 15 (4), 1802-1815 (2004).
- Maekawa, M., Yang, Y., Fairn, G. D. Perfringolysin O theta toxin as a tool to monitor the distribution and inhomogeneity of cholesterol in cellular membranes. Toxins. 8 (3), 67(2016).
访问受限。请登录或开始试用以查看此内容。
重印与许可
