本文介绍了一种建立多用途斑马鱼眼黑色素瘤原位及异位异种移植模型的实验方案,用于评估原发肿瘤的生长动力学、肿瘤细胞播散、血管外渗以及远端血管周围转移的形成过程,同时可用于研究化学抑制剂对上述过程的影响。
本文内容
摘要
摘要
目前尚无可用于眼黑色素瘤转移的动物模型。缺乏转移性疾病模型极大地阻碍了针对转移性眼黑色素瘤治疗新策略的研究与开发。在本方案中,我们阐述了一种快速且高效的方法,分别通过眼后腔原位移植和血管内异位移植,建立胚胎斑马鱼的眼黑色素瘤原发和播散阶段模型。结合这两种不同的移植策略,我们能够完整地重现癌症的发病过程,即从眼部下方的原发性局部肿瘤生长,发展至尾部的血管周围转移灶形成。这些模型使我们能够在植入前快速、简便地对癌细胞进行特定标记、遗传或化学干预,并可在移植后对宿主施用(小分子)抑制剂以抑制肿瘤发展。
本文描述了利用荧光标记的稳定细胞系建立并定量眼黑色素瘤(结膜黑色素瘤和葡萄膜黑色素瘤)原位及异位移植模型的方法。该实验方案同样适用于来源于患者活检组织或患者来源/PDX来源材料的原代细胞移植(相关论文正在准备中)。移植后数小时内即可对细胞的迁移和增殖进行可视化观察与定量分析。两种肿瘤病灶均便于使用落射荧光显微镜和共聚焦显微镜进行成像。利用这些模型,我们可在实验开始后最短8天内确认或排除化学或遗传抑制策略的有效性,不仅可实现对稳定细胞系的高效筛选,还可开展面向患者的精准医疗导向筛选。
引言
转移性播散被认为是眼黑色素瘤患者死亡的主要原因;目前尚无针对播散性眼黑色素瘤的有效治疗方案1,2。此外,目前尚无能够反映眼黑色素瘤转移性疾病特征的动物模型。为填补这一空白,我们建立了两种不同的斑马鱼模型,分别可模拟原发性肿瘤的形成或转移性播散的早期阶段,从而便于对这些通常难以研究的过程进行分析3。微转移模型可用于分析转移扩散的最后阶段,包括归巢、定植和血管外渗。在此阶段及之后进行基因或化学干预,可能为治疗转移性眼黑色素瘤提供有力的突破口。
斑马鱼幼鱼作为异种移植和同种异体移植受体的应用得益于该物种的内在优势,例如其在发育早期阶段(或对于某些品系而言,整个生命周期)具有光学透明性 casper 突变体4),高繁殖力和 子宫外 受精5脊椎动物之间高度的转录同源性确保了斑马鱼与人类之间核心信号传导机制的保守,因而使研究结果具有高度的可转化潜力 6,尽管由于硬骨鱼类基因组复制事件,遗传学方法有时会受到干扰或变得复杂 7近年来,斑马鱼异种移植模型作为人类疾病的临床前“替身”模型的重要性日益凸显8,从而通过一次斑马鱼实验即可有效获得大量个性化的癌症治疗模型,用于治疗策略的临床前评估 9.
鉴于目前缺乏动物模型以及相应的转移性眼黑色素瘤治疗手段,我们的模型提供了一个快速且简便的转化研究平台,可用于筛选基因改变(肿瘤细胞内在因素)或在临床前阶段开发化学干预策略。在同一模型中,我们能够通过体视荧光显微镜的低倍放大,从整体动物水平上观察并测量癌细胞的生长动力学、移植率/转移潜能以及细胞归巢行为;同时,也可利用中高倍共聚焦显微镜分析,在亚细胞分辨率下解析眼黑色素瘤进展过程中的各个步骤10。
本文中,我们描述了以下全面且详细的实验方案:利用高度优化的慢病毒转导技术生成荧光标记的癌细胞11;随后将这些细胞通过静脉注射和眶后注射(RO)分别移植到受精后2天(dpf)的斑马鱼幼鱼体内,以建立异位和原位模型;继而进行数据采集与分析。尽管这些方法已充分适用于本文所述的应用,但在需要时也可通过改变注射位点或注射时间,对细胞进行后脑腔、肝脏或卵黄囊周围腔隙的移植12,13。
作为概念验证,我们进一步拓展了Pontes等(2018年)的研究结果,在斑马鱼模型中展示了结膜黑色素瘤细胞系对剂量和细胞内在突变特异性反应的表现14。我们通过在转移性和原发性结膜黑色素瘤模型中验证BRAF V600E突变特异性抑制剂维莫非尼的疗效,进一步深化了这些发现。
方案
所有动物实验均经动物实验委员会(Dier Experimenten Commissie, D.E.C.)批准,许可证号为AVD1060020172410。所有动物的饲养和管理均遵循当地指南,并采用标准方案(www.ZFIN.org)。
1. 准备
- 试剂
- 制备养鱼用水:终浓度为 0.6 mg/L 的海盐溶液。
- 制备 5 mg/mL 三卡因(Tricaine)25 倍储备液:将 5 g 三卡因(即氨基苯甲酸乙酯甲磺酸盐,又称 MS-222)粉末、900 mL 去矿质水和 21 mL 1 M Tris(pH 9)混合。调节 pH 至 7,加水定容至 1 L。三卡因可于 4 °C 短期保存(最长六个月),或在避光条件下室温保存一个月。
- 制备 1.5% (w/v) 琼脂糖溶液(溶于养鱼用水):每 100 mL DPBS 中加入 1.5 g 琼脂糖,微波加热至溶解。
- 制备 1% (w/v) 低熔点琼脂糖溶液(溶于养鱼用水):每 100 mL DPBS 中加入 1.5 g 低熔点琼脂糖,微波加热至溶解。
- 制备 2% (w/v) PVP40 储备液(溶于 DPBS):将 1 g PVP40 溶于 50 mL DPBS 中,涡旋混匀,并在 37 °C 下孵育以促进溶解。室温保存。
- 使用 DMSO。DMSO 常用于药物处理中的溶剂,应于 2–8 °C 避光保存。
- 使用 TrypLE,这是一种合成的胰蛋白酶替代物,对细胞损伤较小,可温和地分散强贴壁细胞。
- 制备不含 Mg2+ 和 Ca2+ 的杜氏磷酸盐缓冲液(DPBS),用于洗涤细胞。缺乏 Ca2+ 可通过钙黏蛋白破坏细胞间的黏附作用。
- 准备慢病毒质粒:psPAX2(质粒 #12260)和 pMD2.G(质粒 #12259),由 Didier Trono 惠赠;以及编码 GFP(质粒 #106172)或 tdTomato(质粒 #106173)的转移质粒(Addgene 提供)。
- 使用 LipodD293:一种高效且专为 HEK293T 细胞优化的转染试剂。
- 琼脂糖包被培养皿
注:若使用长期储存的培养皿,在开始注射前应向皿中加入少量养鱼用水(以防止斑马鱼过快脱水)。- 制备 1.5% (w/v) 琼脂糖包被的培养皿(琼脂糖溶于养鱼用水中)。
- 立即使用,或倒置存放于 4 °C。
2. 针头
注意:确保毛细管已在所使用的细丝上完成校准。当更换细丝或毛细管时,需确定毛细管在所用细丝上的拉制参数(参见拉针仪使用手册)。
- 一根玻璃毛细管可制成两根显微注射针。在制备针尖前,需检查拉针仪的灯丝(2.5 mm 盒装灯丝)结构完整性。
- 确保灯丝与毛细管均已校准,以获得相应的斜坡值。若灯丝结构受损(如不均匀、有孔洞、熔化等),应更换灯丝。
- 使用以下程序(针尖编号 #99,加热 = 斜坡 +15,拉力 = 95,速度 = 60,时间 = 90)。将制好的针尖存放于指定的培养皿中(内含黏土或胶带,用于固定针尖)
3. 慢病毒颗粒的制备
注意:为避免浪费时间和资源,可在慢病毒转导前进行快速的成瘤性检测。此步骤旨在确认所用细胞系在斑马鱼模型中具有足够的成瘤能力;为此,可按照 Liverani 等人 2017 年文献15中所述方法,使用 CM-DiI(或类似示踪剂)对细胞进行染色。
- 转染前一天接种HEK 293t细胞,使其转染时融合度约为70%(通常做法是前一天将一整瓶细胞按1:3稀释,接种至相同体积的培养瓶中)。
- 转染当天,共同转染所需的包装质粒psPAX2和表达病毒包膜的质粒pMD2.G,以及编码GFP(质粒#106172)或tdTomato(质粒#106173)的转移质粒。所用质粒的具体用量详见表1。
注意:psPAX2和pMD2.G均由Didier Trono惠赠(Addgene质粒编号分别为#12260和#12259)。
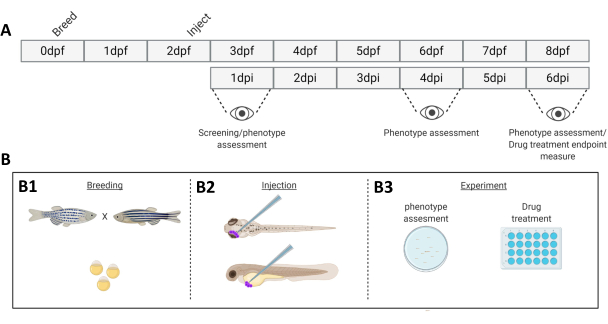
图 1. 所述斑马鱼移植系统的示意图。 A) 实验流程时间线,第 0 天进行斑马鱼繁殖(B1)。在交配后次日早晨收集鱼卵(第 1 天)。48–54 小时后,鱼卵基本孵化(脱膜),清除水中膜碎片后,在第 2 天对鱼体进行注射(眼后静脉或全身注射,B2)。随后使用立体荧光显微镜对幼鱼进行筛选,剔除所有呈现非期望表型的个体(第 3 天)。根据实验目的,可选择对幼鱼进行连续成像观察(B3,移植动力学分析,在注射后 1、4 和 6 天进行成像),或对鱼体进行随机分组,分别给予药物处理并与溶剂对照组比较(药物筛选实验,于注射后 6 天成像)。 请点击此处查看此图的放大版本。
- 将所有质粒混合于500 µL无血清培养基中,以确保所有质粒充分混匀。将32 µL LipoD293试剂加入500 µL无血清DMEM中,涡旋振荡使其充分混合。将两种液体彻底混合,室温孵育20分钟,使质粒与LipoD293形成复合物。
- 将上述转染混合物逐滴加入含有9 mL完全培养基、70%汇合度的HEK293T细胞的75 cm2细胞培养瓶中(培养瓶保持水平放置),使用血清移液管直接将转染混合物加至细胞层表面。
- 转染后16小时,更换为20 mL新鲜的完全DMEM培养基。转染后72小时收集上清液。将病毒上清液分装为每管1 mL,于-80 °C保存。慢病毒上清液在-80 °C条件下至少可稳定保存1年。
4. 慢病毒转导
- 使用可筛选的慢病毒载体进行慢病毒转导前,需先建立筛选剂的杀灭曲线(kill curve)。
- 为建立杀灭曲线,将待转导的细胞系以约10-20%的汇合度接种于12孔板中,并加入筛选剂的浓度梯度(杀灭曲线建议浓度范围:嘌呤霉素 0.5-10 µg/mL,杀结核菌素 1-20 µg/mL,遗传霉素(G418)100-2000 µg/mL,潮霉素 100-2000 µg/mL)。
- 每三天更换一次培养基,以确保所选筛选剂的浓度稳定。
- 在汇合度为20-40%的细胞中,将1 mL慢病毒上清液加入含8 µg/mL 多聚素(polybrene)的9 mL培养基中。可根据需要按相同比例缩小体积。
- 转导后16-24小时更换培养基。必要时可重复前述步骤以增强表型穿透率(可通过检测荧光信号判断是否需要再次转导)。
- 转导后48小时,使用与慢病毒载体中抗性标记相对应的抗生素进行细胞筛选。所用筛选剂浓度应确保在施加筛选剂后7天内完全杀死野生型细胞群体(即允许转导细胞逐步取代野生型细胞)。
- 使用不同感染复数(MOI)的病毒上清液进行转导,以确保转导过程及细胞基因组中引入的遗传改变不会对细胞活力或致瘤性产生负面影响。
5. 斑马鱼的繁育
- 在第0天,即移植癌细胞前2天,于室温下以“家系杂交”方式配对成年斑马鱼(图1)。
- 将斑马鱼饲养罐从饲养系统中取出(饲养系统维持在28.5 °C)。
- 按1:1的雄雌比例将斑马鱼分成每组10条的小型繁殖群,每组放入一个小型繁殖罐中,使用来自饲养系统的水,并置于倾斜的格栅上方(倾斜设计以模拟斑马鱼自然产卵的浅水环境)。
注:由于温度从28.5°C降至室温(25°C),并进入明暗循环的下一个光照阶段,斑马鱼将开始产卵。 - 随后,移除成鱼并转移回其饲养罐中。
- 收集卵子,用卵水通过滤网清洗,将卵子分装至培养皿中,每皿约75–100枚,并在28.5°C条件下培养。
- 收集后约6小时,清除培养皿中死亡或畸形的胚胎。
- 次日早晨更换卵水,并再次清除培养皿中死亡的胚胎。
6. 收集细胞
注意:适当的细胞制备是移植操作的关键,使用过量的细胞有助于后续处理。第三次离心步骤至关重要,因为这将仅保留细胞沉淀,而残留在离心管壁上的 PBS 体积远超最终重悬体积。
- 使用前将细胞培养中用到的所有培养基和溶液在 37 °C 水浴中预热。
- 每 75 cm2 培养瓶加入 2 mL TryplE,或每 25 cm2 培养瓶加入 1 mL,孵育至所有细胞变圆。大多数细胞系需 2–5 分钟即可;对于上皮样细胞或成纤维样细胞,建议孵育 5–10 分钟以实现充分解离(胰蛋白酶消化不足会影响后续操作,并在移植过程中促进细胞聚集)。
- 轻轻敲击培养瓶侧面,使残留细胞脱落。
- 补加完全培养基至原培养体积。用移液管轻柔但彻底地吹打,将细胞团块剪切为单细胞悬液。此过程中避免产生泡沫,因为泡沫提示细胞受到机械剪切损伤。
- 将细胞悬液转移至无菌 15 mL 离心管中,在室温下以 200 × g 离心 5 分钟。吸除上清液,加入 1 mL 无菌 PBS。使用无菌 1000 µL 移液器小心且彻底地重悬细胞。
- 取 20 µL 细胞悬液用于计数,将剩余细胞悬液转移至离心管中,在室温下以 200 × g 离心 4 分钟。
- 关键步骤:彻底去除所有 PBS,以 200 × g 在室温下短时离心 30 秒,再次去除残留 PBS。
- 将细胞用 2% 聚乙烯吡咯烷酮 40(PVP40,2% (w/v) 溶于 DPBS)稀释至 250 个细胞/nL,方法如下:
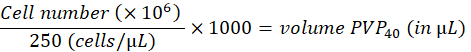
(例如,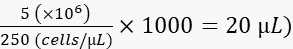
- 充分重悬细胞,同时防止气泡形成(细胞可在 2% PVP40 中保存至少 2 小时而不丧失致瘤潜能)。
7. 异种移植模型构建
所有实验均应遵守当地的动物福利法规。
根据应用的不同,实验设计主要有两种变体:一种是表型评估(7.1 预筛选阶段),另一种是筛选实验,其中要么在移植前对细胞进行过修饰(7.2),要么对胚胎用化学抑制剂进行处理(7.3)。
- 肿瘤发生潜能的预筛选与鉴定
- 在2 dpf时,将不同数量的荧光标记细胞(即200、400、600 ±100)移植到目标斑马鱼幼鱼(WT、转基因或报告基因品系)中。
- 注射后16-24小时筛选幼鱼,剔除异常个体(异位模型中循环细胞数极高或极低者,或原位模型中头部内有细胞者),并移除移植错误的鱼。注明每组实验幼鱼数量,用于实验组间分析,以及对同一批幼鱼进行动力学分析。
- 定期观察斑马鱼幼鱼(注射后1、2、4、6天),从约50条幼鱼中选取20条个体进行成像(如步骤9和10所述)。
- 监测一般表型及疾病进展,随后使用 ImageJ 进行定量分析(测量癌细胞中荧光信号的积分密度)。
- 绘制数据以可视化斑马鱼体内癌细胞的生长动力学图3).
- 预先对细胞进行基因修饰(敲低或敲除目的基因),然后移植到斑马鱼体内。
- 移植鱼类并剔除所有非目标表型(按实验条件分组)。
- 在感染后1天(每组20条幼虫)对个体进行成像。个体可在设定的时间点(感染后1、2、4和6天)进行成像。
- 在成像后第6天,通过过量使用三卡因(0.4 mg/mL浓度的10倍剂量)对斑马鱼实施安乐死,并将其丢弃在漏斗内衬的吸水纸上。
- 移植后对鱼类进行药物处理。
- 在将药物应用于移植斑马鱼之前,需先确定药物在斑马鱼中的最大耐受剂量(MTD)(从 10 µM- 0.150 nM,以最大体积溶剂作为空白对照)时,我们将MTD设定为该浓度 >80%的个体能够存活至治疗结束。
- 注射后一天,去除不需要的表型。
- 将鱼随机分组(每组36-48尾),置于24孔板中,每孔6尾幼鱼,每孔加入1 mL卵水。
- 移植后24小时给予药物。对照组使用实验组中最高给药体积的相同量溶剂(如DMSO、EtOH等)。
- 以最大耐受剂量开始药物处理。每隔一天更换含药物的卵水。每次换液时尽可能完全地移除卵水和死亡的幼虫。
8. 注射
注意:使用连接至压缩空气管路的气动脉冲控制器,提供超过 100 psi 的压力。该压力足以同时满足注射(约 20 psi)和排出可能的细胞聚集体(约 100 psi)的需求。初始压力和时间应设置为约 200 毫秒、20 psi。如果在注射开始时需将任一参数降低超过 50%,则可能是细胞悬液过于稀薄(细胞或 PVP40 浓度过低),或针头开口过大。
- 从容器中小心取出一根毛细玻璃针,使用精细钟表镊子将其折断,形成直径约 20 µm 的开口。
- 使用 20 µL 移液器吸头充分重悬细胞。用长型移液器吸头(microloader)将细胞悬液吸入敞开的玻璃毛细针中,并将针装入显微操作仪。
- 使用移液管将约 20–40 条在 0.04 mg/mL 三卡因中麻醉的幼鱼转移至琼脂糖培养皿中。用移液管吸除多余液体以固定幼鱼。由于卵黄囊仍相对较大,幼鱼大多呈侧向排列。
- 通过居维叶管(doC)向幼鱼注射约 200、400 和 600 个细胞,以建立异位模型。
- 同样地,进行眼后注射(RO),以建立原位模型(注射 100 ± 50 个细胞),需调整微量注射泵的气动脉冲时长(起始设置约为 20 psi,200 ms,根据情况调整)。注射过程中需确保幼鱼不干燥。确保所有(或大部分)幼鱼均完成注射。
- 用新鲜的鱼卵水将已注射的幼鱼冲下,并转移至标记好的洁净培养皿中(每皿最多汇集 150 条个体)。重复此过程,直至完成足够数量的幼鱼注射。
- 移植后,将斑马鱼置于 34 °C 的加湿培养箱中培养。34 °C 是斑马鱼可耐受的最高温度,有利于哺乳动物癌细胞的有效移植。
注:通常情况下,在通过 doC 和 RO 注射单细胞系时,因机械损伤导致的死亡率约为 <5%(机械损伤导致幼鱼在注射后 1–16 小时内死亡)。
9. 筛选
- 使用体视荧光显微镜,在细胞移植后1小时对鱼类进行适当表型的筛选(若比较预先修饰的细胞);若筛选药物,则在移植后1天进行筛选(在随机分配至处理组之前)。
- 通过导管(doC)植入的幼鱼,应在移植后1至16小时内于尾部观察到细胞。将所有其他鱼类(包括出现异常的个体)从注射群体中剔除。
注意:通过眶后途径植入的幼鱼,其细胞应仅存在于眼部后方的间质中;若细胞扩散至头部或全身,则将该幼鱼从群体中剔除。 - 对筛选阳性的幼鱼进行清洁处理,并随机分配至实验组。
- 移植后,将鱼类置于34 °C的湿化培养箱中维持培养,并每日监测。通过doC植入的细胞其血液播散几乎即时发生,而植入眶后(RO)腔内的细胞则在2–4天后开始发生转移性扩散。
10. 斑马鱼幼体的落射荧光成像
- 用 0.2 mg/mL 三卡因麻醉斑马鱼幼体,可通过将三卡因加入鱼所处的水中,或将部分鱼从培养皿转移至含有 0.2 mg/mL 三卡因的培养皿中实现。
- 将斑马鱼保留在含三卡因的培养皿中,直至其保持静止状态,且刺激侧线不再引发逃避行为。
- 将鱼转移至铺有琼脂糖的培养皿中,每皿约 10 条。通过轻轻抬起培养皿一端的方式去除大部分水(使水缓慢聚集于培养皿较低的一端)。若操作得当,所有鱼将排列整齐,尾部朝下。
- 从培养皿顶部到底部对所有鱼进行成像。然后用胚胎水将鱼冲洗至不含三卡因的培养皿中。
- 重复上述步骤,直至完成足够数量个体的成像。
- 随后将幼体转移回 34 °C 环境继续培养,或在 6 dpi 时通过过量三卡因(即 0.5 mg/mL)处死(孵育 10 分钟后,弃于漏斗内衬的吸水纸上)。
11. (移植后)斑马鱼幼鱼的共聚焦成像
- 按照先前所述方法,使用 0.2 mg/mL 三卡因麻醉斑马鱼。
- 将玻璃底共聚焦培养皿置于体视显微镜下,聚焦于皿底。将 5–10 条幼鱼转移至玻璃底共聚焦培养皿中,并尽可能吸除多余水分。
- 用 42 °C、1% 低熔点琼脂糖(溶于养鱼用水)覆盖幼鱼。确保琼脂糖温度已冷却至至少 42 °C 后再使用;温度过高可能损伤或杀死幼鱼。
- 在体视显微镜下,使用剪短的微量移液器吸头轻轻下压,快速而轻柔地调整幼鱼体位。若需腹面朝上,可用钟表匠镊子的镊尖夹住幼鱼固定位置(避免接触胚胎本身)。
- 在琼脂糖凝固过程中对幼鱼体位进行微调。待幼鱼完全固定后,再转移至共聚焦显微镜进行观察。
12. 设置共聚焦显微镜
- 打开绿色(488 nm)和红色(564 nm)激发激光。将共聚焦培养皿放入共聚焦显微镜的载物台中。使用落射荧光,移动光束使其与第一条鱼对齐(设定 x 和 y)。通过目镜调节焦距,使其与幼鱼的中心重合(设定 z)。
- 将两个荧光通道的增益设为700,激光功率设为1-5%。逐步提高激光功率并降低偏移量,以接近完整的动态范围。信号不可过度饱和,但应增强至仅显示少量饱和像素为止。
- 在进行图像拼接时,沿一个轴(x 或 y)设定幼鱼的起始和终止位置。若沿单一轴设定,整个胚胎可被分为1×4个区域进行成像,并可通过ImageJ后期处理合并为一幅完整图像。
- 成像完成后,使用钟表匠镊子轻轻撕开包裹幼鱼周围的琼脂糖以取出幼鱼。否则,可通过加入未稀释的三卡因过量溶液,覆盖琼脂糖表面,并孵育10分钟,对幼鱼实施安乐死。
13. 数据分析
- 分别在 ImageJ/Fiji 中打开各个数据集(即对照组、药物 A、药物 B、药物 A+B),首先从溶剂对照组开始。
- 打开分析宏(提供注释脚本)(http://doi.org/10.5281/zenodo.4290225)。
- 简要而言,该宏分析执行以下操作:将所有已打开的图像(一个条件)进行拼接;将图像拆分为构成图像的各个独立通道;关闭所有辅助通道(仅保留癌细胞通道);对整个拼接序列运行阈值化算法;测量每张单独图像的积分密度;并将测量结果保存为根文件夹中的 Excel 表格。
- 对所有条件运行该宏分析。
- 合并测量数据(通常至少 n=2*20),并使用 GraphPad Prism v8 中的 Q 检验去除异常值。
- 将测量值归一化至溶剂对照组或第 1 天数据(根据实验类型而定,前者适用于药物抑制实验,后者适用于生长动力学实验)。将测量结果表示为归一化的癌细胞负荷(y 轴)随时间或条件(x 轴)的变化,如 图 3 和 图 4 所示。
结果
我们提供了从一种新的细胞系到其分析的快速简便方法的逐步说明。首先,使用慢病毒过表达载体过表达荧光示踪剂(步骤3和4)。接着进行细胞制备,以确保注射时死体积最小,从而能够向颅内和眶后腔注射高数量的细胞(步骤6和7)。随后,采用体视荧光显微镜和更高倍率的共聚焦显微镜进行半高通量数据采集,以定性分析全身体内的癌细胞扩散情况(图2 及步骤10、11和12)。在数据采集过程中需格外注意,为确保体视显微镜和共聚焦显微镜成像的可重复性,文中明确了通用设置和标准化流程(步骤11和12)。同时讨论了使用ImageJ/Fiji进行数据分析的方法16,以及利用ImageJ宏实现标准化的过程(步骤13)。
在步骤3中,我们提到了对(癌)细胞进行瞬时标记,以快速预筛,评估新癌细胞系的致瘤潜能。一个重要的注意事项是,尽管此处描述的瞬时染色方法使用简便且染色持续时间长,但有可能产生伪影(例如,必须注意区分细胞碎片与完整细胞,Fior及其同事已对此进行了广泛研究9)。根据我们的经验,这些伪影的形成与染料的极高稳定性及亮度(即使在细胞死亡后仍保持荧光)直接相关,细胞碎片可能扩散并被免疫细胞摄取,从而可能导致错误地推断为存在活跃的转移。
在上述两种模型中,无论是通过尾静脉(doC)进行的全身移植,还是在眶后区域进行的局部移植,注射后一天对幼鱼进行彻底筛选都至关重要。如图2B所示,在眶后移植模型中,若幼鱼出现移植细胞机械性移位至头部区域(超出眶后部位)或细胞出现在卵黄囊中,或在尾静脉注射组中出现水肿现象,均应剔除。所有被剔除的异常表型均已在图2中以高分辨率共聚焦拼接图像展示,但这些异常个体亦可通过体视显微镜观察直接识别并剔除。
随着时间推移,细胞会同时发生迁移和增殖。在眶后模型中,我们观察到CRMM1细胞向邻近组织浸润,而CRMM2细胞的增殖程度较低。值得注意的是,在部分个体(20%)中,我们在2至4天之间观察到远处转移的发生;如图4所示,在6 dpi时我们检测到显著差异。对于这两种细胞系,我们均测试了其在两个注射位点的增殖潜能。以标准化肿瘤细胞负荷(将各模型第1天的数据设为基准进行归一化)表示时,CRMM1在注射位点的癌细胞数量均出现显著增加(p<0.0001),其中眶后模型增加7.8倍(±3.2),尾部造血组织(doC)模型增加15倍(±8.8)。CRMM2在归一化至各模型第1天后未表现出显著生长(眶后模型增加2.4倍,±1.9;doC模型增加2.3倍,±1.14)。CRMM1在移植后能够在眶后组织和尾部造血组织中迅速增殖。CRMM2在两种模型中的增殖能力均较弱,但有趣的是,当注射至眶后腔时,该细胞系被发现具有发生远处转移的能力,如图3B、C所示。
在注射后1天对幼鱼进行筛选,并将个体随机分配至处理组或对照组后,对鱼类进行6天的处理,期间更换含有维莫非尼的水(该抑制剂可根据需要替换为任何其他已滴定的抗肿瘤化合物)。我们选择在先前发表的通过移植CRMM1建立的血源性结膜黑色素瘤扩散模型14基础上,进一步验证维莫非尼对原位移植CRMM1模型的治疗效果。结果显示,异位移植组中经维莫非尼处理的CRMM1肿瘤表现出显著且强烈的抑制作用(P<0.0001),而原位移植模型也显示出虽受抑制但仍具有统计学意义的响应(p<0.05),如图4所示。
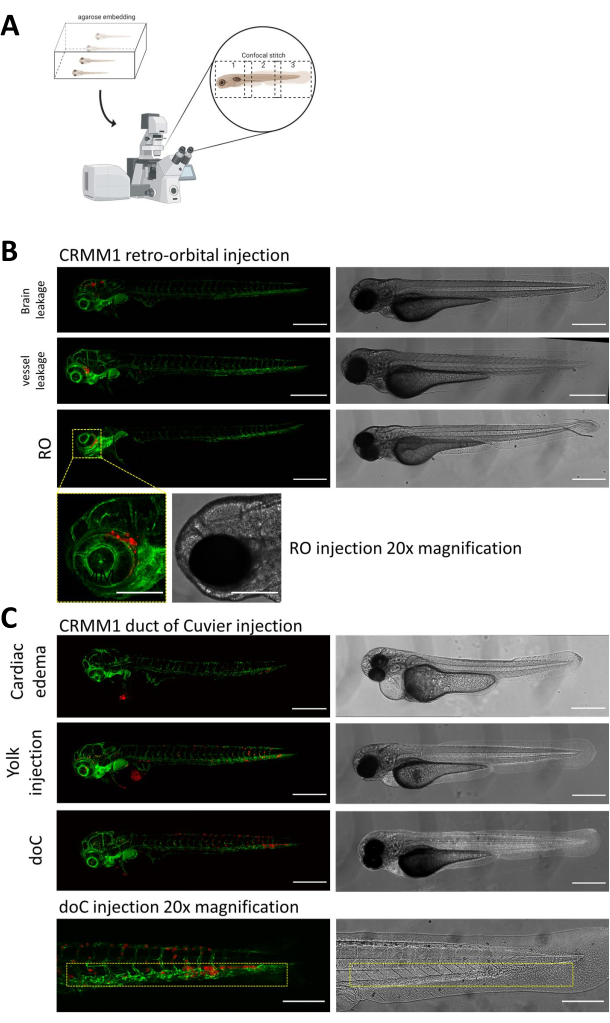
图 2.注射后的表型评估与筛选。A) 斑马鱼异种移植共聚焦图像拼接生成的示意图,通过连续共聚焦投影整合后可获得无缝且高分辨率的图像。此处,斑马鱼异种移植物被包埋于1%低熔点琼脂糖中,并置于玻璃底共聚焦培养皿上(如步骤11.3所述)。B) 显示了在绿色荧光血管报告斑马鱼(TG:fli:GFP)中进行眶后注射和库维管移植后所有可能的结果,细胞通过慢病毒过表达tdTomato进行标记。我们标注了在1 dpi时的正确移植情况(RO图示),以及不希望出现的表型(包括脑部泄漏和血管泄漏)。后两种群体必须被剔除,以确保其不会干扰后续实验结果。C) 经由库维管(doC)进行血源性移植时可能出现的不理想表型包括心脏水肿幼鱼(心脏水肿)以及细胞渗入卵黄囊的幼鱼(卵黄囊注射),这些均需剔除以避免对后续测量造成干扰。正确注射的幼鱼则按步骤7.1所述纳入实验分组。(所有图像均于1 dpi时使用共聚焦显微镜采集,比例尺为200 µm。黄色框分别标示RO和doC移植的转移部位,即头部区域和尾部造血组织)。请点击此处查看该图的放大版本。
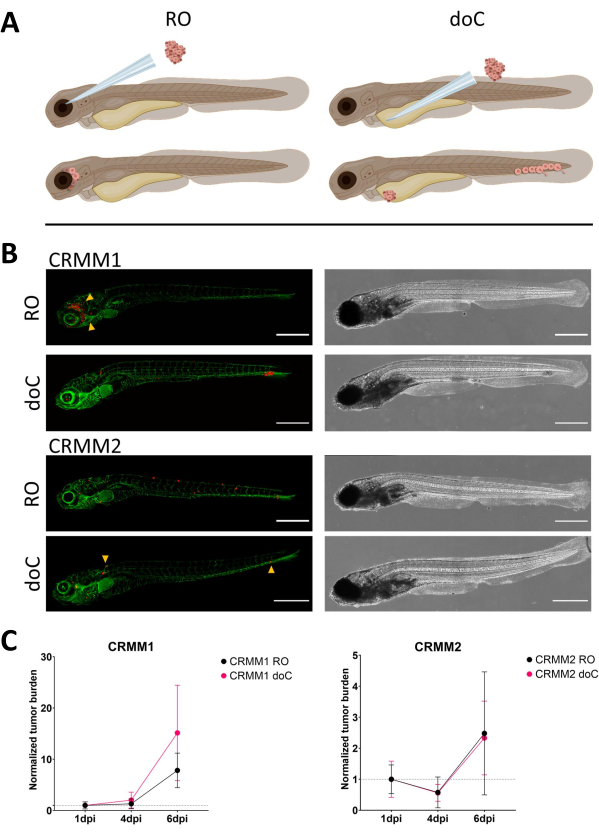
图 3。结膜黑色素瘤细胞系 CRMM1 与 CRMM2 的比较分析显示其转移能力与生长能力存在差异。A) 注射模型示意图,包括眶后注射模型(RO)和血源性移植模型(doC),所用斑马鱼为 TG(fli:GFP) 绿色血管报告鱼,移植细胞高表达红色 tdTomato。 B) 移植 CRMM1 和 CRMM2 细胞的斑马鱼代表性表型。CRMM1 在两种移植模型(RO 和 doC)中均表现出高效的移植效率,并在 RO 移植部位周围组织中出现小范围侵袭(RO,黄色箭头所示)。CRMM2 在两种模型中的移植效率均显著较低,但在眶后注射时可观察到远端转移(如 RO 图中箭头所示)。所有图像均在接种后第 6 天(6 dpi)获取,使用共聚焦显微镜拍摄,比例尺为 200 µm。黄色箭头分别指示 RO 和 doC 移植中的转移灶,位于头部区域和尾部造血组织。 C) CRMM1 和 CRMM2 的动态移植生长曲线,将两种移植模型的数据与第 1 天(归一化至第 1 天)进行比较。CRMM1 细胞系的归一化肿瘤负荷在第 1 天至第 6 天之间显著增加(p<0.0001),而 CRMM2 呈现非显著性上升趋势。CRMM1 在 RO 与 doC 模型间的生长差异显著,其中 doC 模型的肿瘤扩张速率更高(doC 移植幼鱼的肿瘤增长约高出 2 倍)。图表显示均值及均值标准误(SEM)。所有组别均以各自条件下的第 1 天为基准进行归一化处理。 请点击此处查看该图的高清版本。
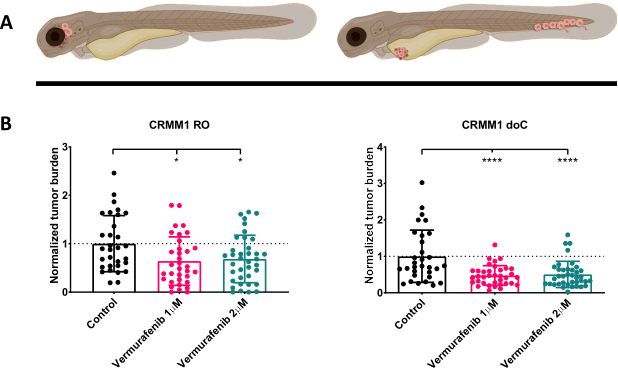
图4.BRAF V600E抑制剂维莫非尼显著抑制眼眶(RO)和结膜下(doC)移植性结膜黑色素瘤斑马鱼幼体模型中的肿瘤生长。 A) 斑马鱼表型示意图,包括RO和doC模型。 B) 移植结膜黑色素瘤细胞系CRMM1的RO与doC幼鱼在给予药物后均表现出归一化肿瘤负荷的显著降低(*p<0.05* 和 *P<0.001*,分别)。其中,doC移植模型显示出更强的药物响应以及与剂量无关的抑制效应关系,提示可能存在抑制效应的饱和现象。图中数据表示均值及标准误(SEM)。所有组别均以各自细胞系的对照组为基准进行归一化处理。 请点击此处查看该图的放大版本。
| 试剂 | 体积 |
| psPAX2 | 1.71 pmol (12.14µg) |
| pMD2.G | 0.94 pmol (3.66µg) |
| 转移质粒* | 1.64 pmol (计算精确体积) |
表1.
讨论
在此,我们建立了一种精细的方法,用于在斑马鱼异种移植模型中模拟原发性和转移性眼黑色素瘤。通过结合局部的原位注射与全身性的异位注射模型,我们成功重现了这种癌症的致癌过程,而此前该癌症尚无可用的动物模型。早期斑马鱼幼体固有的透明特性使得能够在整体动物水平上追踪荧光标记的癌细胞,从而便于直观观察潜在的转移部位17。此外,高倍共聚焦显微镜分析使我们能够在亚细胞水平上追踪细胞10。
我们提供了从一种新的细胞系到建立异种移植模型并进行分析的快速简便方法的逐步说明。首先,使用慢病毒过表达载体对荧光示踪剂进行过表达(步骤3和4),随后进行细胞制备,以确保注射时死体积尽可能小。这使得能够将大量细胞注射至颅内(doC)和眶后腔(步骤7和8)。接着,我们采用体视荧光显微镜和更高倍率的共聚焦显微镜进行半高通量数据采集,以定性分析癌细胞在全身的扩散情况(图2 以及步骤9和10)。在数据采集过程中需格外注意,为确保体视显微镜和共聚焦显微镜成像的可重复性,文中明确了通用设置和标准化操作流程(步骤11和12)。此外,还讨论了使用ImageJ/Fiji进行数据分析的方法16,以及利用ImageJ宏实现标准化的步骤(步骤13)。
在步骤3中,我们提到了对(癌)细胞进行瞬时标记,以快速预筛评估新癌细胞系的成瘤潜能。一个重要的注意事项是,尽管此处描述的瞬时染料使用简便且存留时间长,但有可能产生人工假象(例如,必须注意区分细胞碎片与完整细胞,这一点Fior及其同事已进行了广泛研究9)。根据我们的经验,这些假象的形成与染料极高的稳定性及荧光强度直接相关(即使在细胞死亡后仍保持明亮),导致细胞碎片分散并被免疫细胞摄取,从而可能被错误地解释为活跃的转移来源。
利用这些模型,我们通过将移植的细胞物理限制在眶后间隙内,模拟了原发性肿瘤的发育过程。移植后1天进行的全面筛选可确保后续在远端部位发现的细胞是真正发生了主动转移(即已侵入血管并扩散,最终在转移微环境中穿出血管)。通过胚胎期的主静脉(doC)进行移植,可轻松且高度可重复地植入大量细胞(在适当浓缩时可超过600个细胞),从而有效绕过转移级联的初始阶段(即血管内侵),使我们能够专注于转移级联的后期阶段(黏附、血管外渗及增殖)。尽管这两种模型在正确使用时非常强大,但在移植后的第一天仍需进行严密监测,以确保在实验的后期阶段不会得出假阳性结论。
与以往的研究一致,我们已证明结膜黑色素瘤细胞系在扩散至斑马鱼血液循环系统后,能够迅速形成转移性克隆14。本文报道了采用眼后注射作为原位模型,拓展了移植模型的应用范围,并观察到CRMM2细胞系随后主动转移至尾部造血组织。此外,我们还报道了BRAF V600E特异性抑制剂维莫非尼(Vemurafenib)在斑马鱼幼体模型中对结膜黑色素瘤原发形式同样具有治疗效果。
利用上述方法,熟练的研究人员每天可成功移植数百只幼鱼(每小时约200只),适用于文中提出的任一模型。在两周的时间内,即可完成药物最大耐受剂量的滴定,并在已建立的异种移植模型上进行筛选。从开始到结束,使用非转导的细胞系,在斑马鱼模型中获得药物敏感性谱型可在一个月内完成(前提是所注射的细胞系在斑马鱼模型中具有成瘤性)。在我们的实验中,每次实验仅需20只幼鱼并进行两次生物学重复,即可稳定地获得显著的药物抑制效果;当两次独立实验结果不一致或未产生统计学显著的生长抑制时,可进行第三次生物学重复。
通过微小的调整,这些模型使我们能够快速将这些移植策略应用于胶质母细胞瘤(后脑腔注射)、乳腺癌(doC注射)和骨肉瘤(doC)等多种癌症18,19,20,21。这些模型随后可用于基础研究以及单药和联合用药策略的临床前筛选。最近,我们描述了利用这些模型进行药物的不同给药方案及其光激活方法13。
致谢
本研究工作获得了欧盟“地平线2020”研究与创新计划资助,资助协议号为667787(UM Cure 2020项目,www.umcure2020.org)。谨此感谢中国国家留学基金管理委员会(Chinese Scholarship Council)为J.Y.提供的博士研究生奖学金。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 2.5mm 盒装灯丝 | 科学产品 | FB255B | 用于 Sutter P97 或 P1000 拉制显微注射针 |
| 3mL 移液管 | Merck | Z350796 | 用于斑马鱼胚胎的转移和筛选 |
| 琼脂糖 | Milipore | 2120 | 在卵水中配制成 1.5% (w/v),即 1.5 g 溶于 100 mL DPBS,微波加热溶解,用于斑马鱼幼体的注射和立体荧光成像 |
| 毛细管:外层为硼硅酸盐玻璃 | World Precision Instruments | BF100-78-10 | 用于制备注射针的硼硅酸盐玻璃毛细管 |
| DMSO | Sigma | D8418 | 常用于药物处理中的溶剂,应于 2–8°C 避光保存 |
| DPBS | Thermo Fischer Scientific | 14190144 | Dulbecco’s 磷酸盐缓冲液,不含 Mg²⁺ 和 Ca²⁺,用于细胞洗涤;缺乏 Ca²⁺ 可通过钙黏蛋白破坏细胞间黏附,防止注射过程中细胞聚集 |
| 卵水 | Instant Ocean | SS15-10 | 去离子水中终浓度为 0.6 mg/L 的海盐 |
| 编码 GFP 的慢病毒转移质粒 | Addgene | 质粒 #106172 | 由 Snaar 实验室构建,可在 Addgene 获取 |
| HEK293T | ATCC | CRL-3216 | 用于产生慢病毒颗粒的稳定细胞系,含有生成慢病毒颗粒所需的 SV40-T 抗原 |
| Leica SP8 共聚焦显微镜 | Leica | Leica TCS SP8 | 配备 405/488/514/635 nm 激光器的自动载物台共聚焦显微镜 |
| LipodD293 | Signagen | SL100668 | 高效优化的 HEK293T 转染试剂 |
| 低熔点琼脂糖 | Milipore | 2070 | 在卵水中配制成 1% (w/v),即 1.5 g 溶于 100 mL DPBS,微波加热溶解,用于包埋斑马鱼幼体以进行共聚焦成像 |
| 微量加样头 | Fisher Scientific | 10289651 | 柔性微量加样头 |
| 显微操作器 | World Precision Instruments | M3301R | 用于显微注射的 x/y/z 手动显微操作器 |
| 拉针仪:P-97 或 P-1000 | Sutter | P-97 | 用于制备标准化的显微移植针 |
| 5 号钟表匠镊子 | VWR | HAMMHSC818-11 | 精细钟表匠镊子,用于折断注射针尖端 |
| Picopump | World Precision Instruments | SYS-PV820 | 脉冲压力控制器,为显微注射提供压力 |
| pMD2.G | Addgene | 质粒 #12259 | 由 Didier Trono 惠赠,第二代慢病毒包膜质粒 |
| psPAX2 | Addgene | 质粒 #12260 | 由 Didier Trono 惠赠,第二代慢病毒包装质粒 |
| PVP40 | Sigma-Aldrich | PVP40 | 聚乙烯吡咯烷酮(平均分子量 40,000),在 DPBS 中配制成 2% (w/v),即 1 g PVP40 溶于 50 mL DPBS。涡旋混匀并在 37°C 孵育以促进溶解。室温保存。 |
| 编码 tdTomato 的慢病毒转移质粒 | Addgene | 质粒 #106173 | 由 Snaar 实验室构建,可在 Addgene 获取 |
| 透射光体视显微镜 | Leica | Leica M50 配 (MDG33 底座) | 配备可调镜面照明的 Leica 透射光显微镜 |
| Tricaine | Sigma-Aldrich | E10521 | 3-氨基苯甲酸乙酯甲磺酸盐,又称 MS-222 |
| TryplE | Thermo Fischer Scientific | 12604-01 | 合成型胰蛋白酶替代物,对细胞损伤较小,可温和分散强贴壁细胞。(Thermo-) |
| Willco 培养皿 | WillCo Wells | GWST-5040 | 50 mm 玻璃底培养皿,可容纳最多 20 条斑马鱼幼体,因其大面积光学玻璃表面,可在同一培养皿中实现多种条件的成像 |
参考文献
- Yang, J., Manson, D. K., Marr, B. P., Carvajal, R. D. Treatment of uveal melanoma: where are we now. Therapeutic Advances in Medical Oncology. 10, (2018).
- Wong, J. R., Nanji, A. A., Galor, A., Karp, C. L. Management of conjunctival malignant melanoma: A review and update. Expert Review of Ophthalmology. 9, 185-204 (2014).
- Nguyen, D. X., Bos, P. D., Massagué, J. Metastasis: from dissemination to organ-specific colonization. Nature Reviews Cancer. 9, 274-284 (2009).
- White, R. M., et al. Transparent Adult Zebrafish as a Tool for In Vivo Transplantation Analysis. Cell Stem Cell. 2, 183-189 (2008).
- Zon, L. I., Peterson, R. T. In vivo drug discovery in the zebrafish. Nature Reviews Drug Discovery. 4, 35-44 (2005).
- Howe, K., et al. The zebrafish reference genome sequence and its relationship to the human genome. Nature. 496, 498-503 (2013).
- Palmblad, M., et al. Parallel deep transcriptome and proteome analysis of zebrafish larvae. BMC Research Notes. 6, 428(2013).
- Yan, C., et al. Visualizing Engrafted Human Cancer and Therapy Responses in Immunodeficient Zebrafish. Cell. 177, 1903-1914 (2019).
- Fior, R., et al. Single-cell functional and chemosensitive profiling of combinatorial colorectal therapy in zebrafish xenografts. Proceedings of the National Academy of Sciences of the United States of America. 114, 8234-8243 (2017).
- Campbell, P. D., Chao, J. A., Singer, R. H., Marlow, F. L. Dynamic visualization of transcription and RNA subcellular localization in zebrafish. Development. 142, Cambridge. 1368-1374 (2015).
- Campeau, E., et al. A Versatile Viral System for Expression and Depletion of Proteins in Mammalian Cells. PLoS One. 4, 6529(2009).
- vander Helm, D., et al. Mesenchymal stromal cells prevent progression of liver fibrosis in a novel zebrafish embryo model. Scientific Reports. 8, 16005(2018).
- Chen, Q., et al. TLD1433 photosensitizer inhibits conjunctival melanoma cells in zebrafish ectopic and orthotopic tumour models. Cancers. 12, (2020).
- Pontes, K. C. deS., et al. Evaluation of ( fli:GFP ) Casper Zebrafish Embryos as a Model for Human Conjunctival Melanoma. Investigative Opthalmology & Visual Science. 58, 6065(2017).
- Liverani, C., et al. Innovative approaches to establish and characterize primary cultures: an ex vivo 3D system and the zebrafish model. Biology Open. 6, 133-140 (2017).
- Schindelin, J., et al. Fiji: an open-source platform for biological-image analysis. Nature Methods. 9, 676-682 (2012).
- White, R. M., et al. Transparent Adult Zebrafish as a Tool for In Vivo Transplantation Analysis. Cell Stem Cell. 2, 183-189 (2008).
- Mercatali, L., et al. Development of a patient-derived xenograft (PDX) of breast cancer bone metastasis in a Zebrafish model. International Journal of Molecular Sciences. 17, (2016).
- Tulotta, C., et al. Imaging cancer angiogenesis and metastasis in a zebrafish embryo model. Advances in Experimental Medicine and Biology. 916, Springer New York LLC. 239-263 (2016).
- Paauwe, M., et al. Endoglin expression on cancer-associated fibroblasts regulates invasion and stimulates colorectal cancer metastasis. Clinical Cancer Research. 24, 6331-6344 (2018).
- Cao, J., et al. Overexpression of EZH2 in conjunctival melanoma offers a new therapeutic target. Journal of Pathology. 245, (2018).
重印与许可
本文已发表
视频即将推出