在本实验方案中,我们介绍了基于活细胞显微镜技术的细胞铺展实验的操作步骤。我们提供了一个开源的计算工具,用于对荧光标记的细胞进行无偏分割,并对细胞铺展过程中的片状伪足动态进行定量分析。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
细胞铺展是一个动态过程,指悬浮在培养基中的细胞附着于基质后,从圆球状逐渐变平,形成扁平且伸展的形态。在细胞与基质附着之后,细胞会从胞体向外延伸形成一层薄的片状伪足。在片状伪足中,球状肌动蛋白(G-actin)单体聚合形成致密的丝状肌动蛋白(F-actin)网状结构,该结构对细胞质膜产生推力,从而为细胞铺展提供所需的机械力。值得注意的是,调控片状伪足中肌动蛋白聚合的分子因子在许多其他细胞过程中也发挥关键作用,例如细胞迁移和内吞作用。
由于铺展细胞会形成跨越整个细胞周边并持续向外扩展的片状伪足,细胞铺展实验已成为评估片状伪足突出动力学的有效工具。尽管已有多种细胞铺展实验的技术实现方法被开发出来,但目前仍缺乏对实验流程的详细描述,尤其是包含逐步操作方案及用于数据分析的计算工具的完整流程。本文中,我们详细描述了细胞铺展实验的操作步骤,并提供了一个开源工具,用于对细胞铺展过程中细胞边缘动态进行定量且无偏倚的分析。当该方案与药理学干预和/或基因沉默技术相结合时,适用于大规模筛选调控片状伪足突出的分子因子。
引言
片状伪足是迁移细胞前端形成的显著细胞骨架结构。在片状伪足中,肌动蛋白在Arp2/3复合物和formins 的协助下发生聚合,形成快速生长的分支状肌动蛋白网络,该网络对质膜产生推力1,2。这种由肌动蛋白网络产生的推力在物理上推动细胞向前移动1,3,4,5。Arp2/3复合物的缺失或对片状伪足形成至关重要的信号通路的破坏,通常会损害细胞迁移能力6, 7。尽管也有报道显示缺乏片状伪足的细胞仍可迁移8,9,但片状伪足在细胞迁移中的重要性是明确的,因为缺失这一突出结构会干扰细胞在 复杂的生物微环境中移动的能力6,10。
研究迁移细胞中片状伪足调控机制的主要障碍在于片状伪足突出动力学、大小和形状存在天然变异性11,12,13,14。此外,近期研究表明,片状伪足表现出复杂的突出行为,包括波动性、周期性和加速性突出14,15。与迁移细胞中高度可变的片状伪足相比6,16,细胞铺展过程中形成的片状伪足更为均一12。由于铺展细胞与迁移细胞的突出活动均由相同的大型分子复合物驱动,这些复合物包括分支状肌动蛋白网络、收缩性肌动蛋白-肌球蛋白束以及基于整合素的细胞-基质黏附结构17,18,因此铺展细胞被广泛用作研究片状伪足动态调控的模型。
细胞铺展是一个动态的力化学过程,悬浮状态的细胞首先通过整合素介导的黏附作用附着于基质表面17,19,20,随后通过延伸由肌动蛋白驱动的突起而铺展开来21,22,23。在铺展阶段,从细胞体发出的片状伪足呈各向同性且持续地向外延伸,几乎不发生回缩或停滞现象12。目前最常用的细胞铺展实验方案是终点法检测,即在接种后不同时间点固定正在铺展的细胞19,24。这类方法虽然快速简便,但在检测片状伪足动态特征变化方面的诊断能力有限。为了揭示调控片状伪足动态行为的分子机制,Sheetz 研究组率先采用对活细胞铺展过程进行定量分析的方法,发现了细胞边缘突起的诸多基本特性11,12,22。这些研究证明,活细胞铺展实验是细胞生物学实验室中一种稳健且强大的技术手段。然而,目前细胞生物学领域尚缺乏详细的活细胞铺展实验操作流程以及开源的计算分析工具。为此,本实验方案详细描述了活细胞铺展过程的成像步骤,并提供了一套自动化的图像分析工具。为验证该方法的有效性,我们采用抑制 Arp2/3 复合物活性作为实验处理,结果表明,抑制 Arp2/3 复合物功能并不会完全阻断细胞铺展,但会显著降低细胞突起的推进速度以及细胞边缘突起的稳定性,导致细胞边缘呈现锯齿状形态。这些数据表明,结合活细胞成像与自动化图像分析,是研究细胞边缘动态行为及鉴定调控片状伪足分子组分的有效手段。
访问受限。请登录或开始试用以查看此内容。
方案
1. 细胞接种
注意:所述的细胞铺展实验方案使用表达 PH-Akt-GFP(PIP3/PI(3,4)P2 的荧光标记物)的小鼠胚胎成纤维细胞(MEFs)进行。该细胞系通过 CRISPR 介导的基因编辑,将 PH-Akt-GFP 表达载体(Addgene #21218)在基因组中稳定整合而获得。然而,本实验也可使用其他瞬时表达或基因组整合的荧光标记物。为了获得最佳的图像分割效果,我们推荐使用在细胞质中均匀分布的荧光标记物,例如,胞质 GFP。
- 将细胞培养至10 cm培养皿中,达到90%汇合度。
- 当细胞达到合适的汇合度后,将一块22 mm × 22 mm的盖玻片(#1.5;厚度0.17 mm)放入35 mm细胞培养皿中。用400 µL已用PBS稀释至终浓度为2.5 µg/mL的纤连蛋白溶液包被盖玻片。
注意:实验所需盖玻片的数量由实验条件数量和技术重复次数决定。 - 将含有纤连蛋白包被盖玻片的35 mm培养皿置于37 °C、5% CO2的培养箱中孵育1小时。
- 从培养箱中取出含盖玻片的培养皿。吸除纤连蛋白溶液,并通过轻轻吹打PBS清洗盖玻片周围2至3次。
- 吸除10 cm培养皿中的细胞培养基,并用PBS洗涤培养皿。
- 向90%汇合的细胞培养皿中加入650 µL 0.05%胰蛋白酶-EDTA溶液,倾斜培养皿使酶液均匀分布。将含胰蛋白酶的培养皿放入培养箱中孵育1分钟。
- 从培养箱中取出含细胞的培养皿。向15 mL离心管中加入10 mL细胞培养基。迅速向培养皿中再加入10 mL培养基以终止胰蛋白酶反应。
- 用移液器将1 mL经胰蛋白酶处理的细胞悬液转移至15 mL离心管中,以稀释细胞。上下吹打管内液体,确保细胞在培养基中均匀分布。对于易发生聚集的细胞类型,建议通过细胞筛网(100 µm孔径)过滤,以减少细胞团块的形成。
- 从离心管中吸取500–1000 µL稀释后的细胞悬液,加入含有盖玻片的35 mm培养皿中。
- 轻轻摇动培养皿,使细胞均匀分布。确保盖玻片上的细胞汇合度约为10%(约50,000个细胞/mL),并根据需要调整稀释细胞的加入体积。
注意:设置如此低的细胞汇合度是为了保证在每个视野中存在1–2个极化良好的细胞,以便在整个细胞铺展成像过程中用于物镜聚焦。 - 将10 cm培养皿中剩余细胞的1/5传代至每个处理条件对应的6 cm培养皿中。将传代后的培养皿以及含盖玻片的35 mm培养皿一同放入培养箱中过夜培养。
注意:这些细胞将用于分析细胞铺展动力学。
2. 药物孵育与细胞复苏
- 向两个15 mL离心管中各加入5 mL细胞培养基,向两个50 mL离心管中各加入20 mL酚红-free DMEM。
注意:离心管对(15 mL + 50 mL)的数量应与实验条件的数量相对应。 - 为检测Arp2/3在细胞铺展中的重要性,将Arp2/3的药理学抑制剂CK-666或对照处理(如DMSO)用移液器加入每对离心管中,直至达到所需浓度。
- 从培养箱中取出传代的6 cm培养皿(见步骤1.11),吸除培养基,并用预热的PBS洗涤培养皿。
- 将含有CK-666或DMSO的15 mL离心管中的内容物分别加入对应的传代培养皿中。根据所加药物处理对每个培养皿进行标记,并将培养皿放回培养箱中孵育1小时。
- 从培养箱中取出培养皿,吸除培养基,并用预热的PBS洗涤培养皿,以彻底清除残留的含酚红培养基。
- 向每个6 cm培养皿中加入230 µL 0.05%胰蛋白酶-EDTA,细胞孵育1分钟。
注意:如适用,可用非蛋白水解性细胞粘附阻断剂替代胰蛋白酶。 - 从培养箱中取出培养皿。对于每种处理,将含药物的酚红-free DMEM 5 mL加入标记为“Tube B”的15 mL离心管中。再向相应培养皿中加入额外5 mL相同培养基以中和胰蛋白酶。将培养皿中的内容物转移至标记为“Tube A”的15 mL离心管中。
- 将1 mL细胞悬液从Tube A转移至Tube B。每种处理均重复此操作。
- 将Tube A和Tube B放入培养箱中孵育45分钟,使细胞从胰蛋白酶消化中恢复。在将离心管放入培养箱前,略微松开管盖,以允许CO2进入。
注意:不同细胞类型的恢复时间可能有所不同。尽管在我们的实验中,45分钟的恢复时间对细胞活力影响可忽略不计,但某些细胞类型在悬浮状态下维持过久可能发生失巢凋亡。因此,建议通过实验确定最佳恢复时间。最佳恢复时间应能实现细胞快速且同步地铺展,且样品中无死亡或凋亡细胞。
3. 磁性室制备
- 使用前,确保所有可容纳 22 mm × 22 mm 方形盖玻片的 1 Well Chamlide 细胞磁力腔各部件均已清洁。
- 从培养箱中取出带有盖玻片的 35 mm 培养皿(参见步骤 1.11)。吸除细胞培养基,并用预热的 PBS 清洗盖玻片。
- 用镊子将盖玻片从 35 mm 培养皿中取出,轻轻将其放置于磁力腔的底板上。
- 将硅胶垫圈置于盖玻片上方。
注意:硅胶垫圈放置不当是导致磁力腔泄漏的最常见原因。请确保垫圈完全嵌入底板的凹槽内,不得高于凹槽边缘。 - 将主体部分安装到底板上。
注意:此步骤应缓慢操作。建议用一只手按住底板,同时将主体部分放置其上。此举可防止主体部分的磁铁吸起底板,从而避免盖玻片发生位移或破裂。 - 向磁力腔中加入 1 mL 含药物的酚红-free DMEM 培养基。取一片无尘纸,仔细擦拭主体与底板之间的连接处,检查是否存在泄漏。
注意:若发现泄漏,应立即吸除培养基,并从步骤 3.4 重新开始操作。 - 将透明盖板轻轻盖在主体部分上,以封闭磁力腔。
- 先用喷有水的实验用纸巾擦拭磁力腔底部(仅限盖玻片部分,避免接触金属部分),随后再用另一张喷有少量 70% 乙醇的实验用纸巾进行擦拭,注意操作轻柔,避免压裂盖玻片。
4. 图像采集
- 将载物台培养箱和物镜加热器预热至 37 °C 并设置 CO2 将台式培养箱中的水平调节至5%。
注意:如果台式培养箱未连接到 CO2 供应时,细胞培养基应补充 25 mM HEPES 以维持恒定的 pH 7.4。 - 在预热的60X、1.4 N.A.油镜物镜上滴加足量的镜油。
注意:本实验方案中采用 60 倍、1.4 数值孔径(N.A.)的油浸物镜,因其具有相对较大的视野和优异的光收集效率。若需要更大的视野,可使用较低放大倍数的物镜(例如,20x)可用于成像,只要图像的信噪比大于2.5。 - 将组装好的磁力装置和B管(步骤2.9)转移至共聚焦显微镜处。将磁力装置放置于载物台顶部培养箱上。
注意:将磁力腔室轻柔地放置在载物台上,以避免在浸油中产生气泡。 - 使用GFP通道将焦点对准荧光细胞。确保细胞边缘清晰且轮廓分明。
- 移除磁力架的透明盖,用移液器吸液 500 µL 将B管中的液体转移至磁力架腔室中。将透明盖板重新放回磁力架腔室顶部。
- 为了确定适合进行细胞铺展分析的细胞,需寻找 "晕圈" 尚未贴壁但已停止滚动的细胞是理想的观察对象。处于盖玻片贴壁最初阶段的细胞也同样适合,但必须迅速进行图像采集,以捕捉细胞铺展过程。
- 为绿色荧光通道设置延时成像,包含四个视野,以6秒间隔进行图像采集。
注意:由于不同细胞类型的片状伪足 protrusion 速度存在高度变异性,最佳成像帧率应通过实验经验确定。我们实验中采用的 6 秒成像间隔对于分析多种间充质细胞和上皮细胞而言是一个良好的起点。然而,对于铺展速度非常快的细胞(例如,免疫细胞)可能需要更高的帧率(更短的成像时间间隔)。用于细胞铺展动态成像的最优帧率应确保相邻帧之间细胞边缘突出部分产生2-5像素的位移。考虑到用于识别细胞铺展平台期的曲线拟合的准确性,最优帧率还应确保在细胞快速扩展阶段对细胞边缘位移进行50-100次测量。视野数量应根据曝光时间、采集点之间的距离以及载物台移动速度进行调整。建议用户确定在目标帧率下可采集的最大视野数量。 - 在找到合适的视野后,保存显微镜载物台的X和Y坐标。继续在盖玻片上寻找另外三个彼此相对靠近的视野。为每个目标视野保存显微镜载物台的坐标。
注意:强烈建议优化视野之间的载物台移动路径,以尽量减少不必要的样本移动。此类优化可手动或自动进行。过度的样本移动会减慢图像采集速度,并可能导致细胞在下降过程中滚出视野。 - 以每6秒一帧的速率采集图像15分钟,并保存文件。如需进行更多采集,请从步骤4.6开始重复操作。
5. 细胞铺展过程中细胞面积、圆度和突起动态的分析
- 准备用于数据处理和分析的图像
注意:该软件需要输入参数为 .tiff 格式的图像和像素尺寸。这两个要求可通过采集软件或 Fiji(本方案中使用)实现。若已满足这些要求,请继续执行步骤 5.2。- 安装最新版本的 Fiji 应用程序(https://imagej.net/Fiji/Downloads)。
- 使用 Fiji 打开一个延时图像。
- 通过选择 图像 > 属性 复制图像的像素尺寸。将像素尺寸(单位为 µm)复制并粘贴到记事本/Word 中。
- 为分析细胞铺展面积和圆形度,将延时图像保存为 tiff 图像堆栈。自定义构建的分析软件不支持专有文件格式。通过选择 文件 > 另存为 > Tiff 保存单个细胞的 tiff 图像堆栈。
- 安装用于数据处理和分析的 Python 集成开发环境(Spyder)及必要的软件包(PySimpleGUI 和 tifffile)。
注意:Python 及相关软件包的安装仅在初始设置时需要。- 延时图像序列将在 Spyder 集成开发环境中使用自定义编写的 Python 脚本进行分析。要下载 Spyder IDE,请下载 Anaconda 发行版(https://www.anaconda.com/products/individual),其中包含 Spyder IDE 以及本分析所需的大多数必要库和软件包。
- 安装 Anaconda 并通过 Anaconda Navigator 启动 Spyder。
- 在 IPython 控制台标签页(位于 Spyder 右下区域)中,复制并粘贴以下命令:pip install PySimpleGUI,然后按回车键。执行此命令将安装用于启动图形用户界面(GUI)所需的软件包。
- 在同一控制台中,复制并粘贴以下命令:pip install tifffile,然后按 Enter 键。执行此命令将安装用于将图像保存为 tiff 文件所需的软件包。
- 从补充文件或 GitHub 上获取所有 Python 脚本,最新版本位于:https://github.com/ernestiu/Cell-spreading-analysis.git
- 量化细胞铺展过程中的细胞面积和细胞形态参数
- 在 Spyder 顶部面板中选择“打开文件”选项,或使用快捷键 Ctrl + O,打开主分析脚本“cell_spreading_GUI.py”。
- 在顶部面板中选择“运行文件”或使用快捷键 F5,启动细胞铺展分析 GUI。
- 点击 细胞铺展面积 标签页(图 3A)。
- 使用浏览按钮选择待分析的 tiff 图像。
注意:所选文件必须为 tiff 格式。 - 指定数据输出的保存路径(例如,细胞掩膜、数值等)。
- 设置数据输出选项:
- 保存掩膜:保存分割过程中生成的细胞掩膜。
- 导出数据:将包含所有分析数据的 Excel 表格(.xlsx)导出至目标文件夹。
所有铺展细胞的细胞面积、圆形度和长宽比将保存为 Excel 表格并存入目标文件夹。细胞面积计算公式如下:
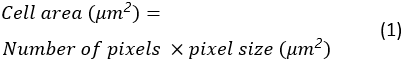
细胞圆形度用于衡量细胞接近完美圆形的程度,其计算公式为:
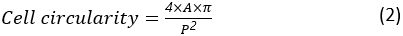
其中 A 和 P 分别表示细胞面积和细胞周长。细胞的长宽比反映其伸长程度。一个铺展的细胞其长宽比应接近 1。长宽比的计算公式如下:
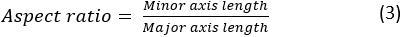
- 保存轮廓:将细胞边界轮廓叠加图像保存至目标文件夹。
- 设置分割参数
- 显示分割结果:在分析过程中于 Spyder 控制台显示分割结果。
- 最小细胞面积(µm2):输入细胞面积的最小值,包括细胞初始贴附阶段的面积值。面积小于该阈值的对象将不被视为铺展细胞。该数值会影响分割过程。
- 设置图像参数
- 采集间隔(s):输入图像采集的时间频率(单位为秒)。
- 像素尺寸(µm):输入在准备分析图像时记录的像素尺寸。
- 图像位深度:输入相机/探测器的位深度。
- 点击 运行。若出现错误,Spyder 控制台将显示错误信息;否则,图像分析过程将在控制台中显示。
注意:在控制台/绘图区域(取决于 Spyder 设置)中出现的第一幅图像显示了视野中所有被识别的细胞。细胞周围的绿色框表示适合进行分割和分析的铺展细胞,灰色框表示不适合分析的细胞。已识别的铺展细胞总数也将在控制台标签页中显示。软件将绘制细胞面积(蓝色)和细胞圆形度(红色)随时间变化的曲线图。这些图表可用于评估细胞分割的准确性。成功的分割应产生一条细胞面积单调递增的曲线。为获得具有代表性的细胞铺展面积曲线,需手动从图中去除滞后期。滞后期指细胞开始铺展前的细胞面积测量阶段,其特征为快速波动,如细胞面积图中所示(图 3C 右图)。
6. 使用波状图量化细胞铺展过程中的细胞边缘动态
- 在运行分析之前,裁剪细胞铺展的原始视频,以创建单个铺展细胞的时间序列。
- 使用 矩形 使用 Fiji 工具栏中的工具手动选择一个感兴趣区域(ROI),该区域应包含 单个细胞(为确保ROI完全包含扩散的细胞,使用滚动功能检查所有时间点的ROI。)
- 右键单击感兴趣区域(ROI)并选择 重复.
- 检查 复制堆栈 并点击 好的.
- 打开主分析脚本 "cell_spreading_GUI.py" 通过选择 打开文件 在 Spyder 的工具栏中单击按钮或使用快捷键 Ctrl + O如果图形用户界面(GUI)已打开,请直接跳至步骤 6.3。
- 通过选择打开细胞铺展分析图形用户界面 运行文件 在上方面板中或使用快捷方式 F5 (图3B).
- 点击 Kymograph 生成器 & 分析 表。
- 使用浏览按钮选择用于分析的 TIFF 图像。
注意:专有文件格式, 例如, nd2、lif、zen 格式不受该脚本支持。 - 指定用于保存输出数据(细胞掩膜和数值)的目标文件夹。
- 指定输出设置。
- 导出数据:将包含明场图像中细胞边缘相对位置及回缩事件的 Excel 电子表格(.xlsx)导出至目标文件夹。
- 指定图像参数:
- 采集间隔(s):输入以秒为单位的图像采集频率。
- 像素大小(µm):输入在第5.1.3步准备用于分析的图像时记录的像素尺寸。
- 最小细胞面积(µm2):输入细胞面积的最小值,包括处于贴附初期阶段的细胞面积。面积小于此阈值的对象将不被视为铺展细胞。该数值将影响分割过程。
- 图像位深度:输入相机/探测器的位深度。
- 点击 运行如果出现错误,Spyder 控制台将显示错误消息。否则,控制台将显示伪足动态量化结果的摘要。共有 4 组回缩频率和 protrusion 速度的测量值,这些值分别来自细胞顶部、底部、左侧和右侧区域生成的 4 个kymograph。回缩频率的计算公式为:
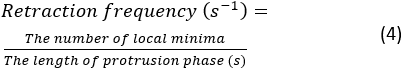
注意:该数值展示了在细胞铺展过程中伪足回缩的频率。平均突出速度通过在kymograph上从突出起始点到平台期之间的斜率来测量。分割完成后,控制台将显示汇总的kymograph图像。要保存该汇总图像,可右键单击图像并保存图片。
访问受限。请登录或开始试用以查看此内容。
结果
上述方案描述了活细胞成像观察细胞铺展的实验步骤,以及用于定量分析细胞铺展动态的计算工具。该计算工具可用于低通量或高通量模式,以鉴定调控细胞前缘肌动蛋白聚合机制的分子参与者。
实验步骤的示意图如下所示 图1在稳定表达与eGFP标记的Akt蛋白激酶pleckstrin同源结构域(PH结构域)的小鼠胚胎成纤维细胞系中进行细胞铺展实验25细胞用胰蛋白酶-EDTA消化后悬浮培养45分钟以允许其恢复。在恢复期间,细胞在质膜上重新补充了整合素受体,这由恢复后的细胞快速且同步地贴附于纤维连接蛋白包被的盖玻片上得到证实。图2)。若无恢复期,扩散的细胞表现出较大的细胞尺寸分布,表明细胞扩散起始时间具有高度变异性(图 2A 和 B)。随后,将细胞接种于带有基准标记的盖玻片上,并通过转盘共聚焦显微镜观察其铺展动态(示意图如图所示 <...
访问受限。请登录或开始试用以查看此内容。
讨论
本研究所述的细胞铺展实验能够持续追踪细胞形态变化(例如,细胞大小和形状)以及细胞边缘运动(即,突出速度和回缩频率),而这些特征在大多数细胞铺展实验方案中均未被涵盖19,24。尽管常用的终点法细胞铺展实验可用于测定细胞铺展速度,但这类实验无法解析细胞边缘运动的时间动态过程。缺乏时间分辨信息限制了对片状伪足突出-回缩周期中变化的检测与定量分析能力。
我们的图像处理与分析软件可对铺展细胞进行高效分析,从细胞分割到数据量化均可完成。传统的细胞铺展手动图像分析通常需要人为设定阈值或应用自动分割算法,这种方法在需要分析大量图像的高通量实验中存在选择偏差,难以适用。因此,本软件被设计用于以自动化 方式检测和分割铺展细胞,并可同时量化细胞突起的动态行为及形态学参数。上述功能使得本方案适用于对调控片状伪足的信号通路及分子因子进行高通量筛选。
为确保对铺展细胞的分析具有稳健性和准确性,...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
本工作获得了以下资助:S.P. 获得康诺特基金新研究者奖、加拿大创新基金会、加拿大自然科学与工程研究委员会发现基金项目(项目编号 RGPIN-2015-05114 和 RGPIN-2020-05881)、曼彻斯特大学与多伦多大学联合研究基金以及多伦多大学 XSeed 计划。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.05% 胰蛋白酶 (0.05%),0.53 mM EDTA | Wisent Bioproducts | 325-042-CL | |
| 10.0 cm 培养皿,聚苯乙烯,组织培养处理,带通气孔 | Starstedt | 83.3902 | |
| 15 mL 高透明度聚丙烯离心管,锥底,带圆顶密封螺帽,无菌 | Falcon | 352097 | |
| 适用于 22 mm × 22 mm 盖玻片的 1 孔 Chamlide CMS | Quorum Technologies | CM-S22-1 | |
| 35 mm 组织培养处理易握式细胞培养皿 | Falcon | 353001 | |
| 50 mL 离心管,透明,插塞密封 | Nest | 602002 | |
| 6.0 cm 细胞培养皿,经处理以增强细胞贴附,无菌 | VWR | 10861-658 | |
| Arp2/3 复合物抑制剂 I,CK-666 | Millipore Sigma | 182515 | |
| 相机,Prime 95B-25MM | Photometrics | ||
| 二甲基亚砜,无菌 | BioShop | DMS666 | |
| DMEM,1×,4.5 g/L 葡萄糖,含 L-谷氨酰胺、丙酮酸钠和酚红 | Wisent Bioproducts | 319-005 CL | |
| DMEM/F-12,含 HEPES,无酚红 | Gibco | 11039021 | |
| D-PBS,1× | Wisent Bioproducts | 311-425 CL | |
| 胎牛血清 | Wisent Bioproducts | 080-110 | |
| Fiji 软件 | ImageJ | ||
| HEPES (1 M) | Gibco | 15630080 | |
| 人血浆纤维连接蛋白纯化蛋白,1 mg | Millipore Sigma | FC010 | |
| 浸油 | Cargille | 16241 | |
| L-谷氨酰胺溶液 (200 mM) | Wisent Bioproducts | 609-065-EL | |
| MEM 非必需氨基酸溶液 (100×) | Gibco | 11140050 | |
| 显微盖玻片,方形,No. 11/2,22 × 22 mm | VWR | CA48366-227-1 | |
| 显微镜主体,Eclipse Ti2-E | Nikon | ||
| 物镜,CFI Plan Apo Lambda 60X 油 | Nikon | MRD01605 | |
| 青霉素-链霉素 | Sigma | P4333 | |
| 转盘装置,Crest Light V2 | CrestOptics | ||
| Spyder | Anaconda | ||
| 载物台培养箱 | Tokai Hit | ||
| 统计分析软件,Prism | GraphPad | ||
| 镊子,Style 2 | Electron Microscopy Sciences | 78326-42 |
参考文献
- Mullins, R. D., Heuser, J. A., Pollard, T. D. The interaction of Arp2/3 complex with actin: Nucleation, high affinity pointed end capping, and formation of branching networks of filaments. Proceedings of the National Academy of Sciences. 95 (11), 6181-6186 (1998).
- Yang, C., Czech, L., Gerboth, S., Kojima, S., Scita, G., Svitkina, T. Novel Roles of Formin mDia2 in Lamellipodia and Filopodia Formation in Motile Cells. PLoS Biology. 5 (11), 317(2007).
- Mogilner, A., Oster, G. Cell motility driven by actin polymerization. Biophysical Journal. 71 (6), 3030-3045 (1996).
- Mogilner, A., Oster, G. Force Generation by Actin Polymerization II: The Elastic Ratchet and Tethered Filaments. Biophysical Journal. 84 (3), 1591-1605 (2003).
- Pollard, T. D., Borisy, G. G. Cellular Motility Driven by Assembly and Disassembly of Actin Filaments. Cell. 112 (4), 453-465 (2003).
- Wu, C., et al. Arp2/3 is critical for lamellipodia and response to extracellular matrix cues but is dispensable for chemotaxis. Cell. 148 (5), 973-987 (2012).
- Steffen, A., et al. Rac function is crucial for cell migration but is not required for spreading and focal adhesion formation. Journal of cell science. 126, Pt 20 4572-4588 (2013).
- Gupton, S. L., et al. Cell migration without a lamellipodium. The Journal of Cell Biology. 168 (4), 619-631 (2005).
- Dimchev, V., et al. Induced Arp2/3 Complex Depletion Increases FMNL2/3 Formin Expression and Filopodia Formation. Frontiers in Cell and Developmental Biology. 9, 634708(2021).
- Leithner, A., et al. Diversified actin protrusions promote environmental exploration but are dispensable for locomotion of leukocytes. Nature cell biology. 18 (11), 1253-1259 (2016).
- Giannone, G., Dubin-Thaler, B. J., Döbereiner, H. -G., Kieffer, N., Bresnick, A. R., Sheetz, M. P. Periodic Lamellipodial Contractions Correlate with Rearward Actin Waves. Cell. 116 (3), 431-443 (2004).
- Dubin-Thaler, B. J., et al. Quantification of Cell Edge Velocities and Traction Forces Reveals Distinct Motility Modules during Cell Spreading. PLoS ONE. 3 (11), 3735(2008).
- Suraneni, P., Rubinstein, B., Unruh, J. R., Durnin, M., Hanein, D., Li, R. The Arp2/3 complex is required for lamellipodia extension and directional fibroblast cell migration. The Journal of cell biology. 197 (2), 239-251 (2012).
- Wang, C., et al. Deconvolution of subcellular protrusion heterogeneity and the underlying actin regulator dynamics from live cell imaging. Nature Communications. 9 (1), 1688(2018).
- Dimchev, G., et al. Lamellipodin tunes cell migration by stabilizing protrusions and promoting adhesion formation. Journal of cell science. 133 (7), 239020(2020).
- Burnette, D. T., et al. A role for actin arcs in the leading-edge advance of migrating cells. Nature cell biology. 13 (4), 371-381 (2011).
- Yamada, K. M., Kennedy, D. W. Dualistic nature of adhesive protein function: fibronectin and its biologically active peptide fragments can autoinhibit fibronectin function. The Journal of Cell Biology. 99 (1), 29-36 (1984).
- Cai, Y., et al. Nonmuscle Myosin IIA-Dependent Force Inhibits Cell Spreading and Drives F-Actin Flow. Biophysical Journal. 91 (10), 3907-3920 (2006).
- Humphries, M. J. Cell adhesion assays. Molecular Biotechnology. 18 (1), 57-61 (2001).
- Cavalcanti-Adam, E. A., Volberg, T., Micoulet, A., Kessler, H., Geiger, B., Spatz, J. P. Cell Spreading and Focal Adhesion Dynamics Are Regulated by Spacing of Integrin Ligands. Biophysical Journal. 92 (8), 2964-2974 (2007).
- Dubin-Thaler, B. J., Giannone, G., Döbereiner, H. -G., Sheetz, M. P. Nanometer Analysis of Cell Spreading on Matrix-Coated Surfaces Reveals Two Distinct Cell States and STEPs. Biophysical Journal. 86 (3), 1794-1806 (2004).
- Gauthier, N. C., Fardin, M. A., Roca-Cusachs, P., Sheetz, M. P. Temporary increase in plasma membrane tension coordinates the activation of exocytosis and contraction during cell spreading. Proceedings of the National Academy of Sciences. 108 (35), 14467-14472 (2011).
- Wolfenson, H., Iskratsch, T., Sheetz, M. P. Early Events in Cell Spreading as a Model for Quantitative Analysis of Biomechanical Events. Biophysical Journal. 107 (11), 2508-2514 (2014).
- Guan, J. -L., Berrier, A. L., LaFlamme, S. E. Cell Migration, Developmental Methods and Protocols. Methods in molecular biology. 294, Clifton, N.J. 55-68 (2004).
- Raucher, D., et al. Phosphatidylinositol 4,5-Bisphosphate Functions as a Second Messenger that Regulates Cytoskeleton-Plasma Membrane Adhesion. Cell. 100 (2), 221-228 (2000).
- Machacek, M., Danuser, G. Morphodynamic Profiling of Protrusion Phenotypes. Biophysical Journal. 90 (4), 1439-1452 (2006).
- Zack, G. W., Rogers, W. E., Latt, S. A. Automatic measurement of sister chromatid exchange frequency. The journal of histochemistry and cytochemistry official journal of the Histochemistry Society. 25 (7), 741-753 (1977).
- Bardsley, W. G., Aplin, J. D. Kinetic analysis of cell spreading. I. Theory and modelling of curves. Journal of cell science. 61, 365-373 (1983).
访问受限。请登录或开始试用以查看此内容。
重印与许可
