合成囊性纤维化痰液培养基(SCFM2)可与共聚焦激光扫描显微镜及荧光激活细胞分选技术联用,以高分辨率观察细菌聚集体。本文详细描述了在抗菌治疗过程中评估聚集体群体的方法,为未来研究提供了一个技术平台。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
Pseudomonas aeruginosa(Pa)是与囊性纤维化(CF)相关的最常见机会性病原体之一。一旦Pa定植建立,大量感染细菌会在气道痰液中形成生物膜。Pa生物膜从CF患者痰液中分离后显示,其以约10至1,000个细胞组成的小而致密的聚集体形式生长,这些聚集体具有空间组织结构,并表现出如抗菌耐受性等具有临床相关性的表型。研究Pa聚集体如何响应痰液环境变化所面临的主要挑战之一,是缺乏营养条件相关性强且可重复促进聚集体形成的实验系统。利用合成CF痰液培养基(SCFM2),可通过共聚焦激光扫描显微镜(CLSM)结合图像分析,在单细胞分辨率下观察Pa聚集体的生命周期。该体外系统可在实时、三维、微米尺度下同时观察数千个不同大小的聚集体。在个体和群体水平上,能够根据表型和位置对聚集体进行分类,从而精确区分处于不同发育阶段的聚集体及其对微环境变化(如抗生素处理)的响应。
引言
Pseudomonas aeruginosa (Pa) 是一种机会性病原体,可在免疫功能低下个体中引发慢性感染。对于患有遗传性疾病囊性纤维化(CF)的患者而言,此类感染可能持续终生。CF 会导致气道内形成黏稠且富含营养的痰液,随着时间推移,多种微生物病原体会在其中定植。Pa 是最常见的 CF 相关病原体之一,通常在儿童早期即定植于气道,并引发难以治疗的感染1。尽管近年来治疗方案有所改善,Pa 仍然是重要的临床难题,被认为是导致 CF 患者死亡的主要原因之一2,3。由于其持续定植的表型及对抗生素耐受性不断增强,Pa 已被美国疾病控制与预防中心(CDC)和世界卫生组织(WHO)共同列为需要优先开展研究以开发新型治疗策略的病原体——即 ESKAPE 病原体之一4。
与其他 ESKAPE 病原体类似,Pa 常见获得性抗生素耐药性,但也存在许多内在特性可导致 Pa 对抗菌药物的耐受。其中之一是 Pa 形成聚集体的能力——即由约 10 至 1,000 个细胞组成的高密度簇,在多种感染中均可观察到,包括囊性纤维化(CF)患者痰液5,6。与在其他生物膜体系中研究的 Pa 类似,Pa 聚集体表现出多种具有临床相关性的表型,例如对抗生素的耐药性增强以及细胞间通讯(群体感应,QS)的激活。例如,已发现 Pa 聚集体利用受 QS 调控的行为来抑制其他微生物,同时耐受抗菌治疗,如产生绿脓菌素7。研究此类行为的能力为深入了解细菌在人体内类似环境中的生态系统提供了重要视角。
研究如何的最大挑战之一是 Pa 缺乏能够促进聚集体形成的、具有营养相关性和稳健性的系统,是目前研究聚集体如何响应痰液环境变化的主要障碍。关于这方面的大部分已知信息来自于 Pa 已通过使用……被发现 体外 细胞以浮游状态或特征性的表面附着“蘑菇状”结构生长的体系,后者尚未被观察到 体内8. 尽管传统的生物膜生长模型(如流动池或固体琼脂)已为细菌行为及抗生素耐受机制的研究提供了大量且有价值的信息,但这些发现并不总能转化 体内 许多 体外 模型模拟人类感染部位生长环境的能力有限,因此需要耗费高昂的成本 体内 研究。反过来,许多 体内 模型缺乏灵活性和分辨率,而这些是 体外 技术
合成囊性纤维化痰液培养基(SCFM2)旨在为Pa的生长提供一种类似于囊性纤维化患者肺部慢性感染期间所经历的环境。SCFM2 包含在囊性纤维化患者咳出的痰液中鉴定出的营养成分,以及黏蛋白、脂质和 DNA。Pa 在 SCFM2 中的生长所需基因集合与在真实痰液中生长所需的基因集合几乎完全相同,并且能够支持Pa天然聚集体的形成9,10。接种后,浮游细胞会形成聚集体,并通过扩张不断增大体积。个别细胞(称为迁移细胞)从聚集体中释放出来,迁移到未定植的区域,并形成新的聚集体10。这一生命历程可通过共聚焦激光扫描显微镜(CLSM)和图像分析在单细胞分辨率下进行观察。在 SCFM2 中形成的Pa聚集体大小与在囊性纤维化患者肺部观察到的聚集体相似10。该模型可在微米尺度上实时、三维地观察多个不同大小的聚集体。延时显微技术使得在一个实验中可同时追踪数千个(约 50,000 个)聚集体。利用图像分析软件,可从显微图像中定量分析聚集体的表型特征,包括单个聚集体及群体水平上的三维体积、表面积以及空间位置,精度可达 0.1 μm。能够按表型和位置对聚集体进行分类,使得可以精确区分处于不同发育阶段的聚集体,并研究其对微环境变化的响应6,11。
将SCFM2应用于研究 Pa 在低体积和高通量检测中形成聚集体,使其成为一种灵活且成本效益高的模型。作为一种成分明确的培养基,SCFM2 在多种平台上具有均一性和可重复性,为研究提供了营养和物理环境上均具相关性的方法 Pa 聚集体 体外9应用包括将其与共聚焦激光扫描显微镜(CLSM)联用,以高分辨率观察空间结构和抗生素耐受性(如本方法学论文所述)。该技术能够开展提供实时、微米尺度数据的实验,从而可在自然发生状态下研究种内和种间相互作用 体内例如,SCFM2 之前已被用于通过一系列系统研究聚集体群落中细胞间通讯的空间动态 帕 调控多个与毒力和致病性相关的基因6.
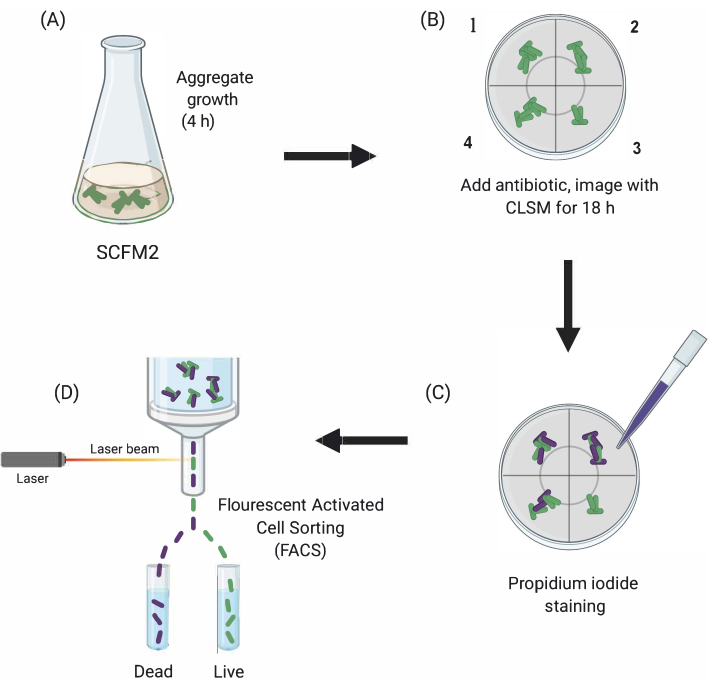
图1:主要实验步骤的图示。(A)在玻璃底培养皿中用Pa细胞接种SCFM2,并使其形成聚集体。(B)将聚集体转移至共聚焦显微镜下,并加入抗生素。图中显示了三个技术重复组(1–3号腔室)以及一个未接受抗生素处理的接种SCFM2对照孔(4号)。聚集体在18小时内通过CLSM进行成像。(C)初始18小时成像结束后,用碘化丙啶处理聚集体以显示死细胞,并通过CLSM成像。(D)使用FACS将具有目标表型的聚集体从SCFM2中分离。缩写:SCFM2 = 合成囊性纤维化痰液培养基;Pa = Pseudomonas aeruginosa;CLSM = 共聚焦激光扫描显微镜;FACS = 荧光激活细胞分选。 请点击此处查看该图的放大版本。
在此,展示了利用SCFM2实时研究抗生素处理对Pa聚集体影响的实用性,随后采用细胞分选方法分离具有不同表型的聚集体群体,用于后续分析(图1)。
访问受限。请登录或开始试用以查看此内容。
方案
1. 配制合成囊性纤维化培养基(SCFM2)
注意:SCFM2 的制备包含以下三个主要步骤(图2)。详细信息和参考文献见9,10,12。

图 2:SCFM2 培养基的制备与接种。(A)使用 表 1 和 表 2 中列出的盐类和氨基酸制备缓冲基础液。缓冲基础液可在 4 °C 下保存最多 30 天,但必须避光保存。(B)将黏蛋白和 DNA 加入一份缓冲基础液中,并在 4 °C 下过夜溶解。(C)将脂质及其他储备液加入过夜溶解后的溶液中,在 37 °C 下以 250 rpm 振荡孵育 20 分钟。然后用洗涤过的对数生长期细胞以 OD600 = 0.05 的浓度接种 SFCM2 培养基。缩写:SCFM2 = 合成囊性纤维化痰液培养基。请点击此处查看该图的放大版本。
- 猪黏蛋白的灭菌
- 在SCFM2培养基中制备终浓度为5 mg/mL的无菌黏蛋白溶液。例如,取5 mL SCFM2培养基,称取25 mg II型黏蛋白置于无菌培养皿中,放入紫外(UV)灭菌器中照射4小时,每小时轻轻振荡一次。
- 4 h后,在无菌条件下将经UV处理的黏蛋白转移至已灭菌的1.7 mL离心管中,并于-20 °C.
- 为确认彻底灭菌,将黏蛋白样品溶解于无菌液体(如水或LB肉汤)中,并在显微镜下观察。
注意:灭菌的黏蛋白可在 -20 °C 长达6个月。
- 缓冲碱液的配制
- 按照下表所列,将相应质量的盐和氨基酸加入去离子水中,配制储备溶液。 表1. 使用滤器对所有储备液进行除菌过滤 0.22 μm 过滤,用铝箔包裹以防止光降解,并储存于 4 °C 长达一个月。
- 通过将190 mL去离子水与氨基酸和盐的储备溶液按所列体积混合,制备缓冲基础液 表1调节溶液 pH 至 6.8,并加水定容至 250 mL。使用滤器过滤除菌 0.22 μm 过滤,然后在 4 °C 长达 30 天。
- 实验前一晚,将所需量的缓冲碱液分装至玻璃培养瓶中,加入黏蛋白(5 mg/mL,步骤1.1.1所述)和纯化鲑鱼精子DNA(0.6 mg/mL)。轻轻振荡混匀,用铝箔包裹,静置于 4 °C 过夜以使黏蛋白和DNA溶解于溶液中。
注意:鲑鱼精子DNA分装样品应在冰上解冻,涡旋混匀后加入缓冲基础液和黏蛋白中。色氨酸、天冬酰胺和酪氨酸储备液必须用NaOH溶液配制(见 表1 使用缓冲碱液(用于浓度配制)而非去离子水。将缓冲碱液及所有储备液用铝箔包裹,避免光照。大多数储备液可稳定保存长达一个月。若储备液出现变色,则不应继续使用,应在使用前更换新配制的溶液。
- 添加补充储备液
- 实验当天,加入下列所列的储备液 表2 到含有黏蛋白和DNA的缓冲碱液中。
注意:新鲜配制 FeSO₄ 溶液。4 实验当天配制溶液,但其他储备液可预先配制,并在 4 °C1,2-二油酰基-sn-甘油-3-磷酰胆碱(DOPC)含有氯仿,操作时需谨慎,避免在明火附近使用。加入 DOPC 后,将 SCFM2 在 37 °C 在摇床(250 rpm)中振荡至少 20 min(适用于 5 mL 培养物)。此孵育过程可使 DOPC 中的氯仿挥发。锥形瓶不应完全密封,而应使用铝箔 loosely 覆盖瓶口。
- 实验当天,加入下列所列的储备液 表2 到含有黏蛋白和DNA的缓冲碱液中。
2. 细菌聚集体中抗菌耐受性的实时评估
- 准备过夜培养物
- 实验前一晚,从含有抗生素(羧苄西林 300 μg/mL)的 LB 琼脂平板上挑取数个 Pa PAO1-pMRP9-113 菌落,接种于 5 mL LB 肉汤培养基中。在 37 °C、250 rpm 振荡条件下过夜培养。
注意:过夜培养时需添加筛选质粒所需的抗生素(此处为绿色荧光蛋白(GFP)表达质粒 pMRP9-1)。注意在接种 SCFM2 前需对 Pa 细胞进行洗涤。LB 可替换为其他适合的富集培养基用于过夜培养。本方案中所有细菌分离株的操作均应遵循相应的 BSL-2 安全指南。
- 实验前一晚,从含有抗生素(羧苄西林 300 μg/mL)的 LB 琼脂平板上挑取数个 Pa PAO1-pMRP9-113 菌落,接种于 5 mL LB 肉汤培养基中。在 37 °C、250 rpm 振荡条件下过夜培养。
- 接种 SCFM2
- 实验当天,将 Pa 的过夜培养物按 1:10(培养物:液体培养基)的比例稀释,取 500 μL 接种至 5 mL 新鲜 LB 肉汤培养基中。在 37 °C、250 rpm 振荡条件下培养至对数生长期(60–90 分钟)。
- 将对数生长期的培养物在 10,000 × g 条件下离心 5 分钟。弃上清液,用 3 mL 经滤膜除菌的磷酸盐缓冲液(PBS,pH 7.0)重悬细胞,洗涤一次。重复该步骤两次,最终将菌体沉淀重悬于 1 mL PBS 中。
- 使用分光光度计在 600 nm 处测定洗涤后细胞的吸光度(OD600),并计算在 5 mL SCFM2 中达到起始 OD600 为 0.05 所需的菌液体积。将 Pa 接种至 SCFM2 中,轻轻涡旋混匀使细胞均匀分布。将 1 mL 接种后的 SCFM2 加入 4 孔玻璃底光学培养皿的每个孔中,在 37 °C 静置培养 4 小时。
注意:Pa 培养物的倍增时间取决于菌株及氧气供应情况。在本实验所述条件下,SCFM2 中 Pa 的倍增时间约为 1.4 小时10。
3. 使用共聚焦激光扫描显微镜(CLSM)观察抗生素处理过程中的聚集体
注意:本节介绍使用共聚焦激光扫描显微镜及图像采集软件对 SCFM2 中的 Pa 聚集体进行成像的方法。目的是观察和表征经抗生素处理后残留的(耐受性)细菌生物量。所述步骤也可在其他共聚焦显微镜上成功实施,但应参考仪器操作手册以获取具体指导。
- 图像 Pa 使用加热腔室或安装在显微镜载物台上的加热微孔板,以维持环境温度为 37 °C. 开始 孵育 实验开始前至少2小时开启模块,使所有设备达到目标温度,以减少数据采集过程中的进一步膨胀和移动。
- 4小时后,转移含有SCFM2培养基的培养物 Pa 将细胞置于加热的显微镜载物台上。从4个孔中指定3个作为抗生素处理的技术重复,剩余1个孔作为对照考虑th 以及仅含无处理对照 Pa 在不含抗生素的SCFM2培养基中培养细胞,利用明场显微镜观察并识别聚集体 定位 在激发荧光报告分子之前进行标记。在每个孔内定义成像区域,并使用其位置(x-y-z坐标)进行存储 职位 成像软件中的模块。
- 使用63倍油镜物镜观察 Pa 含有 GFP 表达质粒 pMRP9-1 的培养物在 SCFM2 培养基中,使用 488 nm 激发波长和 509 nm 发射波长进行成像。使用显微镜的 z-stack 功能采集图像。 采集 模块在 1 μm 间隔(共60片)。使用 线平均 模块,用于降低GFP通道在总体积内的背景荧光 60 μm z轴层扫图像(1,093.5 mm)3). 采用相同设置拍摄未接种的SCFM2的对照图像,以确定图像分析所需的背景荧光。
注意:图像是通过生成 512 像素 × 512 像素(0.26 μm x 0.26 μm 像素)8 位 z 轴堆栈图像,其 60 μm 从盖玻片的底部 - 使用成像软件中的时间序列选项,在18小时内每隔15分钟于每个位置(孔)采集60个层面的图像。在软件中启用确定性对焦策略,为每个位置保存一个焦平面,并在实验过程中每个时间点自动返回至该焦平面。
- 经过总共 4.5 小时的孵育后,使用上述设置对每个位置进行成像,以确定在添加抗生素前每个孔中的聚集体生物量。
- 孵育6小时后,向每个重复样本中加入抗生素,浓度为最低抑菌浓度(MIC)的1/2倍。用移液器直接轻柔地将抗生素加入孔的中部,液面下方。将所有培养物置于加热的共聚焦培养室中继续培养。
注意:此处使用浓度为的硫酸粘菌素 140 μg/mL 被使用。 - 开始抗生素处理后的成像,点击 开始实验 成像程序中的选项。
注意:所用抗生素浓度取决于抗生素种类、 Pa 分离,并确定用户希望研究的是杀菌效应还是耐受效应。本实验采用单剂量处理。如有需要,可额外添加剂量,而不会干扰培养物。
4. Pa 聚集体的碘化丙啶染色
注意:碘化丙啶(PI)通常用作染色试剂,以识别培养物中的非活(死亡)细菌细胞。在此实验中,它用于识别在第3节中经抗生素处理后敏感的聚集体。在整个方案中,Pa 细胞中GFP的表达与检测被用作细胞活力的主要替代指标。此最后一步可再次利用共聚焦成像,以确定活/死聚集体之间的空间分布关系。此外,活/死聚集体的鉴定将用于第5节中的后续细胞分选。
- 18 h后,向含有SCFM2培养物的四孔光学底培养皿的每个孔中加入PI。PI的添加体积和孵育时间请参照生产商的说明书(例如., ~2 μL 每毫升培养液,约20-30分钟。
5. 使用 FACS 方法从聚集体中分离活细胞
注意:流式细胞分选(FACS)是一种强大的平台,可根据荧光标记的表型对细胞群体进行分选和分离。此处,FACS 用于从无活力的聚集体中分离出有活力的(耐抗生素的)聚集体。
- 用碘化丙啶染色后,将培养物从培养箱中取出,并转移至保温容器中送往流式细胞仪,以维持 37 °C.
- 以最低流速运行含有 Pa 聚集体的 SCFM2 的 1 mL 等分试样。
注意:每份等分试样将包含约 15,000 个聚集体。 - 使用488 nm激光激发以检测GFP,并在530/30 nm处记录荧光信号强度。采用561 nm激光激发以观察PI染色,并在610/20 nm处记录荧光信号强度。使用70-μm喷嘴进行分选。
注意:根据用户的应用需求,可采用多种方式合并已分选的聚集体。本实验中,使用FACS对活细胞进行分选 Pa 用于下游RNA测序的聚集体。其他应用在下文讨论。
6. 图像分析
注意:延时显微镜会产生大量数据。在 SCFM2 中对 Pa 聚集体进行 18 小时观察的实验,可随时间识别出约 50,000 个聚集体,这些聚集体可被用于体积和空间位置的表征。使用图像分析软件来定量分析 SCFM2 中聚集体的动态变化:
- 在 SCFM2 中进行聚集体研究时,通过创建未接种的 SCFM2 以及接种携带 pMRP9-1 质粒的Pa菌株 PAO1 的 GFP 通道计数直方图,来量化背景 GFP 荧光。为确保检测到的 GFP 体素与Pa生物量相关,将 GFP+ 体素定义为 ≥ 背景 GFP 计数值的 1.5 倍。
注意:背景荧光定义为随机选择的三个位置中的最高体素值的平均值。作为标准测量方法,图像分析软件会从实验图像的所有像素中减去背景计数值。 - 在Surpass模块中完成背景扣除后,对所有剩余体素生成等值面。
- 为检测单个聚集体,启用Split Objects选项,并将体积 ≥5 μm3 的对象定义为聚集体。使用图像分析软件中的Vantage模块计算每个独立对象的体积、x-y-z 坐标及 GFP 体素总和,并将此数据导出至外部统计平台。
注意:某些图像分析软件允许一次性导出多个定量表型数据,从而可进行相关性分析。 - 根据尺寸对从Vantage模块导出的数据进行筛选,以确保排除体积 <0.5 µm3 的对象(弥散生物量)。对于图像中的每个独立对象,使用图像分析软件的Vantage模块或通过以下公式手动计算其与其他对象(聚集体)之间的距离。
d = sqrt((x2− x1)2 + (y2− y1)2 + (z2− z1)2) (1) - 使用 SUM(求和)和 AVERAGE(平均值)计算总生物量和平均聚集体体积。或者,将数据导出至其他统计平台或脚本中,e.g.,如代表性结果中讨论的生物量中聚集体分布情况(与佐治亚理工学院 Whiteley 实验室合作开发的脚本,尚未发表)。
访问受限。请登录或开始试用以查看此内容。
结果
本研究详细描述了用于观察的实验方法 Pa 在类似于囊性纤维化肺部慢性感染的环境中,以高分辨率观察聚集体9,10,12. SCFM2 提供了一种 体外 促进自然聚集的系统 Pa 与实际感染过程中观察到的大小相似的细胞10SCFM2 作为一种成分明确的培养基,其适应性可用于探索多种研究方向。本研究旨在展示一种结合显微镜与流式细胞分选(FACS)的工作流程,以期推动其在未来研究、合作与应用中的使用。
共聚焦激光扫描显微镜(CLSM)的使用可实现时间分辨的高分辨率成像,可用于研究细菌群体发育的动态过程。本研究展示了在抗生素处理后对Pa聚集体进行表征的几种潜在方法。图3A展示了抗生素处理后具有活性的Pa聚集体的整...
访问受限。请登录或开始试用以查看此内容。
讨论
本研究介绍了一种可结合使用的方法体系,用于在有或无抗生素处理条件下研究细菌聚集体群体。高分辨率共聚焦激光扫描显微镜(CLSM)能够在抗生素暴露条件下实时观察聚集体生物量的变化及其结构取向。此外,还可对经抗生素处理后残留的生物量的物理与结构性特征进行量化,旨在将这些观察结果与后续利用RNA-seq技术开展的基因表达研究相关联。尽管表达绿色荧光蛋白(GFP)的细胞有助于观察耐受抗生素的细胞在群体和个体层面的行为,但这仅揭示了整体图景的一部分。通过分析在抗生素处理中未能存活的细胞的空间分布位置,无论其个体状态或相对于存活及耐受性生物量的关系,均可获得大量有价值的信息。
延时显微镜会产生大量数据。一项持续18小时、用于观察SCFM2中Pa菌聚集物的实验,可随时间识别出约50,000个聚集物,这些聚集物均可用于体积和空间位置的表征。本研究使用的共聚焦激光扫描显微镜(CLSM)(见材料表)可捕获发育中聚集物的高分辨率图像以供分析。通过三维空间中单个聚集物相对于周围聚集物的位置(精度±0.1 μm),可精确测量聚集物之间的距离。细菌聚集物的物理...
访问受限。请登录或开始试用以查看此内容。
致谢
S.E.D 获得了分子生物学系提供的启动资金支持 医学,南佛罗里达大学,以及囊性纤维化基金会研究资助(DARCH19G0)、美国国立卫生研究院(5R21AI147654 - 02(项目负责人:Chen))和南佛罗里达大学微生物组研究所。我们感谢Whiteley实验室在与本手稿相关数据集方面的持续合作。我们感谢Charles Szekeres博士协助完成FACS分选。图示由A.D.G.和S.E.D.使用Biorender.com制作。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 氨基酸 | |||
| 丙氨酸 | Acros Organics | 56-41-7 | |
| 盐酸精氨酸 | MP | 1119-34-2 | |
| 天冬酰胺 | Acros Organics | 56-84-8 | 用 0.5 M NaOH 配制 |
| 盐酸胱氨酸 | Alfa Aesar | L06328 | |
| 盐酸谷氨酸 | Acros Organics | 138-15-8 | |
| 甘氨酸 | Acros Organics | 56-40-6 | |
| 盐酸组氨酸 H2O | Alfa Aesar | A17627 | |
| 异亮氨酸 | Acros Organics | 73-32-5 | |
| 亮氨酸 | Alfa Aesar | A12311 | |
| 盐酸赖氨酸 | Alfa Aesar | J62099 | |
| 甲硫氨酸 | Acros Organics | 63-68-3 | |
| 盐酸鸟氨酸 | Alfa Aesar | A12111 | |
| 苯丙氨酸 | Acros Organics | 63-91-2 | |
| 脯氨酸 | Alfa Aesar | A10199 | |
| 丝氨酸 | Alfa Aesar | A11179 | |
| 苏氨酸 | Acros Organics | 72-19-5 | |
| 色氨酸 | Acros Organics | 73-22-3 | 用 0.2 M NaOH 配制 |
| 酪氨酸 | Alfa Aesar | A11141 | 用 1.0 M NaOH 配制 |
| 缬氨酸 | Acros Organics | 72-18-4 | |
| 抗生素 | |||
| 羧苄青霉素 | Alfa Aesar | J6194903 | |
| 当日配制的储备液 | |||
| CaCl2 · 2H2O | Fisher Chemical | C79-500 | |
| 右旋糖(D-葡萄糖) | Fisher Chemical | 50-99-7 | |
| 1,2-二油酰基-sn-甘油-3-磷酸胆碱(DOPC) | Fisher(Avanti Polar Lipids) | 4235-95-4 | 在 37 °C 下振荡 15–20 分钟以蒸发氯仿 |
| FeSO4 · 7H2O | Acros Organics | 7782-63-0 | 该储备液浓度为 1 mg/mL,必须新鲜配制 |
| L-乳酸 | Alfa Aesar | L13242 | 用 NaOH 将储备液 pH 调至 7 |
| MgCl2 · 6H2O | Acros Organics | 7791-18-6 | |
| N-乙酰葡糖胺 | TCI | A0092 | |
| 已配制的固体 | |||
| 猪黏蛋白 | Sigma | M1778-100G | 紫外灭菌 |
| 鲑鱼精子 DNA | Invitrogen | 15632-011 | |
| 染料 | |||
| 碘化丙啶 | Alfa Aesar | J66764MC | |
| 盐类 | |||
| K2SO4 | Alfa Aesar | A13975 | |
| KCl | Alfa Aesar | J64189 | 将固体直接加入缓冲基础液中 |
| KNO3 | Acros Organics | 7757-79-1 | |
| MOPS | Alfa Aesar | A12914 | 将固体直接加入缓冲基础液中 |
| NaCl | Fisher Chemical | S271-500 | 将固体直接加入缓冲基础液中 |
| Na2HPO4 | RPI | S23100-500.0 | |
| NaH2PO4 | RPI | S23120-500.0 | |
| NH4Cl | Acros Organics | 12125-02-9 | 将固体直接加入缓冲基础液中 |
| 耗材 | |||
| 锥形管(15 mL) | Olympus plastics | 28-101 | |
| 锥形管(50 mL) | Olympus plastics | 28-106 | |
| 带通气盖的培养管 | Olympus plastics | 21-129 | |
| 35 mm 四室玻璃底培养皿 | CellVis | NC0600518 | |
| LB 培养基(Luria Bertani 肉汤) | Genessee Scientific | 11-118 | |
| 磷酸盐缓冲液(PBS) | Fisher Bioreagents | BP2944100 | |
| 移液器吸头(p200) | Olympus plastics | 23-150RL | |
| 移液器吸头(p1000) | Olympus plastics | 23-165RL | |
| 刻度移液管(5 mL) | Olympus plastics | 12-102 | |
| 刻度移液管(25 mL) | Olympus plastics | 12-106 | |
| 刻度移液管(50 mL) | Olympus plastics | 12-107 | |
| 超纯水(无 RNase/DNase);纳米纯水 | Genessee Scientific | 18-194 | 表 1 中溶液配制使用纳米纯水 |
| 注射器(10 mL) | BD | 794412 | |
| 注射器(50 mL) | BD | 309653 | |
| 0.22 mm PES 注射器滤器 | Olympus plastics | 25-244 | |
| PS 比色皿(半微量) | Olympus plastics | 91-408 | |
| 软件 | |||
| Biorender | 用于制备图示 | ||
| FacsDiva6.1.3 | Becton Dickinson, San Jose, CA | ||
| Imaris | Bitplane | 版本 9.6 | |
| Zen Black | |||
| 设备 | |||
| FacsAriallu | Becton Dickinson, San Jose, CA | ||
| LSM 880 共聚焦激光扫描显微镜 | Zeiss |
参考文献
- Ramsay, K. A., et al. The changing prevalence of pulmonary infection in with fibrosis: A longitudinal analysis. Journal of Cystic Fibrosis. 16 (1), 70-77 (2017).
- Bessonova, L., et al. Data from the US and UK cystic fibrosis registries support disease modification by CFTR modulation with ivacaftor. Thorax. 73 (8), 731-740 (2018).
- Breuer, O., et al. Changing prevalence of lower airway infections in young children with cystic fibrosis. American Journal of Respiratory and Critical Care Medicine. 200 (5), 590-599 (2019).
- O'Donnell, J. N., Bidell, M. R., Lodise, T. P. Approach to the treatment of patients with serious multidrug-resistant Pseudomonas aeruginosa infections. Pharmacotherapy. 40 (9), 952-969 (2020).
- Bjarnsholt, T., et al. The in vivo biofilm. Trends in Microbiology. 21 (9), 466-474 (2013).
- Darch, S. E., et al. Spatial determinants of quorum signaling in a Pseudomonas aeruginosa infection model. Proceedings of the National Academy of Sciences of the United States of America. 115 (18), 4779-4784 (2018).
- Zhu, K., Chen, S., Sysoeva, T. A., You, L. Universal antibiotic tolerance arising from antibiotic-triggered accumulation of pyocyanin in Pseudomonas aeruginosa. PLoS Biology. 17 (12), 3000573(2019).
- Ciofu, O., Tolker-Nielsen, T. Tolerance and resistance of Pseudomonas aeruginosa biofilms to antimicrobial agents-how P. aeruginosa can escape antibiotics. Frontiers in Microbiology. 10, 913(2019).
- Turner, K. H., Wessel, A. K., Palmer, G. C., Murray, J. L., Whiteley, M. Essential genome of Pseudomonas aeruginosa in cystic fibrosis sputum. Proceedings of the National Academy of Sciences of the United States of America. 112 (13), 4110-4115 (2015).
- Darch, S. E., et al. Phage inhibit pathogen dissemination by targeting bacterial migrants in a chronic infection model. MBio. 8 (2), 00240(2017).
- Jorth, P., et al. Regional isolation drives bacterial diversification within cystic fibrosis lungs. Cell Host & Microbe. 18 (3), 307-319 (2015).
- Palmer, K. L., Aye, L. M., Whiteley, M. Nutritional cues control Pseudomonas aeruginosa multicellular behavior in cystic fibrosis sputum. Journal of Bacteriology. 189 (22), 8079-8087 (2007).
- Davies, D. G., et al. The involvement of cell-to-cell signals in the development of a bacterial biofilm. Science. 280 (5361), 295-298 (1998).
- Hartmann, R., et al. Quantitative image analysis of microbial communities with BiofilmQ. Nature Microbiology. 6 (2), 151-156 (2021).
- Stacy, A., et al. Bacterial fight-and-flight responses enhance virulence in a polymicrobial infection. Proceedings of the National Academy of Sciences of the United States of America. 111 (21), 7819-7824 (2014).
访问受限。请登录或开始试用以查看此内容。
重印与许可
