本文展示了如何使用三明治式冷冻装置对生物样本(包括细菌、酵母、培养细胞、分离细胞、动物和人体组织以及病毒)进行快速冷冻,同时还展示了快速冷冻后制备样本以进行超薄切片的方法。
本文内容
摘要
摘要
化学固定法已被用于观察细胞和组织的超微结构。然而,该方法不能充分保存细胞的超微结构,通常会观察到人工假象以及细胞内容物的流失。快速冷冻是保存细胞结构的更优替代方法。通过对活酵母或细菌进行夹心冷冻,随后进行冷冻置换,可用于观察细胞精细的天然超微结构。最近,也已采用夹心冷冻固定了戊二醛的培养细胞或人体组织,以揭示细胞和组织的超微结构。
迄今为止,这些研究均使用手工制作的三明治式冷冻装置进行,限制了其在其他实验室中的应用。最近已研制出一种新型的三明治式冷冻装置,并已实现商业化供应。本文介绍了如何使用该三明治式冷冻装置对生物样品(包括细菌、酵母、培养细胞、分离细胞、动物和人体组织以及病毒)进行快速冷冻。同时展示了快速冷冻后样品的超薄切片制备方法,以及冷冻置换、树脂包埋、块面修整、超薄切片切割、切片捞取、染色和载网支持膜覆盖等操作步骤。
引言
电子显微镜是研究细胞超微结构的有力工具。传统的化学固定结合脱水方法已被用于观察细胞和组织的超微结构。然而,该方法不能充分保存细胞的超微结构,通常会观察到人工假象以及细胞内容物的流失。细胞和组织的快速冷冻与冷冻置换是更优的细胞结构保存替代方法。
目前已有三种主要方法用于快速冷冻细胞1:1)浸入式冷冻,即将样品浸入冷却的冷冻剂(如丙烷)中,该方法自20世纪50年代初起即已使用2;2)冷金属块冷冻,即将细胞和组织迅速撞击到用液氮或液氦冷却的金属块上3,4;3)高压冷冻,即在高压条件下使用液氮对细胞和组织进行冷冻5,6,7。
三明治冷冻是一种浸入式冷冻技术,通过将薄的生物材料夹在两个铜盘之间,然后迅速浸入液态丙烷中实现快速冷冻8,9,10。该方法利用具有良好导热性的金属从样品两侧同时进行快速冷却,使极薄的样品(厚度仅为几微米)在低温介质中迅速降温。因此,该方法能够高效地从样品中导出热量,从而在不产生冰晶损伤的情况下稳定地冷冻细胞。对活酵母和细菌细胞进行三明治冷冻后,再进行冷冻置换,可揭示细胞的天然超微结构10,11,12,13,14,15,16。
最近发现,该方法可用于保存经戊二醛固定的微生物的清晰细胞图像17,18,19,20,21,22,23,24、培养细胞25,26,27以及人源细胞和组织1,28。尽管这些研究此前均使用自制的夹心式冷冻装置完成29,在其他实验室中的推广应用受到限制,但一种新型夹心式冷冻装置(SFD)已被研制成功28,并已实现商业化供应。
本文介绍了如何使用SFD对生物样本进行快速冷冻,包括细菌、酵母、培养细胞、分离细胞、动物和人体组织以及病毒。同时展示了快速冷冻后用于超薄切片的样本制备方法,以及冷冻置换、树脂包埋、块段修整、超薄切片切割、切片收集、染色和载网支持膜覆盖等操作步骤。
方案
注意:本研究涉及人体样本的方案已获得千叶大学医学研究生院生物医学研究伦理委员会批准(编号3085)。四氧化锇是一种危险化学品,操作时必须佩戴手套并在通风橱中进行。图1展示了三明治冷冻装置及所需工具28。图2展示了进行三明治冷冻实验所需的材料。玻璃小瓶中装有含四氧化锇的丙酮溶液,于-80°C保存直至使用(图2B)。铜盘直径为3 mm,无孔,一侧标有字母,可商业购买(图2C)。
1. 细胞悬液的快速冷冻以进行冷冻置换
注意:整个操作流程如图3所示。
- 细胞
- 使用细菌、酵母的细胞悬液(图2A)、培养的细胞以及分离的细胞用于三明治冷冻。
注意:可使用活细胞和戊二醛固定的细胞28.
- 使用细菌、酵母的细胞悬液(图2A)、培养的细胞以及分离的细胞用于三明治冷冻。
- 液态丙烷的制备
注意:操作液氮时需佩戴防冻手套和护目镜。由于丙烷具有爆炸性,应避免在同一房间内使用明火,并保持窗户敞开。- 用液氮填充SFD的液氮容器(图 4A)。使用细喷嘴通入丙烷气体,将液态丙烷容器中充满液态丙烷(图4B, C)。通过使用冷却的金属棒来加速丙烷的固化(图1 和 图4D,E).
- 铜盘的制备
- 将铜片放置在载玻片上,无字面朝上(图2D)并在10 Pa、400伏、1 mA条件下进行30秒辉光放电处理(图4F,G使用离子溅射仪使圆盘表面具有亲水性30.
- 细胞悬液的夹心法与浸入式冷冻
- 将细胞悬液转移至2 mL离心管中(图 5A) 并在 2,900 × g 室温下持续10秒(图5B,C). 移除上清液,并重悬沉淀以获得浓稠的悬浮液(见讨论部分)。
- 将少量细胞悬液(约 0.02 µL)置于铜盘上图5D- F),用另一片铜片覆盖图 5G),并用镊子夹起圆盘(图 5H).
注意:为测量约 0.02 µL 的细胞悬液,先在体视显微镜下观察 0.1 µL 的悬液液滴,并将其分割为 1/5 大小的微滴th 该体积的 - 用细金属棒在固体丙烷中心挖一个凹穴图 5I)。将镊子放入冷冻装置(SFD)中,并通过按压装置的注射按钮迅速冷冻图5J,K).
注意:应避免使样本干燥,并防止两个圆盘完全重叠放置(否则下一步中将难以分离)。
- 动物和人体组织的夹心法与骤冷冷冻
- 使用经2.5%戊二醛-0.1 M磷酸盐缓冲液(pH 7.4)固定的动物和人类组织(约0.5 mm × 0.5 mm × 1.5 mm)图6A,B)。在体视显微镜下用剃刀片将样品切成0.1至0.2 mm厚的切片(图6C,D).
- 在铜盘上放置一小滴(约 0.02 µL)戊二醛溶液图6E,F)。然后,用镊子将一块组织放置在铜盘的戊二醛上(图6G,H)并用另一片铜盘覆盖图6I-K).
- 使用SFD中的熔融丙烷快速冷冻带有组织的圆盘,具体操作如第1.4节所述(图 5J,K).
注意:由于戊二醛是一种危险化学品,操作时应在通风橱内佩戴手套。将组织置于铜盘上时,不得用缓冲液冲洗,而应保持其浸泡在戊二醛溶液中,因为戊二醛具有抗冻作用。1.
- 使用经2.5%戊二醛-0.1 M磷酸盐缓冲液(pH 7.4)固定的动物和人类组织(约0.5 mm × 0.5 mm × 1.5 mm)图6A,B)。在体视显微镜下用剃刀片将样品切成0.1至0.2 mm厚的切片(图6C,D).
- 乙酸锇丙酮冷冻置换
- 将圆盘转移至工作浴中的液氮中(图7A,B)。使用浸在液氮中冷却的镊子,将圆盘彼此分离,以暴露样本(图7C-).
- 将带有细胞的圆片放入玻璃小瓶中(图7F) 加入1 mL含有2%四氧化锇的丙酮溶液图2B) 已置于液氮中并凝固的(图4H).
- 将圆片转移至超低温冰箱中,在 -80°C 下保存 2-4 天,以进行细胞的冷冻置换(图3)。将使用过的镊子浸泡在室温水中以使其升温(图7G用于以下标本的冷冻。
注意:用于处理样品的镊子应保持温暖(室温),因为冷的镊子可能导致样品在快速冷冻前结冰,从而形成冰晶。
- 样品复温与包埋
- 将样本逐渐恢复至室温(在 -20°C 下放置 2 小时,4°C 下放置 2 小时,室温下放置 15 分钟) 图3 和 图8A),并将圆盘转移至装有1 mL丙酮的2 mL塑料管中(图3 和 图8B,C).
- 使用搅拌器在一次性塑料容器中混合试剂来制备环氧树脂图8D-F).
- 在室温下,将步骤1.7.1中的丙酮依次更换为30%树脂(溶于丙酮)、60%树脂和90%树脂,每种浓度各处理1小时。随后,在37°C条件下将90%树脂更换为100%树脂,过夜处理。最后,将样品包埋于100%树脂中图8G- J)置于硅胶包埋模具中,在60°C下聚合24 h(图3).
注意:在整个操作过程中,样品应始终保持附着在铜盘上(以便于切片)。在包埋过程中不建议使用旋转或摇动装置,因为这些装置对树脂渗透入细胞的作用甚微。此外,装置产生的振动有时会导致样品从铜盘上脱落。在37°C下孵育过夜可利用热能加速树脂进入细胞(由于树脂不含任何促进剂,因此不会发生聚合)。
- 样本块修整
- 从硅胶包埋模具中取出已聚合的块状物(图9A)。在包埋块上写下标本编号(图9B).
- 用刀片从模块上取下铜盘(图9C,D)并使用超声修块刀片将包埋在块表面的样本修剪至 0.7 mm × 0.7 mm图9E)和剃刀刀片(图9F- H在体视显微镜下31.
- 将样品块置于超薄切片机的样品夹持器中(图9I)并使用金刚石修块刀平稳地切割样本块的表面(图9J,K).
- 切取超薄切片
- 从超薄切片机上取下样品块图10A)31,将其置于体视显微镜下,并用剃须刀片进一步修整至0.2 mm × 0.3 mm(图10B,C).
- 在网格上涂抹氯丁橡胶以使其具有粘性(图10D将样品块放回超薄切片机,用塑料罩盖住超薄切片机(图10E)31,切取50–70 nm厚的切片(图10F- H).
- 使用循环获取各部分图10I),将其装载到经氯丁烯处理的300或400目铜网上,并干燥(图10J).
- 切片染色及透射电子显微镜观察
- 将带有切片的载网置于半片硅胶管的凹槽中图11A)31,分别用醋酸铀溶液和柠檬酸铅溶液染色,各浸泡3分钟(图11B-)32.
- 对于酵母和真菌样本,将载网置于滤纸(4 mm × 4 mm)上,用镊子夹取,并覆盖等离子体聚合萘膜33 在水面上图11F,G)。将载网插入电子显微镜中,在100 kV下观察(图11H,I).
2. 病毒和大分子的快速冷冻
- 液态乙烷的制备
注意:操作液氮时应佩戴低温手套和护目镜。由于乙烷具有爆炸性,操作时应避免在同一房间内使用明火,并保持窗户敞开。选用乙烷的原因是其在电子显微镜中会蒸发,而丙烷则不会。- 将SFD的液氮容器中注入液氮,并通过细喷嘴向液态乙烷容器中通入乙烷气体以填充液态乙烷。
- 微栅的制备及样品的快速冷冻
- 使用离子溅射仪对微栅进行辉光放电处理(10 Pa,400 V,1 mA),使其两面均具有亲水性30。
- 将微栅装入SFD装置,在微栅上滴加2 µL病毒或大分子悬浮液(1 mg蛋白/mL),用滤纸吸除多余液体,然后按下装置的注射按钮,迅速冷冻微栅。
- 冷冻微栅在低温转移杆上的装载及电子显微镜下的观察
- 在液氮环境中转移冷冻后的微栅,将其装入预先冷却至液氮温度的低温转移杆中,并在低温条件下于电子显微镜下进行观察34。
结果
悬浮液中的微生物活细胞经离心收集后,夹于两个铜盘之间,采用SFD快速冷冻,随后进行冷冻置换,环氧树脂包埋,超薄切片,染色,并按照上文所述步骤在电子显微镜下观察。图12展示了大肠杆菌(Escherichia coli,细菌,图12A、B)16和酿酒酵母(Saccharomyces cerevisiae,酵母,图12C)15的超薄切片。请注意,图像非常清晰,呈现出自然的形态结构。
收集经戊二醛固定的培养细胞和分离的动物细胞悬浮液,采用SFD快速冷冻、冷冻置换,并按照上述方法在电子显微镜下观察。图13展示了培养细胞的超薄切片(图13A-C)1,28以及从小鼠腹腔分离的细胞(图13D)28。图14展示了人皮肤(图14A-D)和血沉棕黄层(图14E)1的超薄切片。请注意,这些图像非常清晰,且呈现出自然的形态结构。图15展示了采用SFD快速冷冻并经冷冻电子显微镜观察的乙型肝炎病毒核心颗粒34。与其它细胞类似,这些图像也非常清晰,并呈现出自然的形态。

图 1:三明治式冷冻装置28 及所需工具。 请点击此处查看该图的放大版本。

图2:进行三明治冷冻实验所需的材料。(A)样品:Saccharomyces cerevisiae(酵母)的光学显微图像。比例尺 = 10 µm。(B)玻璃小瓶(10 mL),内含1 mL含2%四氧化锇的丙酮溶液。(C)铜盘,左侧为无字母表面,右侧为有字母表面。比例尺 = 3 mm。扫描电子显微镜图像。(D)将无字母面朝上的铜盘用双面胶带固定在载玻片上(*)。比例尺 = 3 mm。(E)双刃剃刀和断裂的双刃剃刀,用于切割动物和人体组织;单刃剃刀,用于修整包埋块;切碎板,用于切割动物和人体组织。(F)镊子,末端包裹挤出的聚苯乙烯泡沫,以保护手指免受低温伤害。请点击此处查看该图的放大版本。

图3:使用夹心冷冻法制备细胞悬液样本。缩写:r.t. = 室温。请点击此处查看该图的放大版本。

图 4:液态丙烷、铜圆盘和固定剂的制备。(A)将液氮(箭头)倒入夹心式冷冻装置的液氮容器中。(B)通过细喷嘴将丙烷气体导入液态丙烷容器中。(C)液态丙烷(箭头)。(D)使用金属棒(箭头)冷却液态丙烷,以加速其固化。(E)已固化的丙烷(箭头)。(F)离子溅射仪(箭头),用于通过辉光放电使铜圆盘具有亲水性。(G)辉光放电。(H)将玻璃小瓶置于工作浴的液氮中。请点击此处查看该图的放大版本。
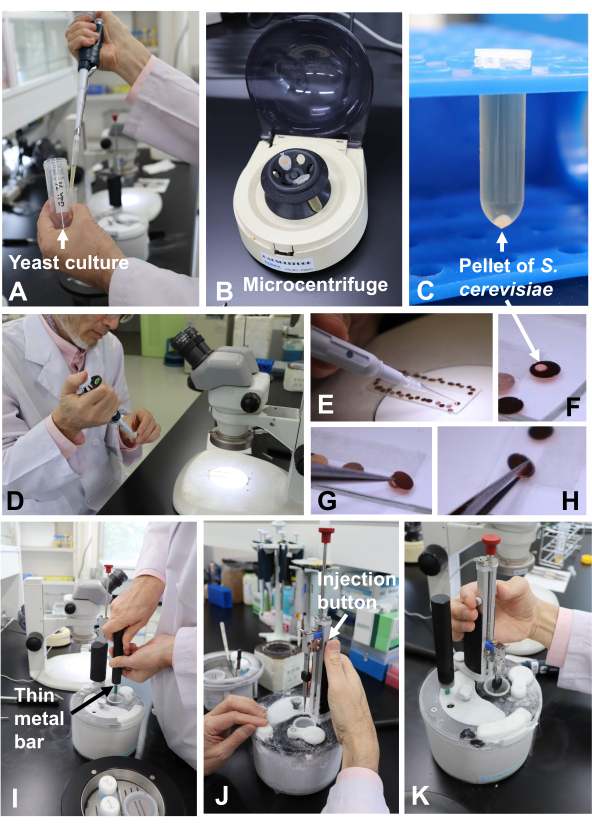
图5使用夹心式冷冻装置快速冷冻细胞悬液(酵母) (A) 将酵母培养物转移至离心管中。B) 微型离心机。 (C) 沉淀物 Saccharomyces cerevisiae 在离心管中(箭头所示)。(D) 使用移液器将样本从离心管中转移。E) 将样品置于铜盘上。F) 铜盘上的一小滴样品(箭头所示)。G用另一块铜盘覆盖样品。H用镊子夹起这两个圆盘。I) 使用细金属棒在固体丙烷中制备凹穴。J) 通过按压注射按钮对样品进行 plunge 冷冻。K) 冷冻已完成。 请点击此处以查看此图的放大版本。
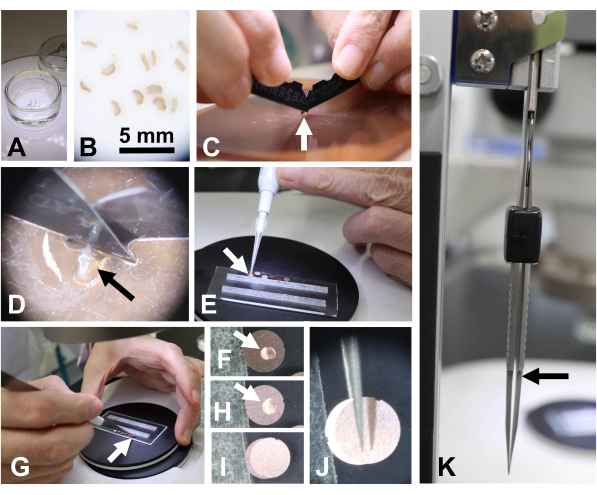
图6:人组织样本(皮肤)的制备。(A,B)置于培养皿中经戊二醛固定的皮肤组织。比例尺 = 5 mm。(C,D)使用两把双面刀片在切碎板上对组织(箭头所示)进行切割。(E,F)在铜盘上滴加少量戊二醛溶液(箭头所示)。(G,H)使用镊子将一块皮肤组织放置于铜盘上。(I)使用另一个铜盘覆盖带有皮肤组织的铜盘。(J)用镊子夹起夹心状的铜盘。(K)用镊子轻轻夹持夹心铜盘。注意镊子尖端之间留有间隙(箭头所示),以避免压碎组织。请点击此处查看该图的放大版本。
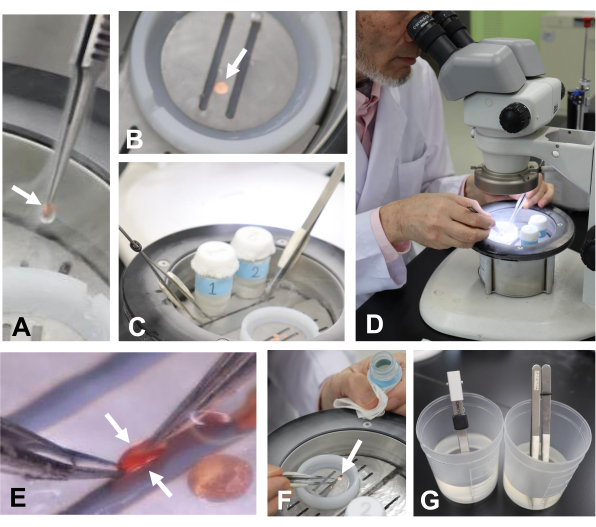
图7:将样品转移至液氮并分离铜盘。(A)将铜盘(箭头)转移至工作浴中的液氮内。(B)液氮中的铜盘(箭头)。(C)将镊子置于工作浴的液氮中进行冷却。(D、E)使用镊子分离铜盘(箭头)。(F)用镊子将铜盘(箭头)转移至玻璃小瓶中。(G)将镊子在水中预热,以便用于下一个样品的冷冻。 请点击此处查看该图的放大版本。
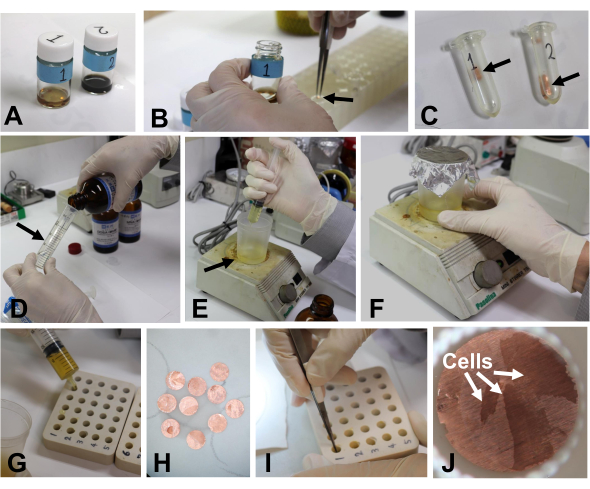
图8:样本复温与包埋。(A)室温下玻璃小瓶中的样本。(B)用镊子将载网(箭头)转移至2 mL塑料离心管中。(C)塑料离心管中盛有丙酮及铜载网(箭头)。(D)使用注射器(箭头)量取树脂。(E)将树脂转移至一次性杯中(箭头)。(F)使用搅拌器混合树脂。(G)在硅胶包埋模具的孔洞中加入少量树脂。(H)用滤纸去除载网中的多余树脂。(I、J)将带有样本的铜载网(样本面朝上)放置于包埋模具孔洞底部。请点击此处查看该图的放大版本。
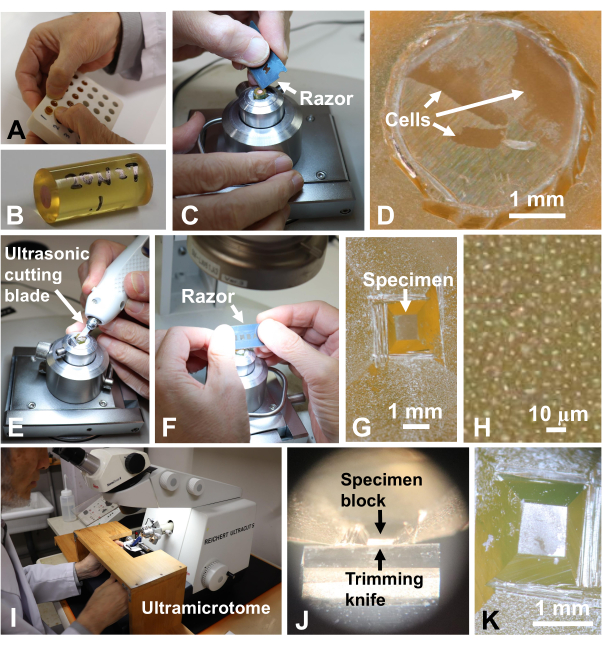
图9修整样本块。 (A) 从包埋模具中取出聚合后的组织块。B) 在组织块上标记标本编号。C, D用剃刀将铜盘从模块上取下。(比例尺适用于(D)= 1 毫米。E-G) 使用超声切割刀片和剃刀片对样本进行修整。比例尺适用于(G) = 1 mm。H) 高倍放大(G)。单个亮点即为一个细胞。细胞以单层形式嵌入10比例尺 = 10 µm. (I-K) 使用金刚石修块刀将样品块表面修平。比例尺适用于(K) = 1 mm。 请点击此处以查看此图的放大版本。

图10:超薄切片的制备。(A)将样品块从超薄切片机中取出31。(B、C)使用剃刀进一步修整样品。(C)标尺 = 0.5 mm。(D)在载网上涂抹氯丁橡胶以使其固定。(E)用塑料覆盖超薄切片机,以避免超薄切片过程中气流干扰。(F)在金刚石刀的舟状槽中加水。(G、H)切取厚度为70 nm的超薄切片。(H)标尺 = 1 mm。(I、J)使用环状工具捞取切片,随后进行干燥。请点击此处查看此图的放大版本。

图11:切片染色。(A)将载网置于半片硅胶管的凹槽中。(B)将载网浸入醋酸铀溶液中进行染色。(C)使用自封性蜡膜收集用过的醋酸铀溶液。(D)用流水冲洗载网,(E)然后浸入柠檬酸铅溶液中。(F)将等离子体聚合的萘膜漂浮于水面,并(G)用于覆盖放置在4 mm × 4 mm滤纸上的载网。(H)将载网装入样品 holder 中,(I)并在电子显微镜下观察。请点击此处查看此图的放大版本。
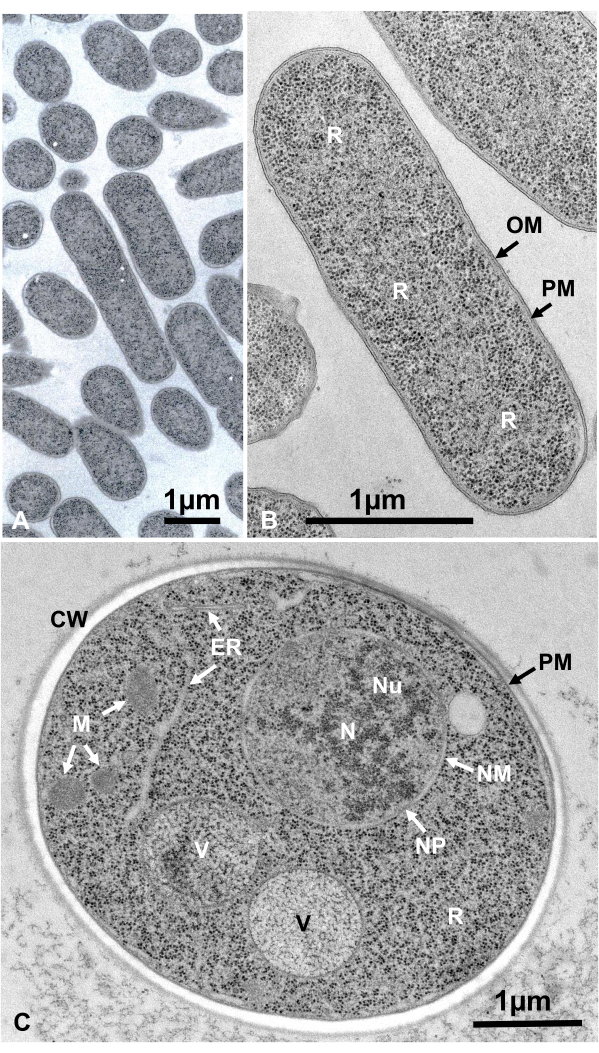
图12:Escherichia coli(细菌,A,B)和 Saccharomyces cerevisiae(酵母,C)的超薄切片。(A)可见样品被均匀致密地包埋,无任何变形。 (B, C)膜结构呈现清晰平滑的形态,核糖体足够清晰,可逐个计数16。 (C)酵母细胞核和液泡呈真正的圆形,可能反映了其天然形态。线粒体基质呈电子致密状,可能是通过快速冷冻固定的活细胞的特征。比例尺 = 1 µm。 缩写:CW = 细胞壁;ER = 内质网;NM = 核膜;NP = 核孔;OM = 外膜;PM = 质膜;R = 核糖体;N = 细胞核;M = 线粒体。 (B)经许可转载自 Yamada 等人16。 请点击此处查看本图的放大版本。
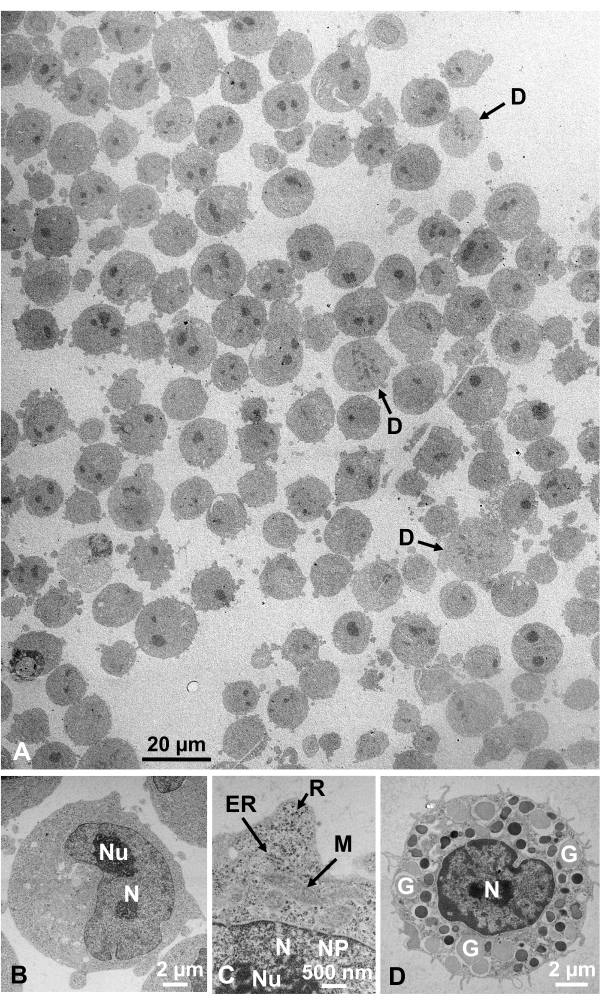
图13:超薄切片。(A-C)K562 培养细胞。(D)来自小鼠的分离肥大细胞。(A)请注意,样品包埋致密且均匀,无变形。比例尺 = 20 µm。(B-D)高倍镜下,细胞核、核仁、核膜、核孔、内质网、线粒体、核糖体和颗粒清晰可见。比例尺 = 2 µm(B)、500 nm(C)、2 µm(D)。缩写:N = 细胞核;Nu = 核仁;NM = 核膜;NP = 核孔;ER = 内质网;M = 线粒体;R = 核糖体;G = 颗粒;D = 分裂细胞。(A)经许可转载自 Yamaguchi 等人1。(B-D)经许可转载自 Yamaguchi 等人28。请点击此处查看该图的放大版本。
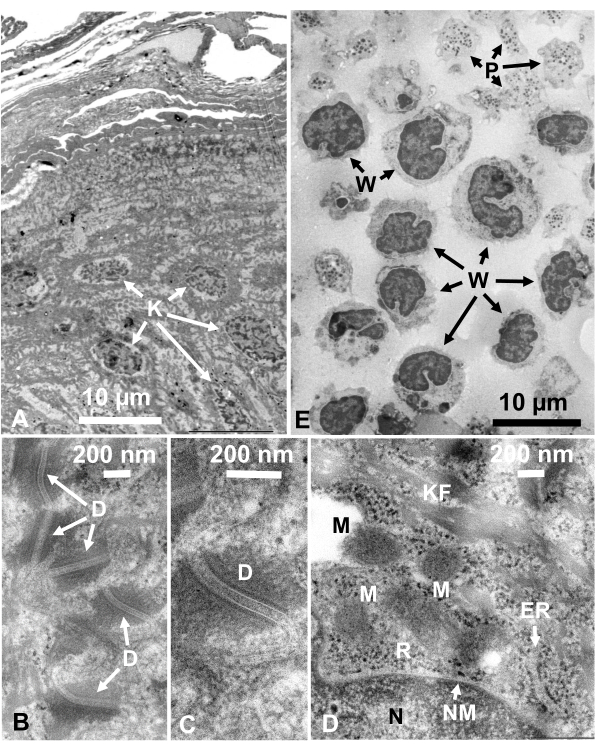
图14:超薄切片。 (A-D)人皮肤组织和(E)血沉棕黄层。注意,尽管切片非常薄(50 nm),组织与细胞图像仍清晰自然,对比度良好(A-E)。线粒体基质呈现致密外观,类似于快速冷冻活细胞中的致密线粒体基质(D)。标尺 = 10 µm(A, E),200 nm(B-D)。缩写:D = 桥粒;ER = 内质网;K = 角质形成细胞;KF = 角蛋白纤维;M = 线粒体;N = 细胞核;NM = 核膜;P = 血小板;R = 核糖体;W = 白细胞。经许可转载自 Yamaguchi 等人28。 请点击此处查看该图的放大版本。
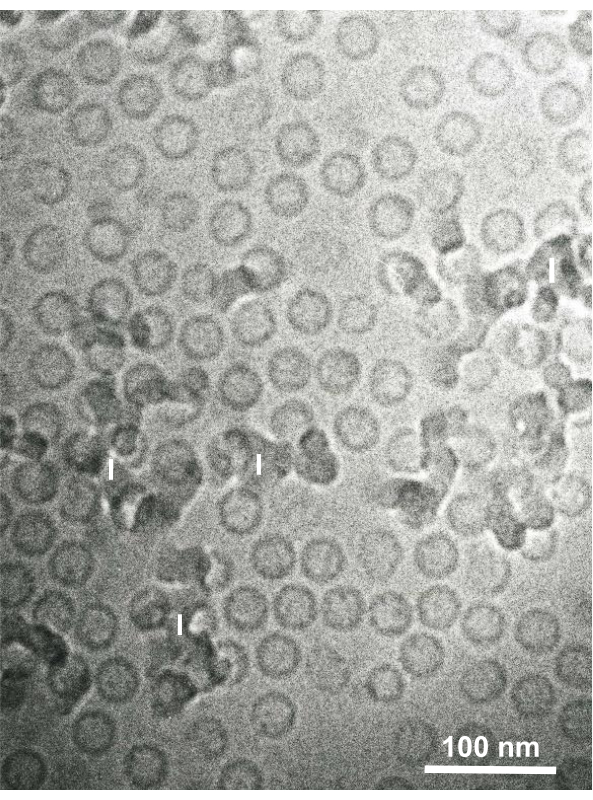
图15:使用三明治式冷冻装置以液态乙烷快速冷冻的乙型肝炎病毒(HBV)核心颗粒,并通过冷冻电子显微镜观察。 球形中空颗粒为HBV核心颗粒。比例尺 = 100 nm。缩写:HBV = hepatitis B virus;I = ice。经许可转载自Yamaguchi等28。 请点击此处查看此图的放大版本。
讨论
以下讨论基于36年来的研究,共进行了120多次夹心法冷冻-冷冻置换实验(涉及1000多个样品)和70多次浸入式冷冻-冷冻电镜实验(涉及75个以上样品)。
夹心冷冻法获得良好冷冻效果的成功率
获得良好冷冻效果的成功率取决于样品类型。Saccharomyces cerevisiae(酵母)细胞在YPD培养基(1%酵母提取物、2%蛋白胨、2%葡萄糖)中培养时,几乎可达到100%的良好冷冻成功率,且无冰晶形成10,11,15,35,36。其他酵母种类,包括Shizosaccharomyces37,38,39、Cryptococcus14,40,41,42,43,44,45、Exophiala13,41,46,47,48,49、Fusarium50,51,52、Aureobasidium53、Candida54,55、Fellomyces56、Aspergillus57 和Trichosporon,也表现出良好的冷冻效果。细菌,包括Mycobacterium58,59和E. coli16,同样 表现出良好的冷冻效果。培养的细胞以及分离的动物细胞,无论是活细胞还是经戊二醛固定的细胞,均能实现良好冷冻1,25,26,27,60。将动物和人类组织经戊二醛固定后切成0.1至0.2 mm厚度的薄片,大多数情况下也能实现良好冷冻1,28。
良好冷冻的条件
仅使用处于适当生长阶段和状态的细胞。培养中的细胞应处于对数生长期。将浓缩样品的极少量细胞悬液(对于S. cerevisiae,约为 0.02 µL 的 3-5 × 10⁹ 个细胞/mL)加在铜盘上。经戊二醛固定的动物或人体组织切片也应非常小(最好为 0.3 mm × 0.3 mm × 0.1 mm)。由于切割 0.1 mm 厚的组织切片较为困难,可切取多片组织并挑选出薄而半透明的切片。操作应迅速但谨慎,避免样品干燥。使用镊子夹取堆叠的铜盘时,切勿用力过猛,以防压碎细胞和组织。样品装载是成功冷冻最关键的步骤,其所需条件与高压冷冻中实现良好冷冻的条件相同。读者可参考 McDonald61 所撰写的优秀综述。
其他应用
本文展示了细菌、酵母、培养细胞、分离的动物细胞、人体组织以及病毒颗粒的电子显微照片。我们观察到戊二醛固定的海洋藻类具有良好的冷冻效果。然而,活体淡水绿藻的细胞结构因冰晶形成而遭到破坏。将细胞与20%牛血清白蛋白(BSA)混合后,可实现超微结构的良好保存,且无冰晶损伤。在保存蘑菇柄细胞的超微结构方面,使用20% BSA同样具有积极作用。目前正在进行将20% BSA应用于植物细胞和组织冷冻保存的实验。尽管尚未尝试对夹心冷冻-冷冻置换样品进行扫描电镜观察,但此前已有对保存良好的细胞结构进行观察的报道9。
关于三明治冷冻法的说明
通过快速冷冻和冷冻置换活细胞,可最佳地观察细胞接近天然状态的超微结构。使用SFD时,将细胞厚度限制在≤30 µm可避免冰晶形成1。对于悬浮培养细胞的观察,用戊二醛固定组织通常能更好地保存细胞结构,因为戊二醛固定可使细胞结构更 rigid,防止活细胞在收集和离心过程中可能发生超微结构改变1。戊二醛固定还可将冷冻深度扩展至高达0.2 mm1,与高压冷冻(HPF)方法所达到的深度相当。因此,SFD可替代HPF设备用于动物和人体组织的深部冷冻。
由于戊二醛固定的组织可保存两年以上28,因此可以依据使用者的便利性进行夹心法冷冻。使用戊二醛固定组织还有助于组织切片,因为固定后的组织会变得更加坚硬。与高压冷冻仪不同,SFD可用于病毒在冷冻电子显微镜下的快速冷冻,也可用于细菌和真核细胞的冷冻。此外,与高压冷冻仪相比,SFD体积小、便于携带、成本较低,可被更多的实验室所配备。我们希望SFD的这些特点能够帮助更多实验室实现其研究目标28。
细胞自然形态的特征
如果细胞结构呈现以下外观,则表明其处于自然状态:外膜的膜结构(图12A、B)、质膜(图12B、C;图13A-D;以及图14E)、核膜(图12C、图13B-D 和 图14D-E)、线粒体(图12C、图13C 和 图14D)以及液泡(图12C)均呈现平滑的轮廓。细胞核和液泡几乎呈圆形(图12C)。核糖体显示清晰的电子致密结构,直径约为20 nm(图12B、C;图13C;以及图14D)。细胞质呈电子透明状态(图12B、C;图13C;以及图14D)。
戊二醛固定对细胞形态的影响
在夹心冷冻前,对动物或人类组织进行戊二醛固定,以获得无冰晶干扰的超微结构。该方法获得的显微图像极为清晰,与活体组织快速冷冻所获得的图像相似(图14)1。对酵母细胞、深海微生物及培养细胞的研究表明,超微结构的变形主要源于四氧化锇固定以及室温下乙醇脱水过程1,17,18,28。Small 还报道,尽管戊二醛固定不会破坏培养成纤维细胞中肌动蛋白的结构,但室温下使用四氧化锇固定以及丙酮或乙醇脱水会破坏肌动蛋白的组织结构62。
因此,应深入研究戊二醛固定对细胞形态的影响。Ohno 开发了一种在体冷冻固定方法,该方法在不中断血液供应的情况下迅速冷冻活体组织63。随后对组织进行冷冻置换并包埋于环氧树脂中,制备超薄切片进行观察。与化学固定-常规脱水法以及新鲜未固定组织的快速冷冻法所获得的结果相比,透射电镜图像显示,该方法所得到的组织超微结构最接近活体状态。因此,比较戊二醛固定-冷冻置换法(本研究方法)与在体冷冻固定-冷冻置换法所获得的超微结构,以评估戊二醛固定的影响,可能具有重要意义。
对环境的考虑及提高实验效率
我们使用 2 mL 塑料管进行树脂置换。每次置换步骤使用 1 mL 稀释后的树脂即可。每次实验后可将用过的塑料管丢弃。相比使用玻璃小瓶进行树脂置换后需清洗的步骤,这种方法可节省时间和劳力。此外,醋酸铀酰溶液可用于切片染色的重复使用32。染色完成后,醋酸铀酰溶液可保存并再次使用。由于醋酸铀酰是一种放射性物质,重复使用有助于避免产生废弃物,从而有利于环境保护。
等离子体聚合萘膜
等离子体聚合萘膜是一种通过辉光放电条件下对萘蒸气进行等离子体聚合而制备的三维交联碳膜33。该膜具有耐电子束轰击和耐化学腐蚀的特性,纯度高,对电子束透明,表面平整且呈非晶结构。因此,这种可商业获取的等离子体聚合萘膜性能优异,被推荐作为支持膜使用。
披露
作者声明无利益冲突。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 夹心式冷冻装置 | Marine works Japan, Ltd, Yokosuka, Japan | MW-SFD-01 | 含金属棒、细金属棒、镊子和工作浴 |
| 10 mL 玻璃小瓶 | - | 用于固定剂的闪烁计数瓶 | |
| 丙酮 | - | ||
| 四氧化锇 | Nisshin EM Co. Ltd., Tokyo | 3004 | 0.1 g |
| 超低温冰箱 | Sanyo Co. Ltd., Osaka | MDF-C8V1 | |
| 铜盘 | Nisshin EM Co. Ltd., Tokyo | - | 参见本文 |
| 载玻片 | - | ||
| 双面胶带 | - | ||
| 单刃剃须刀片 | Nisshin EM Co. Ltd., Tokyo | - | Feather, FAS-10 |
| 双刃剃须刀片 | Nisshin EM Co. Ltd., Tokyo | - | Feather, FA-10 |
| 碎屑板 | Nisshin EM Co. Ltd., Tokyo | 428 | |
| 镊子 | Nisshin EM Co. Ltd., Tokyo | - | 若干对 |
| 带聚苯乙烯泡沫的镊子 | - | 一对 | |
| 戊二醛 | Nisshin EM Co. Ltd., Tokyo | 3052 | |
| 液氮 | - | ||
| 丙烷气体 | - | 冷冻剂 | |
| 离子溅射仪 | Hitachi high technologies, Tokyo | Hitachi E102 | |
| 微量移液器 | - | 用于 1 mL、200 μL 和 2 μL | |
| 微量离心机 | Tomy digital biology Co. Ltd., Tokyo | Capsulefuge, PMC-060 | |
| 体视显微镜 | Nikon Co. Ltd., Tokyo et al. | - | SMZ 645 |
| 体视显微镜用LED照明 | Nikon Co. Ltd., Tokyo et al. | SM-LW 61 Ji | |
| 一次性塑料容器 | - | 50 mL 和 200 mL | |
| 乙烷气体 | - | 冷冻剂 | |
| 2 mL Eppendorf管 | - | 用于包埋 | |
| 一次性塑料注射器 | - | 1 mL、5 mL、10 mL 和 20 mL | |
| 磁力搅拌器 | - | ||
| 环氧树脂 | Nisshin EM Co. Ltd., Tokyo | 340 | Quetol 812 套装 |
| 硅胶包埋模具 | Nisshin EM Co. Ltd., Tokyo | 4217 | 直径 7 mm,深度 13 mm |
| 培养箱 | - | 用于 37 °C 和 60 °C | |
| 修块台 | Sunmag Co. Ltd., Tokyo | - | 带倾斜机构,参见本文 |
| 修块台用LED照明 | Sunmag Co. Ltd., Tokyo | - | 参见本文 |
| 超声修块刀 | Nisshin EM Co. Ltd., Tokyo | 5240 | EM-240,参见本文 |
| 超薄切片机 | Leica Microsystems, Vienna | Ultracut S | |
| 载网 | Nisshin EM Co. Ltd., Tokyo | 2633, 2634 | 300 目,400 目 |
| 0.5% 氯丁橡胶 W 溶液 | Nisshin EM Co. Ltd., Tokyo | 605 | |
| Perfect Loop | Nisshin EM Co. Ltd., Tokyo | 2351 | 用于捞取切片 |
| 切片染色用半管 | Nisshin EM Co. Ltd., Tokyo | 463 | 参见本文 |
| Super Support Film | Nisshin EM Co. Ltd, Tokyo | 647 | |
| 注射器滤器 | Toyo Roshi Kaisha, Ltd., Tokyo | DISMIC-03CP | 醋酸纤维素,0.45 μm |
| 透射电子显微镜 | JEOL Co. Ltd., Tokyo | JEM-1400 |
参考文献
- Yamaguchi, M., et al. Good ultrastructural preservation of human tissues and cultured cells by glutaraldehyde fixation, sandwich freezing, and freeze-substitution. Cytologia. 85 (1), 15-26 (2020).
- Gilkey, J. C., Staehelin, L. A. Advances in ultrarapid freezing for the preservation of cellular ultrastructure. Journal of Electron Microscopy Technique. 3 (2), 177-210 (1986).
- Van Harreveld, A., Crowell, J. Electron microscopy after rapid freezing on a metal surface and substitution fixation. The Anatomical Record. 149, 381-385 (1964).
- Aoki, N., Ito, M., Ejiri, S., Ozawa, H. Ultrastructure of human skin by a rapid freezing technique: structural preservation and antigenicity. Journal of Investigative Dermatology. 102 (3), 354-361 (1994).
- Moor, H. Theory and practice of high pressure freezing. Cryotechniques in Biological Electron Microscopy. Steinbrecht, R. A., Zierold, K. , Springer. Berlin, Heidelberg. 175-191 (1987).
- McDonald, K. L., Morphew, M., Vertkade, P., Muller-Reichert, T. Recent advances in high-pressure freezing: Equipment-and specimen-loading methods. Methods in Molecular Biology. 369, 143-173 (2007).
- Sosinsky, G. E., et al. The combination of chemical fixation procedures with high pressure freezing and freeze substitution preserves highly labile tissue ultrastructure for electron tomography applications. Journal of Structural Biology. 161 (3), 359-371 (2008).
- Costello, M. J. Ultra-rapid freezing of the biological samples. Scanning Electron Microscopy. , Pt 2 361-370 (1980).
- Baba, M., Osumi, M. Transmission and scanning electron microscopic examination of intracellular organelles in freeze-substituted Kloeckera and Saccharomyces cerevisiae yeast cells. Journal of Electron Microscopy Technique. 5 (3), 249-261 (1987).
- Yamaguchi, M., Okada, H., Namiki, Y. Smart specimen preparation for freeze-substitution and serial ultrathin sectioning of yeast cells. Journal of Electron Microscopy. 58 (4), 261-266 (2009).
- Yamaguchi, M., et al. Electron microscopy of hepatitis B virus core antigen expressing yeast cells by freeze-substitution fixation. European Journal of Cell Biology. 47 (1), 138-143 (1988).
- Baba, M., Takeshige, K., Baba, N., Ohsumi, Y. Ultrastructural analysis of the autophagic process in yeast: detection of autophagosomes and their characterization. Journal of Cell Biology. 124 (6), 903-913 (1994).
- Yamaguchi, M., et al. The spindle pole body duplicates in early G1 phase in a pathogenic yeast Exophiala dermatitidis: an ultrastructural study. Experimental Cell Research. 279 (1), 71-79 (2002).
- Yamaguchi, M., Biswas, S. K., Ohkusu, M., Takeo, K. Dynamics of the spindle pole body of the pathogenic yeast Cryptococcus neoformans examined by freeze-substitution electron microscopy. FEMS Microbiology Letters. 296 (2), 257-265 (2009).
- Yamaguchi, M., et al. Structome of Saccharomyces cerevisiae determined by freeze-substitution and serial ultrathin sectioning electron microscopy. Journal of Electron Microscopy. 60 (5), 321-335 (2011).
- Yamada, H., et al. Structome analysis of Escherichia coli cells by serial ultrathin sectioning reveals the precise cell profiles and the ribosome density. Microscopy. 66 (4), 283-294 (2017).
- Yamaguchi, M., Ohkusu, M., Sameshima, M., Kawamoto, S. Safe specimen preparation for electron microscopy of pathogenic fungi by freeze-substitution after glutaraldehyde fixation. Japanese Journal of Medical Mycology. 46 (3), 187-192 (2005).
- Yamaguchi, M., et al. Improved preservation of fine structure of deep-sea microorganisms by freeze-substitution after glutaraldehyde fixation. Journal of Electron Microscopy. 60 (4), 283-287 (2011).
- Yamaguchi, M., et al. Prokaryote or eukaryote? A unique microorganism from the deep-sea. Journal of Electron Microscopy. 61 (6), 423-431 (2012).
- Yamada, H., Chikamatsu, K., Aono, A., Mitarai, S. Pre-fixation of virulent Mycobacterium tuberculosis with glutaraldehyde preserves exquisite ultrastructure on transmission electron microscopy through cryofixation and freeze-substitution with osmium-acetone at ultralow temperature. Journal of Microbiological Methods. 96, 50-55 (2014).
- Yamaguchi, M. An electron microscopic study of microorganisms: from influenza virus to deep-sea microorganisms. JSM Mycotoxins. 65 (2), 81-99 (2015).
- Yamaguchi, M., et al. High-voltage electron microscopy tomography and structome analysis of unique spiral bacteria from the deep sea. Microscopy. 65 (4), 363-369 (2016).
- Yamaguchi, M., Yamada, H., Uematsu, K., Horinouchi, Y., Chibana, H. Electron microscopy and structome analysis of unique amorphous bacteria from the deep sea. Cytologia. 83 (3), 337-342 (2018).
- Yamaguchi, M., Yamada, H., Chibana, H. Deep-sea bacteria harboring bacterial endosymbionts in a cytoplasm?: 3D electron microscopy by serial ultrathin sectioning of freeze-substituted specimen. Cytologia. 85 (3), 209-211 (2020).
- Yamaguchi, M., Takahashi-Nakaguchi, A., Aida, Y., Sato-Okamoto, M., Chibana, H. Convenient method for better preservation of fine structures of cultured macrophages and engulfed yeast cells by freeze-substitution fixation. Microscopy. 66 (3), 209-211 (2017).
- Aoki, S., et al. Shift in energy metabolism caused by glucocorticoids enhances the effect of cytotoxic anticancer drugs against acute lymphoblastic leukemia cells. Oncotarget. 8 (55), 94271-94285 (2017).
- Hirao, T., et al. Altered intracellular signaling by imatinib increases the anticancer effects of tyrosine kinase inhibitors in chronic myelogenous leukemia cells. Cancer Science. 109 (1), 121-131 (2018).
- Yamaguchi, M., et al. Sandwich freezing device for rapid freezing of viruses, bacteria, yeast, cultured cells, and animal and human tissues in electron microscopy. Microscopy. 70 (2), 215-223 (2021).
- Yamaguchi, M. Troubleshooting in specimen preparation of microorganisms. Kenbikyo. 42, In Japanese 26-28 (2007).
- Yamaguchi, M., Aoyama, T., Yamada, N., Chibana, H. Quantitative measurement of hydrophilicity/hydrophobicity of the plasma-polymerized naphthalene film (Super support film) and other support films and grids in electron microscopy. Microscopy. 65 (55), 444-450 (2016).
- Yamaguchi, M., Chibana, H. A method for obtaining serial ultrathin sections of microorganisms in transmission electron microscopy. Journal of Visualized Experiments: JoVE. (131), e56235(2018).
- Yamaguchi, M., Shimizu, M., Yamaguchi, T., Ohkusu, M., Kawamoto, S. Repeated use of uranyl acetate solution for section staining in transmission electron microscopy. Plant Morphology. 17 (1), 57-59 (2005).
- Yamaguchi, M., Tanaka, A., Suzuki, T. A support film of plasma-polymerized naphthalene for electron microscopy: method of preparation and application. Journal of Electron Microscopy. 41 (1), 7-13 (1992).
- Yamaguchi, M., et al. Cryo-electron microscopy of hepatitis B virus core particles produced by transformed yeast: comparison with negative staining and ultrathin sectioning. Journal of Electron Microscopy. 37 (6), 337-341 (1988).
- Yamaguchi, M., et al. Dynamics of hepatitis B virus core antigen in a transformed yeast cell: analysis with an inducible system. Journal of Electron Microscopy. 43 (6), 386-393 (1994).
- Yamaguchi, M., Miyatsu, T., Mizokami, H., Matsuoka, L., Takeo, K. Translocation of hepatitis B virus core particles through nuclear pores in transformed yeast cells. Journal of Electron Microscopy. 45 (4), 321-324 (1996).
- Sipiczki, M., Takeo, K., Yamaguchi, M., Yoshida, S., Miklos, I. Environmentally controlled dimorphic cycle in fission yeast. Microbiology. 144, Pt 5 1319-1330 (1998).
- Sipiczki, M., et al. Role of cell shape in determination of the division plane in Schizosaccharomyces pombe: random orientation of septa in spherical cells. Journal of Bacteriology. 182 (6), 1693-1701 (2000).
- Encz, iK., Yamaguchi, M., Sipiczki, M. Morphology transition genes in the dimorphic fission yeast Schizosaccharomyces japonicus. Antonie van Leeuwenhoek. 92 (2), 143-154 (2007).
- Kopecka, M., et al. Microtubules and actin cytoskeleton in Cryptococcus neoformans compared with ascomycetous budding and fission yeasts. European Journal of Cell Biology. 80 (4), 303-311 (2001).
- Yamaguchi, M., Biswas, S. K., Kita, S., Aikawa, E., Takeo, K. Electron microscopy of pathogenic yeasts Cryptococcus neoformans and Exophiala dermatitidis by high-pressure freezing. Journal of Electron Microscopy. 51 (1), 21-27 (2002).
- Ikeda, R., et al. Contribution of the mannan backbone of cryptococcal glucuroxylomannan and a glycolytic enzyme of Staphylococcus aureus to contact-mediated killing of Cryptococcus neoformans. Journal of Bacteriology. 189 (13), 4815-4826 (2007).
- Yamaguchi, M., et al. The spindle pole body of the pathogenic yeast Cryptococcus neoformans: variation in morphology and positional relationship to the nucleolus and the bud in interphase cells. Journal of Electron Microscopy. 59 (2), 165-172 (2010).
- Kozubowski, L., et al. Ordered kinetochore assembly in the human pathogenic basidiomycetous yeast Cryptococcus neoformans. MBio. 4 (5), 00614(2013).
- Stepanova, A. A., Yamaguchi, M., Chibana, H., Vasilyeva, N. V. Ultrastructural aspects of cell components migration during budding in the yeast Cryptococcus leurentii. Problems in Medical Mycology. 18 (3), 24-29 (2016).
- Ohkusu, M., et al. Cellular and nuclear characteristics of Exophiala dermatitidis. Studies in Mycology. 43 (43), 143-150 (1999).
- Yamaguchi, M., Biswas, S. K., Suzuki, Y., Furukawa, H., Takeo, K. Three-dimensional reconstruction of a pathogenic yeast Exophiala dermatitidis cell by freeze-substitution and serial sectioning electron microscopy. FEMS Microbiology Letters. 219 (1), 17-21 (2003).
- Yamaguchi, M., et al. The spindle pole body of the pathogenic yeast Exophiala dermatitidis: variation in morphology and positional relationship to the nucleolus and the bud in interphase cells. European Journal of Cell Biology. 82 (10), 531-538 (2003).
- Biswas, S. K., Yamaguchi, M., Naoe, N., Takashima, T., Takeo, K. Quantitative three-dimensional structural analysis of Exophiala dermatitidis yeast cells by freeze-substitution and serial ultrathin sectioning. Journal of Electron Microscopy. 52 (2), 133-143 (2003).
- Takaya, N., et al. Cytochrome P450nor, a novel class of mitochondrial cytochrome P450 involved in nitrate respiration in the fungus Fusarium oxysporum. Archives of Biochemistry and Biophysics. 372 (2), 340-346 (1999).
- Zhou, Z., et al. Ammonia fermentation, a novel anoxic metabolism of nitrate by fungi. Journal of Biological Chemistry. 277 (3), 1892-1896 (2002).
- Takasaki, K., et al. Fungal ammonia fermentation, a novel metabolic mechanism that couples the dissimilatory and assimilatory pathways of both nitrate and ethanol. Role of acetyl CoA synthetase in anaerobic ATP synthesis. Journal of Biological Chemistry. 279 (13), 12414-12420 (2004).
- Kopecka, M., et al. Analysis of microtubules and F-actin structures in hyphae and conidia development in opportunistic human pathogenic black yeast Aureobasidium pullulans. Microbiology. 149, Pt 4 865-876 (2003).
- Ueno, K., Namiki, Y., Mitani, H., Yamaguchi, M., Chibana, H. Differential cell wall remodeling of two chitin synthase deletants Δchs3A and Δchs3B in the pathogenic yeast Candida glabrata. FEMS Yeast Research. 11 (5), 398-407 (2011).
- Ikezaki, S., et al. Mild heat stress affects on the cell wall structure in Candida albicans biofilm. Medical Mycology Journal. 60 (2), 29-37 (2019).
- Gabriel, M., et al. The cytoskeleton in the unique cell reproduction by conidiogenesis of the long-neck yeast Fellomyces (Sterigmatomyces) fuzhouensis. Protoplasma. 229 (1), 33-44 (2006).
- Yoshimi, A., et al. Functional analysis of the α-1,3-glucan synthase genes agsA and agsB in Aspergillus nidulans: agsB is the major α-1,3-glucan synthase in this fungus. PLoS One. 8 (1), 54893(2013).
- Yamada, H., Mitarai, S., Chikamatsu, K., Mizuno, K., Yamaguchi, M. Novel freeze-substitution electron microscopy provides new aspects of virulent Mycobacterium tuberculosis with visualization of the outer membrane and satisfying biosafety requirements. Journal of Microbiological Methods. 80 (1), 14-18 (2010).
- Yamada, H., Yamaguchi, M., Chikamatsu, K., Aono, A., Mitarai, S. Structome analysis of virulent Mycobacterium tuberculosis, which survives with only 700 ribosomes at density per 0.1 fl cytoplasm. PLoS One. 10 (1), 0117109(2015).
- Shiratori, R., et al. Glycolytic suppression dramatically changes the intracellular metabolic profile of multiple cancer cell lines in a mitochondrial metabolism-dependent manner. Scientfic Reports. 9 (1), 18699(2019).
- McDonald, K. L. Out with the old and in with the new: rapid specimen preparation procedures for electron microscopy of sectioned biological material. Protoplasma. 251 (2), 429-448 (2014).
- Small, J. V. Organization of actin in the leading edge of cultured cells: influence of osmium tetroxide and dehydration on the ultrastructure of actin meshworks. Journal of Cell Biology. 91 (3), Pt 1 695-705 (1981).
- Ohno, S., Terada, N., Fujii, Y., Ueda, H., Takayama, I. Dynamic structure of glomerular capillary loop as revealed by an in vivo cryotechnique. Virchows Archiv. 427 (5), 519-527 (1996).
重印与许可
