本方案旨在作为研究肝细胞因脂质过度暴露而引发的脂肪变性,以及相关的分子、生化和细胞变化的工具 体外.
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
代谢功能障碍相关性脂肪肝病(MAFLD),先前称为非酒精性脂肪肝病(NAFLD),是全球最常见的肝脏疾病,其与肥胖、2型糖尿病和血脂异常密切相关。肝脂肪变性,即脂滴在肝实质细胞中的积聚,是该疾病的关键特征,先于脂肪性肝炎、纤维化及终末期肝病中所见的炎症反应。肝细胞内脂质的积聚可能干扰外源性和内源性分子的正常代谢,并引发促进疾病进展的细胞过程。尽管脂肪变性的实验研究可在体内(in vivo)进行,但体外(in vitro)研究方法作为补充工具具有多种优势。在脂质超载条件培养基中培养肝细胞,是一种高度可重复的研究肝脂肪变性的优良方法,可用于识别与脂质积聚相关的细胞过程,如氧化应激和内质网应激、自噬、细胞增殖、细胞死亡等,同时也适用于药物疗效评估、毒理学检测等多种应用。本文旨在描述在脂质超载条件培养基中进行肝细胞培养的方法学。HepG2细胞在添加棕榈酸钠和油酸钠的RMPI 1640培养基中进行培养。值得注意的是,这两种脂质的比例对于促进脂滴积聚,同时维持细胞增殖和适度的死亡率至关重要,这与疾病状态下肝脏中的情况一致。本文展示了从脂质溶液母液的制备、混合、加入培养基到肝细胞培养的完整操作流程。通过该方法,可利用油红O染色清晰观察到肝细胞内的脂滴,并可获得细胞增殖/死亡率的变化曲线。
引言
与代谢功能障碍相关的脂肪肝在全球范围内高度流行1,2;据估计,高达25%的人口受到影响3。该疾病先前被称为非酒精性脂肪肝病(NAFLD),现已更新命名为代谢功能障碍相关脂肪肝病(MAFLD),以更准确地反映其与肥胖、胰岛素抵抗、2型糖尿病和血脂异常相关的发病机制,以及该疾病的可能管理策略3,4。
无论名称如何,该疾病均包含一系列广泛的组织病理学改变,其特征是肝脏中脂质异常大量积聚(肝细胞中脂肪含量>5%5),可从单纯性脂肪变性中常见的脂质积聚逐步发展为脂肪性肝炎,进而可能导致纤维化、肝硬化、肝细胞癌以及肝功能衰竭5,6,7,8。由于其患病率不断上升,代谢相关脂肪性肝病(MAFLD)预计将成为肝移植的首要指征以及肝细胞癌的主要病因9。
尽管肝脂肪变性曾被认为是脂肪肝疾病的一种良性或轻度形式,但实际上它是代谢相关脂肪性肝病(MAFLD)的关键代谢环节10。肝脏中的脂质积聚会影响多种代谢通路,包括但不限于脂质合成、输出和代谢10。胰岛素抵抗、氧化应激、内质网应激和细胞功能障碍与肝脂毒性密切相关11,12。另一方面,脂肪变性的肝细胞易受活性氧物种攻击,产生脂质过氧化物、蛋白质羰基以及核酸加合物等代谢产物13。在细胞水平上,脂肪变性的肝细胞可能发生线粒体损伤14、细胞衰老15、凋亡16、焦亡12和自噬17等多种事件。
肝细胞在代谢、解毒以及多种分子的合成中发挥着重要作用。脂肪变性中观察到的脂质积聚可能损害这些功能中的许多。因此,拥有可重复的工具以准确评估脂肪变性具有重要意义。在这方面, 体外 模型具有良好的适用性和高度可重复性。脂肪变性 体外 已用于不同的目标16,18,19HepG2 细胞被广泛用作肝细胞系,其优势包括易于培养和特性明确。或许,HepG2 细胞唯一的缺点在于其为肿瘤来源的细胞系,因此在分析实验结果时必须考虑这一因素。本文展示了在细胞培养中常用的脂肪酸混合物——棕榈酸(PA)和油酸(OA)的应用。PA 和 OA 在培养中可产生不同的效应。20棕榈酸(C 16:0)是膳食中最为常见的饱和脂肪酸16. PA 被认为是一种生物标志物 从头脂质生成,非酒精性脂肪性肝病(NAFLD)发展过程中的关键步骤21. PA 显示出高度毒性22;因此,可能不建议用于诱导脂肪变性 体外油酸(OA,C18:1)是一种单不饱和脂肪酸。与棕榈酸(PA)不同,研究表明油酸具有抗炎和抗氧化特性,能够抵消棕榈酸的作用。12. 无论健康或疾病状态下,棕榈酸(PA)和油酸(OA)都是甘油三酯中主要的脂肪酸16. 表1 提供了肝细胞在棕榈酸(PA)、油酸(OA)及其混合物中培养的示例,以及所报告的实验结果12,23,24,25,26,27其他脂肪酸也已用于肝细胞培养,包括硬脂酸(C 18:0)28,29,30,亚油酸(C 18:1)28,30,31 及其共轭亚油酸(CLA)28,32,棕榈油酸(C 16:1)29然而,相关文献中极少报道其应用,可能是因为它们在肝脏中的含量低于PA和OA16.
同时,这两种脂肪酸均类似于脂肪变性 体外,与对照条件相比,细胞增殖减少,细胞死亡增加,存活率降低。值得指出的是,这些脂肪酸的相应盐形式也可获得,并同样可用于实验。在肝细胞培养中评估脂质过载时,一个主要问题在于如何区分毒理学模型与最能代表脂肪变性的模型。第一类情况中可包含多种模型,事实上,单独使用棕榈酸(PA)可能即属于此类,其最明显的结局是高死亡率。12,16,23,24,25,26,27即使在OA的情况下使用高剂量也可被视为一种毒理学模型。此处所示方案与脂肪变性的发生更为一致,因为与其他模型相比,其死亡率较低,并且可在数天内进行观察,期间可观察到如非酒精性脂肪性肝病(NAFLD)中所见的进行性脂质积聚。通过实验条件评估轻度和重度脂肪变性的可能性被视为另一优势。
| 脂肪 酸 | 条件 | 结果 | 参考文献 | ||
| PA | 浓度: 200 μM | 脂质积累 | Yan 等,201925. | ||
| 曝光时间: 24 h | 肝细胞损伤 | ||||
| 转氨酶升高 | |||||
| PA | 浓度: 50, 100 和 200 μM | 脂质积累 | Xing 等,201924. | ||
| 曝光时间: 24 h | |||||
| PA | 浓度: 250 μM ,500 μM ,750 μM 和 1,000 μM | 脂质积累 | 王等人,202026. | ||
| 曝光时间: 24 h | 细胞活力的逐步降低 | ||||
| 混合物 OA/PA | 浓度: 1 mM | 脂质 积累 | 肖等人,202027. | ||
| 曝光时间: 24 h | 未报告 脂毒性 | ||||
| 速率: 2OA:1PA | |||||
| 混合物 OA/PA | 首次刺激 200 μM 和 400 μM PA 然后进行第二次刺激 200 μM OA | 脂质 积累 | 曾等,202012. | ||
| 浓度:400 μM PA:200 μM OA | 证据 脂毒性 由PA诱导的效应通过OA刺激而减弱。 | ||||
| 速率: 2PA:1OA | |||||
| 曝光时间: 24 h | |||||
| 混合物 OA/PA | 浓度: 400 μM PA:200 μM OA | 脂质积累 | 陈等,201823. | ||
| 速率: 2PA:1OA | |||||
| 曝光时间: 24 h | |||||
| 混合物 OA/PA | 浓度 :50 和 500 μM | 生成 的 二 类型 脂肪变性 温和的 脂肪变性 和 严重 脂肪变性 | Campos 和 Guzmán 2021 | ||
| 速率:2PA:1OA | 模拟 慢性 暴露 脂质过载 | ||||
| 暴露时间:24 小时、2 天、3 天和 4 天。 | |||||
表1. 肝细胞在致脂肪变性条件下的培养。 该表格列出了所使用的脂肪酸类型、维持的培养条件以及在肝细胞培养中观察到的结果。PA:棕榈酸。OA:油酸。
最后,该模型不仅适用于脂肪变性和脂肪肝的研究,还可用于研究脂肪变性背景下的肝脏代谢、合成及解毒通路。体外诱导的脂肪变性可能为识别该疾病的潜在生物标志物以及治疗靶点提供依据。
访问受限。请登录或开始试用以查看此内容。
方案
1. 标准培养基与条件培养基的制备
- 制备标准 RPMI 1640 培养基:在 RPMI 1640 培养基中添加 10% (v/v) 胎牛血清(FBS,预先热灭活)和 1% (v/v) 青霉素-链霉素溶液。使用 0.22 µm 滤器灭菌,4 °C 保存。
- 制备棕榈酸盐储备液:在先前已添加 1% 牛血清白蛋白(无脂)的标准 RPMI 1640 培养基中配制 50 mM 的棕榈酸盐溶液。准备 5–10 mL 该储备液即可。使用 0.22 µm 滤器灭菌,避光保存于 4 °C,可保存长达 1 个月。
- 制备油酸盐储备液:在先前已添加 1% 牛血清白蛋白(无脂)的标准 RPMI 1640 培养基中配制 50 mM 的油酸盐溶液。准备 10 mL 即可。使用 0.22 µm 滤器灭菌,避光保存于 -20 °C,可保存长达 1 个月。
- 从上述预先配制的储备液中制备致脂肪变性培养基,配制 1 份棕榈酸盐 : 2 份油酸盐的致脂肪变性培养基,分为两种浓度条件:轻度脂肪变性和重度脂肪变性。
- 轻度脂肪变性:在 100 mL 标准 RPMI 1640 培养基中配制 1 份棕榈酸盐 : 2 份油酸盐(50 µM)混合液。使用 0.22 µm 滤器灭菌,4 °C 保存,可保存长达 1 周。
- 重度脂肪变性:在 100 mL 标准 RPMI 1640 培养基中配制 1 份棕榈酸盐 : 2 份油酸盐(500 µM)混合液。使用 0.22 µm 滤器灭菌,4 °C 保存,可保存长达 1 周。
- 储备液的替代配制方法。
- 如上所述,使用相应的脂肪酸并以无脂白蛋白作为载体配制两种储备液。
- 若无无脂白蛋白,可使用棕榈酸盐和油酸盐盐类。
- 将棕榈酸盐或油酸盐溶于 2 mL 无水乙醇中,然后加入至标准 RPMI 1640 培养基终体积(5–10 mL)中混合;油酸盐也可直接在标准 RPMI 1640 培养基中搅拌溶解。
- 将溶液置于 70 °C 水浴中孵育,使乙醇挥发完全,并充分混匀。
- 无论采用何种方法,均需使用 0.22 µm 滤器对两种储备液进行灭菌。棕榈酸盐储备液保存于 4 °C,油酸盐储备液保存于 -20 °C,均需避光。这些溶液可稳定保存 1 个月。
2. 预培养
- 在24孔板中每孔接种100,000个HepG2细胞,加入1 mL标准RPMI 1640培养基。
- 在37 °C、5% CO2条件下预孵育24 h,使细胞贴壁。
3. 促脂肪生成培养
- 预培养后,弃去标准 RPMI 1640 培养基,加入相应的致脂肪生成培养基。
- 每 24 小时弃去上清液,并加入新鲜的致脂肪生成培养基。
4. 存活率与死亡率评估
- 在24孔板中每孔接种100,000个HepG2细胞,加入1 mL标准RPMI 1640培养基。
- 在37 °C、5% CO2条件下预培养24小时。
- 将标准RPMI 1640培养基更换为促脂肪变性培养基。
- 分别培养24小时、2天、3天和4天,每隔24小时更换一次促脂肪变性培养基。
- 在适当时间点后,弃去上清液。
- 加入500 µL 0.05%胰蛋白酶-EDTA溶液使细胞从孔壁脱离,在37 °C、5% CO2条件下孵育5分钟。
- 将重悬的细胞收集至微量离心管中。
- 以300 × g离心,弃去上清液。
- 加入200 µL标准RPMI 1640培养基重悬细胞。
- 在新的微量离心管中加入15 µL 0.4%台盼蓝溶液,再与15 µL上述细胞悬液混合均匀。
- 用血细胞计数板计数染色与未染色的细胞。
- 据此计算细胞活力与死亡率。
活力率 =
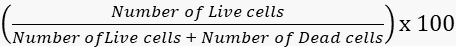
死亡率 =
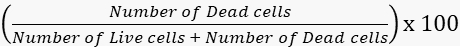
5. 使用油红O进行脂质染色
- 在24孔板的每个孔中放入一个细胞培养盖玻片。
- 每孔接种100,000个HepG2细胞,加入1 mL标准RPMI 1640培养基。
- 在37 °C、5% CO2条件下预孵育24 h。
- 将标准RPMI 1640培养基更换为促脂肪生成培养基。
- 分别孵育24 h、2天、3天和4天,每隔24 h更换一次促脂肪生成培养基。
- 在适当时间点后,弃去上清液。
- 用1 mL磷酸盐缓冲液(PBS)洗涤,弃去上清液。
- 加入1 mL PBS配制的4%多聚甲醛固定细胞。
- 室温孵育1 h。
- 弃去多余的多聚甲醛溶液。
- 用1 mL蒸馏水冲洗细胞。
- 加入1 mL 70%异丙醇,孵育5 min。
- 弃去多余的异丙醇溶液,此时无需进行PBS洗涤。
- 加入1 mL油红O溶液,孵育30 min。
- 弃去多余的油红O溶液。
- 用1 mL蒸馏水冲洗。
- 加入500 µL苏木精溶液,孵育3 min。
- 弃去多余的苏木精溶液。
- 用1 mL蒸馏水冲洗。
- 在显微镜下以400倍放大倍数(物镜40x,目镜10x)观察。
6. 脂质含量的形态计量学评估
- 从每个孔的全部区域中随机选择并拍摄10个光学视野的照片。对每个孔重复此操作。
- 根据Ferreira和Rasband33的方法,使用ImageJ软件中的Color Threshold工具评估红色染色区域的百分比。
- 根据Ferreira和Rasband33的方法,使用ImageJ软件中的Analyze Particles 工具将染色区域与光学视野的总面积进行比较。
- 计算每个孔的平均百分比。
访问受限。请登录或开始试用以查看此内容。
结果
在致脂肪培养基中培养的肝细胞会在孔板表面广泛生长;然而,脂肪变性的肝细胞相比在对照培养基中培养的细胞,其生长速率较低。所建议的油酸(OA)与棕榈酸(PA)比例和浓度可确保细胞在培养期间的存活。接种 1 x 10⁵ 每孔2×10⁴个细胞接种于24孔板可达到最佳汇合度,如图所示 图1.
在培养细胞中,轻度和重度脂肪变性组的细胞活力低于对照组。事实上,随着培养时间的延长,细胞活力逐渐下降,在严重脂肪变性条件下培养4天时活力降至最低,仅为60%(图2A)。相应地,在脂肪变性条件下培养的肝细胞死亡率更高,且随着脂质暴露时间的延长而逐渐升高(图2B)。由于细胞增殖,细胞数量随时间逐渐增加(图2C)。然而,在轻度脂肪变性条件下,培养3天和4天时的增殖速率较低。相比之下,重度脂肪变性在24小时时即表现出增殖减少。
访问受限。请登录或开始试用以查看此内容。
讨论
本方案旨在提供一种研究脂肪变性的策略 体外细胞培养是一种强大的工具,可用于研究在不同条件下暴露的细胞的细胞、分子、生化及毒理学特性。通过该方法,不仅可以将脂肪变性视为代谢功能障碍相关脂肪性肝病(MAFLD)这一复杂疾病过程中的一个阶段,还可将其理解为肝细胞过度暴露于脂质及其由此引发的可能后果。因此,该技术的应用不仅限于MAFLD的病理生理学研究,还涉及脂肪肝患者在接触治疗药物、环境污染物及其他可能受脂肪变性影响的条件时的相关研究。综上所述,本实验方案在毒理学、药理学以及疾病治疗靶点的识别方面具有潜在应用价值。
在本实验方案的建立过程中,最关键的步骤之一是制备促脂肪变性混合物:1份棕榈酸与2份油酸的混合物,该混合物自第2天起即可诱导脂肪变性(图3,图4),并在细胞活力略有下降和死亡率升高的情况下仍允许肝细胞增殖(图2)。然而,细胞活力的下降不应超过30%-40%,因为超出此范围可能提示毒性...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
本工作由墨西哥国家科学技术委员会(Conacyt,项目号:CB-221137)资助。Adriana Campos 是墨西哥国立自治大学生物医学科学博士项目的学生,并获得 Conacyt 资助(CVU:1002502)。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 生物安全柜 | ESCO Airstream | AC2-452+C2:C26 | II级 A2型 生物安全柜 |
| 瓶顶滤器 | Corning, US | 430513 | 无热原、聚苯乙烯、无菌。每袋1个滤器。0.22 μm,500 mL。 |
| 牛血清白蛋白(BSA) | Gold Biotechnology, US | A-421-10 | 细胞培养用无脂肪酸BSA |
| 培养基RPMI 1640 | ThermoFisher-Gibco, US | 31800-022 | - |
| 胎牛血清(FBS) | ThermoFisher-Gibco, US | A4766801 | - |
| 血细胞计数板 | Marienfeld, DE | 640010 | - |
| HepG2细胞系 | ATCC, US | HB-8065 | 人肝细胞癌细胞。 |
| 恒温培养箱(带湿度控制) | Thermo Electronic Corporation,US | 型号:3110 | 温度(37 °C ± 1 °C),湿度(90% ± 5%),CO2(5% ± 1%) |
| 倒置显微镜Eclipse | NIKON, JPN | 型号:TE2000-S | - |
| 异丙醇 | Sigma-Aldrich, US | I9030-4L | - |
| 油红O试剂盒 | Abcam, US | ab150678 | 用于组织学中中性脂肪显色的试剂盒。 |
| 多聚甲醛 | Sigma-Aldrich, US | P6148-500G | - |
| 青霉素/链霉素 | ThermoFisher-Gibco, US | 15140-122 | 抗生素,含青霉素10,000 U/mL,链霉素10,000 μg/mL |
| pH计 | Beckman, US | 型号:360 PH/Temp/MV Meter | - |
| 磷酸盐缓冲液 | ThermoFisher-Gibco, US | 10010-023 | - |
| 血清移液管 | Sarstedt, AUS | 86.1253.001 | 无热原、无菌、5 mL |
| 血清移液管 | Sarstedt, AUS | 86.1254.001 | 无热原、无菌、10 mL |
| 碳酸氢钠 | Sigma-Aldrich, US | S5761-1KG | 用于培养基配制 |
| 油酸钠 | Santa Cruz Biotechnology, US | sc-215879A | - |
| 棕榈酸钠 | Santa Cruz Biotechnology, US | sc-215881 | - |
| 注射器滤器 | Corning, US | 431219 | 无热原、无菌、28 mm、0.2 μm。 |
| 台盼蓝 | Sigma-Aldrich, US | T6146-25G | - |
| 0.05%胰蛋白酶/0.53 mM EDTA | Corning, US | 25-052-Cl | - |
| 24孔细胞培养板 | Corning, US | 3524 | 平底带盖。经组织培养处理。无热原、聚苯乙烯、无菌。每包1个。 |
| 96孔细胞培养板 | Corning, US | 3599 | 平底带盖。经组织培养处理。无热原、聚苯乙烯、无菌。每包1个。 |
参考文献
- Younossi, Z. M. Non-alcoholic fatty liver disease - a global public health perspective. Journal of Hepatology. 70 (3), 531-544 (2019).
- Younossi, Z., et al. Global perspectives on nonalcoholic fatty liver disease and nonalcoholic steatohepatitis. Hepatology. 69 (6), 2672-2682 (2019).
- Eslam, M., et al. A new definition for metabolic dysfunction-associated fatty liver disease: An international expert consensus statement. Journal of Hepatology. 73 (1), 202-209 (2020).
- Eslam, M., Sanyal, A. J., George, J. MAFLD: A consensus-driven proposed nomenclature for metabolic associated fatty liver disease. Gastroenterology. 158 (7), 1999-2014 (2020).
- Chalasani, N., et al. The diagnosis and management of nonalcoholic fatty liver disease: Practice guidance from the American association for the study of liver diseases. Hepatology. 67 (1), 328-357 (2018).
- Calzadilla Bertot, L., Adams, L. A. The natural course of non-alcoholic fatty liver disease. International Journal of Molecular Science. 17 (5), 774(2016).
- Reccia, I., et al. Non-alcoholic fatty liver disease: A sign of systemic disease. Metabolism. 72, 94-108 (2017).
- Tomita, K., et al. Free cholesterol accumulation in hepatic stellate cells: Mechanism of liver fibrosis aggravation in nonalcoholic steatohepatitis in mice. Hepatology. 59 (1), 154-169 (2014).
- Byrne, C. D., Targher, G. Nafld: A multisystem disease. Journal of Hepatology. 62, 1 Suppl 47-64 (2015).
- Ipsen, D. H., Lykkesfeldt, J., Tveden-Nyborg, P. Molecular mechanisms of hepatic lipid accumulation in non-alcoholic fatty liver disease. Cellular and Molecular Life Sciences. 75 (18), 3313-3327 (2018).
- Diehl, A. M., Day, C. Cause, pathogenesis, and treatment of nonalcoholic steatohepatitis. New England Journal of Medicine. 377 (21), 2063-2072 (2017).
- Zeng, X., et al. Oleic acid ameliorates palmitic acid induced hepatocellular lipotoxicity by inhibition of ER stress and pyroptosis. Nutrition and Metabolism. 17, London. 11(2020).
- Ore, A., Akinloye, O. A. Oxidative stress and antioxidant biomarkers in clinical and experimental models of non-alcoholic fatty liver disease. Medicina (Kaunas). 55 (2), 26(2019).
- Paradies, G., Paradies, V., Ruggiero, F. M., Petrosillo, G. Oxidative stress, cardiolipin and mitochondrial dysfunction in nonalcoholic fatty liver disease. World Journal of Gastroenterology. 20 (39), 14205-14218 (2014).
- Aravinthan, A., et al. Hepatocyte senescence predicts progression in non-alcohol-related fatty liver disease. Journal of Hepatology. 58 (3), 549-556 (2013).
- Gomez, M. J., et al. A human hepatocellular in vitro model to investigate steatosis. Chemico Biological Interactions. 165 (2), 106-116 (2007).
- Wu, W. K. K., Zhang, L., Chan, M. T. V. Autophagy, NAFLD and NAFLD-related HCC. Advances in Experimental Medicine and Biology. 1061, 127-138 (2018).
- Levy, G., Cohen, M., Nahmias, Y. In vitro cell culture models of hepatic steatosis. Methods in Molecular Biology. 1250, 377-390 (2015).
- Kanuri, G., Bergheim, I. In vitro and in vivo models of non-alcoholic fatty liver disease (NAFLD). International Journal of Molecular Science. 14 (6), 11963-11980 (2013).
- Ricchi, M., et al. Differential effect of oleic and palmitic acid on lipid accumulation and apoptosis in cultured hepatocytes. Journal of Gastroenterology and Hepatology. 24 (5), 830-840 (2009).
- Lee, Y., et al. Serial biomarkers of de novo lipogenesis fatty acids and incident heart failure in older adults: The cardiovascular health study. Journal of the American Heart Association. 9 (4), 014119(2020).
- Alnahdi, A., John, A., Raza, H. Augmentation of glucotoxicity, oxidative stress, apoptosis and mitochondrial dysfunction in Hepg2 cells by palmitic acid. Nutrients. 11 (9), 1979(2019).
- Chen, X., et al. Oleic acid protects saturated fatty acid mediated lipotoxicity in hepatocytes and rat of non-alcoholic steatohepatitis. Life Sciences. 203, 291-304 (2018).
- Xing, J. H., et al. NLRP3 inflammasome mediate palmitate-induced endothelial dysfunction. Life Sciences. 239, 116882(2019).
- Yan, H., et al. Insulin-like Growth Factor Binding Protein 7 accelerates hepatic steatosis and insulin resistance in non-alcoholic fatty liver disease. Clinical and Experimental Pharmacology and Physiology. 46 (12), 1101-1110 (2019).
- Wang, J., Hu, R., Yin, C., Xiao, Y. Tanshinone IIA reduces palmitate-induced apoptosis via inhibition of endoplasmic reticulum stress in Hepg2 liver cells. Fundamental and Clinical Pharmacology. 34 (2), 249-262 (2020).
- Xiao, Z., Chu, Y., Qin, W. IGFBP5 modulates lipid metabolism and insulin sensitivity through activating ampk pathway in non-alcoholic fatty liver disease. Life Sciences. 256, 117997(2020).
- Avila, G., et al. In vitro effects of conjugated linoleic acid (CLA) on inflammatory functions of bovine monocytes. Journal of Dairy Science. 103 (9), 8554-8563 (2020).
- Malhi, H., Bronk, S. F., Werneburg, N. W., Gores, G. J. Free fatty acids induce JNK-dependent hepatocyte lipoapoptosis. The Journal of Biological Chemistry. 281 (17), 12093-12101 (2006).
- Oh, J. M., et al. Effects of palmitic acid on TNF-alpha-induced cytotoxicity in SK-Hep-1 cells. Toxicology In Vitro: An International Journal Published in Association with BIBRA. 26 (6), 783-790 (2012).
- Stellavato, A., et al. In vitro assessment of nutraceutical compounds and novel nutraceutical formulations in a liver-steatosis-based model. Lipids in Health and Disease. 17 (1), 24(2018).
- Pachikian, B. D., et al. Implication of trans-11, trans-13 conjugated linoleic acid in the development of hepatic steatosis. PLoS One. 13 (2), 0192447(2018).
- Ferreira, T., Rasband, W. Analyze. ImageJ User Guide. , Ch. 30 132-135 (2012).
- Geng, Y., Wu, Z., Buist-Homan, M., Blokzijl, H., Moshage, H. Hesperetin protects against palmitate-induced cellular toxicity via induction of GRP78 in hepatocytes. Toxicology and Applied Pharmacology. , 404(2020).
- Geng, Y., et al. Protective effect of metformin against palmitate-induced hepatic cell death. Biochimica et Biophysica Acta - Molecular Basis of Disease. 1866 (3), 165621(2020).
- Sarnyai, F., et al. Effect of cis- and trans-monounsaturated fatty acids on palmitate toxicity and on palmitate-induced accumulation of ceramides and diglycerides. International Journal of Molecular Science. 21 (7), 2626(2020).
- Chen, J. W., et al. Tetrahydrocurcumin ameliorates free fatty acid-induced hepatic steatosis and improves insulin resistance in HepG2 cells. Journal of Food and Drug Analysis. 26 (3), 1075-1085 (2018).
- Burhans, M. S., et al. Hepatic oleate regulates adipose tissue lipogenesis and fatty acid oxidation. Journal of Lipid Research. 56 (2), 304-318 (2015).
- Abenavoli, L., Milanovic, M., Milic, N., Luzza, F., Giuffre, A. M. Olive oil antioxidants and non-alcoholic fatty liver disease. Expert Reviews in Gastroenterology and Hepatology. 13 (8), 739-749 (2019).
- Nagarajan, S. R., et al. Lipid and glucose metabolism in hepatocyte cell lines and primary mouse hepatocytes: A comprehensive resource for in vitro studies of hepatic metabolism. American Journal of Physiology - Endocrinology and Metabolism. 316 (4), 578-589 (2019).
- Hodson, L., Skeaff, C. M., Fielding, B. A. Fatty acid composition of adipose tissue and blood in humans and its use as a biomarker of dietary intake. Progress in Lipid Research. 47 (5), 348-380 (2008).
访问受限。请登录或开始试用以查看此内容。
重印与许可
