在此,我们介绍一种用于表征巨核细胞分化的免疫表型分析策略,并展示该策略如何利用荧光激活细胞分选仪对处于不同发育阶段的巨核细胞进行分选。该方法可应用于人类原代组织,也可用于体外培养生成的巨核细胞 体外.
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
巨核细胞(MK)分化包含多个内有丝分裂周期,最终形成高度多倍体(甚至可达 >64N)且体积极大的细胞(40–60 µm)。尽管在细胞生物学和分子水平上对巨核细胞生成的研究进展迅速,但通过流式细胞术对巨核细胞生成过程的表征仍局限于利用谱系特异性表面标志物鉴定成熟巨核细胞,而对早期巨核细胞分化阶段的研究仍属空白。本文介绍一种免疫表型分析策略,可在人原代样本中识别出伴随倍性逐步增加的连续巨核细胞分化阶段 体外 利用包含巨核细胞特异性与非特异性表面标志物的抗体组合对细胞进行表型分析。尽管巨核细胞体积较大且较为脆弱,仍可使用上述抗体组合,并在特定压力和喷嘴直径条件下通过荧光激活细胞分选技术对其进行富集。该方法有助于开展多组学研究,旨在更深入地理解人类巨核细胞生成及血小板产生的复杂过程。对巨核细胞生成过程的更精确表征,可能在谱系相关性疾病及恶性肿瘤的诊断或预后评估中发挥重要作用。
引言
巨核细胞(MK)由造血干细胞(HSC)经过一个称为巨核细胞生成(megakaryopoiesis)的复杂过程发育而来,该过程主要由激素血小板生成素(TPO)调控。传统的巨核细胞生成观点描述了细胞从HSC出发,依次经历一系列层级分明的定向前体细胞和祖细胞阶段,最终形成成熟的MK。在成熟过程中,MK经历多轮内有丝分裂,形成复杂的细胞内分界膜系统(DMS),从而为血小板生成提供足够的膜表面积,并高效地合成和储存成熟血小板所继承的各种颗粒中包含的大量因子1,2,3。因此,成熟的MK是体积较大的细胞(40–60 µm),其特征为高度多倍体的细胞核(甚至可达>64N)。近期研究表明,在特定生理-病理条件下,HSC可绕过传统的谱系定commitment检查点,通过其他途径分化为MK4,5,6,7,8,9,10,11。这些发现表明,向成熟MK的造血分化是一个连续且具有适应性的过程,能够响应生物体的实际需求。
随着对巨核细胞生成过程中细胞生物学和分子特征的认识不断深入12,大多数致力于通过流式细胞术研究该过程的研究仅限于使用谱系特异性表面标志物来鉴定成熟的巨核细胞(MKs)即, CD42A/B、CD41/CD61),而早期的巨核细胞分化阶段仍缺乏研究。我们此前报道了一种对小鼠骨髓及骨髓来源的巨核细胞培养中巨核细胞生成过程进行分期的策略13,14,我们已将其改进并应用于人类15本文展示了一种免疫表型分析策略,可实现对人原代来源(骨髓-BM-和外周血-PB-)中从造血干细胞(HSCs)到成熟巨核细胞(MKs)的巨核细胞生成过程的表征,或 体外 利用包含巨核细胞特异性及非特异性表面标志物(如CD61、CD42B、CD49B、CD31、KIT和CD71等)的抗体组合对细胞进行表型分析。尽管巨核细胞体积较大且较为脆弱,仍可在特定压力和喷嘴直径条件下,通过上述细胞表面标志物结合荧光激活细胞分选技术对其进行免疫表型鉴定和富集,以最大限度减少细胞破裂或损伤。该技术有助于开展多组学研究,旨在更深入地理解人类健康与疾病状态下巨核细胞生成及血小板产生的复杂机制。值得注意的是,该方法有望成为临床实践中应对日益增长需求的有力工具,辅助相关疾病的诊断与预后评估。
在本文中,我们记录了一种利用来自原始来源或自行构建的、整合了巨核细胞特异性与非特异性表面标志物的抗体组合对人类巨核细胞生成过程进行分期的策略 体外此外,我们提供了一种使用荧光激活细胞分选仪对优选组分和成熟巨核细胞进行分选的方案图1)。此步骤并不常用,因为巨核细胞(MKs)体积较大且脆弱,技术上存在较大难度。然而,该方法此前已在小鼠和人骨髓样本中成功应用,且随着技术进步,每次实验结果均有所改善。16,17,18人类原代样本中可用于研究巨核细胞(MK)或巨核前体细胞的来源包括骨髓、脐带血和外周血等。针对每种样本,正确处理以分离出用于分析的相关细胞组分至关重要。本文纳入了标准操作流程,并在研究巨核细胞生成过程时提出了一些需特别注意的事项。
访问受限。请登录或开始试用以查看此内容。
方案
全血和骨髓样本的采集与处理均遵循1964年《赫尔辛基宣言》。全血样本来自健康供者,在签署知情同意书(ISPA)后采集,该研究已获本院医学伦理委员会(阿斯图里亚斯中央大学医院 -HUCA-)批准。骨髓样本来自圣卡洛斯临床医院(HCSC)血液科患者骨髓穿刺剩余的废弃材料。
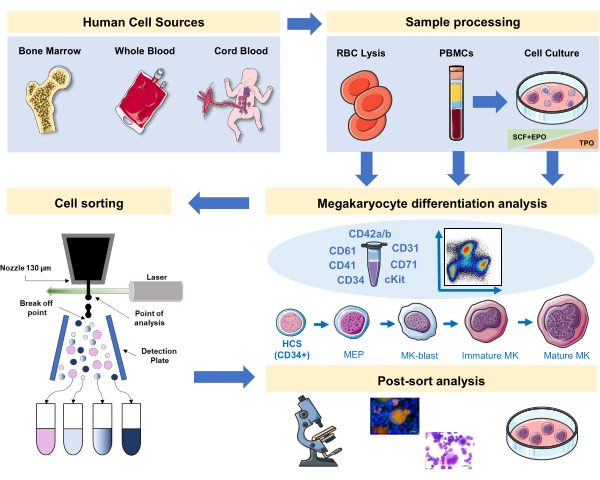
图1:本论文所记录方案的示意图。 图中指出了可用于通过免疫表型分析对巨核细胞(MK)分化进行分期的主要人源样本或原代培养物。该免疫表型分析策略可应用于研究不同谱系相关病理状态或恶性疾病中巨核细胞的分化过程。此外,该方法还可利用荧光激活细胞分选仪对巨核细胞及其前体细胞进行分选,从而实现对富集细胞组分的进一步分析。所使用的图片来源于Servier公司提供的Servier医学艺术图库(SMART),遵循CC BY 3.0许可协议。请点击此处查看此图的放大版本。
1. 免疫表型分析前的全血和骨髓处理
- 若以献血获得的全血(WB)作为主要来源,可选择性地分离外周血单个核细胞(PBMC)组分。该步骤可通过标准的差速离心结合密度梯度细胞分离法实现,具体方法如前所述15。
- 简而言之,在室温下以193 × g离心15分钟(刹车等级3)。弃去上层血浆部分,收集白膜层。用磷酸盐缓冲液(PBS)/二水合柠檬酸三钠(38 g/L,pH 7)缓冲液按1:1比例稀释,然后小心地将25 mL样品叠加于50 mL离心管中15 mL密度梯度液(密度1.076 g/mL)之上。
- 在室温下以1114 × g离心20分钟(加速等级3,刹车等级3)。弃去血浆部分,收集含有PBMC的白膜层。加入等体积PBS洗涤,以435 × g离心5分钟,随后重悬于PBS中以供后续使用。
- 或者,可在裂解红细胞(RBC)并充分洗涤后,使用全血样本(约100 μL)进行免疫表型分析。
- 简而言之,用冰冻红细胞裂解缓冲液(每500 mL H2O中含4.15 g NH4Cl、0.5 g KHCO3和18.5 mg EDTA(三钠盐III),pH 7.1–7.4)按1:1比例稀释。等待细胞悬液变为透明红色(3–5分钟)。
- 在4 °C下以435 × g离心5分钟,将细胞重悬于PBS中。根据需要重复操作,直至获得白色细胞沉淀。
- 类似地,可直接使用骨髓样本(穿刺获得)经红细胞裂解缓冲液处理(见第1.2点)并充分洗涤,以获得清晰的单细胞悬液(图1)。
- 处理过程中避免使用涡旋混合样品,以免损伤脆弱的巨核细胞(MKs)。可通过轻弹或倒置离心管进行混匀。
注意:与裂解红细胞后的全血相比,采用密度梯度法获得的PBMC可能提供更丰富且更纯净的细胞组分。然而需注意,高密度、成熟的巨核细胞可能残留在“中性粒细胞”组分中。这一点将在代表性结果部分进一步讨论。
- 处理过程中避免使用涡旋混合样品,以免损伤脆弱的巨核细胞(MKs)。可通过轻弹或倒置离心管进行混匀。
2. 从外周血单个核细胞体外分化巨核细胞
注:MKs 可以分化为 体外 来自早期前体细胞,例如 CD34+ 细胞,存在于不同的初级来源中(即, WB/PBMCs、脐带血、骨髓)以及iPSCs。已有多种不同方案用于实现这一目的。在此,我们采用由我们开发的一种培养方法,可实现PBMCs向巨核细胞的分化,且无需富集CD34细胞+ 前体15,19,20,21,22.
- 本方案包含三个培养阶段,其中血小板生成素(TPO)的浓度逐步增加,而促进早期前体细胞增殖的生长因子浓度相应减少即,干细胞因子(SCF),促红细胞生成素(EPO),其浓度逐渐降低(图2)15.
- 基础培养基使用 StemSpan SFEM,并添加0.4% 富含胆固醇的脂质混合物和1% 青霉素/链霉素。
- 第一阶段培养基使用基础培养基,并添加干细胞因子(SCF,100 ng/mL)、促红细胞生成素(EPO,0.5 U/mL)和血小板生成素(TPO,30 ng/mL)。第二阶段培养基使用基础培养基,并添加SCF(50 ng/mL)、EPO(0.25 U/mL)和TPO(50 ng/mL)。第三阶段培养基使用基础培养基,并添加TPO(100 ng/mL)。
- 在I相培养基中培养PBMCs。第6-8天时,将PBMCs转入II相培养基;第9-12天时,将PBMCs转入III相培养基。
- 从第一阶段到第二阶段,以435 × g在室温下离心5分钟,更换培养基;从第二阶段到第三阶段,以95 × g在室温下离心5分钟,更换培养基,并将细胞重悬于新鲜培养基中。
- 在37℃培养箱中培养细胞 °C,5% CO2在这些原代培养中,巨核细胞分化持续10-14天,可在培养期间的不同时间点取样,以追踪巨核细胞分化过程。
- 基础培养基使用 StemSpan SFEM,并添加0.4% 富含胆固醇的脂质混合物和1% 青霉素/链霉素。
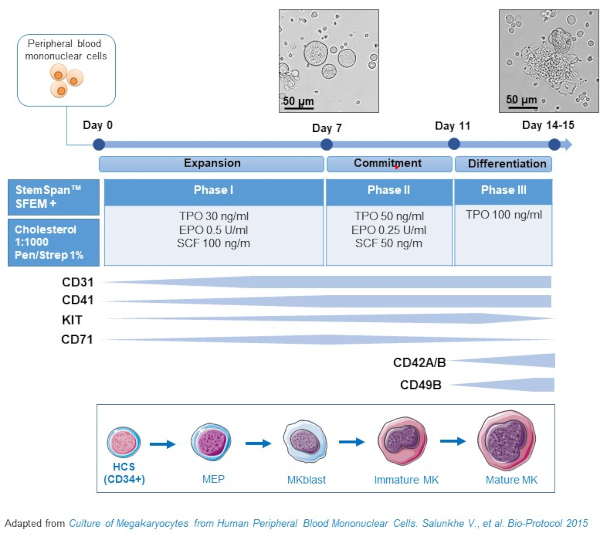
图2PBMC来源的巨核细胞培养方法示意图。 健康供者的外周血单个核细胞(PBMCs)按照我们开发的三阶段方案进行培养以生成巨核细胞(MK) 体外 (示意图改编自 Salunkhe 等人)15 培养第10天和第13天拍摄的图像如图所示。图像使用20倍物镜拍摄。 请点击此处以查看此图的放大版本。
- 样本采集:以低速离心(95 × g)5分钟洗涤细胞,随后将细胞重悬于磷酸盐缓冲液(PBS)或含1%牛血清白蛋白(BSA)的PBS中。进行免疫表型分析时,理想的细胞密度为105-106 细胞/100 μL (参见第3.1点)。根据培养物的状态(即, 存在死细胞、碎片等情况时,可能需要清洗1到2次。在培养过程中,于所需的时间点收集细胞。
3. 血小板分化免疫表型分析——与一组标记抗体孵育
- 按照标准操作流程,使用一组标记抗体孵育细胞样本,在处理巨核细胞时需注意以低速离心(95 × g)。通常在 4 °C 条件下,将样本在 100 μL 含 1% BSA 的 PBS 中孵育 20 分钟,细胞数量范围为 105–106 个。
- 必要时进行样本量的放大。
- 孵育后,加入 5 mL 含 1% BSA 的 PBS,低速离心(95 × g),吸除上清液,并将样本重悬于 2 mL 含 2% BSA 的 PBS 中以维持巨核细胞的活力。添加 1–5 mM EDTA 以破坏细胞间的聚集体(这在巨核细胞培养中为自然现象)。
- 将样本转移至 12 × 75 mm 圆底管(FACS 管)或孔板中,避光保存直至进行流式细胞术分析或细胞分选。
- 单个抗体及抗体组合混合物的制备;流式细胞仪的设置:
- 在使用前对抗体进行滴定,以确定其在抗体组合中的最佳浓度。抗体的最佳浓度是指能够清晰区分阳性与阴性细胞(并可识别表达水平的中间状态)的最低浓度。例如,大多数抗体使用 1:200 的稀释比例(储存浓度为 100 μg/mL),除非另有滴定结果或制造商特别说明。
- 确定抗体滴定浓度后,制备每种抗体的 10 倍稀释液。这些稀释液用于单色对照及抗体组合混合物的制备。稀释液和组合混合物在制备后即使存放一个月仍可使用(4 °C 保存,除非制造商说明禁止此类储存条件)。这 使得在一段时间内使用相同抗体组合对样本进行染色成为可能。
- 在单色对照和抗体组合混合物中,每 100 μL 使用 10 μL 的 10 倍稀释液。
- 对于单色对照,使用抗体亲和微球,加入抗体后可直接进行检测。每次实验均应检测单色对照,以便正确调整补偿参数(并在检测后通过分析软件进行精细调节)。
- 也可使用细胞样本进行单色对照。然而,微球可快速获取足够数量的检测事件,而根据抗体或表面标志物的不同,从复杂的原代或培养细胞来源中可能难以获得足够事件数。我们还建议在实验前运行使用“荧光减一”(FMO)抗体组合混合物染色的细胞样本,以设置合适的补偿参数。这一点尤为重要,可用于仔细识别补偿问题,特别是在培养的巨核细胞中识别自发荧光干扰(若使用含酚红的培养基,则可能出现自发荧光)。
- 根据样本数量制备足量的抗体组合混合物,其中包含设计组合中的所有抗体。我们的大多数组合包含六种抗体(6 色组合,参见 表 1–2)。
- 对于这些组合,使用流式细胞仪的 488 nm 和 633 nm 激光器,但组合也可根据其他技术条件进行调整。此外,在使用基于质谱的流式细胞术或具有声学聚焦技术的流式细胞仪时,可无需考虑补偿问题。
- 用于检测细胞活力的染料可能对巨核细胞提供错误信息,尤其是在其成熟阶段。巨核细胞具有很强的吞噬活性,因此 Hoechst、7-AAD 或 PE 的阳性信号并不总是反映真实的细胞死亡。如果需要检测细胞死亡,可考虑使用线粒体染料(CMX Ros)或胺反应性染料(Zombie 或 Ghost 染料)作为替代方案。
表1:巨核细胞谱系细胞表面标志物的说明 请点击此处下载该表格。
表2:抗体组合 请点击此处下载该表格。
4. 结合六色面板的倍性分析
- 进行倍性分析时,需在抗体组合染色孵育后,进行细胞的固定和透化处理。该策略可在保留细胞表面标志物染色的同时,实现对细胞DNA的染色。我们使用Hoechst 33342对DNA进行染色,因其可被现有的405 nm紫色激光激发检测。
- 对于105-106个细胞,在完成抗体组合染色孵育后,以95 × g离心5分钟,弃上清,将细胞重悬于200 μL固定缓冲液中,室温(RT)孵育10分钟。
- 按上述条件离心细胞,再次将细胞重悬于200 μL固定缓冲液中,室温(RT)继续孵育10分钟。
- 配制透化缓冲液,其中含0.1% Triton X-100、200 mg/mL RNase和20 mg/mL Hoechst 33342(即透化Hoechst混合液)。
- 按上述条件离心细胞,将细胞重悬于300 μL透化Hoechst混合液中,37 °C孵育30分钟。此步骤至关重要,因为为获得清晰的倍性测量结果,必须降解RNA。
- 孵育结束后,可直接使用流式细胞仪检测样本;否则,将样本置于4 °C避光保存,并尽快检测。由于样本已固定,检测可延迟24-48小时。检测前务必充分震荡混匀样本,或通过细胞滤网过滤,以确保形成单细胞悬液。
- 细胞固定后,前向散射(FSC)和侧向散射(SSC)等形态学参数将发生变化。固定后的细胞在FSC/SSC图中会呈现分布收缩现象。然而,表面标志物的染色基本得以保留,设门策略几乎不受影响,因此仍可依据表面标志物组合定义的不同分化阶段,分析各阶段细胞的倍性状态。
5. MK 分化分析
注意:我们发现,CD31/CD71 的联合使用可用于设定多个门,对应于巨核细胞(MK)分化过程的不同阶段。进一步结合巨核细胞特异性标志物进行反向设门,可区分成熟与未成熟的巨核细胞。此外,在新鲜样本中,通过反向设门验证其他所用标志物的存在,或将细胞群定位在前向散射/侧向散射 轴上,可进一步精确评估巨核细胞分化的各个阶段,并排除可能存在于相同门控群体中的其他细胞类型。
- 使用一组包含早期前体细胞标志物(KIT、CD34)、共同前体细胞标志物(CD31、CD71)以及谱系标志物(其中一些具有特异性,如 CD42A/CD42B、CD49B、CD41/CD61、CLEC2、GPVI 等)的抗体(参见表1-2)。使用谱系(Lin)抗体混合物(CD3、CD14、CD16、CD19、CD20 和 CD56)也有助于“排除”可能干扰分析的成熟造血细胞(在选择 Lin- 群体时)。作为示例,我们将在代表性结果中详细介绍在 PBMC、骨髓以及 PBMC 来源的细胞培养物中对巨核细胞(MK)的分析。
6. MK 及 MK 前体细胞分选
注意:使用配备 488 nm 和 633 nm 标准固态激光器的荧光激活细胞分选仪 FACS Aria IIu 及 FACSDiva 软件对染色细胞进行分析和分选;数据进一步使用 FlowJo 软件和 Cytobank(viSNE 分析)进行分析和展示。通过流式细胞术对每一份分选组分进行分析,以确认其纯度(纯度高于 85%)。
- 在抗体孵育后应尽快或在一小时内进行细胞分选,以避免细胞状态恶化。
- 使用100 µm细胞滤网过滤样品,以确保单细胞悬液以及大巨核细胞(MK)的完整性。
- 使用130 µm陶瓷喷嘴,鞘液压力设定为11磅每平方英寸(PSI),液滴驱动频率设定为12 kHz,以将液流断裂成液滴。
- 分选前,通过加入青霉素/链霉素(用无菌水按1:5稀释)进行30分钟的数据采集,随后用无菌水进行10分钟的数据采集,以去除残留去污剂,从而对喷嘴、鞘液管路和样品管路进行灭菌。
- 待液流稳定后,使用推荐的校准微珠调整液滴延迟时间,以便在每秒400–1200个事件的流速下,以精细模式分选时,超过97.5%的液滴被正确偏转。
- 在收集用FACS管中预先加入500 µL含2% BSA的PBS。BSA浓度可提高至5–10%。
- 使用正确的补偿矩阵参数生成实验模板。
- 将FACS管装入流式细胞仪。
- 对样品进行测量,以设定目标细胞群的门控区域和纯度。在细胞分选过程中,保持记录功能开启,显示所选门控区域内最多200,000个事件。
- FACS Aria IIu可同时分离最多4种不同的细胞群。创建新的分选布局,选择收集装置(4管)和适当的精度模式(推荐使用中等纯度与回收率的掩模模式)。最后,将感兴趣的细胞群添加至各个分选位置字段(图3)。
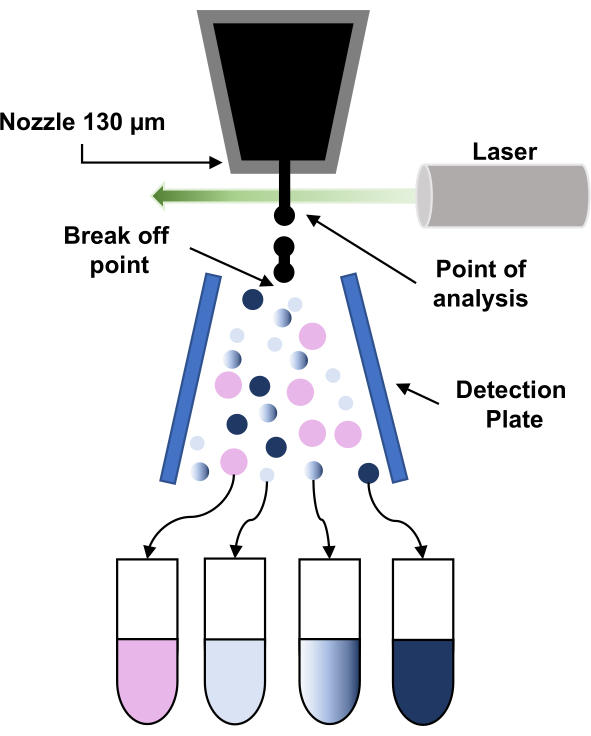
图3:荧光激活细胞分选(FACS)原理的示意图。 颗粒通过130 µm的喷嘴,并因对喷嘴施加振动而被迫断裂成规则液滴流。随后,液滴经过激光照射(分析点),信号被处理以作出“分选决策”,即对特定液滴施加电荷。当带电液滴通过高压静电场(检测板)时,其路径发生偏转,并被收集到相应的收集管中。 请点击此处查看该图的放大版本。
- 加载收集管并开始分选目标细胞群。
- 将收集管以 95 × g 离心 5 分钟,并用适量含 2% BSA 的 PBS 重悬细胞沉淀。
- 再次取各分选样品的一部分进行测量,以计算分选纯度。
- 将细胞妥善保存以供后续使用。分选后的细胞可用于细胞学和分子分析,也可重新培养,以研究特定细胞群体的分化过程。
7. 分选后样品制备
- 使用细胞离心机制备用于细胞学分析的细胞涂片
- 将分选后的细胞调整至易于操作的工作体积,为 100–200 µL。需注意,细胞浓度将取决于每次分选所得细胞群体的产量。
- 将洁净的载玻片放置于金属支架上,并放置滤纸垫片。请务必标记载玻片和滤纸垫片,以避免样品混淆。
- 在滤纸孔洞处滴加 100 µL PBS,使滤纸孔边缘湿润。
- 安装漏斗,合上金属支架,并将其放入离心机指定位置。
- 将样品(100–200 µL)加入漏斗中。
- 以 36 × g 离心 5 分钟。制备好的细胞涂片可在室温下自然干燥(需适当覆盖以防灰尘),并在免疫染色或组织化学染色前于室温保存最多 1 周。
- 用于免疫染色
- 将载玻片置于含 2% 多聚甲醛(PFA)的 PBS 溶液中固定,孵育 5 分钟。
- 可使用 0.5–4% 的 PFA PBS 溶液。根据我们的经验,对于组织或某些细胞类型,使用 4% PFA 可获得良好的固定效果,而血小板则使用 0.5% PFA PBS 即可。在建立该技术时,需针对不同细胞类型或来源优化 PFA 的最佳浓度。
- 在 PBS 中孵育 5 分钟。
- 在 50% 乙醇(EtOH)中孵育 5 分钟。
- 在 70% EtOH 中孵育 5 分钟。
- 在 -20ºC 条件下保存于 70% EtOH 中。
- 进行免疫染色时,需先进行再水化,然后按照标准流程操作(通透、洗涤、封闭、一抗与二抗孵育、封片保存等)。
- 将载玻片置于含 2% 多聚甲醛(PFA)的 PBS 溶液中固定,孵育 5 分钟。
- 用于细胞化学染色:
注意:细胞涂片可采用 May-Grünwald Giemsa 染色,或根据具体实验目的选择合适的染色方法。 - 用于即时形态学观察
- 在细胞涂片的细胞集中区域滴加一滴封片介质,并加盖盖玻片。
- 载玻片可在 4 °C 下保存不超过一周;若进行密封处理,则可在室温长期保存。使用封片介质固定后,可在室温长期保存。
访问受限。请登录或开始试用以查看此内容。
结果
骨髓与倍性
在 图4中,我们展示了来自患者骨髓样本(穿刺抽吸物)中巨核细胞生成过程的代表性免疫表型分析。当以CD71和CD31为参数绘制细胞群比例时,我们设定了六个主要细胞群:CD31- CD71-(红色)、CD31- CD71+(蓝色)、CD31+ CD71-(橙色)、CD31+ CD71mid(浅绿色)、CD31+ CD71+(深绿色)以及CD31++ CD71mid(奶油色)。这些细胞群的位置并非始终一致(在流式细胞仪设置恒定的前提下),如图所示,这一点应予以考虑。这种差异可能与疾病的病理状态及骨髓整体状况本身有关。将上述六个细胞群反向设门,并叠加显示在针对 panel 中包含的成熟标志物(CD42A/CD42B)以及前向散射光(Fo...
访问受限。请登录或开始试用以查看此内容。
讨论
迄今为止,大多数通过流式细胞术研究巨核细胞生成的研究仅局限于使用谱系特异性表面标志物来鉴定巨核细胞亚群即,CD42A/CD42B,CD41/CD61),而对更早期的巨核细胞分化阶段的研究则较为有限。本文展示了一种免疫表型分析策略,可用于对人类巨核细胞生成过程进行系统的流式细胞术表征。总体而言,我们希望强调在同一套流式细胞术抗体组合中联合使用巨核细胞特异性与非特异性表面标志物(表1和表2)的重要性,以更细致地研究巨核细胞生成过程。我们的新方法可作为辅助血液系统疾病诊断和/或预后的有力工具。我们认为,本文所提出的抗体组合及搭配方案并非最终定论。我们在人类原代样本(主要为骨髓样本)中观察到表面标志物具有高度动态的变化特征,且该特征还依赖于潜在的病理状态。未来仍需开展更多研究,我们期望科学界能逐步应用此方法,并结合针对单一疾病的研究所提供的反馈,进一步探讨巨核细胞生成分期在疾病诊断或预后判断中的价值。正如引言部分所述,考虑到巨核细胞分化的多种路径,在原代组织中同时开展造血干细胞(HSC)与巨核细胞的联合表征具有重要意义,值得进一步深入探索。值得注意的是,我们还能够在外周血单个核细胞(PBMCs)中检测到巨核细胞,这一发现颇具意...
访问受限。请登录或开始试用以查看此内容。
披露
音视频材料的制作得到了 BD Biosciences 的支持。
致谢
感谢Marcos Pérez Basterrechea、Lorena Rodríguez Lorenzo和Begoña García Méndez(HUCA)以及Paloma Cerezo、Almudena Payero和María de la Poveda-Colomo(HCSC)提供的技术支持。本研究部分得到了Roche公司医学资助项目(Roche SP200221001)对A.B.的支持,西班牙经济与竞争力部授予L.G.的RYC青年研究员基金(RYC-2013-12587)和I+D 2017项目基金(SAF2017-85489-P;西班牙科学、创新与大学部及FEDER基金),西班牙阿斯图里亚斯自治区科学、创新与大学理事会授予P.M.-B.的Severo Ochoa基金(PA-20-PF-BP19-014),以及阿斯图里亚斯生物医学研究与创新基金会(FINBA,西班牙奥维耶多)2018年内设博士后基金对A.A.-H.的支持。我们感谢Reinier van der Linden分享其专业知识(和时间),特别是他在多色标记抗体组合方案设计及单色微球对照制备方面提供的宝贵建议。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 130 微米喷嘴 | BD | 643943 | MK 分选所需 |
| 5810R 离心机 | Eppendorf | 细胞分离与洗涤 | |
| A-4-62 摆桶转子 | Eppendorf | 细胞分离与洗涤 | |
| Aerospray Pro 血液学载片染色仪 / 细胞离心涂片机 | ELITech Group | 自动化细胞学设备,载片使用 Mat-Grünwald Giemsa 染色 | |
| CO2 培养箱 Galaxy 170 S | Eppendorf | 细胞培养 | |
| Cytospin 4 细胞离心涂片机 | Thermo Scientific | 用于制备细胞涂片 | |
| FACSAria IIu 分选仪 | BD | 激光波长:488 nm 和 633 nm | |
| FACSCanto II 流式细胞仪 | BD | 激光波长:488 nm、633 nm 和 405 nm | |
| Olympus 显微镜 BX 41 | Olympus | 显微摄影 | |
| Olympus 显微镜 BX 61 | Olympus | 显微摄影 | |
| Zoe 荧光细胞成像仪 | BioRad | 显微摄影 | |
| 获取 PBMCs | |||
| 富含胆固醇的成年牛血清脂质 | Sigma-Aldrich | L4646 | 或类似产品 |
| Lymphoprep | Stem Cell Technologies | #07801 | 或类似产品 |
| 青霉素-链霉素 | Sigma-Aldrich | P4333 | 或类似产品 |
| 重组人促红细胞生成素(EPO) | R&D Systems | 287-TC-500 | 或类似产品 |
| 重组人干细胞因子(SCF) | Thermo Fisher Scientific, Gibco™ | PHC2115 | 或类似产品 |
| 重组人血小板生成素(TPO) | Thermo Fisher Scientific, Gibco™ | PHC9514 | 或 TPO 受体激动剂 |
| StemSpan SFEM | Stem Cell Technologies | #09650 | |
| 流式细胞术分析 | |||
| 牛血清白蛋白 | Merck | A7906-100G | 或类似产品 |
| BD CompBead Anti-Mouse Ig, κ/阴性对照补偿微球套装 | BD | 552843 | 针对人细胞的抗体通常来源于小鼠 |
| BD Cytofix/Cytoperm | BD | 554714 | 或类似产品 |
| BD FACS Accudrop 微球 | BD | 345249 | |
| CD31 AF-647 | BD | 561654 | 小鼠抗人 |
| CD31 FITC | Immunostep | 31F-100T | |
| CD34 FITC | BD | 555821 | 小鼠抗人 |
| CD41 PE | BD | 555467 | 小鼠抗人 |
| CD41 PerCP-Cy5.5 | BD | 333148 | 小鼠抗人 |
| CD42A APC | Immunostep | 42AA-100T | 我们观察到非特异性结合……需进行评估 |
| CD42A PE | BD | 558819 | 小鼠抗人 |
| CD42B PerCP | Biolegend | 303910 | 小鼠抗人 |
| CD49B PE | BD | 555669 | 小鼠抗人 |
| CD61 FITC | BD | 555753 | 小鼠抗人 |
| CD71 APC-Cy7 | Biolegend | 334109 | 小鼠抗人 |
| Hoechst 33342 | Thermo Fisher Scientific | H3570 | |
| 人源 BD Fc 封闭剂 | BD | 564219 | Fc 封闭对照 |
| KIT PE-Cy7 | Biolegend | 313212 | 小鼠抗人 |
| Lineage Cocktail 2 FITC | BD | 643397 | 小鼠抗人 |
| RNase | Merck | R6513 | 或类似产品 |
| Triton X-500 | Merck | 93443-500ML | 或类似产品 |
| 用于分选的细胞筛 | |||
| CellTrics 滤器 100 微米 | Sysmex | 04-004-2328 | 细胞筛 |
| 注:我们未列出通用试剂/化学品(如 PBS、EDTA 等)、一次性耗材(如离心管等)或已在先前发表的标准方案中指定的试剂 ——除非另有说明。 |
参考文献
- Italiano, J. E. Unraveling Mechanisms That Control Platelet Production. Semin Thrombosis And Haemostasis. 39 (1), 15-24 (2013).
- Machlus, K. R., Italiano, J. E. The Incredible Journey: From Megakaryocyte Development To Platelet Formation. Journal Of Cell Biology. 201 (6), 785-796 (2013).
- Eckly, A., et al. Biogenesis Of The Demarcation Membrane System (DMS) In Megakaryocytes. Blood. 123 (6), 921-930 (2014).
- Couldwell, G., Machlus, K. R. Modulation Of Megakaryopoiesis And Platelet Production During Inflammation. Thrombosis Research. 179, 114-120 (2019).
- Kosaki, G. In Vivo Platelet Production From Mature Megakaryocytes: Does Platelet Release Occur Via Proplatelets. International Journal Of Hematology. 81 (3), 208-219 (2005).
- Lefrancais, E., Looney, M. R. Platelet Biogenesis In The Lung Circulation. Physiology (Bethesda). 34 (6), 392-401 (2019).
- Nieswandt, B., Stritt, S. Megakaryocyte Rupture For Acute Platelet Needs. Journal Of Cell Biology. 209 (3), 327-328 (2015).
- Nishimura, S., et al. IL-1alpha Induces Thrombopoiesis Through Megakaryocyte Rupture In Response To Acute Platelet Needs. Journal Of Cell Biology. 209 (3), 453-466 (2015).
- Sanjuan-Pla, A., et al. Platelet-Biased Stem Cells Reside At The Apex Of The Haematopoietic Stem-Cell Hierarchy. Nature. 502 (7470), 232-236 (2013).
- Notta, F., et al. Distinct Routes Of Lineage Development Reshape The Human Blood Hierarchy Across Ontogeny. Science. 351 (6269), 2116(2016).
- Yamamoto, R., et al. Clonal Analysis Unveils Self-Renewing Lineage-Restricted Progenitors Generated Directly From Hematopoietic Stem Cells. Cell. 154 (5), 1112-1126 (2013).
- Wang, H., et al. Decoding Human Megakaryocyte Development. Cell Stem Cell. , (2020).
- Meinders, M., et al. Repercussion Of Megakaryocyte-Specific Gata1 Loss On Megakaryopoiesis And The Hematopoietic Precursor Compartment. Plos One. 11 (5), 0154342(2016).
- Meinders, M., et al. Sp1/Sp3 Transcription Factors Regulate Hallmarks Of Megakaryocyte Maturation And Platelet Formation And Function. Blood. 125 (12), 1957-1967 (2015).
- Salunkhe, V. P., Gutiérrez, L. Culture Of Megakaryocytes From Human Peripheral Blood Mononuclear Cells. Bio-Protocol. 5 (21), 1639(2015).
- Choudry, F. A., et al. Transcriptional Characterization Of Human Megakaryocyte Polyploidization And Lineage Commitment. Journal Of Thrombosis And Haemostasis. , 15271(2021).
- Heazlewood, S. Y., Williams, B., Storan, M. J., Nilsson, S. K. The Prospective Isolation Of Viable, High Ploidy Megakaryocytes From Adult Murine Bone Marrow By Fluorescence Activated Cell Sorting. Methods In Molecular Biology. 1035, 121-133 (2013).
- Tomer, A., Harker, L. A., Burstein, S. A. Purification Of Human Megakaryocytes By Fluorescence-Activated Cell Sorting. Blood. 70 (6), 1735-1742 (1987).
- Martinez-Botia, P., Acebes-Huerta, A., Seghatchian, J., Gutierrez, L. On The Quest For In Vitro Platelet Production By Re-Tailoring The Concepts Of Megakaryocyte Differentiation. Medicina. 56 (12), Kaunas. (2020).
- Martinez-Botia, P., Acebes-Huerta, A., Seghatchian, J., Gutierrez, L. In Vitro Platelet Production For Transfusion Purposes: Where Are We Now. Transfusion And Apheresis Science. 59 (4), 102864(2020).
- Butov, K. R., et al. In Vitro Megakaryocyte Culture From Human Bone Marrow Aspirates As A Research And Diagnostic Tool. Platelets. , 1-8 (2020).
- Di Buduo, C. A., et al. A Gold Standard Protocol For Human Megakaryocyte Culture Based On The Analysis Of 1,500 Umbilical Cord Blood Samples. Thrombosis And Haemostasis. , (2020).
访问受限。请登录或开始试用以查看此内容。
重印与许可
