本方案详细描述了一种从全血、血沉棕黄层或白细胞单采膜中分离中性粒细胞的方法,可获得较高的细胞得率、高纯度以及最低程度的细胞活化。我们采用梯度纯化、红细胞(RBC)沉降和红细胞裂解法,以获取高质量/高纯度的中性粒细胞制备物。
本文内容
摘要
摘要
中性粒细胞(PMN)是人体循环中最丰富的白细胞,占外周血白细胞总数的40%至70%。它们是炎症发生时通过血管快速外渗最先被募集到炎症部位的细胞。在炎症部位,中性粒细胞执行多种功能,以杀灭入侵的病原体并介导免疫信号传导。从人外周血中新鲜分离的中性粒细胞是研究的首选模型,因为目前尚无任何细胞系能够完全模拟中性粒细胞的功能和生物学特性。然而,中性粒细胞是寿命短、终末分化的细胞,极易因物理因素(如温度、离心速度)和生物因素(如内毒素、趋化因子和细胞因子)的刺激而被激活。因此,遵循一种标准化、可靠且快速的方法以获得高纯度且未活化的细胞至关重要。本实验方案更新了结合密度梯度离心、红细胞(RBC)沉降和红细胞裂解的方法,以获得高纯度的中性粒细胞并最大限度减少细胞活化。此外,本文还讨论了评估中性粒细胞分离质量、活力和纯度的相关方法。
引言
先天免疫系统由多种细胞类型组成,这些细胞在维持免疫稳态、清除病原体以及其他多种生理功能中发挥重要作用。中性粒细胞是人体循环中数量最多的白细胞1。大多数成熟的中性粒细胞储存于骨髓中,而骨髓也是新生中性粒细胞生成的场所,该过程也称为粒细胞生成。在骨髓中,粒细胞前体细胞退出细胞周期并发生终末分化,获得其典型的分叶核结构和颗粒2。在炎症条件下,趋化因子、细胞因子以及损伤相关分子模式和病原体相关分子模式可激活中性粒细胞,使其从血液循环中动员并离开骨髓,执行多种功能,包括分泌细胞因子、直接吞噬病原体、释放活性氧、脱颗粒释放抗菌蛋白以及形成中性粒细胞胞外诱捕网(neutrophil extracellular traps)。
中性粒细胞用于抵抗感染的分子对微生物和宿主均有毒性。因此,衰老或即将死亡的中性粒细胞的寿命及其清除过程受到严格调控,其在循环系统中的寿命较短(<48 h)3。由于存活时间短暂,人体每天平均生成约1000亿个新的中性粒细胞 ,以维持细胞数量的稳态4。在炎症和感染期间,应急性粒细胞生成可进一步增加血液中成熟和未成熟中性粒细胞的释放5。获得性或先天性中性粒细胞减少症患者易受细菌和真菌感染,这凸显了中性粒细胞在先天免疫应答中的重要性6。
由于中性粒细胞本身具有生存期短和含有细胞毒性物质等特点,在研究其生物学特性及其在免疫应答中的作用时面临诸多挑战。中性粒细胞样细胞系通常由人早幼粒细胞白血病HL-60细胞和PLB-985细胞分化而来7,8。尽管这些细胞系可表现出类似中性粒细胞的形态并具备趋化能力,但无法完全模拟中性粒细胞的生物学行为。体外实验中使用这些细胞系亦难以重现体内实验的结果。此外,这些细胞的分化需要诱导,且在分化前的基因操作可能对分化过程产生不利影响。
近年来,已开发出利用可诱导启动子在HL-60细胞分化后调控基因表达的方法,以克服上述问题9。尽管拥有此类工具,仍需要使用原代人中性粒细胞通过药理学手段验证靶点。因此,获取从血液中分离出的纯净且未活化的中性粒细胞,对于验证细胞系和动物模型的研究结果至关重要。本文介绍了一种改进的中性粒细胞(PMN)分离方案,其中评估了现有方法的优缺点10。该方法结合了梯度离心法以分离中性粒细胞与其他免疫细胞、基于右旋糖酐的短时沉降法以去除大部分红细胞(RBCs)、通过渗透压快速裂解残留红细胞,以及低速离心以去除血小板污染。
方案
注意:人中性粒细胞从波士顿儿童医院血库实验室提供的废弃白细胞过滤器中的静脉血分离获得。献血者信息无法识别,且未与任何活体个体发生接触,亦不知晓任何可识别的个人信息。因此,根据美国卫生与公共服务部(HHS)关于人类受试者的研究法规(45 CFR Part 46),本工作不被归类为涉及人类受试者的研究。该研究方案已获得波士顿儿童医院机构审查委员会(IRB)的批准。
1. 梯度层的制备
- 对血沉棕黄层或全血包装以及超净台进行灭菌后,将血液分装至50 mL离心管中,每管加入10 mL血液。
- 用5%胎牛血清(FBS)/Hank's平衡盐溶液(HBSS)将液体体积补至35 mL,以稀释血液,获得更清晰的梯度。
注意:使用白细胞分离膜时,可通过60 mL注射器将每片滤膜冲洗出细胞,并加入30 mL 5% FBS/HBSS。若使用新鲜抽取的全血,则无需稀释。 - 盖紧50 mL离心管盖子,反复倒置混匀数次,并将管子倒置放置,使底部不含红细胞。
- 在血液下方直接加入10 mL密度梯度介质(见材料表),确保介质与血液不混合,界面清晰(图1A)。
注意:此步骤至关重要。确保每次使用前密度梯度液处于室温(RT)并充分混匀。第一毫升密度梯度介质应尽可能缓慢、平稳地铺层,建议将电子移液器速度设为低速。 - 将离心管轻柔放入离心机中,避免扰动梯度,于室温下以400 × g离心30分钟,并确保关闭刹车。观察离心后梯度分层情况:上层为血清/血浆层,中间为外周血单个核细胞(PBMCs)的白色环状层,下方为浑浊的密度梯度介质层,最底部为红细胞沉淀,其上方有一层白色、较薄的中性粒细胞带(图1B)。
注意:离心后若管壁一侧出现浑浊或不透明现象,可能提示细胞(中性粒细胞)已被激活,不宜使用。 - 首先移除PBMC层,将吸液管直接插入PBMC层中。在去除白色环状层的同时,确保完全吸取,此时血清/血浆层体积会随之减少。用吸液管轻轻刮取管壁侧面沉淀的细胞,以最大程度回收PBMC。小心移除PBMC环与中性粒细胞/红细胞沉淀之间的浑浊密度梯度介质层。
注意:刮取管壁侧面沉淀的细胞可显著提高分离纯度。注意避免吸入沉淀层,因为大部分中性粒细胞位于红细胞上方。
2. 红细胞(RBCs)的沉降
- 使用 10 mL 移液管将中性粒细胞/红细胞沉淀转移至洁净离心管中。切勿反复吹打。加入 5% FBS/HBSS 至终体积为 25 mL,轻轻颠倒混匀。
注意:在去除 PBMC 后进行红细胞沉降可提高得率并减少细胞活化10。 - 直接向含有稀释后中性粒细胞/红细胞沉淀的离心管中加入 25 mL 预热(37 °C)的 3% 右旋糖酐/0.9% NaCl/H2O,轻轻颠倒混匀。将离心管置于水平、无振动的表面上静置 15 分钟(图 1C)。
注意:延长沉降时间可减少红细胞污染,但也会降低细胞得率。此外,长时间接触右旋糖酐可能导致中性粒细胞活化或细胞死亡11。 - 轻柔地将离心管移回生物安全柜内(用于无菌分离)。将移液管仅轻微浸入液体中,从液面开始向下收集上层液体(约 30 mL)。
注意:若沉降后介质与红细胞之间界面清晰、红细胞沉淀较小,或需要更高得率,可收集至多 35 mL。 - 离心(400 × g,10 分钟,室温,使用低刹车(3)),得到红色沉淀,且上清液中无悬浮颗粒。
3. 残余红细胞的裂解
- 轻轻吸走上清液,避免扰动沉淀。
- 向离心管中直接加入 25 mL 无菌超纯水,通过轻轻颠倒混匀 28 秒以裂解红细胞。切勿使用移液器重悬沉淀。
注意:混匀时间不得超过 30 秒,因为长时间低渗条件可能激活中性粒细胞并导致其死亡12。 - 立即向管中加入 25 mL 无菌 1.8% NaCl/H2O,轻轻颠倒混匀,使溶液恢复等渗状态。
注意:溶液应呈红色,但无浑浊。 - 以 200 × g 离心 3–5 分钟,使用低刹车(3 级),以尽量减少红细胞和血小板与中性粒细胞共同沉淀(图 1D 和 图 2)13,14。
注意:沉淀应为白色,顶部仅有少量红细胞层,可在吸除上清液时轻轻去除。 - 用移液器将培养基(10% FBS/RPMI1640)直接加在沉淀上以重悬中性粒细胞,但不要反复吹打。水平轻轻摇动离心管,以尽量减少细胞激活。
注意:细胞浓度应维持在约 2 × 10⁶ 个细胞/mL,密度过高会导致细胞激活或死亡增加15。出于同样原因,细胞沉淀应尽快重悬。 - 若观察到细胞聚集或结块,使用 70 µm 滤网过滤细胞悬液,弃去结块的中性粒细胞。
4. 确定中性粒细胞分离质量
- 使用针对中性粒细胞(CD66b、CD11b)、嗜酸性粒细胞(CD193)(图3)以及活化标志物如CD62L(图4)的特异性标记物对细胞进行染色。通过流式细胞术采集20,000个细胞。采用图3和图4中提出的设门策略分析细胞纯度和活化状态。
注意:可使用3%乙酸-亚甲蓝溶液对中性粒细胞进行染色,以观察其特有的分叶核形态,从而评估中性粒细胞制备的质量。 - 使用Annexin V/碘化丙啶(PI)检测细胞活力(图5)。
注意:也可使用台盼蓝染色法评估细胞活力。
结果
使用密度梯度法纯化中性粒细胞时,血液与密度梯度介质之间的界面必须尽可能清晰,并且在离心后(步骤1.4)仍保持明显的分层。红细胞裂解后,缓冲液应呈清澈的红色,而非浑浊(步骤3.3)。如果悬液浑浊,可能需要进行第二轮裂解(步骤3),但此举可能影响中性粒细胞的存活率(图1)。裂解后,当以纯度为优先考虑时,建议采用低速离心(200 × g),因为这能显著减少血小板污染。然而,高速离心(400 × g)虽会牺牲纯度,但可提高细胞得率(步骤3.4,图2)。中性粒细胞分离后,应采用荧光激活细胞分选法评估分离纯度(步骤4.1),优于显微镜检查。尽管仅通过细胞的FSC/SSC分布即可初步判断细胞分离质量(图3A),但仍应优先使用特异性细胞标志物进行鉴定。在此情况下,最常见的污染细胞群体可与特异性抗体及在粒细胞上特异性表达的CD66b共同染色。CD45染色用于区分白细胞(CD45+)与红细胞和血小板(CD45-)。
其他污染物包括淋巴细胞(CD3+ 或 CD19+,图 3F)、单核细胞(CD14+,图 3D)和嗜酸性粒细胞(CD193+,图 3G)。CD11b 是髓系细胞表面表达的一种整合素;中性粒细胞和单核细胞为 CD11b+,而淋巴细胞为 CD11b-(图 3C)。由于中性粒细胞的活化可能影响后续实验,应评估 CD62L 的表达情况;中性粒细胞活化后会变为 CD62L-(步骤 4.1)。肽 fMLP 可用作 CD62L 脱落的阳性对照(图 4)。在进行检测前评估中性粒细胞的健康状态也十分重要;中性粒细胞的半衰期相对较短,活化会进一步缩短其寿命(步骤 4.2)。标准的 Annexin V 与 PI 染色可在指定时间点提供中性粒细胞培养物中活细胞与死细胞的比例信息(图 5)。
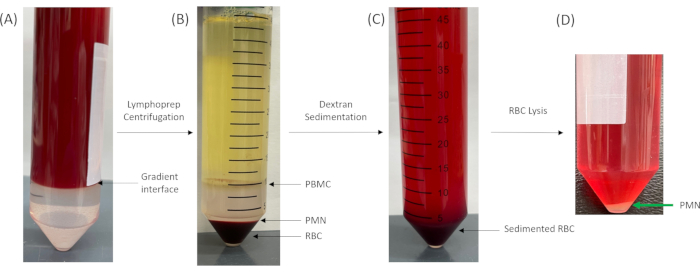
图1:基于密度梯度介质的粒细胞分离。(A)离心前和(B)离心后。注意血液与密度梯度介质层之间清晰的界面。(C)将(B)中的沉淀物以1:1比例重悬于5% FBS/HBSS和3% Dextran-0.9% NaCl中后的沉降情况。(D)将(C)上清液中的残留红细胞经H2O裂解后获得的中性粒细胞沉淀物。缩写:PBMC = 外周血单个核细胞;PMN = 中性粒细胞;RBC = 红细胞;FBS = 胎牛血清;HBSS = Hank's平衡盐溶液。请点击此处查看该图的放大版本。
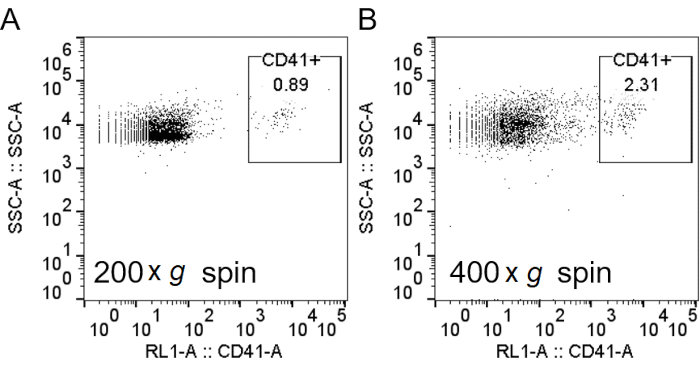
图2:红细胞裂解后以较低速度离心可减少血小板污染。 使用H2O裂解红细胞后,细胞分别在200 × g(A)或400 × g(B)条件下离心沉淀。中性粒细胞经染色后,按照图3所述方法进行流式细胞术分析,并额外加入抗CD41抗体以标记血小板。缩写:RBC = 红细胞;CD41 = 分化簇41;SSC-A = 侧向散射-面积。请点击此处查看该图的高清版本。
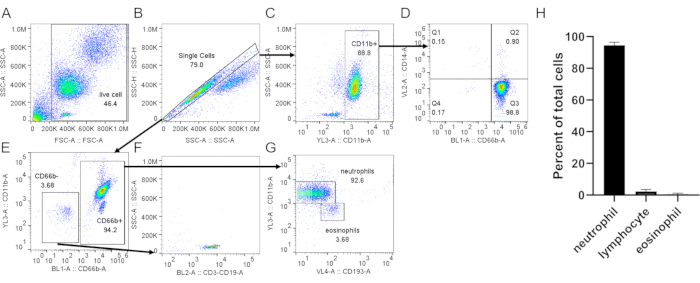
图3:从血沉棕黄层分离的中性粒细胞的评估。 按照标准操作流程,对分离的中性粒细胞使用抗CD66b、抗CD11b、抗CD14和抗CD193抗体进行染色。从总细胞(A)中设门获得单细胞群体(B)。(C)从单细胞中设门获得CD11b+细胞。(D)点图显示中性粒细胞(CD66b+,CD14低/-)以及极低水平的单核细胞污染(CD66b-,CD14+,Q1)。(E)设门区分CD66b-和CD66b+细胞。(F)CD66b-细胞表达淋巴细胞标志物(CD3、CD19)。(G)在CD66b+细胞中CD11b和CD193的表达情况,显示了明显的中性粒细胞(CD66b+,CD11b+,CD193-)和嗜酸性粒细胞(CD66b+,CD11b-,CD193+)群体。在此代表性结果中,中性粒细胞纯度约为93%,淋巴细胞污染约为3.7%,嗜酸性粒细胞污染约为3.7%。(H)纯化后中性粒细胞纯度的定量分析。数据汇总自5次独立实验,以均值±标准差表示。缩写:CD = 分化簇;SSC-A = 侧向散射-面积;FSC-A = 前向散射-面积。 请点击此处查看此图的放大版本。
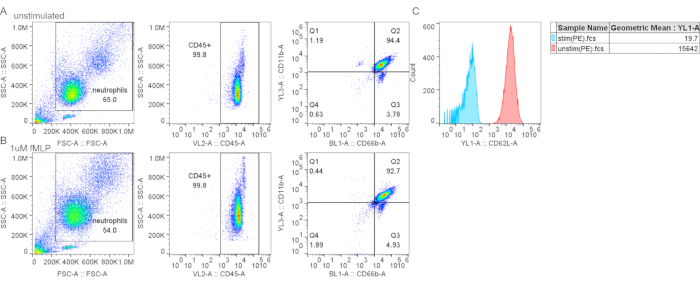
图4梯度纯化未引起 CD62L 脱落。 (A-B对照组(Control)A) 或 fMLP 刺激的中性粒细胞(B)(1 mM fMLP,37°C 下作用 15 分钟 37 °C)用中性粒细胞标记物和 CD62L 进行染色。CfMLP 处理的细胞中 CD62L 的荧光平均强度降低,表明 CD62L 脱落及中性粒细胞活化。缩写:CD26L = L-选择素;fMLP = N-甲酰甲硫氨酰-亮氨酰-苯丙氨酸;SSC-A = 侧向散射-面积;FSC-A = 前向散射-面积;PE = 藻红蛋白。 请点击此处以查看此图的放大版本。
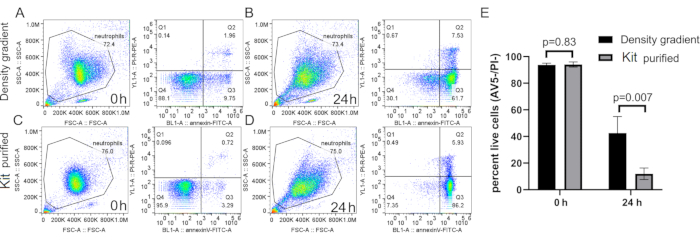
图5:通过密度梯度法或中性粒细胞分离试剂盒纯化的中性粒细胞的自发性死亡情况。中性粒细胞通过密度梯度法(A 和 B)或商用磁珠法(C 和 D)进行纯化,并在RPMI-10% FCS培养基中培养0 h(A 和 C)或24 h(B 和 D)。在相应时间点,按照标准操作流程使用Annexin V和PI对细胞进行染色。(E)纯化中性粒细胞自发性死亡的定量分析。n=5,均值 ± 标准差。缩写:SSC-A = 侧向散射-面积;FSC-A = 前向散射-面积;PI = 碘化丙啶;FCS = 胎牛血清;FITC = 异硫氰酸荧光素;AV5 = Annexin V。 请点击此处查看该图的放大版本。
讨论
由于中性粒细胞寿命较短、处于终末分化状态且含有裂解性成分,研究这些细胞一直具有挑战性。除了使用小鼠模型或患者队列来源的细胞外,细胞系也是研究中性粒细胞生物学的有用工具16然而,类中性粒细胞系无法完全重现中性粒细胞生物学的所有方面,这为研究这些细胞增加了额外的难度。最常用的 体外 模型为HL-60细胞系,该细胞系可通过二甲基亚砜或维甲酸处理诱导分化为类中性粒细胞17,18尽管这些细胞在迁移和呼吸爆发研究中具有应用价值,但并不适用于中性粒细胞杀微生物活性的研究。其他细胞系(如PLB-98、NB4)也存在,但同样具有各自的局限性。19.
使用小鼠疾病模型和细胞系获得的研究结果,必须通过原代人中性粒细胞进行验证,这一点至关重要。中性粒细胞无法被有效冷冻保存,因此通常需要从供体获取的全血或血沉棕黄层中新鲜分离,并立即进行处理。一旦分离,这些细胞即开始经历一种复杂的自发性死亡过程,该过程受氧化作用以及中性粒细胞颗粒中含有的胞质caspase和蛋白酶调控20,21。不恰当的分离方法或操作技术可能导致中性粒细胞被激活,从而加速细胞死亡。因此,建立一种可靠且稳定的方法,以从供体获得高纯度和高质量的中性粒细胞,显得极为必要。
已有多种关于人中性粒细胞分离的方法被发表10,22。这些方法主要分为两类,且部分策略存在共通之处。第一类基于抗体,包括阳性选择或阴性选择。阳性选择可直接标记中性粒细胞,从而获得纯度很高的细胞群体,但同时也会导致细胞迅速活化、死亡以及中性粒细胞的非预期标记23。阴性选择虽不标记细胞且可获得极高纯度的细胞群体,但会加速中性粒细胞的死亡,尽管其确切机制尚不明确(图5)。阳性或阴性选择后基因或蛋白质表达是否发生改变,仍有待进一步研究。此外,由于需要大量抗体来耗尽其他类型的细胞,这些方法无法获得大量中性粒细胞。然而,基于抗体的分离方法仍可用于小规模的短期培养和实验,尤其适用于对细胞纯度要求极高的实验,例如基因和蛋白质表达研究。
第二种分离方法基于梯度和密度,通常涉及Percoll、Ficoll-Paque或其他多糖/聚乙烯吡咯烷酮组分,利用离心力根据细胞密度分离不同类型的血细胞。这些方法常结合右旋糖酐沉降红细胞的步骤。此类方法可处理较大规模的起始材料,也能实现较高的纯度。基于密度分离的一个局限性在于,难以有效将其他丰度极低的粒细胞(主要是嗜酸性粒细胞)与中性粒细胞分开,因此这是本方案的主要限制因素,因为即使少量的细胞污染也可能影响中性粒细胞的反应24。
本文介绍了一种基于梯度分离的简化方法,该方法在先前方法的基础上进行了优化10,22。我们利用当前对中性粒细胞特性的认识,可靠地分离出高纯度的人中性粒细胞,同时最大限度地减少残留的血小板和红细胞,防止中性粒细胞活化及过早死亡。其中最关键的步骤是梯度层的叠加,通过将密度梯度介质加在血液下方以形成清晰的界面,可更有效地实现分层。离心后对PBMC环和梯度层进行快速检查,可发现可能存在的污染、细胞活化或得率低等问题。当使用白细胞单采术膜或血沉棕黄层时,稀释血液至关重要,因为过高的细胞密度会导致细胞聚集,从而引起杂质和细胞活化。
为确保细胞活性,本实验方案应在2小时内完成,涉及密度梯度介质、右旋糖酐和裂解的步骤应立即进行,因为暴露于这些溶液可能改变中性粒细胞的特性。采用本方案,预期每10 mL全血可获得至少约1000万个中性粒细胞,每10 mL血沉棕黄层可获得至少约6000万个中性粒细胞。分离质量的评估标准如下:活化中性粒细胞比例应低于10%,淋巴细胞污染应低于5%,嗜酸性粒细胞污染应极少(具有相同的侧向散射但前向散射较低的细胞群),细胞活力应超过90%。纯度降低可能源于密度梯度介质铺层不当或储存不当,或起始血液样品的质量和新鲜度不佳。
披露
作者声明本研究在无任何利益冲突的情况下进行。
致谢
本项目由 P01HL095489 资助。A.Y.H. 由 T32HL066987 资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 3%乙酸与亚甲蓝 | 干细胞技术 | #07060 | |
| Attune NxT | invitrogen | A24858 | FACS 分析仪 |
| Cd11b-PE | biolegend | 301305 | |
| CD14-BV421 | biolegend | 367144 | |
| CD193-BV605 | biolegend | 310716 | |
| CD19-PerCP | biolegend | 302228 | |
| CD3-PerCP | biolegend | 300326 | |
| CD41-APC | biolegend | 303710 | |
| Cd45-APC | biolegend | 103111 | |
| CD62L-PE | biolegend | 304802 | |
| CD66b-FITC | biolegend | 305103 | |
| Centrifuge 5810R | Eppendorf | 22625101 | 离心 |
| 葡聚糖 | Fisher | BP1580 | |
| 胎牛血清(FBS) | R&D系统 | S11150H | 建议对胎牛血清进行补体灭活 |
| FITC Annexin V 凋亡检测试剂盒 I | BD | 556547 | |
| 不含氯化钙的汉克斯平衡盐溶液2),(-MgCl2) (-MgSO₄)4) | Gibco | 14175-095 | 不含 Ca 的 HBSS2+/毫克2+ 建议 因为它们已被证明可导致中性粒细胞活化 |
| Lymphoprep | 干细胞技术 | #07801 | 密度梯度介质 |
| MACSxpress 全血中性粒细胞分离试剂盒,人 | Miltenyi | 130-104-434 | |
| RPMI-1640 | Gibco | 11875093 | |
| 氯化钠 | sigma | 71376 | |
| 0.4% 台盼蓝溶液 | 赛默飞世尔科技 | 15250061 | |
| 超纯水 | KD 医疗 | RGF-3410 |
参考文献
- Rosales, C. Neutrophil: A cell with many roles in inflammation or several cell types. Frontiers in Physiology. 9, 113(2018).
- Amulic, B., Cazalet, C., Hayes, G. L., Metzler, K. D., Zychlinsky, A. Neutrophil function: from mechanisms to disease. Annual Review of Immunology. 30, 459-489 (2012).
- Stoller, J. K. Murray & Nadel's textbook of respiratory medicine, 6th edition. Annals of the American Thoracic Society. 12 (8), 1257-1258 (2015).
- Dancey, J. T., Deubelbeiss, K. A., Harker, L. A., Finch, C. A. Neutrophil kinetics in man. Journal of Clinical Investigation. 58 (3), 705-715 (1976).
- Manz, M. G., Boettcher, S. Emergency granulopoiesis. Nature Reviews. Immunology. 14 (5), 302-314 (2014).
- Summers, C., et al. Neutrophil kinetics in health and disease. Trends in Immunology. 31 (8), 318-324 (2010).
- Pedruzzi, E., Fay, M., Elbim, C., Gaudry, M., Gougerot-Pocidalo, M. A. Differentiation of PLB-985 myeloid cells into mature neutrophils, shown by degranulation of terminally differentiated compartments in response to N-formyl peptide and priming of superoxide anion production by granulocyte-macrophage colony-stimulating factor. British Journal of Haematology. 117 (3), 719-726 (2002).
- Tucker, K. A., Lilly, M. B., Heck, L., Rado, T. A. Characterization of a new human-diploid myeloid-leukemia cell-line (Plb-985) with granulocytic and monocytic differentiating capacity. Blood. 70 (2), 372-378 (1987).
- Hsu, A. Y., et al. Inducible overexpression of zebrafish microRNA-722 suppresses chemotaxis of human neutrophil like cells. Molecular Immunology. 112, 206-214 (2019).
- Kremserova, S., Nauseef, W. M. Isolation of human neutrophils from venous blood. Methods in Molecular Biology. 2087, 33-42 (2020).
- Quach, A., Ferrante, A. The application of dextran sedimentation as an initial step in neutrophil purification promotes their stimulation, due to the presence of monocytes. Journal of Immunological Research. 2017, 1254792(2017).
- Thorson, L. M., Turkalj, A., Hung, J. C. In vitro evaluation of neutrophil viability after exposure to a hypotonic medium. Nuclear Medicine Communications. 16 (7), 615-620 (1995).
- Dhurat, R., Sukesh, M. Principles and methods of preparation of platelet-rich plasma: a review and author's perspective. Journal of Cutaneous and Aesthetetic Surgery. 7 (4), 189-197 (2014).
- Etulain, J., et al. An optimised protocol for platelet-rich plasma preparation to improve its angiogenic and regenerative properties. Scientific Reports. 8 (1), 1513(2018).
- Hannah, S., et al. Constitutive neutrophil apoptosis in culture is modulated by cell density independently of beta2 integrin-mediated adhesion. FEBS Letters. 421 (2), 141-146 (1998).
- Hsu, A. Y., et al. Phenotypical microRNA screen reveals a noncanonical role of CDK2 in regulating neutrophil migration. Proceedings of the National Acadermy of Sciences of the United States of America. 116 (37), 18561-18570 (2019).
- Martin, S. J., Bradley, J. G., Cotter, T. G. HL-60 cells induced to differentiate towards neutrophils subsequently die via apoptosis. Clinical and Experimental Immunology. 79 (3), 448-453 (1990).
- Hauert, A. B., Martinelli, S., Marone, C., Niggli, V. Differentiated HL-60 cells are a valid model system for the analysis of human neutrophil migration and chemotaxis. International Journal of Biochemistry and Cell Biology. 34 (7), 838-854 (2002).
- Blanter, M., Gouwy, M., Struyf, S. Studying neutrophil function in vitro: Cell models and environmental factors. Journal of Inflammation Research. 14, 141-162 (2021).
- Kambara, H., et al. Gasdermin D exerts anti-inflammatory effects by promoting neutrophil death. Cell Reports. 22 (11), 2924-2936 (2018).
- Loison, F., et al. Proteinase 3-dependent caspase-3 cleavage modulates neutrophil death and inflammation. Journal of Clinical Investigation. 124 (10), 4445-4458 (2014).
- Siemsen, D. W., et al. Neutrophil isolation from nonhuman species. Methods in Molecular Biology. 1124, 19-37 (2014).
- Hasenberg, M., et al. Rapid immunomagnetic negative enrichment of neutrophil granulocytes from murine bone marrow for functional studies in vitro and in vivo. PLoS One. 6 (2), 17314(2011).
- Calzetti, F., Tamassia, N., Arruda-Silva, F., Gasperini, S., Cassatella, M. A. The importance of being "pure" neutrophils. Journal of Allergy and Clinical Immunology. 139 (1), 352-355 (2017).
重印与许可
