我们介绍一种解剖技术,该技术可保持成年个体神经肌肉接头的结构完整性,从而实现对运动神经元进行详细的免疫细胞化学研究 黑腹果蝇 腿
方法文章
解剖与免疫组织化学检测 果蝇 利用成年果蝇腿部检测特定运动神经元神经肌肉接头处的变化
* These authors contributed equally
本文内容
摘要
摘要
黑腹果蝇 代表了一种可用于研究神经元结构与功能以及疾病状态下后续变化的遗传学可操作模型。幼虫的神经肌肉接头已被充分表征,常被用于此类研究。然而,幼虫发育迅速,且在变态过程中伴随肌肉组织的溶解和神经系统的重塑,使得该模型难以用于研究缓慢发生的、依赖年龄的退行性变化,例如肌萎缩侧索硬化症中所见的变化。相比之下,成年果蝇寿命可达90天,可利用成年果蝇的腿部来研究运动神经元在整个成年生命周期中的变化 体内 通过体壁进行荧光成像。本文描述了一种结合免疫细胞化学的腿部解剖技术,可用于研究成年果蝇特定腿部运动神经元神经肌肉接头处的分子变化。这些技术可与多种标记突触前和突触后结构的抗体联用。上述方法共同实现了对成年果蝇缓慢的、依赖年龄变化的更全面表征,并可应用于多种运动神经元疾病模型。
引言
运动神经元病(MN)是一组异质性疾病,其主要临床表型为进行性变性,导致肌肉萎缩和瘫痪1。尽管该病较为罕见,全球患病率为每10万人中4.5例,但随着人口老龄化,其患病率预计将进一步上升2。肌萎缩侧索硬化症(ALS)是最常见的运动神经元病(MND),通常在诊断后短期内致命,目前尚无任何可改变疾病进程的治疗方法3。MND具有共同的长期无症状前期,此阶段患者已出现早期分子生物标志物改变及功能影像学变化4。在非人类疾病模型中也观察到早期无症状的细胞病理改变5,6,7,8。研究神经肌肉接头处的早期变化对于理解运动神经元病的发病机制至关重要,并可能有助于开发早期诊断方法和潜在的治疗手段。
存在大量可用于研究 Drosophila 神经肌肉接头(NMJ)结构与功能的遗传学和分子生物学工具(有关幼虫期 NMJ 的详细特征综述,参见9)。这些工具结合其较短的生命周期,使 Drosophila 成为研究 NMJ 处神经退行性变化的理想模型。具体而言,支配成体肌肉的运动神经元在整个约 90 天的成虫生命周期中均存在,并会经历正常的衰老过程10,11,12,13。因此,成体运动神经元为研究缓慢发生的退行性变化提供了机会,相比之下,幼虫期的 NMJ 仅在变态前存在约 1 周的短暂时间14,15。
本文描述了一种解剖方法,可用于对成虫腿部的运动神经元(MNs)进行免疫细胞化学分析。每只成虫腿部由约50个运动神经元支配,这些神经元通过与相应腿部肌肉形成突触来驱动运动。腿部的解剖结构、机械生理学及神经生物学特性已有详尽描述。16,17,18. 腿部运动神经元的轴突分支此前已通过表皮成像技术进行过表征,该技术利用双组分Gal4/UAS系统对逆行标记或基因标记的细胞群体进行标记,并已有相关成像方法的发表19. 本文所展示的解剖方法可保留轴突分支的形态,使我们能够利用多种抗体标记神经肌肉接头(NMJ)的不同分子组分。我们之前的研究主要集中在后胸段(3rd) 腿,其支配胫骨提肌(tilm),并表现出稳定的神经分支模式和突触小节数量。我们首先研究了与年龄相关的改变 果蝇超氧化物歧化酶1 (dsod1)突变体,并发现其变化与神经肌肉接头(NMJ)的拆解一致20这些解剖方法为其他肌萎缩侧索硬化症模型、衰老的基础研究以及其他运动神经元相关疾病的神经肌肉接头处缓慢退行性变化的表征提供了更好的机会。
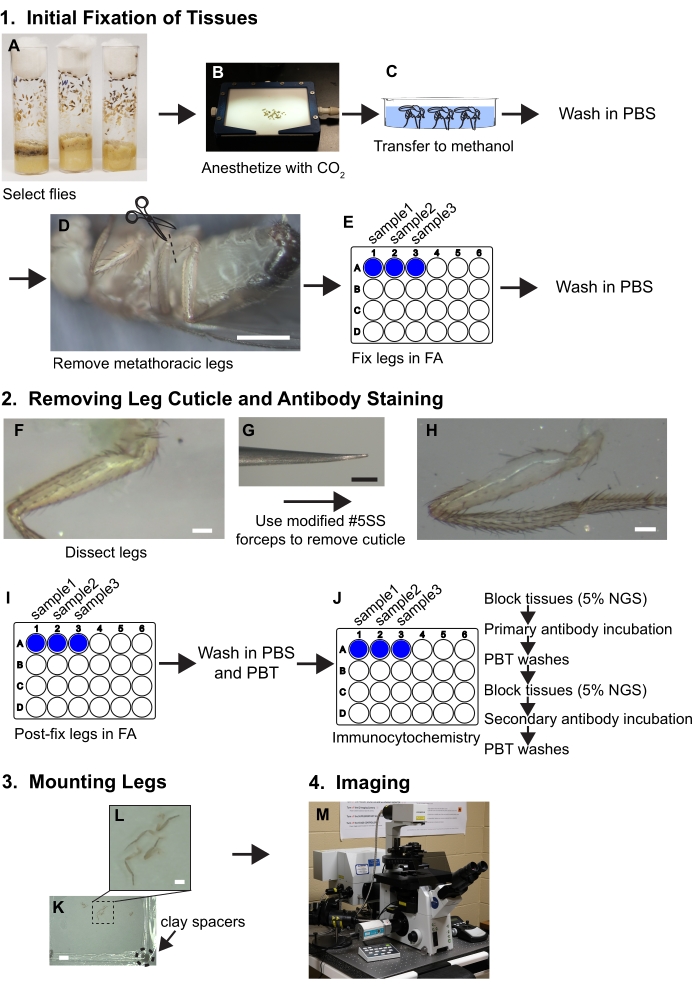
图 1。腿部解剖工作流程概要。 详细步骤见实验方案。(A,B)选择果蝇并进行麻醉。(C)将果蝇转移至甲醇中,并用 PBS 洗涤。(D)在解剖显微镜下(约 30 倍放大)于基节基部切除后胸腿;比例尺 = 500 μm。(E)将腿部置于 24 孔板的孔中,用 3.7% 多聚甲醛/PBS(FA)溶液固定 30 分钟,随后通过 PBS 洗涤去除 FA。(F, G, H)将腿部转移至硅胶弹性体解剖托盘中,在解剖显微镜下(80 倍)使用斜面镊子从股节近端去除一块表皮;比例尺 = 50 μm。(I)解剖后对腿部进行 FA 固定,并用 PBS 和 PBT(PBS + 0.1% 非离子型表面活性剂)洗涤。(J)对腿部进行免疫细胞化学染色。(K,L)将腿部转移至载玻片上,用封片剂透明化,并加盖带有黏土垫片的盖玻片;比例尺 = 2 mm 和 500 μm。(M)使用共聚焦显微镜对腿部成像。请点击此处查看该图的放大版本。
方案
本方案中用于配制工作溶液的操作步骤详见表1。
| 试剂 | 配制方法 | 储存条件 | |||
| PBS | 用去离子水将10x PBS贮存液稀释,配制成1x PBS工作液。工作液的pH值应为7.2–7.4。 | 4 °C保存1个月以上,直至出现细菌污染为止。 | |||
| PBT | 在1x PBS溶液中加入0.1%非离子型表面活性剂。 | 4 °C保存1个月以上,直至出现细菌污染为止。 | |||
| FA | 将37%甲醛贮存液用1x PBS稀释,配制成3.7%甲醛溶液。 | 室温保存。每次解剖当天新鲜配制。 | |||
| 注意:37%甲醛贮存液为潜在致癌物,应在通风橱内进行稀释操作。 | |||||
| 5% NGS | 将5%正常山羊血清用PBT稀释。所用血清应与后续使用的二抗来源物种相匹配。 | 4 °C保存数周,直至出现细菌污染为止。 | |||
表1. 用于成年果蝇腿部免疫细胞化学实验的溶液。
1. 组织的初始固定
- 为每种基因型和年龄选择约 10 只果蝇。在二氧化碳下使用果蝇操作垫进行麻醉(图 1A,B)。
注意:开始时选择的果蝇数量应多于所需数量,以确保解剖后仍有足够大的样本量。 - 使用毛笔将果蝇转移至盛有冷甲醇的玻璃孔板或培养皿中,处理约 30 秒至 1 分钟(图 1C)。甲醇可溶解体表碳氢化合物,使果蝇不再漂浮于水溶液表面,而可完全浸没。
- 用镊子小心将果蝇转移至 PBS 溶液中。用冰预冷的 PBS 快速冲洗 3 次,以去除过量甲醇,并将果蝇保存在冰上的 PBS 中,直至进行解剖和固定。此时应尽快完成解剖和固定(<30 分钟)。
- 为分离果蝇腿部,将果蝇转移至盛有冷 PBS 的硅胶弹性解剖皿中,使用两把 #5 Dumont 镊子在基节处移除后胸足,或使用 Vanna 剪刀剪下腿部(图 1D)。将取下的腿部转移至塑料 24 孔板的孔中,每孔加入 1 mL PBS,并将板置于冰上,直至所有腿部均被取下并转移至孔中。
注意:每个孔可容纳至少 20 只腿部。 - 用 1 mL FA 溶液替换 PBS 溶液,并在振荡器上以中等速度(17 rpm)旋转 30 分钟(图 1E)。在此期间应确保腿部完全浸没于 FA 溶液中,以实现充分固定。
- 去除 FA 溶液后,先用 1 mL PBS 快速洗涤 3 次,再额外用 1 mL PBS 每次洗涤 5 分钟,共洗涤 3 次。在进行下述解剖步骤之前及过程中,将组织保存在冰上的 1 mL PBS 中。
2. 去除腿部表皮及抗体染色
- 去除腿部角质层
- 解剖镊子的成功使用至关重要。在#5超细镊子的两个尖端末端引入轻微的平行弯曲,形成一个斜面,以便浅层抓取角质层,而不是刺穿组织,后者可能破坏组织(图1F,G)。
注意:当镊子闭合时,平行弯曲的尖端应沿其全长保持相互接触(图2)。 - 将腿部转移至含有PBS的硅胶弹性体培养皿中进行解剖。调整腿部方向,使腹侧朝上(参见 图3 了解腿部解剖结构和方向信息)。用一对镊子将胫节部分固定在硅胶弹性体培养皿上,用另一对镊子以斜面朝下的方式,夹住股节远端的一小片角质层,并向近端即向转节方向拉扯。
- 系统性地持续去除角质层,直至股节近端完全暴露出裸露的肌肉(图1F,G,H)。
注意:使用镊子斜面仅与腿部进行浅层接触,以避免牵拉肌肉组织。 - 所有腿部解剖完成后,将PBS替换为甲醛(FA),在中等速度的摇床上用摇动固定仪固定30分钟(图1I)。随后用1 mL PBS清洗样本3次(快速),再用PBT清洗3次,每次5分钟(图1J)。
注意:若使用单克隆抗体NC82(抗bruchpilot)染色以标记突触活性区,应固定20分钟,因为该抗原对长时间固定敏感。
- 解剖镊子的成功使用至关重要。在#5超细镊子的两个尖端末端引入轻微的平行弯曲,形成一个斜面,以便浅层抓取角质层,而不是刺穿组织,后者可能破坏组织(图1F,G)。
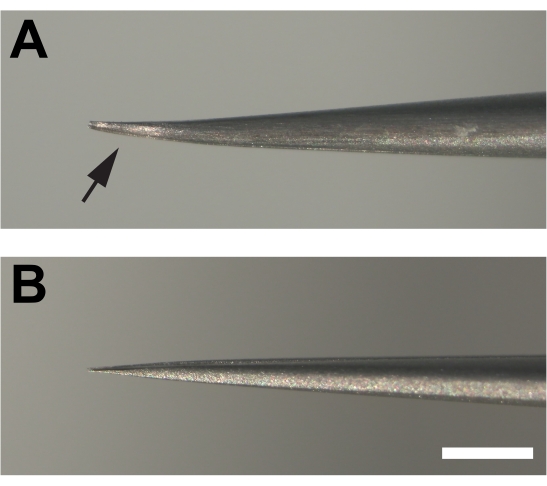
图2.用于解剖成虫腿部的改良镊子。(A)镊子末端被弯曲,然后在底部压平(箭头所示),并通过在磨刀石上锉削形成斜面。(B)相比之下,未改良镊子的尖端未被弯曲。标尺 = 1 mm 请点击此处查看该图的放大版本。
- 抗体染色
- 为进行抗体染色封闭组织,将1 mL PBT替换为封闭液,封闭液由1 mL 5% NGS溶于PBT中配制而成。将解剖得到的腿部组织置于室温下孵育4小时,或在4 °C下过夜孵育,同时以中等速度(17 rpm)在振荡器上轻轻摇动。所有孵育过程中,除使用塑料盖外,还需用封口膜覆盖孔板(图1J)。
注意:免疫细胞化学实验使用24孔板而非1.5 mL或2 mL微量离心管,因为此前尝试使用微量离心管时导致腿部断裂和组织损伤。 - 移除封闭液,加入300 µL用新鲜封闭液稀释的一抗溶液。所用抗体体积应足以覆盖组织。重新用实验室封口膜和塑料盖密封各孔,并在4 °C下以中等速度振荡孵育过夜(图1J)。本研究所用工作浓度抗体试剂信息及稀释比例详见表2。
- 用1 mL PBT快速洗涤一抗3次,随后每次间隔15分钟再洗涤3次(图1J)。
注意:稀释后的一抗若在4 °C下保存,可保存并重复使用最多2周。 - 再次用1 mL 5% NGS在室温下封闭组织至少2小时,或在4 °C下过夜封闭(图1J)。
- 移除5% NGS封闭液,加入300 µL适当稀释的荧光标记二抗溶液。此外,加入1:2000稀释的荧光标记鬼笔环肽以标记肌肉组织(图1J)。
- 二抗孵育期间,用实验室封口膜和盖子密封各孔,并将整块板用铝箔纸包裹以避免荧光染料暴露于光照下。在室温下孵育6–8小时,或在4 °C下过夜孵育。
- 参照上述步骤2.2.3的方法洗涤二抗和鬼笔环肽。洗涤间隔期间用铝箔纸覆盖板子,以保护荧光染料免受光照。
- 为进行抗体染色封闭组织,将1 mL PBT替换为封闭液,封闭液由1 mL 5% NGS溶于PBT中配制而成。将解剖得到的腿部组织置于室温下孵育4小时,或在4 °C下过夜孵育,同时以中等速度(17 rpm)在振荡器上轻轻摇动。所有孵育过程中,除使用塑料盖外,还需用封口膜覆盖孔板(图1J)。
3. 安装腿部
- 使用镊子将腿部转移至载玻片上,并使腹侧朝上。用封片剂覆盖腿部(图 1K,L)。
注意:若用剃刀片将P1000移液器吸头的底部孔径切宽,可直接吸取已解剖的腿部。 - 通过将盖玻片(22×22 mm2,#1.5厚度)的四个角在一小团油灰上轻轻刮擦,从而在盖玻片上添加油灰垫片。每个角应留有厚度为1–2 mm的小量油灰(图 1K)。
- 覆盖载玻片时,将带有油灰垫片的盖玻片朝向载玻片放置,并轻轻按压其四角,直至盖玻片刚好接触股节表面。
- 为防止蒸发,用指甲油密封盖玻片边缘,并在避光处静置干燥约10分钟,随后于4 °C保存,直至成像。
4. 成像
- 通过共聚焦显微镜成像(图1M)。应包含透射光通道,以更好地评估解剖质量;若感兴趣区域内的肌纤维明显受损,则应弃用该样本。
- 使用20倍放大倍数开始采集z轴层扫图像,放大2倍,总成像深度约为40 mm,对应于股骨的厚度。为检测荧光信号,图像分辨率应符合奈奎斯特采样标准(我们采用1024 × 1024像素,驻留时间为8–10 μs/像素)。信号强度应处于线性范围,通过调节高压增益设置实现。一旦设定某一实验系列样本的增益参数,后续不应再更改,以便在不同样本间比较信号强度。
- 为成像突触小体及其他亚细胞结构,应以≥60倍放大倍数采集共聚焦图像。探测器设置应处于线性范围,同时像素密度、驻留时间及z轴深度应与较低倍数下采集的图像(步骤4.1)保持一致。
结果
图4展示了一条经抗-hrp、抗-dlg和鬼笔环肽染色的中胸腿的代表性示例。对于去除股节近端表皮的解剖样本,可在肌腱附近观察到刻板的神经分支结构,而肌腱可通过自发荧光轻松识别。需要注意的是,抗体渗入腿部的范围仅稍超出表皮被去除的区域(图4A)。当荧光信号较强时,这些区域可被有效成像。使用低倍镜(20倍物镜配合2倍缩放)成像可轻松判断:1)表皮去除的程度,以及2)解剖过程中是否造成损伤。提高放大倍数(60倍)可清晰显示投射至tilm的刻板神经纤维(图4B)。我们的研究集中于一个运动神经元(MN),该神经元很可能来源于I-MN谱系,并支配股节近端的tilm(方框所示,图4B和图4C)。进一步提高放大倍数(100倍配合2倍缩放)可有效观察到突触小体的形态(图4D)。
为了研究成年神经肌肉接头(NMJ)随时间推移发生的形态学变化,我们此前曾使用dsod1突变体作为肌萎缩侧索硬化症(ALS)的模型。dsod1H71Y 突变体在衰老过程中出现突触小结肿胀,而dsod1null和dsod1+则无此现象(图5A、B)。在幼虫NMJ中,单克隆抗体NC82常用于标记活性区,这些结构在成年NMJ中也可清晰可视化(图5C)。在dsod1H71Y突变体中,弱阳性的HRP标记轴突分支大量存在,且这些分支常表现出微弱而弥散的BRP定位(箭头所示)。
在神经退行性变中具有重要意义, commercially available antibodies 可检测通常存在于聚集体中的泛素化蛋白,我们在老龄突变型 dsod1 果蝇的运动神经元终末轴突以及肌肉中均检测到了泛素化聚集体(图 6A)。此外,标记线粒体的抗体也可检测到随年龄增长而发生的形态学变化(图 6B)。
对于某些制备过程,解剖过程中造成的肌肉损伤会使样本无法使用。起初,此类损伤可能较为常见,但随着操作熟练程度的提高,情况会逐渐改善。良好解剖的示例见图7A、C,而解剖不良的示例见图7B、D。解剖不良会导致肌纤维排列紊乱,可通过相差显微镜观察到(图7B),或通过荧光标记的鬼笔环肽染色发现缺失的肌纤维(图7D,箭头所示)。结合使用鬼笔环肽标记肌肉组织与透射光图像,有助于发现此类在体视显微镜下观察时可能不易察觉的肌肉损伤。
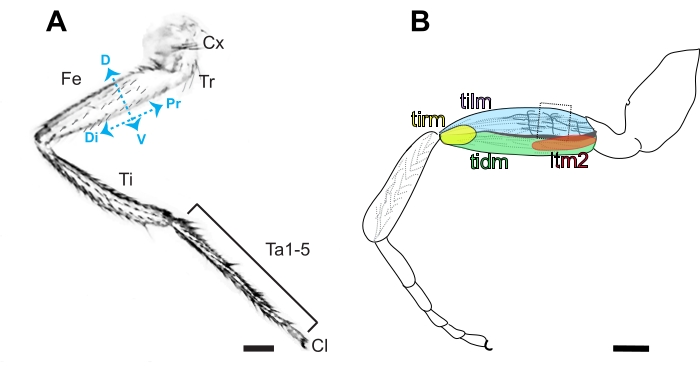
图 3.黑腹果蝇(Drosophila)腿部的解剖结构。(A)后胸腿前侧示意图,其特征是具有刚毛,与后侧显著的无毛角质层形成对比。从近端(Pr)到远端(Di)依次为:基节(Cx)、转节(Tr)、股节(Fe)、胫节(Ti)、5个跗节(Ta1-5)和爪(Cl)。图中还标示了股节的背侧(D)和腹侧(V)。比例尺 = 100 μm。(B)股节示意图,包含胫节提肌(tilm)、胫节降肌(tidm)、长腱肌2(ltm2)和胫节收肌(tirm),以及位于股节近端支配tilm的轴突投射。这些典型的轴突投射被认为起源于I系神经母细胞16,其中第二分支最容易通过解剖观察(方框所示)。比例尺 = 100 μm。 请点击此处查看该图的放大版本。
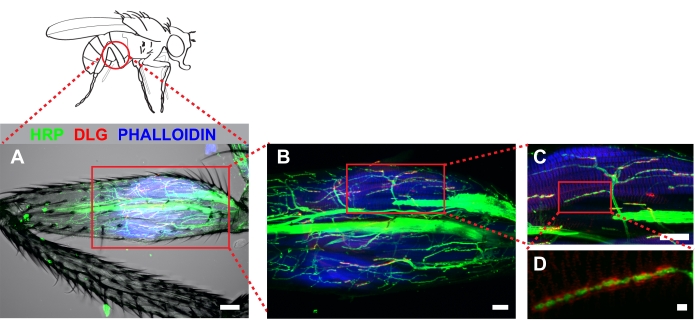
图 4.解剖的后胸股节揭示了支配胫节肌(tilm)的典型运动神经元结构。 采用免疫细胞化学方法标记神经元(HRP)、突触相关蛋白 discs-large(DLG)以及肌肉(鬼笔环肽)。通过共聚焦显微镜对整个股节进行Z轴层扫成像,并以最大强度投影图展示。(A)同时包含透射光通道图像,以说明解剖过程中未造成可检测的肌肉损伤。图像以20倍放大拍摄,比例尺 = 50 μm。(B)识别出与胫节肌相关的神经分支(框内区域,居中),比例尺 = 20 μm;以及(C)以60倍放大拍摄,比例尺 = 20 μm。(D)在野生型动物中,以100倍放大并结合2倍缩放成像时,可见DLG环绕在突触小泡周围;比例尺 = 2 μm 请点击此处查看该图的高清版本。
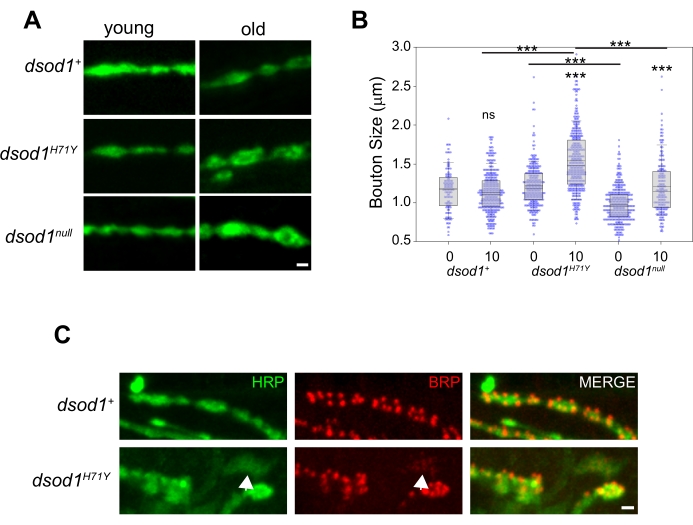
图5.利用腿部解剖技术可检测到的突触结形态随年龄变化的示例。在老龄dsod1H71Y突变体中可见突触结肿胀现象。(A)年轻(新羽化,成虫第0天)和年老(第10天)果蝇的HRP染色突触结代表性图像,比例尺 = 1 μm。(B)使用ImageJ软件中的测量功能对不同基因型的突触结大小进行定量分析。***p<0.0001(双因素方差分析,事后Tukey检验)。(C)使用单克隆抗体NC82(抗bruchpilot)标记突触结内的活性区;比例尺 = 1 μm。该图改编自20 请点击此处查看此图的放大版本。
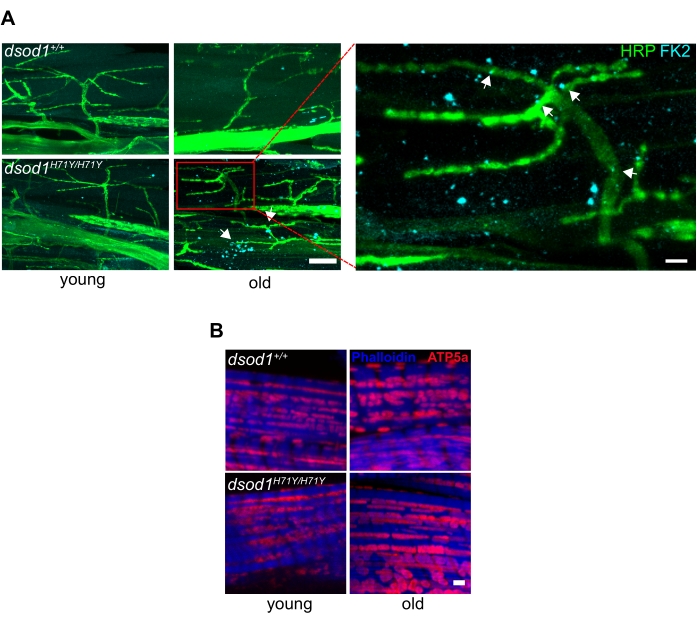
图6. 常用于神经退行性疾病研究的常见标志物 果蝇 腿部标本制备 (A在衰老的轴突末端和肌肉中可检测到亚细胞水平的多聚泛素化聚集物 dsod1H71Y 果蝇。使用抗多聚泛素抗体(FK2)进行免疫细胞化学染色,在老龄个体中检测到点状信号(箭头) dsod1H71Y/H71Y,比例尺 = 20 μm (左)和 5 μm (右侧)。(B肿胀的线粒体可使用抗ATP5A进行检测,比例尺 = 1 μm图修改自20 请点击此处以查看此图的放大版本。

图 7。良好与不良解剖示例。 (A)未破坏底层肌肉结构的解剖样本。(B)不良解剖示例,显示肌纤维散乱(箭头),无法用于分析。两个样本均通过相差显微镜成像。比例尺 = 50 μm。(C)通过共聚焦显微镜成像的良好解剖示例,HRP(绿色)和鬼笔环肽(蓝色)染色。(D)不良解剖样本,缺失背侧TILM肌纤维(箭头)。比例尺 = 50 μm 请点击此处查看该图的放大版本。
| 抗体/染料 | 稀释比例* |
| Anti-ATP5A | 1:500 |
| Anti-bruchpilot (nc82) | 1:20 |
| Anti-cysteine string protein (ab49) | 1:50 |
| Anti-discs large (4F3) | 1:200 |
| Anti-hrp | 1:550 |
| Anti-polyubiquitin (FK2) | 1:1000 |
| Anti-repo (8D12) | 1:5 |
| Goat anti-mouse secondary antibody | 1:800 |
| Phalloidin | 1:2000 |
| *用5% NGS稀释 |
表2. 抗体及稀释比例。 本研究所用抗体的商业供应商列于材料清单中。
讨论
成年果蝇(Drosophila)的腿部是研究神经退行性变的理想模型,因其结构相对简单,且运动神经元(MNs)谱系源自已明确的神经母细胞谱系,并具有特征明确的轴突分支模式。已有多个研究报道利用腿部运动神经元来研究神经退行性疾病21,22。这些研究采用表达GFP的果蝇品系,结合使用可抑制细胞标记的镶嵌分析(MARCM)技术,透过表皮进行成像,记录了一系列形态学变化。通过对切除表皮的样本进行免疫细胞化学染色来成像成年神经肌肉接头(NMJs),可进一步实现更深入的表征,并利用现有的多种抗体工具追踪复杂的分子变化。
本实验方案中的免疫细胞化学部分相对标准,可不依赖基因型独立实施(有关适用于Drosophila的一般抗体染色方法的详细描述,请参见23)。此外,一旦获得图像,即可利用多种现有的ImageJ宏程序来测定荧光强度、轴突分支长度以及突触小泡的数量和大小等参数,且已有文献发表详细的定量分析方法(例如,参见24,25,26)。因此,本文所描述的主要创新在于解剖技术。在解剖前,需将果蝇浸入酒精中以去除表皮碳氢化合物。乙醇和甲醇均常用于此目的;然而,我们仅使用过甲醇。解剖成功的关键因素有以下几点:第一,使用带有斜面的改良镊子,可实现与表皮极浅的接触。第二,使用能够达到60–100倍总放大倍数的解剖显微镜,以清晰观察表皮表面。对于最大放大倍数较低的显微镜,大多数常见品牌均提供2倍物镜,与现有镜片组合后应已足够。第三,初始固定步骤可使表皮变脆,从而更易于剥离而不损伤下方肌肉组织。但此步骤中过度固定会使整个腿部过于僵硬,不利于有效解剖。因此,初始固定时间应限制在30分钟以内。在此短暂时间内,甲醛固定液不足以渗透并有效交联下方组织,故必须进行第二次固定。在第二次固定前,组织应置于冰上保存,以防止降解和形态改变。第四,我们发现,在低温条件下进行样本解剖同样重要,原因可能类似:低温下表皮变脆,更易于移除小块组织。
通过练习,我们发现约有50%的解剖样本可在无明显组织损伤的情况下使用。尽管该比例相较于某些其他组织看似较低,但解剖过程迅速,可在30至60分钟内处理大量腿部样本。因此,即使初始成功率较低,仍可为每个实验组获得4至5个质量良好的样本。然而,若特定基因型和/或年龄导致显著的致死率,则可能受限于特定时间点可获得的果蝇数量。
另一个局限性是,由于尺寸限制,我们无法解剖股骨近端区域以外的其他腿部区域。因此,我们能够可靠地研究支配胫骨内侧长肌(TILM)的已鉴定运动神经元树突,且通过微调解剖时腿部的朝向,有可能解剖位于胫骨下压肌上方的几丁质表皮。然而,在不破坏解剖过程中轴突结构的前提下,触及腿部其他区域已被证明更为困难。
本文介绍了利用免疫细胞化学方法检测支配胫肌(tilm)的特定运动神经元在成年期神经肌肉接头(NMJ)处发生改变的解剖技术。果蝇腿部是一个理想的简化系统,仅由约50个运动神经元支配,包含14块解剖结构明确的肌肉。解剖后的腿部样本适用于多种基因型,并且已有多种抗体可用于神经肌肉接头的可视化,无需在突变背景下构建基因型复杂的报告基因品系。该方法将有助于更详细地表征运动神经元疾病及其他与年龄相关疾病中神经肌肉接头的改变。
披露
作者声明无利益冲突。
致谢
我们感谢 Eric Roberts 在成像技术方面提供的建议。同时,我们感谢罗德岛学院信息技术服务部门,特别是 Michael Caine 和 Jake Douglas 在视频拍摄方面的支持。单克隆抗体 anti-dlg 和 anti-brp 分别由加州大学伯克利分校和德国维尔茨堡大学医院开发,并由美国国立卫生研究院(NIH)下属的国立儿童健康与人类发育研究所(NICHD)创建、现由爱荷华大学生物系(美国爱荷华州爱荷华城,邮编 52242)维护的发育研究杂交瘤库提供。本研究工作得到了美国国立卫生研究院普通医学科学研究所下属的罗德岛州机构发展奖(IDeA)生物医学研究卓越网络的全额支持,项目编号为 [P20GM103430]。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 10x 磷酸盐缓冲液 | Fisher Scientific | BP3991 | |
| 24 孔板 | Corning | 3473 | 疏水性超低吸附表面 |
| 2x 物镜附件 | Olympus | 110AL2X | 螺纹连接附件 |
| 抗 ATP5A 一抗 | Abcam | ab14748 | 小鼠单克隆抗体 |
| 抗 bruchpilot 一抗 | 发育研究杂交瘤库 | nc82 | 小鼠单克隆抗体 |
| 抗 discs large 一抗 | 发育研究杂交瘤库 | 4F3 | 小鼠单克隆抗体 |
| 抗 hrp 一抗 | Jackson Immuno Research | 123-605-021 | Alexa Fluor 647 标记的多克隆抗体 |
| 抗 polyubiquitin (FK2) 一抗 | Millipore Sigma | 04-263 | 小鼠单克隆抗体 |
| 共聚焦显微镜 | Olympus | FV1000 | 物镜(数值孔径 NA): 10x (0.4), 20x (0.85), 40x (1.20), 60x (1.42), 100x (1.40) |
| 盖玻片 | Corning | 285022 | 厚度 160-190 mm |
| 解剖镊 | Fine Science Tools | 11252-00 | Dumont #5SF |
| 体视显微镜 | Olympus | SZ61 | |
| 甲醛 | Fisher Scientific | BP531-500 | 37% 储存液,含甲醇稳定剂 |
| 羊抗小鼠二抗 | Jackson Immuno Research | 115-545-146 | Alexa Fluor 488 标记 |
| 羊血清 | Novus Biologicals | NB036768 | 0.2 mm 滤膜过滤 |
| 实验室封口膜 | Fisher Scientific | 03-448-254 | Parafilm M |
| 甲醇 | Fisher Scientific | A413 | |
| 载玻片 | Fisher Scientific | 12-550-123 | 76 mm × 25 mm |
| 封片剂 | Molecular Probes | S36972 | Slowfade Diamond 封片介质 |
| 非离子型表面活性剂 | Acros Organics | 215680010 | Triton-X 100 |
| 旋转混合仪 | Fisher Scientific | S06622 | |
| 鬼笔环肽 | Invitrogen | A34055 | Alexa Fluor 555 标记 |
| 磨刀石 | Fine Science Tools | 29008-01 | |
| 硅胶弹性体 | Electron Microscopy Sciences | 2423610 | Sylgard 184 |
参考文献
- McDermott, C. J., Shaw, P. J. Diagnosis and management of motor neurone disease. BMJ. 336 (7645), 658-662 (2008).
- Global Collaborators, G. B. D. M. N. D. Global, regional, and national burden of motor neuron diseases 1990-2016: a systematic analysis for the Global Burden of Disease Study 2016. Lancet Neurology. 17 (12), 1083-1097 (2018).
- Foster, L. A., Salajegheh, M. K. Motor Neuron Disease: Pathophysiology, Diagnosis, and Management. American Journal of Medicine. 132 (1), 32-37 (2019).
- Bede, P., Pradat, P. F. Editorial: Biomarkers and Clinical Indicators in Motor Neuron Disease. Frontiers in Neurology. 10, 1318(2019).
- Clark, J. A., Southam, K. A., Blizzard, C. A., King, A. E., Dickson, T. C. Axonal degeneration, distal collateral branching and neuromuscular junction architecture alterations occur prior to symptom onset in the SOD1(G93A) mouse model of amyotrophic lateral sclerosis. Journal of Chemical Neuroanatomy. 76, 35-47 (2016).
- Martineau, E., Di Polo, A., Van de Velde, C., Robitaille, R. Dynamic neuromuscular remodeling precedes motor-unit loss in a mouse model of ALS. Elife. 7, (2018).
- Shahidullah, M., et al. Defects in synapse structure and function precede motor neuron degeneration in Drosophila models of FUS-related ALS. Journal of Neuroscience. 33 (50), 19590-19598 (2013).
- Tremblay, E., Martineau, E., Robitaille, R. Opposite Synaptic Alterations at the Neuromuscular Junction in an ALS Mouse Model: When Motor Units Matter. Journal of Neuroscience. 37 (37), 8901-8918 (2017).
- Harris, K. P., Littleton, J. T. Transmission, Development, and Plasticity of Synapses. Genetics. 201 (2), 345-375 (2015).
- Beramendi, A., Peron, S., Casanova, G., Reggiani, C., Cantera, R. Neuromuscular junction in abdominal muscles of Drosophila melanogaster during adulthood and aging. Journal of Comparative Neurology. 501 (4), 498-508 (2007).
- Banerjee, S., et al. Miniature neurotransmission is required to maintain Drosophila synaptic structures during ageing. Nature Communications. 12 (1), 4399(2021).
- Liao, S., Broughton, S., Nassel, D. R. Behavioral Senescence and Aging-Related Changes in Motor Neurons and Brain Neuromodulator Levels Are Ameliorated by Lifespan-Extending Reproductive Dormancy in Drosophila. Frontiers in Cellular Neuroscience. 11, 111(2017).
- Mahoney, R. E., Rawson, J. M., Eaton, B. A. An age-dependent change in the set point of synaptic homeostasis. Journal of Neuroscience. 34 (6), 2111-2119 (2014).
- Fernandes, J. J., Keshishian, H. Development of the adult neuromuscular system. International Review of Neurobiology. 43, 221-239 (1999).
- Truman, J. W. Metamorphosis of the central nervous system of Drosophila. Journal of Neurobiology. 21 (7), 1072-1084 (1990).
- Baek, M., Mann, R. S. Lineage and birth date specify motor neuron targeting and dendritic architecture in adult Drosophila. Journal of Neuroscience. 29 (21), 6904-6916 (2009).
- Enriquez, J., et al. Specification of individual adult motor neuron morphologies by combinatorial transcription factor codes. Neuron. 86 (4), 955-970 (2015).
- Soler, C., Daczewska, M., Da Ponte, J. P., Dastugue, B., Jagla, K. Coordinated development of muscles and tendons of the Drosophila leg. Development. 131 (24), 6041-6051 (2004).
- Guan, W., Venkatasubramanian, L., Baek, M., Mann, R. S., Enriquez, J. Visualize Drosophila Leg Motor Neuron Axons Through the Adult Cuticle. Journal of Visualized Experiments. (140), e58365(2018).
- Agudelo, A., et al. Age-dependent degeneration of an identified adult leg motor neuron in a Drosophila SOD1 model of ALS. Biology Open. 9 (10), (2020).
- Fernius, J., Starkenberg, A., Thor, S. Bar-coding neurodegeneration: identifying subcellular effects of human neurodegenerative disease proteins using Drosophila leg neurons. Disease Models & Mechanisms. 10 (8), 1027-1038 (2017).
- Sreedharan, J., Neukomm, L. J., Brown, R. H., Freeman, M. R. Age-Dependent TDP-43-Mediated Motor Neuron Degeneration Requires GSK3, hat-trick, and xmas-2. Current Biology. 25 (16), 2130-2136 (2015).
- Patel, N. H. Imaging neuronal subsets and other cell types in whole-mount Drosophila embryos and larvae using antibody probes. Methods in Cell Biology. 44, 445-487 (1994).
- Guirado, R., Carceller, H., Castillo-Gomez, E., Castren, E., Nacher, J. Automated analysis of images for molecular quantification in immunohistochemistry. Heliyon. 4 (6), 00669(2018).
- Castells-Nobau, A., et al. Two Algorithms for High-throughput and Multi-parametric Quantification of Drosophila Neuromuscular Junction Morphology. Journal of Visualized Experiments. (123), e55395(2017).
- Brown, J. R., Phongthachit, C., Sulkowski, M. J. Immunofluorescence and image analysis pipeline for Drosophila motor neurons. Biology Methods and Protocols. 4 (1), (2019).
重印与许可
