本文描述了一种利用单细胞荧光显微镜技术在共培养条件下观察和定量细菌竞争的方法。
本文内容
摘要
摘要
细菌间的竞争可直接影响微生物组的结构与功能。本文介绍了一种荧光显微镜技术,可用于在单细胞水平上可视化并量化不同细菌菌株之间的竞争性相互作用。本文所述方案提供了在正置和倒置落射荧光显微镜上进行载玻片制备的高级方法、活细胞及延时成像技术,以及利用开源软件FIJI进行定量图像分析的方法。本研究中所述方法通过测量共培养期间表达不同荧光蛋白的两种菌株随时间变化的面积改变,来量化共生费氏弧菌(Vibrio fischeri)种群之间的竞争性相互作用。文中还描述了针对需要不同生长条件的细菌模型系统优化该方案的替代方法。尽管本实验所描述的条件是针对费氏弧菌(V. fischeri)优化的,但该方法具有高度可重复性,且可轻松适用于研究来自多种微生物组的可培养分离菌之间的竞争关系。
引言
本文概述了一种利用荧光显微镜在单细胞水平上定量细菌竞争的方法。微生物群落的结构和功能通常受到微生物之间竞争性相互作用的影响,在许多情况下,表征这些相互作用需要在共培养条件下观察不同的细菌菌株1,2,3,4,5,6,7,8。传统上,细菌竞争是在群体水平上通过计数抑制菌株和靶标菌株在共培养前后的菌落形成单位(CFUs)来进行定量分析2,9。微生物竞争的机制在细菌中广泛分布,可能依赖扩散或细胞-细胞接触来抑制靶细胞10,11,12,13,14,15,16,17,18,19。
尽管细菌菌株在群体水平上常被观察到共培养现象,本文概述了一种用于量化细菌单细胞竞争的实验方法。此外,本文还提供了将该方案适配于其他细菌物种使用的建议。虽然本文中具体技术用于研究共生细菌Vibrio fischeri20,21,22菌株间的接触依赖性种内竞争,但该方法可经调整后适用于多种生物之间的竞争研究。本文提供了适用于直立式和倒置显微镜的载玻片设置操作指南,所有数据分析均使用开源软件FIJI23进行说明,从而使拥有不同成像设备和分析程序的研究人员均可应用该方法。鉴于在群体和单细胞水平上研究微生物竞争的重要性,该方法将为研究人员提供一种量化竞争相互作用的宝贵资源,尤其适用于无法获取专有分析软件的研究者。
方案
1. 细菌菌株的优化
- 选择两种细菌菌株用于单细胞细菌竞争实验。此处使用两种V. fischeri菌株:一种为目标菌株(ES11424),另一种为抑制菌株(MJ1125),后者已知可通过位于染色体II上的VI型分泌系统(T6SS2)1杀伤目标菌株,该系统是一种依赖细胞接触的杀伤机制。
- 确定实验所需的适当对照。在此示例中,合适的对照是将野生型抑制菌株和T6SS突变型抑制菌株分别与目标菌株共孵育,以量化T6SS介导的杀伤效应。
注意:其他对照可包括表达必要免疫基因以抵抗T6SS依赖性杀伤的目标菌株,或在反式表达突变基因野生型拷贝的抑制菌株突变体,以恢复T6SS活性1。 - 在条件允许时,将编码不同荧光蛋白(如GFP或RFP)的稳定质粒转入菌株,以便在显微镜下直观区分菌株类型。此处,抑制菌株标记有编码GFP的质粒(pVSV102),目标菌株标记有编码dsRed的质粒(pVSV208)26。
注意:若无法使用稳定质粒,可将荧光标签整合至细菌染色体上以实现可视化27,28。 - 在初始优化阶段,使用实验中将要采用的每种荧光滤光片对标记菌株的克隆培养物进行成像,以确保细胞仅在预期通道中可见。例如,应确保GFP标记菌株仅在FITC通道中可见。
2. 琼脂糖垫制备
- 通过将2%低熔点琼脂糖(w/v)溶解于mPBS中来制备琼脂糖垫溶液。将溶液在微波炉中短暂加热,并涡旋振荡直至琼脂糖完全溶解。使用前将其置于55°C水浴中保温。有关琼脂糖垫制备的更多信息,请参见讨论部分。
注意:此处的mPBS是通过向标准1×PBS中添加20 g/L NaCl制备的。 - 将实验室胶带在载玻片上缠绕五圈。在同一载玻片上重复此操作一次,使两段胶带之间的距离略小于盖玻片的宽度(图1A)。例如,若使用25 mm2的盖玻片,则两段胶带应相距约20 mm。
注意:虽然可通过调整胶带在载玻片上的缠绕次数来调节琼脂糖垫的厚度,但必须确保载玻片两侧的胶带层数高度一致,以保持琼脂糖垫表面平整。 - 将温热的琼脂糖溶液滴加至两段胶带之间,并立即加盖盖玻片,使其落在胶带之上。这将确保琼脂糖垫表面保持平整。此步骤中滴加的琼脂糖溶液体积应足够,以使盖玻片接触液体并排出琼脂糖溶液中的所有气泡。在此特定设置中,200 µL温热琼脂糖溶液已足够。
- 在共孵育实验前,于室温下静置琼脂糖垫至少1小时使其完全凝固。步骤2.2将产生一个约20 mm2的琼脂糖垫。
- 用剃刀刀片将该琼脂糖垫切割成四个5 mm2的小垫,用于成像。
注意:琼脂糖垫可在实验前一周内制备,并存放于4°C的无菌培养皿中,用封口膜密封以防止干燥。
3. 准备共孵育菌株
- 从-80 °C保存的菌种中将用于共孵育实验的各菌株划线接种至添加了适当抗生素的LBS琼脂平板上,于24°C培养过夜。本示例中使用三种菌株:野生型抑制菌株、VI型分泌系统突变株以及靶标菌株。
- 次日,从每种菌株中挑取两个单菌落,接种至添加了适当抗生素的LBS液体培养基中,设置生物学重复,于24°C、200 rpm振荡培养过夜。
- 次日上午,将每个生物学重复样品按1:1000比例转接至不含抗生素的新鲜LBS培养基中,于24°C振荡培养4–5小时,或直至菌液OD600达到约1.5。
注意:由于不同细菌物种的生长速率可能存在显著差异,步骤3.1、3.2和3.3的时间可能需要优化。本实验中,共孵育实验开始时应确保菌体处于对数生长中期。
4. 共同孵育细菌菌株
- 从步骤 3.3 的对数中期培养物开始,测定并记录所有样品在 600 nm 处的光密度(OD600)。
- 用 LBS 培养基稀释培养物,将每个样品归一化至 OD600 = 1.0,这对应于 V. fischeri 的约 109 CFU/mL。
- 根据体积将两种竞争菌株以 1:1 的比例混合,即将每种归一化后的菌株各取 30 µL 加入标记好的 1.5 mL 离心管中。涡旋混合菌株培养物 1–2 秒。
注意:在某些情况下,可能需要以不同比例混合共培养物。例如,当一种菌株的生长速度远快于另一种时,可能需要使生长较慢的菌株在起始数量上占优势,以便观察竞争现象。如果两种菌株的 OD600 不对应相似的 CFU/mL,则也可能需要进行优化。 - 对每个生物学重复和处理重复步骤 4.3。在本示例中,将总共得到四个混合菌株管:两个生物学重复为野生型抑制菌株与目标菌株混合,另两个生物学重复为 VI 型分泌系统突变菌株与目标菌株混合。
- 为确保在琼脂垫共孵育过程中竞争细胞具有足够密度以实现依赖接触的杀伤作用,通过在标准 1.5 mL 离心管中以 21,130 × g 离心 1 分钟,弃去上清液,并将每份沉淀重悬于 20 µL LBS 培养基中,使每份混合培养物浓缩 3 倍。对每个样品重复此操作。
注意:某些细菌细胞对高相对离心力(rcf)下离心造成的损伤较为敏感;在此类情况下,可改为以 4600 × g 离心 3 分钟29。此外,在量化依赖接触的竞争时,必须确保载玻片上的细胞密度足够高以观察到杀伤效应。本文中观察到杀伤效应的“密集”处理条件下的细胞密度约为 10 个细胞/20 µm2;更多信息请参见讨论部分。
5. 载玻片准备
- 使用正置显微镜时,将一块约 5 mm2 的琼脂糖垫放置在标准的 1 mm 玻璃载玻片上。在琼脂糖垫上滴加 2 µL 混合培养物,并在液滴上覆盖一片 #1.5 盖玻片(25 mm2)。示例参见 图 1B。
- 使用倒置显微镜时,将 2 µL 混合培养物滴加到 35 mm 培养皿的 #1.5 盖玻片底部,然后在共孵育液滴上覆盖一块约 5 mm2 的琼脂糖垫。再将一片 12 mm 圆形玻璃盖玻片置于琼脂糖垫上方。示例参见 图 1C。
- 根据所使用的显微镜配置,重复步骤 5.1 或 5.2,对剩余的三种混合培养物进行相同操作,最终获得四个待成像的载玻片或培养皿。
- 将载玻片在实验台静置约 5 分钟后再进行步骤 6。此步骤可使细胞沉降到琼脂垫上,从而在成像过程中避免细胞移动。
6. 荧光显微镜
- 首先使用白光(相差或微分干涉差)观察细胞,以尽量减少光漂白的影响。根据单个细菌细胞的平均大小,选用60倍或100倍油镜。
- 调整每个通道的曝光时间和采集参数,使细胞在相应通道中可见,同时背景信号最小。
注意:不同通道可使用不同的曝光时间,但对于同一通道,所有生物学重复和处理组必须使用相同的曝光时间。 - 对每个样品,选择至少五个视野(FOV),并根据步骤6.2的采集参数,在各相应通道中采集图像(见图2示例)。保存每个视野的XY坐标,以便在最终时间点对同一视野进行成像。在每个时间点对相同视野进行成像,对于分析过程中确定目标细胞或抑制细胞所占面积比例至关重要。
注意:本示例中,GFP荧光使用激发波长为467–498 nm、发射波长为513–556 nm的滤光片检测,并伪染为绿色;dsRed荧光使用激发波长为542–582 nm、发射波长为603–678 nm的滤光片检测,并伪染为品红色。 - 2小时后,利用先前保存的XY坐标,对每个样品重复步骤6.3(图2)。
注意:对于具有不同生长速率或竞争机制的生物体,后续成像的时间间隔可能需要优化。
7. 在 FIJI 中进行图像分析
- 使用此处提供的说明下载并安装 FIJI 图像处理软件:https://imagej.net/Fiji/Downloads
- 打开 FIJI 并导入用于分析的图像文件。
注意:大多数情况下将使用 .TIFF 文件进行图像分析,尽管某些图像采集软件会以专有文件类型导出。FIJI 可识别大多数专有文件类型,图像可按如下方式导入并分析。 - 对于在步骤 6.3 和 6.4 中获取的每幅图像,将其转换为灰度图像,分离通道,并开始进行阈值分割(Ctrl + Shift + T),为预处理后的图像创建二值掩膜(图 3A、B)。
注意:此处使用 FIJI 中的默认阈值设置。在某些情况下,可能需要更改这些设置,此时应在该实验的所有图像中使用相同的设置。 - 使用显微镜设置的适当数值在图像上设置标尺(分析 | 设置标尺)23。
- 设置测量参数(分析 | 设置测量),并选择 面积。
注意:如果实验需要,可添加其他测量参数。本示例分析仅需对象的 面积 测量。 - 使用默认设置执行颗粒分析(分析 | 分析颗粒)(图 3C)。如果样品中存在碎片,可能需要调整大小或圆形度以过滤非细胞颗粒。选择 显示 | 轮廓,以便此分析的输出结果包含所有被分析颗粒的编号轮廓(图 3D)。
注意:将 图 3D 中的轮廓与原始图像进行比较,在优化步骤中尤为重要,以确保(1)所有细胞均被纳入分析,(2)任何碎片均被排除在分析之外。 - 将步骤 7.4 的测量结果(图 3E)导出至电子表格软件,用于进一步分析和作图。
- 对实验过程中获取的所有通道和图像重复执行步骤 7.1 至 7.5。
8. 随时间计算初始靶区面积的百分比
- 针对第7节中分析的每个视野,确保导出的文件包含所分析的每个颗粒的独立面积测量值。从目标菌株的荧光通道开始,计算每个单独视野的颗粒总面积。对于两个生物学重复,每个重复包含五个视野,则在每个时间点每种处理应得到十个总和面积值。
- 使用以下公式计算每个视野随时间变化的目标初始面积百分比:
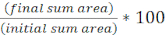
- 对所有处理重复此计算,并绘制每种处理的目标初始面积百分比(即步骤8.2中公式的计算结果)随时间变化的曲线图(图 4A)。
- 确定每种处理下目标种群是否存在净增加(表明生长)、净减少(表明死亡)或无变化(表明无生长或死亡)。
注意:目标初始面积百分比大于100表明目标种群净增长,小于100表明目标种群净死亡;保持在100的目标初始面积百分比值表明目标种群无净变化。有关建议的后续实验,请参见讨论部分。
9. 随时间计算初始抑制剂面积的百分比
- 重复步骤 8.1 至 8.3,但此次使用第 7 节中收集的抑制菌株荧光通道的测量数据(图 4B)。
- 判断每种处理条件下抑制菌群数量是否出现净增长(生长)、净减少(死亡)或无变化。大于 100 的数值表示抑制菌群净增长,小于 100 的数值表示抑制菌群净死亡。
结果
为了在单细胞水平上可视化并量化细菌之间的竞争性相互作用,我们通过改进已建立的基于菌落形成单位(CFU)的检测方法1,2,针对V. fischeri开发并优化了一项实验方案。该方法利用编码GFP和dsRed的稳定质粒,以直观区分不同的V. fischeri菌株。通过使用开源软件FIJI分析该实验所获得的图像,可对这些相互作用的竞争结果进行量化。例如,以下实验使用了V. fischeri分离株进行:抑制菌株携带编码GFP的质粒,靶标菌株则携带编码dsRed的质粒。由于抑制菌株编码的T6SS2是一种依赖细胞接触的杀伤机制,因此实验设计中包含了细胞在载玻片上密集分布(高细胞间接触)或分散分布(低细胞间接触)的处理条件,以突出实验设置对该检测最终结果的影响。在示例数据中,竞争菌株以1:1的比例混合后,在琼脂糖垫上共孵育2小时,并分别采集初始和最终(2小时)的图像。作为对照,T6SS2突变菌株也在密集和分散条件下与靶标菌株共孵育。各菌株的培养物按上述方法制备并共孵育,载玻片的制备过程如图1所示。
图2展示了每种实验处理的代表性荧光显微镜图像,相同视野在初始和最终时间点被成像。对于每种处理,携带编码GFP质粒的野生型抑制菌株或T6SS突变株以1:1比例与携带编码dsRed质粒的目标菌株混合。在此实验设置下,经过2小时的共孵育,生长中的V. fischeri细胞可能经历1-2次分裂(图2;灰色箭头)。在图2A中,通过在点样到载玻片前浓缩混合培养物,强制目标菌与抑制菌之间发生细胞间接触。在2小时过程中,可观察到多个目标细胞变圆和/或消失,这与目标细胞被抑制菌清除的现象一致(图2;白色箭头)。有关解释目标细胞变圆或裂解的更多信息,请参见讨论部分。在图2B中,相同的共孵育样品被点样到载玻片上,但此次未浓缩混合培养物,因此细胞保持分散状态,载玻片上各菌株之间的接触极少。在此情况下,未观察到目标细胞消失或变圆,表明该处理中目标菌株未受到抑制。图2C和图2D展示了上述相同的拥挤和分散处理条件,但此次使用T6SS突变株作为抑制菌株。无论在拥挤还是分散条件下,当与T6SS突变株共孵育时,均未观察到目标细胞消失或变圆,再次表明在任一处理中目标菌均未受到抑制。
图3展示了本实验方案中用于量化竞争现象的FIJI分析工作流程。选择目标通道的一幅代表性图像(图3A),并使用FIJI中的默认阈值设置生成二值化掩膜(图3B)。根据该显微镜设置正确配置图像比例尺。使用以下参数进行颗粒分析:大小参数 = 0 - 无穷大,圆度参数 = 0.00 - 1.00,并选择显示轮廓(图3C)。颗粒分析结果以两种形式展示:一是对每个颗粒进行编号并勾画轮廓(图3D),二是以表格形式列出,表格包含颗粒编号、文件名(标签)以及颗粒面积(单位为 µm2)(图3E)。
在图4中,对来自图3E的数据进行了绘图和分析。在图4A中,根据步骤8.2展示了每种处理在最终时间点的初始靶标面积百分比。如果初始靶标面积百分比大于100,则表示靶标净增加(即生长),在靶标群体未受到显著抑制的条件下可观察到此现象。然而,如果初始靶标面积百分比低于100,则表明靶标净减少(即死亡),在靶标群体受到显著抑制的条件下可观察到此现象。当靶标在密集条件下与野生型抑制菌共孵育时,数据显示靶标面积净减少。相比之下,当靶标在分散条件下与野生型抑制菌共孵育,或在密集或分散条件下与T6SS突变体共孵育时,数据显示靶标面积净增加。根据单因素方差分析(one-way ANOVA)及随后对所有处理组进行的Tukey多重比较检验,靶标在密集条件下与野生型抑制菌共孵育时的初始靶标面积百分比低于100,且显著低于所有其他处理组(p < 0.0001)。这些数据表明,靶细胞的死亡依赖于抑制菌中功能完整的T6SS,并强调了实验设计中需允许足够的细胞间接触,以检测依赖细胞接触的杀伤机制所导致的细胞死亡。
图4B展示了每种处理条件下抑制菌株在最终时间点相对于初始面积的百分比。在此示例中,所有处理组均观察到抑制菌株的净增长。然而,根据单因素方差分析(one-way ANOVA)后接Tukey多重比较检验的结果,在拥挤条件下将野生型抑制菌与靶标菌共培养时,其初始抑制面积的百分比显著高于其他所有处理组(p < 0.0001)。最初,我们推测抑制菌面积的净增加可能是由于靶细胞被清除后腾出更多可生长空间所致。然而,在分散培养的处理组中并未观察到类似的抑制菌生长增加,而在这些条件下,抑制菌从共培养开始时即拥有充足的生长空间。另一种可能的解释是,靶细胞裂解后释放的营养物质促进了抑制菌群体的更大程度扩增。综上所述,这些结果表明,仅当载玻片上的高细胞密度迫使细胞间密切接触时,抑制菌株才以依赖VI型分泌系统(T6SS)的方式清除靶标菌。

图 1:共培养实验用琼脂糖垫的制备与载玻片装置。(A)制备2%琼脂糖垫的装置。将五层实验室胶带(绿色)缠绕在盖玻片上两个相距约20 mm的位置。随后,将温热的2%琼脂糖mPBS溶液(黄色)用移液器滴加至胶带之间,并立即覆盖一张25 mm2的盖玻片,室温下静置至少1 h使其凝固。使用剃刀刀片将琼脂糖垫切割成约5 mm2的小块,并用镊子将其转移至新的载玻片上用于成像。(B)在直立显微镜上成像时,将5 mm2琼脂糖垫直接放置在载玻片上,接着加入混合培养物(蓝色),再覆盖一个12 mm圆形#1.5盖玻片。(C)在倒置显微镜上成像时,将混合培养物直接点样于35 mm培养皿底部的#1.5玻璃盖玻片上,然后将琼脂糖垫置于培养物上方,再加盖第二个12 mm圆形盖玻片以压平琼脂糖垫。请点击此处查看该图的放大版本。
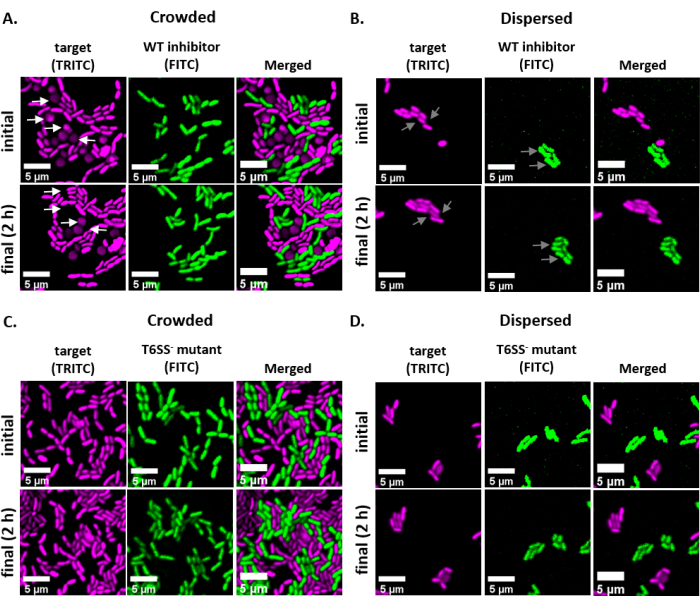
图2:在拥挤或分散条件下共孵育斑点的时间推移图像。(A)初始和最终时间点的代表性图像,其中靶细胞与野生型抑制菌的混合培养物在点样前浓缩3倍,以强制菌株间的细胞-细胞接触。TRITC通道中的白色箭头表示在整个实验过程中发生变圆或裂解的靶细胞示例。(B)靶细胞与野生型抑制菌的混合培养物未经浓缩直接点样的代表性图像,使细胞呈分散状态,菌株间几乎无细胞-细胞接触。FITC和TRITC通道中的灰色箭头表示在整个实验过程中细胞分裂的示例。(C)靶细胞与T6SS-突变体的混合培养物在点样前浓缩3倍,以强制菌株间细胞-细胞接触的代表性图像。(D)靶细胞与T6SS-突变体的混合培养物未经浓缩直接点样的代表性图像,使细胞呈分散状态,菌株间几乎无细胞-细胞接触。比例尺 = 5 µm,在所有图像中保持一致;TRITC通道伪染为洋红色,FITC通道伪染为绿色。所有图像均进行了去卷积处理,并统一进行背景扣除以及亮度/对比度调整。请点击此处查看该图的放大版本。
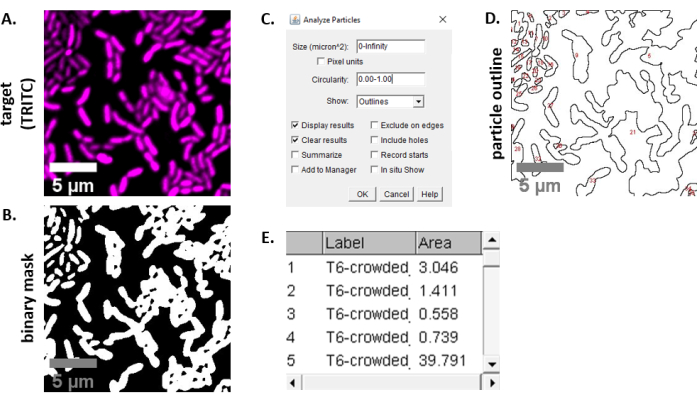
图3:FIJI分析工作流程。(A)用于分析的代表性图像。该工作流程需在所有视野和样本的两个通道中重复进行。比例尺 = 5 µm,所有图像中保持一致;TRITC通道伪彩为洋红色,FITC通道伪彩为绿色。(B)通过FIJI默认设置对图像进行阈值分割生成的二值掩膜。(C)本研究中用于颗粒分析的参数设置示例。大小范围 = 0 - 无穷大 µm2;圆形度 = 0.00 - 1.00;显示 = 轮廓。(D)由(C)中颗粒分析生成的颗粒轮廓输出。 应将(D)中的颗粒轮廓与原始图像(A)进行比较,以确保颗粒分析涵盖了所有细胞。(E)由(C)中颗粒分析生成的结果表格。对象编号(第1列)对应于面板(D)中以红色标出并标记的各个颗粒(一个或多个细胞)。Label = 分析图像的文件名;Area = 颗粒总面积,单位为 µm2。请点击此处查看该图的放大版本。
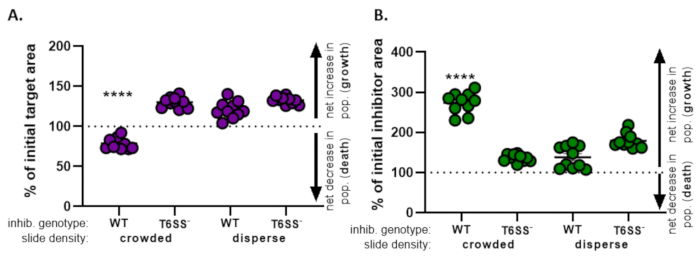
图 4:评估靶标菌株是否受到抑制的示例数据。 在不同初始细胞密度下,靶标菌株(A)和抑制菌株(B)在最终时间点相对于初始面积的百分比。载玻片上的密度表示初始细胞密度较高(菌株间细胞接触频繁)或较稀疏(菌株间细胞接触较少),如图 2所述。抑制菌基因型表示与靶标菌株共培养的是野生型或T6SS突变型(T6SS-)菌株。星号表示各处理组间变化百分比存在显著差异(采用单因素方差分析,随后进行Tukey多重比较检验,所有处理组间比较;(p < 0.0001)。虚线表示菌株面积在初始与最终时间点之间无净变化;变化百分比>100表示净增加(即生长),变化百分比<100表示净减少(即细胞死亡)。请点击此处查看该图的放大版本。
讨论
上述方案为在单细胞水平上定量和表征细菌间竞争提供了一种强有力的工具。该检测方法是在我们基于琼脂平板上菌落形成单位(CFU)的竞争实验基础上改进而来1,2,能够实现对V. fischeri分离株之间单细胞水平竞争的可视化,并提供了针对多种系统和显微镜配置优化该方法的建议。尽管本方法是为发光器官共生菌V. fischeri优化设计的,但其可轻松修改以适用于许多其他可培养的微生物。需要注意的是,竞争机制可能受到多种环境变量的调控,包括温度、盐度和黏度30,31,32,33,34。先前的研究已证实,V. fischeri通过一种依赖于细胞接触的VI型分泌系统(T6SS)在表面介导竞争30,因此本实验所描述的条件适用于示例菌株之间的竞争研究。在量化细菌竞争时,还必须考虑载玻片上细胞的初始密度。由于靶细胞与抑制细胞之间的接触通常是杀伤作用发生的前提,因此应浓缩混合培养物,以最大化细胞间的接触,并使细胞保持在载玻片上的单一焦平面内。细胞培养物应生长至相近的光密度(对数中期),然后进行浓缩以促进细胞接触,而不是单纯将培养物生长至更高的光密度,因为不同生长阶段的细胞会发生生理状态的变化。在其他系统中,可能需要调整培养条件和实验设置,以确保竞争机制处于活跃状态,并能在共孵育条件下被检测到。
本实验中使用的琼脂糖垫具有多种优点:可提供稳定性,防止细胞自由移动,同时避免培养物在实验过程中干燥。此外,若实验需要添加化学诱导剂(例如异丙基-β-D-硫代半乳糖苷,IPTG),可直接将其加入琼脂糖溶液中。但需要注意的是,不同实验体系可能需要对琼脂糖制备条件进行相应调整。以上述示例为例,琼脂糖垫的制备方法为将2%(w/v)琼脂糖溶解于20 psu mPBS中,该盐浓度是费氏弧菌(V. fischeri)生长培养基的标准盐度。此外,在某些情况下,为了支持细胞在较长时间实验中的生长与竞争,可能需要在琼脂糖垫中添加碳源。此时,琼脂糖垫中的mPBS可替换为任意生长培养基,但需注意生长培养基中的营养成分可能带来额外的背景荧光。
如果没有专有的图像分析软件,在细胞间接触程度较高时,很难获得单个细胞的计数,而正如我们在此展示的,观察接触依赖性杀伤效应需要满足这一条件。本实验方法旨在提供一种无需依赖单个细胞计数的替代性定量手段。该方法通过测定每种荧光通道的总细胞面积,来量化共孵育菌株之间的杀伤程度。由于该方法基于面积而非单个细胞计数,通常默认的阈值设定即可有效勾画出总细胞面积。阈值设定的准确性可通过以下方式验证:将代表性视野中目标物的总面积除以该模式生物的平均细胞大小,得到估算的细胞数量,并将该数值与同一图像的手动细胞计数结果进行比较。
在一种抑制菌与一种靶标(非杀伤性)菌株共孵育的情况下,可预测抑制菌的净生长。如图4所示,在观察到杀伤效应的处理组中,抑制菌的生长可能显著高于未观察到杀伤效应的处理组,这可能是因为靶标细胞裂解释放的营养物质促进了抑制菌的快速生长。在本示例中,由于VI型分泌系统(T6SS)介导的竞争导致靶标细胞裂解并被物理清除,因此观察到靶标菌的净死亡。然而,需要注意的是,并非所有竞争机制都会导致靶标细胞的物理清除。如果靶标菌受到一种引起生长抑制的毒素作用而失活,则本方案可能导致显微镜下观察到的靶标菌群数量随时间保持稳定,即靶标细胞不再增殖但也不发生裂解。在此情况下,应将本实验结果与后续的靶标细胞活力检测结果进行比较,例如通过平板计数菌落形成单位(CFUs),或使用碘化丙啶或SYTOX Green染色进行活-死细胞染色分析35,36。
与依赖菌落形成单位(CFU)计数的共培养实验相比,本实验方法能够观察并量化菌株间竞争的空间结构,并随时间追踪靶细胞形态的变化。例如,利用VI型分泌系统(T6SS)杀伤的抑制性细胞已知会编码含有LysM结构域的蛋白质,这些蛋白质可降解靶 细胞壁,导致靶细胞先发生初步变圆,随后发生裂解13,我们在图2A所示示例中观察到了这一现象。此外,本方案可用于在极短时间尺度上高分辨率地追踪竞争过程。在本例中,当细胞密集生长、菌株间被迫发生细胞接触时,仅两小时后即可观察到靶细胞面积显著减少(图4)。本文所述的图像分析方法也可结合共聚焦显微镜进行,从而无需破坏共培养菌株的空间分布,即可在活体(in vivo)或复杂生物膜中研究细菌间的竞争。
综上所述,本文所述的检测方法旨在提供一种简便易行且易于修改的方案,通过荧光显微镜在单细胞水平上对细菌间的竞争进行可视化和定量分析。该方法可适用于多种细菌分离株,并可用于在复杂环境中(例如宿主体内或生物膜基质中)观察细菌竞争现象。
披露
作者无任何利益冲突需要披露。
致谢
A.N.S 获得美国国家普通医学科学研究所(NIGMS)资助项目 R35 GM137886 的支持,S.N.S 获得美国国家国防科学与工程研究生奖学金计划的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1.5 mL 微量离心管 | Fisher | 05-408-129 | |
| 10 µL 单通道移液器 | |||
| 1000 µL 单通道移液器 | |||
| 20 µL 单通道移液器 | |||
| 200 µL 单通道移液器 | |||
| 琼脂糖 | Fisher | BP165-25 | 低熔点琼脂糖 |
| 计算器 | |||
| Cellvis 35 mm 培养皿 | Fisher | NC0409658 | #1.5 盖玻片底 |
| 氯霉素 | Sigma | C0378 | 储存液(20 mg/mL 溶于乙醇);培养基中终浓度(2 μg/mL LBS) |
| DAPI 核酸染料 | Fisher | EN62248 | 可选(若不使用稳定质粒) |
| FIJI 图像分析软件 | ImageJ | https://imagej.net/Fiji/Downloads | 开源软件 |
| Fisherbrand 盖玻片:圆形 | Fisher | 12-545-81P | #1.5 盖玻片;直径 12 mm |
| 硫酸卡那霉素 | Fisher | BP906-5 | 储存液(100 mg/mL 溶于水,过滤除菌);培养基中终浓度(1 μg/mL LBS) |
| 镜头清洁纸 | Fisher | S24530 | |
| 封口膜(Parafilm) | Fisher | 13-374-12 | |
| 培养皿(Petri Plates) | Fisher | FB0875713 | 带盖无菌 |
| 剃须刀片 | Fisher | S65921 | |
| 半微量比色皿 | VWR | 97000-586 | |
| 分光光度计 | |||
| SYBR Green 核酸染料 | Fisher | S7563 | 可选(若不使用稳定质粒) |
| Thermo Scientific Gold Seal 普通载玻片 | Fisher | 12-518-100B | |
| Thermo Scientific Richard-Allan Scientific 盖玻片 | Fisher | 22-050-235 | #1.5 盖玻片,25 mm2 |
| Type F 浸油 | Fisher | NC0297589 | |
| 配有相机和成像软件的正置或倒置荧光显微镜 | 本文中的图像使用配备 ORCA-Fusion 数字 CMOS 相机和 NIS-Elements 软件的 Nikon TI-2 倒置荧光显微镜采集。 | ||
| 涡旋振荡器 | |||
| 水浴锅 | 用于在移液前保持琼脂糖处于温热状态 | ||
| LBS 培养基 | |||
| 1M Tris 缓冲液(pH ~7.5) | 50 mL 1 M 储存缓冲液(62 mL HCl,938 mL 去离子水,121 g Trizma Base) | ||
| 技术级琼脂 | Fisher | DF0812-17-9 | 15 g(仅用于制备平板) |
| 去离子水 | 950 mL | ||
| 氯化钠 | Fisher | S640-3 | 20 g |
| 胰蛋白胨 | Fisher | BP97265 | 10 g |
| 酵母提取物 | Fisher | BP9727-2 | 5 g |
| mPBS(海水 PBS) | 添加了海水盐的磷酸盐缓冲液;用于制备琼脂糖垫 | ||
| 10X PBS | Fisher | ICN1960454 | |
| Instant Ocean 海盐 | Instant Ocean | SS1-160P | 调整浓度至适当盐度;本实验使用 20 psu |
| 无菌真空过滤装置 | Fisher | SCGVU01RE | 用于过滤除菌 mPBS |
| 真空泵 | 用于过滤除菌 mPBS |
参考文献
- Speare, L., et al. Bacterial symbionts use a type VI secretion system to eliminate competitors in their natural host. Proceedings of the National Academy of Sciences. 115 (36), 8528-8537 (2018).
- Speare, L., Septer, A. N. Coincubation assay for quantifying competitive interactions between Vibrio fischeri isolates. Journal of Visualized Experiments. (149), e59759(2019).
- Frost, I., et al. Cooperation, competition and antibiotic resistance in bacterial colonies. The ISME journal. 12 (6), 1582-1593 (2018).
- Stubbendieck, R. M., Vargas-Bautista, C., Straight, P. D. Bacterial communities: interactions to scale. Frontiers in Microbiology. 7, 1234(2016).
- Souza, D. P., et al. Bacterial killing via a type IV secretion system. Nature Communications. 6 (1), 1-9 (2015).
- Anderson, M. C., Vonaesch, P., Saffarian, A., Marteyn, B. S., Sansonetti, P. J. Shigella sonnei encodes a functional T6SS used for interbacterial competition and niche occupancy. Cell Host and Microbe. 21 (6), 769-776 (2017).
- Basler, M., Ho, B., Mekalanos, J. Tit-for-tat: Type VI secretion system counterattack during bacterial cell-cell interactions. Cell. 152 (4), 884-894 (2013).
- Guillemette, R., Ushijima, B., Jalan, M., Häse, C. C., Azam, F. Insight into the resilience and susceptibility of marine bacteria to T6SS attack by Vibrio cholerae and Vibrio coralliilyticus. PloS One. 15 (1), 0227864(2020).
- Hachani, A., Lossi, N. S., Filloux, A. A visual assay to monitor T6SS-mediated bacterial competition. Journal of Visualized Experiments. (73), e50103(2013).
- Hibbing, M. E., Fuqua, C., Parsek, M. R., Peterson, S. B. Bacterial competition: surviving and thriving in the microbial jungle. Nature Reviews Microbiology. 8 (1), 15-25 (2010).
- Ruhe, Z. C., Low, D. A., Hayes, C. S. Bacterial contact-dependent growth inhibition. Trends in Microbiology. 21 (5), 230-237 (2013).
- Wood, D. W., Pierson, L. S. The phzI gene of Pseudomonas aureofaciens 30-84 is responsible for the production of a diffusible signal required for phenazine antibiotic production. Gene. 168 (1), 49-53 (1996).
- Smith, W. P., et al. The evolution of the type VI secretion system as a disintegration weapon. PLoS Biology. 18 (5), 3000720(2020).
- Chen, L., Zou, Y., She, P., Wu, Y. Composition, function, and regulation of T6SS in Pseudomonas aeruginosa. Microbiological Research. 172, 19-25 (2015).
- Sana, T. G., Lugo, K. A., Monack, D. M. T6SS: The bacterial "fight club" in the host gut. PLoS Pathogens. 13 (6), 1006325(2017).
- Basler, M. Type VI secretion system: secretion by a contractile nanomachine. Philosophical Transactions of the Royal Society B: Biological Sciences. 370 (1679), 20150021(2015).
- Joshi, A., et al. Rules of engagement: the type VI secretion system in Vibrio cholerae. Trends in Microbiology. 25 (4), 267-279 (2017).
- Nadell, C. D., Drescher, K., Foster, K. R. Spatial structure, cooperation and competition in biofilms. Nature Reviews Microbiology. 14 (9), 589-600 (2016).
- Stubbendieck, R. M., Straight, P. D. Multifaceted interfaces of bacterial competition. Journal of Bacteriology. 198 (16), 2145-2155 (2016).
- Septer, A. N. The Vibrio-squid symbiosis as a model for studying interbacterial competition. Msystems. 4 (3), (2019).
- Tischler, A. H., Hodge-Hanson, K. M., Visick, K. L. Vibrio fischeri-squid symbiosis. eLS. , 1-9 (2019).
- Mandel, M. J., Dunn, A. K. Impact and influence of the natural Vibrio-squid symbiosis in understanding bacterial-animal interactions. Frontiers in Microbiology. 7, 1982(2016).
- Schindelin, J., et al. Fiji: an open-source platform for biological-image analysis. Nature Methods. 9 (7), 676-682 (2012).
- Boettcher, K., Ruby, E. Depressed light emission by symbiotic Vibrio fischeri of the sepiolid squid Euprymna Scolopes. Journal of Bacteriology. 172 (7), 3701-3706 (1990).
- Doino, J. A., McFall-Ngai, M. J. A transient exposure to symbiosis-competent bacteria induces light organ morphogenesis in the host squid. The Biological Bulletin. 189 (3), 347-355 (1995).
- Dunn, A. K., Millikan, D. S., Adin, D. M., Bose, J. L., Stabb, E. V. New rfp-and pES213-derived tools for analyzing symbiotic Vibrio fischeri reveal patterns of infection and lux expression in situ. Applied and Environmental Microbiology. 72 (1), 802-810 (2006).
- Lambertsen, L., Sternberg, C., Molin, S. Mini-Tn7 transposons for site-specific tagging of bacteria with fluorescent proteins. Environmental Microbiology. 6 (7), 726-732 (2004).
- Koch, B., Jensen, L. E., Nybroe, O. A panel of Tn7-based vectors for insertion of the gfp marker gene or for delivery of cloned DNA into Gram-negative bacteria at a neutral chromosomal site. Journal of Microbiological Methods. 45 (3), 187-195 (2001).
- Peterson, B. W., Sharma, P. K., Van Der Mei, H. C., Busscher, H. J. Bacterial cell surface damage due to centrifugal compaction. Applied and Environmental Microbiology. 78 (1), 120-125 (2012).
- Speare, L., Smith, S., Salvato, F., Kleiner, M., Septer, A. N. Environmental viscosity modulates interbacterial killing during habitat transition. MBio. 11 (1), (2020).
- Salomon, D., Gonzalez, H., Updegraff, B. L., Orth, K. Vibrio parahaemolyticus type VI secretion system 1 is activated in marine conditions to target bacteria, and is differentially regulated from system 2. PloS One. 8 (4), 61086(2013).
- Sana, T. G., et al. Salmonella Typhimurium utilizes a T6SS-mediated antibacterial weapon to establish in the host gut. Proceedings of the National Academy of Sciences. 113 (34), 5044-5051 (2016).
- Bachmann, V., et al. Bile salts modulate the mucin-activated type VI secretion system of pandemic Vibrio cholerae. PLoS Neglected Tropical Diseases. 9 (8), 0004031(2015).
- Ishikawa, T., et al. Pathoadaptive conditional regulation of the type VI secretion system in Vibrio cholerae O1 strains. Infection and Immunity. 80 (2), 575-584 (2012).
- Johnson, M. B., Criss, A. K. Fluorescence microscopy methods for determining the viability of bacteria in association with mammalian cells. Journal of Visualized Experiments. (79), e50729(2013).
- Stiefel, P., Schmidt-Emrich, S., Maniura-Weber, K., Ren, Q. Critical aspects of using bacterial cell viability assays with the fluorophores SYTO9 and propidium iodide. BMC Microbiology. 15 (1), 36(2015).
重印与许可
