本文介绍了一种详细的实验方案,利用完全纯化的组分在明确组成的蛋白脂质体中重建 Msp1 提取活性。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
线粒体是氧化磷酸化和凋亡调控的中心,在人类健康中发挥着至关重要的作用。正常的线粒体功能依赖于强大的质量控制系统以维持蛋白质稳态(蛋白稳态)。线粒体蛋白稳态的下降与癌症、衰老、神经退行性疾病以及许多其他疾病相关。Msp1是一种锚定于线粒体外膜的AAA+ ATP酶,通过清除错位的尾锚定蛋白来维持蛋白稳态。我们利用纯化的组分在蛋白脂质体中重建系统,证明了Msp1足以且必需从脂双层中提取一种模型尾锚定蛋白。我们简化的重建系统克服了以往阻碍膜蛋白提取机制深入研究的多项技术障碍。本文中,我们提供了脂质体生成、膜蛋白重建以及Msp1提取实验的详细方法。
引言
细胞的正常功能依赖于一种称为蛋白质稳态(proteostasis)的过程,该过程可确保功能性蛋白质处于正确的浓度和细胞定位1。蛋白质稳态的失调会导致细胞器功能受损,并与多种神经退行性疾病相关2,3,4。膜蛋白对蛋白质稳态网络构成了独特的挑战,因为它们必须被靶向至正确的膜结构,同时避免其疏水性跨膜结构域(TMDs)发生聚集5。因此,进化出了专门的分子机制,用以屏蔽疏水性TMD免受细胞质环境的影响,并促进其靶向和插入到正确的细胞膜中6,7,8,9,10,11,12,13,14,15。
线粒体是细胞的代谢中心,参与多种重要的细胞过程,例如:氧化磷酸化、铁硫簇生成以及细胞凋亡调控16,17。这些内共生细胞器具有两层膜结构,分别称为线粒体内膜(IMM)和线粒体外膜(OMM)。在约1,500种人类线粒体蛋白中,超过99%由核基因组编码,需要跨过一层或两层不同的膜进行转运18,19。因此,线粒体的正常功能依赖于强大的蛋白质稳态网络,以纠正蛋白质靶向或转运过程中的任何错误。
我们的实验室专注于一类称为尾部锚定(tail-anchored, TA)蛋白的线粒体膜蛋白亚群,这类蛋白在C末端具有单一的跨膜结构域20,21,22,23,24。TA蛋白参与多种重要的生物学过程,例如细胞凋亡、囊泡运输以及蛋白质转位25。TA蛋白独特的拓扑结构决定了其必须通过翻译后插入机制完成定位,该过程可通过内质网中的“尾部锚定蛋白引导插入”(Guided Entry of Tail-anchored, GET)通路或内质网膜蛋白复合物(Endoplasmic reticulum Membrane protein Complex, EMC)通路进入内质网膜,或通过一条尚未充分表征的通路插入外线粒体膜(OMM)20,26,27,28。跨膜结构域(TMD)的生物物理特性足以决定TA蛋白向正确膜结构的靶向运输29。由于靶向通路依赖的是对生物物理特性的识别,而非特定的序列模体,因此其靶向保真度受到一定限制5。因此,TA蛋白的错误定位是蛋白稳态网络常见的一种应激压力。细胞应激(例如GET通路受抑制)会导致更多蛋白错误定位至外线粒体膜,并引发线粒体功能障碍,除非这些错误定位的蛋白被迅速清除30,31。
膜蛋白稳态中的一个共同主题是使用AAA+(ATPases associated with diverse cellular activities)ATPase A与细胞相关的 Activities)蛋白从脂质双层中清除老旧、受损或错误定位的蛋白质1,32,33,34,35,36,37,38AAA+ 蛋白是一类分子马达,可形成六聚体环状结构,并通过 ATP 依赖性运动重塑底物,通常经由一个狭窄的轴向孔道进行易位实现39,40尽管人们已投入大量精力研究AAA+ ATP酶对膜蛋白的提取机制,但现有的重建体系往往较为复杂,或涉及脂质与去垢剂的混合物41,42这限制了研究从脂质双分子层中提取底物机制的实验能力。
Msp1 是一种高度保守的定位于线粒体外膜(OMM)和过氧化物酶体的 AAA+ ATP 酶,通过清除错误定位的尾锚定(TA)蛋白,在膜蛋白稳态中发挥关键作用43,44,45,46,47。最近研究还发现,Msp1 可通过清除在跨线粒体外膜转运过程中发生滞留的膜蛋白,缓解线粒体蛋白输入应激48。Msp1 或其人类同源蛋白 ATAD1 的缺失会导致线粒体碎片化、氧化磷酸化障碍、癫痫发作、脑卒中后损伤加重以及早亡31,49,50,51,52,53,54,55,56。
我们已证明,可以将TA蛋白与Msp1共同重建,并检测其从脂双层中的提取过程57。该简化系统采用完全纯化的蛋白质,将其重建至特定的脂质体中,以模拟线粒体外膜(OMM)(图1)58,59。这种高度可控的实验体系可用于研究底物提取的精细作用机制,而这些机制在涉及其他AAA+蛋白的更复杂重建体系中难以通过实验解析。本文提供了详细的实验方案,涵盖脂质体制备、膜蛋白重建以及提取实验的具体方法。我们希望这些实验细节能够推动对膜蛋白稳态这一关键但尚不明确的过程的进一步研究。
访问受限。请登录或开始试用以查看此内容。
方案
1. 脂质体的制备
- 按适当比例混合脂质的氯仿贮存液,以模拟线粒体外膜。
- 准备25 mg脂质混合物。我们使用一种先前建立的模拟线粒体膜的脂质混合物,其摩尔比为48:28:10:10:4,包含鸡卵磷脂酰胆碱(PC)、鸡卵磷脂酰乙醇胺(PE)、牛肝磷脂酰肌醇(PI)、合成的1,2-二油酰基-sn-甘油-3-磷脂酰-L-丝氨酸(DOPS)和合成的1',3'-双[1,2-二油酰基-sn-甘油-3-磷脂]-甘油(TOCL)。58,59. 样本计算如下所示 表1.
- 将所有脂质储备液恢复至室温后再打开,以减少冷凝水的产生。由于大多数实验室缺乏精确测定脂质浓度的方法,氯仿储备液吸收的任何水分都会改变脂质储备液的浓度,从而影响检测中所用脂质的比例。
- 由于脂质储存于玻璃安瓿瓶中,使用1 mL注射器将所需量的脂质转移至玻璃小瓶。向小瓶中加入2 mg二硫苏糖醇(DTT)以防止脂质氧化。操作应迅速,因为氯仿挥发会改变脂质浓度。
- 将剩余的脂质转移至一个单独的玻璃小瓶中,并配以聚四氟乙烯(PFTE)垫片密封。向小瓶中加入2 mg DTT,用封口膜包裹后于-20 °C保存,以防止脂质氧化。建议在脂质转移至小瓶后的3个月内使用完毕。为避免记号笔墨水污染氯仿储存液,应将原始安瓿上的标签贴纸转移至玻璃小瓶,而非使用记号笔直接标记。
- 在通风橱中,用手持续旋转玻璃小瓶,同时用极微弱的氮气流吹扫,蒸发氯仿,相当于手动旋转蒸发。用手以稳定的速度(20–40 rpm)旋转小瓶,使脂质保持流动。目标是完全蒸发掉氯仿,并在玻璃小瓶内壁形成均匀的脂质薄膜。
警告:氯仿具有神经毒性,此步骤应在通风橱中进行。- 将一支新的巴斯德吸管连接到氮气管上。注意不要让任何脂质溅出小瓶或沾到巴斯德吸管上。将吸管尖端对准小瓶底部,使气流从底部反弹,推动脂质向上并扩散至小瓶中央。在整个小瓶内壁形成均匀涂层,避免脂质在角落或瓶盖附近积聚。整个过程约需5分钟。
- 当混合物浓缩形成脂质“小滴”时,通过调整小瓶的角度将其引导至小瓶中心。一旦小滴开始缩小,略微加大氮气流以分散小滴,确保脂质不会被吹出小瓶。
- 在真空条件下除去残留的氯仿。
- 将玻璃小瓶置于家用真空泵或隔膜真空泵中抽气1小时,以去除大部分残留的氯仿。这类真空泵的抽力通常不足以完全除去所有氯仿,但相比旋转叶片式真空泵,其对少量溶剂的耐受性更好。
- 将小瓶置于强真空下(<1 mTorr)下持续12–16小时以去除所有残留的氯仿。在此过程中务必避免小瓶发生暴沸。
- 将脂质重悬于1.25 mL脂质体缓冲液(50 mM HEPES KOH pH 7.5,15%甘油,1 mM DTT)中。由于起始脂质用量为25 mg,所得浓度为20 mg/mL。确保脂质完全重悬,无可见颗粒。若脂质聚集在离心管角落,此过程可能较为耗时。
- 剧烈振荡小瓶,直至样品呈均匀乳状。我们发现,如果前一晚氯仿蒸发步骤操作得当,此过程大约需要5-10分钟。
- 为确保脂质完全重悬,将样品瓶置于室温下以约80 rpm的速度在旋转轮上旋转3小时。每隔1小时从旋转轮上取下样品瓶,涡旋振荡1分钟,以确保混合均匀。
- 将脂质小心转移至一支洁净的1.5 mL微量离心管中。使用液氮冷冻和30 °C金属浴解冻,进行5次冻融循环。此步骤有助于将多层囊泡转化为单层囊泡。
- 挤出脂质。
- 在冻融循环过程中,准备微型挤出器。将微型挤出器装配10 mm的滤膜支撑片,并安装所需孔径的聚碳酸酯膜(我们使用200 nm)。滤膜的孔径将影响脂质体的大小,进而影响蛋白重组所需的蛋白浓度步骤 2.3).
- 将微型挤出机置于加热板上,并将挤出机温度升至 60 °C。
- 用1 mL气密玻璃注射器吸取脂质,并小心地将其安装到微型挤出器的一端。将空的气密注射器安装到微型挤出器的另一端。让脂质在挤出器支架温度下平衡5–10分钟。
- 将脂质通过轻轻推动装有溶液的注射器活塞转移至另一支注射器中。再将溶液从另一支注射器推回原始注射器。重复此来回操作共15次,使得第15次结束时th 将脂质末端通过另一注射器。每次推注时监测体积,确保无泄漏。
- 制备脂质的单次使用分装样品,液氮速冻后于 -80 °C 保存。脂质体在 -80 °C 下可稳定保存数月。每次重组反应需要 10 μL 脂质体步骤 2.3.4因此,制备10 μL或20 μL的分装样品较为方便。
2 Msp1 和模型 TA 蛋白的重建
- 配制复性缓冲液:50 mM HEPES(pH 7.5)、200 mM 醋酸钾、7 mM 醋酸镁、2 mM DTT、10% 蔗糖、0.01% 叠氮化钠、0.2–0.8% 脱氧胆酸大两性离子洗涤剂(DBC)。
- 优化新批次脂质体的重建条件。用于最佳重建的DBC浓度和生物珠数量会因所用脂质体批次的不同而有所变化。为减少不同制备批次间的差异,所有实验应使用同一批次的DBC。当更换DBC批次时,需重复优化过程。
- 每次制备新的脂质体批次时,设置一系列不同浓度的去氧胆酸钠(DBC,0.2%–0.8%)和生物珠(biobeads,25 mg–100 mg)的重组实验。需注意避免将DBC浓度降至其临界胶束浓度(CMC)以下(约0.12%)。一旦确定最佳条件,建议在后续所有实验中采用相同的脂质体制备及重组条件。
- 通过使用上述提取实验方法,检测不同重建条件的有效性 步骤 3.
- 制备终浓度为250 mg/mL的Bio-Beads。
- 称取2.7 g干燥的Bio-Beads,加入约45 mL 100%甲醇至50 mL离心管中,重悬以润湿珠粒。初始润湿步骤需使用甲醇,以防止空气滞留在珠粒孔隙中。一旦加入甲醇,应始终保持Bio-Beads处于湿润状态,因为珠粒中滞留的气泡会影响其吸收去垢剂的能力。
- 通过用约45 mL超纯水(18.2 mΩ)洗涤珠子8次,去除甲醇,此后将该超纯水简称为ddH₂O2以3,200 × g离心1分钟使O.菌体沉淀成团,弃上清液,用ddH₂O重悬。2O.
- 洗涤后,重悬于 10 ml ddH₂O 中。2加入0.02%叠氮化钠,4 °C保存。Biobeads可在4 °C保存数月。该储备液浓度为250 mg/mL,因洗涤步骤中损失约0.2 g。
- 计算脂质体的大小以及每个脂质体所需的TA蛋白和Msp1分子数量。这将决定重组过程中所需的Msp1和TA蛋白浓度。
- 首先,计算每个单层脂质体中的脂质分子数量(N总计)使用以下公式
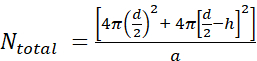 其中 d 是脂质体的直径, h 是双层膜的厚度,且 a 是脂质头部基团的面积。
- 通过动态光散射法(DLS)测量脂质体直径。在本示例中,脂质体直径为70 nmd获得。
- h 取 5 nm,0.71 nm2 用于 a,即磷脂酰胆碱的头部基团大小。在这种特定情况下, N总计 是 37,610。
- 接下来,计算脂质的摩尔浓度 M脂质 使用混合脂质的平均分子量。在此示例中,脂质的浓度为 20 mg/mL(步骤 1.4)且脂质的平均分子量为 810 g/mol(表1)。这得到一个 0.0247 M 的值 M脂质.
- 接下来,计算脂质体的摩尔浓度, M脂质体,使用以下公式
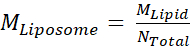 其中 M脂质 脂质的摩尔浓度 步骤 2.3.2,以及 N总计 是根据脂质体中脂质总数计算的 步骤 2.3.1在此示例中,脂质体的20 mg/mL储备浓度约为660 nM。
- 计算100 μL重建反应所需的Msp1和TA蛋白量。
注意:重建后的脂质最终浓度为 2 mg/mL,这是脂质体储备液的 10 倍稀释,得到的脂质体最终浓度为 66 nM。Msp1 的最终浓度为 792 nM,相当于每个脂质体平均含有 12 个总拷贝(2 个功能性六聚体)。TA 蛋白的最终浓度为 660 nM,相当于每个脂质体平均含有 10 个拷贝。
- 首先,计算每个单层脂质体中的脂质分子数量(N总计)使用以下公式
- 在PCR管中,将纯化的Msp1、TA蛋白和脂质体加入重构缓冲液中混合。添加顺序为:缓冲液、蛋白质,最后加入脂质体。总体积为100 μL。将混合物置于冰上静置10分钟。Msp1和TA蛋白的纯化步骤如前所述。57.
- 首次建立该检测方法时,使用经过充分表征的模型底物His-Flag-Sumo-Sec22作为阳性对照。该构建体包含一个His标签用于便捷纯化,3×Flag标签用于Western blot检测,Sumo结构域以提高可溶性,以及内质网定位的TA蛋白Sec22的跨膜结构域(TMD),用于被Msp1识别并进行重构。
- 确保Msp1和TA蛋白的储存液浓度均约为100 μM,以尽量减少蛋白纯化过程中使用的N-十二烷基-β-D-麦芽糖苷(DDM)对重组反应的影响。纯化的Msp1蛋白储存于含20 mM HEPES(pH 7.5)、100 mM氯化钠、0.1 mM三(2-羧乙基)膦盐酸盐(TCEP)、0.05% DDM的缓冲液中,而纯化的TA蛋白储存于含50 mM Tris(pH 7.4)、150 mM氯化钠、10 mM氯化镁、5 mM β-巯基乙醇、10%甘油、0.1% DDM的缓冲液中。约100 μM的TA蛋白和Msp1单体储存液可确保这些组分在重组体系中所占比例适中 < 最终重悬体积的5%,使DDM的稀释浓度低于其临界胶束浓度(CMC)。
- 加入适量的生物珠以去除样品中的去污剂。
- 剪切 p200 移液器吸头尖端至约 1/8th 直径为1英寸,以便珠子能通过尖端。充分涡旋混匀BioBeads管,使其形成均匀混合物,并在BioBeads沉降前迅速打开管盖并用移液器吸取所需体积。将BioBeads转移至一个空的PCR管中。
- 当重悬液在冰上完成10分钟孵育后,使用未剪切的移液枪头将生物珠中的所有液体吸出。随后将100 μL重悬液转移至含有生物珠的离心管中。此操作必须迅速完成,以防止生物珠截留空气导致珠子上浮。
- 在4 °C、约80 rpm的转速下,将重悬液于旋转仪上孵育16小时。
- 从生物珠中移除重悬的材料。使用微型离心机短暂离心,使生物珠形成沉淀,然后用未剪切的移液枪头将重悬的材料转移至新的PCR管中。重复此步骤1-2次,直至样品中无残留生物珠。重悬过程需保持在冰上进行。
- 预清除重组材料,以去除未能成功重组入脂质体的蛋白质。
- 制备提取缓冲液:50 mM HEPES(pH 7.5),200 mM 醋酸钾,7 mM 醋酸镁,2 mM DTT,100 nM 氯化钙。
- 根据制造商说明,用裂解缓冲液平衡谷胱甘肽旋转柱。通常包括用400 μL缓冲液洗涤3次,每次在室温下以700 × g离心2分钟以去除缓冲液。
- 向重建的材料中加入每种分子伴侣各 5 μM(GST-SGTA 和 GST-Calmodulin)。这些分子伴侣将结合未能成功重组入脂质体的蛋白质的跨膜区(TMD)。分子伴侣的纯化方法此前已有描述6,57.
注意:这些分子伴侣可从商业渠道获得,但我们倾向于自行纯化,以控制成本和质量。两种蛋白均保存于 20 mM Tris(pH 7.5)、100 mM 氯化钠和 0.1 mM TCEP 中,储备液浓度约为 160 μM。SGTA 可识别具有高度疏水跨膜区(TMD)的底物,而钙调蛋白(Calmodulin)则结合中等疏水性的跨膜区6,29这种伴侣蛋白混合物能够识别多种底物。 - 向重组后的材料中加入100 μL裂解缓冲液,使总体积达到200 μL。将此溶液加入已平衡的谷胱甘肽旋转柱中。注意,当预清除体积为200–400 μL时,谷胱甘肽旋转柱可实现最高的样品回收率。
- 将离心柱插好,在 4 °C 下以约 80 rpm 的速度旋转 30 分钟,使分子伴侣与树脂结合。
- 在室温下以 700 x g 离心 2 分钟。流出液为已去除聚集蛋白的预澄清样品。将样品置于冰上保存,并立即进行提取测定。
3. 提取实验
- 准备用于 SDS-PAGE 分析的试管。每个反应需要 4 支试管:上样 INPUT (I)、穿流 FLOW THROUGH (FT)、洗涤 WASH (W) 和洗脱 ELUTE (E)。
- 向上样 INPUT 管中加入 45 μL ddH2O 样品,向穿流 FLOW THROUGH 管中加入 40 μL ddH2O,向洗涤 WASH 和洗脱 ELUTE 管中加入 0 μL。
注:本实验中,当 WASH 和 ELUTE 样品相对于 INPUT 和 FLOW THROUGH 样品浓缩 5 倍时,可获得最佳的信噪比。由于实验过程中的稀释效应,需取 5 μL 样品用于 INPUT 样品,10 μL 样品用于 FLOW THROUGH 样品,以及 50 μL 样品用于 WASH 和 ELUTE 样品。 - 向每支试管中加入 16.6 μL 的 4x SDS-PAGE 上样缓冲液。在加入 SDS-PAGE 上样缓冲液前,各样品总体积为 50 μL。最终体积为 66.6 μL(50 μL 样品 + 16.6 μL 4x SDS-PAGE 上样缓冲液)。
- 向上样 INPUT 管中加入 45 μL ddH2O 样品,向穿流 FLOW THROUGH 管中加入 40 μL ddH2O,向洗涤 WASH 和洗脱 ELUTE 管中加入 0 μL。
- 组装提取实验。
- 准备提取反应体系,包含 60 μL 预清除的蛋白脂质体、5 μM GST-SGTA、5 μM GST-钙调蛋白和 2 mM ATP。除 ATP 外,将所有试剂混合,ATP 用于启动反应。用提取缓冲液补足至终体积 200 μL。
注:由于每次提取实验使用 60 μL 样品,一次重建样品可用于三个不同的提取实验。对同一重建样品进行阳性与阴性对照实验(+ATP 和 -ATP)。 - 将提取反应体系置于 30 °C 金属浴中预热 2 分钟。
- 准备提取反应体系,包含 60 μL 预清除的蛋白脂质体、5 μM GST-SGTA、5 μM GST-钙调蛋白和 2 mM ATP。除 ATP 外,将所有试剂混合,ATP 用于启动反应。用提取缓冲液补足至终体积 200 μL。
- 通过加入 ATP 至终浓度 2 mM 启动提取反应,并开始计时。
- 在小型离心机中短暂离心 5 秒以混匀 ATP,随后在 30 °C 下孵育 30 分钟。
- 在孵育期间,取 5 μL 反应液加入上样 INPUT 管中。此步骤时间可灵活掌握。
- 在此孵育期间,为每个提取反应样品平衡一根谷胱甘肽自旋柱。
- 进行分子伴侣的 pull-down 实验以分离提取的物质。
- 30 分钟孵育结束后,向反应管中加入 200 μL 提取缓冲液,使总体积达到 400 μL。将混合液加入已平衡的谷胱甘肽树脂中,在 4 °C 下旋转孵育 30 分钟以促进结合。
- 在室温下以 700 × g 离心 2 分钟收集穿流液。取 10 μL 加入穿流 FLOW THROUGH 管中。该样品包含仍整合在脂双层中的底物。
- 用 400 μL 提取缓冲液洗涤树脂两次,弃去穿流液。第三次洗涤时保留穿流液,并取 50 μL 加入洗涤 WASH 管中。
- 通过将还原型谷胱甘肽加入提取缓冲液至终浓度 5 mM,配制 5 mL 洗脱缓冲液。每次实验均需新鲜配制。
- 向自旋柱中加入 200 μL 洗脱缓冲液,在室温下孵育 5 分钟。在室温下以 700 × g 离心 2 分钟进行洗脱,保留穿流液。重复该步骤一次,使总洗脱体积达到 400 μL。
- 从洗脱样品中取 50 μL 加入洗脱 ELUTE 管中。
- 使用 SDS-PAGE 和 Western 印迹分析提取活性。
注:由于 Western 印迹为常规实验操作,此处仅提供基本流程,并强调本实验特有的若干细节。- 将样品上样至无染色聚丙烯酰胺凝胶(4% 浓缩胶,15% 分离胶),在 Tris-甘氨酸缓冲液中以 200 V 电泳 50 分钟。若空间允许,同时使用未染色和染色蛋白分子量标记,以便分别在无染色凝胶成像仪和 PVDF 膜转印后进行观察。无染色凝胶在紫外光激活后可对含色氨酸的蛋白质进行定量可视化,同时仍可用于后续 Western 印迹分析。
- 对无染色凝胶成像,确认各样品上样量均一。这是关键对照,确保 Western 印迹检测到的信号变化并非由蛋白上样不均引起。仅在上样 INPUT 和洗脱 ELUTION 样品中可见分子伴侣(GST-钙调蛋白和 GST-SGTA)的条带。注意 ELUTE 样品浓度高于 INPUT 样品。
- 使用 45 μm PVDF 膜组装 Western 印迹转印装置,在恒定电流 300 mA 下转印 60 分钟。
- 封闭膜后,在 4 °C 下以约 15 rpm 轻柔摇动孵育一抗 16 小时。使用兔抗 FLAG 抗体(1:1,000 稀释)检测底物。
注:所用一抗和二抗取决于底物特异性,其使用浓度可能需要优化。 - 洗涤膜后,加入二抗(山羊抗兔 IgG,1:10,000 稀释),在室温下轻柔摇动孵育 1 小时。
- 再次洗涤膜,使用 Western 印迹检测试剂进行成像分析。
访问受限。请登录或开始试用以查看此内容。
结果
为了正确解读结果,必须同时观察免染胶和蛋白质印迹膜。免染胶可确保所有样品上样量相等。观察免染胶时,分子伴侣(GST-钙调蛋白和GST-SGTA)将在上样输入(I)和洗脱(E)泳道中可见。请仔细检查这些条带在所有上样输入样品中的强度是否一致。同样,确保各洗脱样品之间的条带强度也保持一致。洗脱样品的浓度是上样输入样品的5倍,这种强度差异在凝胶中应清晰可见。
在使用免染胶确认上样量准确后,观察 Western 印迹以确定提取活性。通过比较洗脱组分(ELUTE,E)与上样输入组分(INPUT,I)中底物的量来测定提取活性。流穿组分(Flow Through,FT)信号存在一定变异,但通常与上样输入组分(INPUT)相近。洗涤组分(WASH,W)中应无信号。通常情况下,阳性对照的提取效率约为 10%,阴性对照的提取效率为 1–2%图2)。请注意,ELUTE组分的浓度是INPUT组分的5倍,因此在评估提取效率时需考虑这一因素。如果复性条件未优化,则+ATP与-ATP样品中的提取水平通常相近。...
访问受限。请登录或开始试用以查看此内容。
讨论
线粒体的正常功能依赖于强大的蛋白质质量控制系统。由于TA蛋白靶向途径本身在保真性上存在固有限制,错误定位的TA蛋白会持续对线粒体造成应激压力。线粒体蛋白质稳态网络中的一个关键组分是Msp1,它是一种锚定于膜上的AAA+ ATP酶,能够将错误定位的TA蛋白从线粒体外膜(OMM)上移除。本文中,我们描述了如何制备蛋白脂质体,共重建Msp1与一种模型TA蛋白,并进行提取实验。我们此前曾利用该实验方法证明,Msp1可直接识别错误定位的TA蛋白,并能够在无需任何辅助蛋白或辅因子的情况下,将这些蛋白从脂双层中提取出来57。
该检测方法的一个缺点是重建过程存在一定的变异性。为了控制不同制备批次之间的差异,我们总是在同一凝胶或蛋白质印迹实验中包含阳性和阴性对照,以确保检测系统按预期工作。我们避免对不同日期进行的重建实验之间或不同蛋白质印迹结果之间进行比较。我们仅对在同一时间平行重建并运行于同一凝胶或蛋白质印迹上的样品进行比较。此外,我们在数据解读上也持较为保守的态度。尽管可以使用ImageJ对提取效率进行定量分析,但我们通常将实验结果描述为具有完全活...
访问受限。请登录或开始试用以查看此内容。
致谢
MLW 在芝加哥大学与 Robert Keenan 博士进行博士后研究期间,开发了本实验方案的部分内容。
本工作由美国国立卫生研究院(NIH)资助,资助编号为1R35GM137904-01,授予MLW。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 生物珠 | Bio-Rad | 1523920 | |
| 牛肝磷脂酰肌醇 | Avanti | 840042C | PI |
| 鸡卵磷脂酰胆碱 | Avanti | 840051C | PC |
| 鸡卵磷脂酰乙醇胺 | Avanti | 840021C | PE |
| ECL Select 蛋白印迹检测试剂 | GE | RPN2235 | |
| 滤膜支撑板 | Avanti | 610014 | |
| 玻璃小瓶 | VWR | 60910L-1 | |
| 谷胱甘肽旋转柱 | Thermo Fisher | PI16103 | |
| 山羊抗兔 | Thermo Fisher | NC1050917 | |
| 微型挤出器 | Avanti | 610020 | |
| 聚碳酸酯膜 | Avanti | 610006 | 200 nM |
| PVDF 膜 | Thermo Fisher | 88518 | 45 µM |
| 兔抗 FLAG 抗体 | Sigma-Aldrich | F7245 | |
| 合成 1,2-二油酰基-sn-甘油-3-磷脂酰-L-丝氨酸 | Avanti | 840035C | DOPS |
| 合成 1',3'-双[1,2-二油酰基-sn-甘油-3-磷脂]-甘油 | Avanti | 710335C | TOCL |
| 注射器,1 mL | Norm-Ject | 53548-001 | |
| 注射器,1 mL,气密型 | Avanti | 610017 |
参考文献
- Song, J., Herrmann, J. M., Becker, T. Quality control of the mitochondrial proteome. Nature Reviews Molecular Cell Biology. 22, 54-70 (2021).
- Phillips, B. P., Miller, E. A. Membrane protein folding and quality control. Current Opinion in Structural Biology. 69, 50-54 (2021).
- Jiang, H. Quality control pathways of tail-anchored proteins. Biochimica et Biophysica Acta - Molecular Cell Research. 1868, 118922(2020).
- McKenna, M. J., et al. The endoplasmic reticulum P5A-ATPase is a transmembrane helix dislocase. Science. 369, New York, N.Y. (2020).
- Hegde, R. S., Zavodszky, E. Recognition and Degradation of Mislocalized Proteins in Health and Disease. Cold Spring Harbor Perspectives in Biology. 11, 033902(2019).
- Shao, S., Hegde, R. S. A calmodulin-dependent translocation pathway for small secretory proteins. Cell. 147, 1576-1588 (2011).
- Samuelson, J. C., et al. YidC mediates membrane protein insertion in bacteria. Nature. 406, 637-641 (2000).
- Anghel, S. A., McGilvray, P. T., Hegde, R. S., Keenan, R. J. Identification of Oxa1 Homologs Operating in the Eukaryotic Endoplasmic Reticulum. Cell Reports. 21, 3708-3716 (2017).
- Aviram, N., et al. The SND proteins constitute an alternative targeting route to the endoplasmic reticulum. Nature. 540, 134-138 (2016).
- Voorhees, R. M., Hegde, R. S. Structure of the Sec61 channel opened by a signal sequence. Science. 351, New York, NY. 88-91 (2016).
- Cichocki, B. A., Krumpe, K., Vitali, D. G., Rapaport, D. Pex19 is involved in importing dually targeted tail-anchored proteins to both mitochondria and peroxisomes. Traffic. 19, Copenhagen, Denmark. 770-785 (2018).
- Mateja, A., et al. Protein targeting. Structure of the Get3 targeting factor in complex with its membrane protein cargo. Science. 347, New York, NY. 1152-1155 (2015).
- Chacinska, A., Koehler, C. M., Milenkovic, D., Lithgow, T., Pfanner, N. Importing mitochondrial proteins: machineries and mechanisms. Cell. 138, 628-644 (2009).
- Chitwood, P. J., Hegde, R. S. An intramembrane chaperone complex facilitates membrane protein biogenesis. Nature. , (2020).
- Chitwood, P. J., Juszkiewicz, S., Guna, A., Shao, S., Hegde, R. S. EMC Is Required to Initiate Accurate Membrane Protein Topogenesis. Cell. 175, 1-30 (2018).
- Bock, F. J., Tait, S. W. G. Mitochondria as multifaceted regulators of cell death. Nature Reviews Molecular Cell Biology. 21, 85-100 (2020).
- Pfanner, N., Warscheid, B., Wiedemann, N. Mitochondrial proteins: from biogenesis to functional networks. Nature Reviews Molecular Cell Biology. 20, (2019).
- Bykov, Y. S., Rapaport, D., Herrmann, J. M., Schuldiner, M. Cytosolic Events in the Biogenesis of Mitochondrial Proteins. Trends in Biochemical Sciences. 45, 650-667 (2020).
- Pfanner, N., Warscheid, B., Wiedemann, N. Mitochondrial proteins: from biogenesis to functional networks. Nature Reviews Molecular Cell Biology. 427, 1135(2019).
- Borgese, N., Coy-Vergara, J., Colombo, S. F., Schwappach, B. The Ways of Tails: the GET Pathway and more. The Protein Journal. , 1-17 (2019).
- Mateja, A., Keenan, R. J. A structural perspective on tail-anchored protein biogenesis by the GET pathway. Current Opinion in Structural Biology. 51, 195-202 (2018).
- Chio, U. S., Cho, H., Shan, S. Mechanisms of Tail-Anchored Membrane Protein Targeting and Insertion. Annual review of cell and developmental biology. 33, 417-438 (2017).
- Denic, V. A portrait of the GET pathway as a surprisingly complicated young man. Trends in biochemical sciences. , (2012).
- Hegde, R. S., Keenan, R. J. Tail-anchored membrane protein insertion into the endoplasmic reticulum. Nature Reviews Molecular Cell Biology. 12, 787-798 (2011).
- Kalbfleisch, T., Cambon, A., Wattenberg, B. W. A bioinformatics approach to identifying tail-anchored proteins in the human genome. Traffic. 8, Copenhagen, Denmark. 1687-1694 (2007).
- Doan, K. N., et al. The Mitochondrial Import Complex MIM Functions as Main Translocase for α-Helical Outer Membrane Proteins. Cell Reports. 31, (2020).
- McDowell, M. A., et al. Structural Basis of Tail-Anchored Membrane Protein Biogenesis by the GET Insertase Complex. Molecular Cell. 80, (2020).
- Guna, A., Volkmar, N., Christianson, J. C., Hegde, R. S. The ER membrane protein complex is a transmembrane domain insertase. Science. 591, New York, NY. 3099(2017).
- Rao, M., et al. Multiple selection filters ensure accurate tail-anchored membrane protein targeting. eLife. 5, 21301(2016).
- Schuldiner, M., et al. The GET complex mediates insertion of tail-anchored proteins into the ER membrane. Cell. 134, 634-645 (2008).
- Chen, Y. -C., et al. Msp1/ATAD1 maintains mitochondrial function by facilitating the degradation of mislocalized tail-anchored proteins. The EMBO journal. 33, 1548-1564 (2014).
- Wu, X., Rapoport, T. A. Translocation of Proteins through a Distorted Lipid Bilayer. Trends in Cell Biology. , (2021).
- Phillips, B. P., Gomez-Navarro, N., Miller, E. A. Protein quality control in the endoplasmic reticulum. Current Opinion in Cell Biology. 65, 96-102 (2020).
- van de Weijer, M. L., et al. Quality Control of ER Membrane Proteins by the RNF185/Membralin Ubiquitin Ligase Complex. Molecular Cell. 79, (2020).
- Weir, N. R., Kamber, R. A., Martenson, J. S., Denic, V. The AAA protein Msp1 mediates clearance of excess tail-anchored proteins from the peroxisomal membrane. eLife. 6, 28507(2017).
- Gardner, B. M., et al. The peroxisomal AAA-ATPase Pex1/Pex6 unfolds substrates by processive threading. Nature communications. 9, 135(2018).
- Puchades, C., et al. Unique Structural Features of the Mitochondrial AAA+ Protease AFG3L2 Reveal the Molecular Basis for Activity in Health and Disease. Molecular Cell. , (2019).
- Castanzo, D. T., LaFrance, B., Martin, A. The AAA+ ATPase Msp1 is a processive protein translocase with robust unfoldase activity. Proceedings of the National Academy of Sciences of the United States of America. 117, 14970-14977 (2020).
- Wang, L., Myasnikov, A., Pan, X., Walter, P. Structure of the AAA protein Msp1 reveals mechanism of mislocalized membrane protein extraction. eLife. 9, (2020).
- Puchades, C., Sandate, C. R., Lander, G. C. The molecular principles governing the activity and functional diversity of AAA+ proteins. Nature Reviews Molecular Cell Biology. , 1-16 (2019).
- Yang, Y., et al. Folding-Degradation Relationship of a Membrane Protein Mediated by the Universally Conserved ATP-Dependent Protease FtsH. Journal of the American Chemical Society. , 10(2018).
- Baldridge, R. D., Rapoport, T. A. Autoubiquitination of the Hrd1 Ligase Triggers Protein Retrotranslocation in ERAD. Cell. 166, 394-407 (2016).
- Fresenius, H. L., Wohlever, M. L. Sorting out how Msp1 maintains mitochondrial membrane proteostasis. Mitochondrion. 49, 128-134 (2019).
- Wang, L., Walter, P. Msp1/ATAD1 in Protein Quality Control and Regulation of Synaptic Activities. Annual Review of Cell and Developmental Biology. 36, 1-24 (2020).
- Dederer, V., et al. Cooperation of mitochondrial and ER factors in quality control of tail-anchored proteins. eLife. 8, 1126(2019).
- Matsumoto, S., et al. Msp1 Clears Mistargeted Proteins by Facilitating Their Transfer from Mitochondria to the ER. Molecular Cell. , (2019).
- Li, L., Zheng, J., Wu, X., Jiang, H. Mitochondrial AAA-ATPase Msp1 detects mislocalized tail-anchored proteins through a dual-recognition mechanism. EMBO Reports. 20, (2019).
- Weidberg, H., Amon, A. MitoCPR - a surveillance pathway that protects mitochondria in response to protein import stress. Science. 360, New York, NY. (2018).
- Okreglak, V., Walter, P. The conserved AAA-ATPase Msp1 confers organelle specificity to tail-anchored proteins. Proceedings of the National Academy of Sciences of the United States of America. 111, (2014).
- Piard, J., et al. A homozygous ATAD1 mutation impairs postsynaptic AMPA receptor trafficking and causes a lethal encephalopathy. Brain. , (2018).
- Zhang, J., et al. The AAA+ ATPase Thorase regulates AMPA receptor-dependent synaptic plasticity and behavior. Cell. 145, 284-299 (2011).
- Prendergast, J., et al. Ganglioside regulation of AMPA receptor trafficking. The Journal of Neuroscience. 34, 13246-13258 (2014).
- Umanah, G. K. E., et al. Thorase variants are associated with defects in glutamatergic neurotransmission that can be rescued by Perampanel. Science Translational Medicine. 9, 4985(2017).
- Pignatelli, M., et al. Synaptic Plasticity onto Dopamine Neurons Shapes Fear Learning. Neuron. 93, 425-440 (2017).
- Zhang, J., et al. The AAA Thorase is neuroprotective against ischemic injury. Journal of Cerebral Blood Flow and Metabolism. , 271678(2018).
- Umanah, G. K. E., et al. AMPA Receptor Surface Expression Is Regulated by S-Nitrosylation of Thorase and Transnitrosylation of NSF. Cell Reports. 33, 108329(2020).
- Wohlever, M. L., Mateja, A., McGilvray, P. T., Day, K. J., Keenan, R. J. Msp1 Is a Membrane Protein Dislocase for Tail-Anchored Proteins. Molecular Cell. 67, 194-202 (2017).
- Lovell, J. F., et al. Membrane binding by tBid initiates an ordered series of events culminating in membrane permeabilization by Bax. Cell. 135, 1074-1084 (2008).
- Leshchiner, E. S., Braun, C. R., Bird, G. H., Walensky, L. D. Direct activation of full-length proapoptotic BAK. Proceedings of the National Academy of Sciences of the United States of America. 110, 986-995 (2013).
访问受限。请登录或开始试用以查看此内容。
重印与许可
