针对寄生性线虫粪类圆线虫(Strongyloides stercoralis)和鼠类圆线虫(Strongyloides ratti)的功能基因组学工具包包括转基因技术、CRISPR/Cas9介导的诱变以及RNA干扰技术。本实验方案将演示如何通过性腺内显微注射法,将转基因元件和CRISPR组分导入粪类圆线虫(S. stercoralis)和鼠类圆线虫(S. ratti)中。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
钩口线虫属(Strongyloides)包含多种可穿透皮肤的线虫,其宿主范围各异,其中包括粪类圆线虫(Strongyloides stercoralis)和鼠类圆线虫(Strongyloides ratti)。S. stercoralis 是一种感染人类的寄生性皮肤穿透线虫,全球约有6.1亿人受其感染;而鼠类寄生虫 S. ratti 与 S. stercoralis 亲缘关系密切,常被用作研究 S. stercoralis 的实验室模型。通过性腺内显微注射外源核酸的技术,S. stercoralis 和 S. ratti 均易于实现转基因和基因敲除,因此已成为其他尚无法应用该技术的寄生性蠕虫的研究模型体系。
寄生性Strongyloides成虫栖居于宿主的小肠内,并通过粪便将子代释放到环境中。进入环境后,幼虫发育为自由生活的成虫,这些成虫生活在粪便中,并产生必须寻找并侵入新宿主的子代。这种环境世代为Strongyloides物种所特有,其形态与模式自由生活线虫Caenorhabditis elegans高度相似,因此针对C. elegans开发的技术可被改造后用于这些寄生性线虫,包括性腺内显微注射技术。通过性腺内显微注射,可将多种外源转基因导入Strongyloides。此外,也可通过显微注射CRISPR/Cas9组分来创制突变型Strongyloides幼虫。本文详细描述了对Strongyloides进行性腺内显微注射的技术,包括自由生活成虫的准备、注射操作步骤以及转基因子代的筛选方法。文中还展示了利用CRISPR/Cas9诱变技术获得的转基因Strongyloides幼虫图像。本论文的目的是帮助其他研究人员利用显微注射技术创制转基因和突变型Strongyloides。
引言
Strongyloides stercoralis 与更广为人知的钩虫和蛔虫 Ascaris lumbricoides 相比,长期以来一直被忽视,未被视为重要的人类病原体1。 以往对蠕虫负荷的研究常常严重低估了 S. stercoralis 的流行率,原因是常用诊断方法对 S. stercoralis 的敏感性较低2。近年来,基于改进诊断工具的流行病学研究估计,S. stercoralis 感染的真实流行率远高于以往报道,全球约有 6.1 亿人感染2。
S. stercoralis 和其他 Strongyloides 物种(包括亲缘关系相近的大鼠寄生虫及常用的实验室模式生物 S. ratti)具有独特的生命周期,这一特性有利于开展实验性基因组学研究,因其生命周期中包含寄生世代和自由生活(环境)世代3(图1)。具体而言,S. stercoralis 和 S. ratti 均可经历一个单代的自由生活阶段。该自由生活世代由宿主排出后的寄生后幼虫发育而成,最终形成自由生活的成年雄虫和雌虫;所有自由生活成虫的子代均发育为感染性幼虫,必须侵入宿主才能延续其生命周期。此外,这一环境或自由生活世代可在实验室中进行实验操作。由于自由生活的 Strongyloides 成虫与 C. elegans 成虫形态相似,因此原本为 C. elegans 开发的技术(如性腺内显微注射)可被改造后用于自由生活的 Strongyloides 成虫4,5。尽管通常将DNA导入自由生活的成年雌虫体内,但 Strongyloides 的雄虫和雌虫均可进行显微注射6。因此,已有多种功能基因组学工具可用于研究 Strongyloides 生物学的多个方面。其他寄生性线虫缺乏自由生活世代,因而难以应用此类功能基因组学技术3。

图1:该 粪类圆线虫 生命周期 的 S. stercoralis 寄生雌虫栖息于其哺乳动物宿主(人类、非人灵长类、犬类)的小肠内。寄生雌虫通过孤雌生殖在小肠内产卵。卵在宿主体内孵化,形成后寄生期幼虫,随后随粪便排入环境。若后寄生期幼虫为雄性,则发育为自由生活的成年雄虫;若为雌性,则可发育为自由生活的成年雌虫(间接发育),或发育为第三期感染性幼虫(iL3s;直接发育)。自由生活的雄虫与雌虫通过有性繁殖产生后代,这些后代只能发育为iL3s。在特定条件下, S. stercoralis 也可发生自体感染,即部分寄生后幼虫不随粪便排出体外,而是滞留在宿主肠道内。这些幼虫可在宿主体内发育为自体感染性幼虫(L3a),穿透肠壁,经体内迁移后最终返回肠道,发育为具有生殖能力的成虫。其生活史为 S. rattii 相似,但以下情况除外: S. rattii 感染大鼠,且不具有自体感染周期。环境世代对于其应用至关重要。 粪类圆线虫 用于遗传学研究的物种。自由生活的成年雌性(P0)可通过显微注射;其子代均将发育为iL3阶段幼虫,是潜在的F代1 转基因。该图已根据 Castelletto 修改 等3. 请点击此处以查看此图的放大版本。
S. stercoralis 在生物学特性上与其他人源性肠道寄生线虫有许多相似之处,包括宿主侵入机制和宿主免疫调节。例如,属于 Necator 和 Ancylostoma 属的人源性钩虫也通过皮肤穿透感染,体内迁移路径相似,最终以寄生成虫形式定植于小肠7。因此,多种肠道线虫可能采用共通的感觉行为和免疫逃逸策略。由此,从 Strongyloides 研究中获得的知识将补充其他遗传操作较困难的线虫的研究成果,从而促进对这些复杂且重要寄生虫的全面理解。
本显微注射方案概述了将DNA导入自由生活期雌性Strongyloides线虫以获得转基因和突变后代的方法。文中描述了菌株维持的相关要求,包括用于显微注射的成虫线虫的发育时间点以及转基因后代的收集方法。方案还包括完整的显微注射技术操作步骤及其演示,以及转基因后代的培养与筛选方案,并列出了所有必需的仪器设备和耗材清单。
访问受限。请登录或开始试用以查看此内容。
方案
注意:使用沙鼠传代粪类圆线虫(S. stercoralis),使用大鼠传代类鼠圆线虫(S. ratti)。所有实验操作均经加州大学洛杉矶分校动物研究监督办公室批准(方案编号:2011-060-21A),该机构遵循AAALAC标准及《实验动物护理与使用指南》。以下操作必须在显微注射前至少一天完成:线虫培养、制备显微注射垫、构建显微注射用质粒、在6 cm线虫生长培养基(NGM)平板上涂布大肠杆菌(E. coli HB101)8。自由生活的雌虫自粪便中收集后,需在25 °C条件下培养至少24小时,发育为年轻成虫后方可进行显微注射。显微注射垫必须完全干燥。细菌平板需充分干燥并形成较小的菌苔。
1. 显微注射载玻片的准备:注射前至少一天进行
注意:线虫被放置在带有干燥琼脂垫的显微注射盖玻片上进行注射。
- 将加热块预热至 90 °C。
- 向一个硼硅酸盐玻璃管中加入 5 mL 去离子水(ddH2O),然后加入 100 mg 琼脂糖。
- 将玻璃管置于火焰上加热,直至琼脂糖完全溶解。
- 将玻璃管放入设定为 90 °C 的加热块中,以保持琼脂糖处于液态。
- 使用玻璃巴斯德吸管或带塑料吸头的移液器,吸取约 180 µL 琼脂糖溶液并滴加到盖玻片上。立即在上方覆盖另一张盖玻片,将琼脂糖压平成一层薄垫。
- 5–10 秒后,通过滑动方式移除上层盖玻片。确定琼脂糖垫所在盖玻片,并将其正面朝上放置。
- 从破碎的盖玻片中选取一小片玻璃碎片,用镊子轻轻将其压入琼脂糖垫顶部边缘附近的琼脂中(补充图 S1)。
- 继续使用琼脂糖溶液制备显微注射垫。
- 将琼脂糖垫在实验台或烘箱中干燥过夜。储存于盖玻片盒中。
注意:琼脂糖垫可在两个月内使用,但每次注射实验仅使用一次。
2. 培养Strongyloides以获取用于显微注射的线虫:注射前1-2天
注意:可在补充材料中找到菌株保藏方案,其中详细描述了如何用线虫感染长爪沙鼠和大鼠,以及如何从感染动物的粪便中收集线虫。
- 注射前两天,将感染动物9,10放入收集笼中过夜。
- 次日早晨,收集带虫粪便,并制备粪炭培养板9,10。
- 将一块培养板置于25 °C条件下24小时,使自由生活的蠕虫发育为年轻成虫。
- 注射前一晚,将未感染的宿主动物放入收集笼中。
- 在注射当天,收集无虫粪便,用于注射后的培养。
3. 制备显微注射混合液:注射前或注射当天进行
注意:显微注射混合液由目的质粒用线虫缓冲盐水(BU)(50 mM Na2HPO4, 22 mM KH2PO4, 70 mM NaCl)稀释至所需浓度而制成11。
- 测定质粒储备液的浓度以及显微注射混合液中的目标浓度(表1)。
| 显微注射混合液:报告基因构建体 | |||
| 组分 | 储存浓度 | 用量 | 终浓度 |
| pMLC30 gpa-3::gfp | 300 ng/µL | 1.7 µL | 50 ng/µL |
| BU | na | 8.3 µL | na |
| total | 10 µL | 50 ng/µL | |
| 显微注射混合液:CRISPR/Cas9 诱变 | |||
| 组分 | 储存浓度 | 用量 | 终浓度 |
| pMLC47 tax-4 sgRNA | 300 ng/µL | 2.7 µL | 80 ng/µL |
| pEY11 Ss-tax-4 HDR 质粒 | 400 ng/µL | 2.0 µL | 80 ng/µL |
| pPV540 strCas9 质粒 | 350 ng/µL | 1.1 µL | 40 ng/µL |
| BU | na | 4.2 µL | na |
| total | 10 µL | 200 ng/µL | |
| 显微注射混合液:piggyBac 整合 | |||
| 组分 | 储存浓度 | 用量 | 终浓度 |
| pMLC30 gpa3::gfp | 300 ng/µL | 2.0 µL | 60 ng/µL |
| pPV402 转座酶质粒 | 450 ng/µL | 0.9 µL | 40 ng/µL |
| BU | na | 7.1 µL | na |
| total | 10 µL | 100 ng/µL | |
表1:显微注射混合物示例。 三种典型显微注射混合物的质粒及其浓度:一种用于 gpa-3::GFP 报告基因构建体10,一种用于通过 CRISPR/Cas9 技术破坏 Ss-tax-4 位点14,15,另一种用于通过 piggyBac 介导整合 Ss-gpa-3::GFP 构建体13,17,18。strCas9 表示经过 Strongyloides 密码子优化的 Cas9 基因。所列终浓度为 Strongyloides 显微注射混合物中常用的浓度。
- 将质粒用BU稀释至终体积为10–20 µL。
- 将混合物通过滤柱在5,000 × g 离心1–2分钟。
- 立即使用显微注射混合物,或于-20 °C保存以备后续使用。
4. 收集用于显微注射的幼年成虫Strongyloides:注射当天上午
- 安装贝尔曼装置,使用1个年轻成虫的粪便-活性炭培养板 粪类圆线虫 (图2).
注意:粪便-木炭培养平板可能含有感染性幼虫。个人防护装备包括实验服、手套和眼部防护装置。手套与实验服袖口之间不得有皮肤暴露。
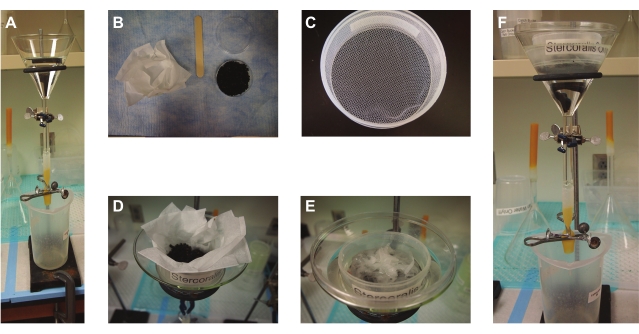
图 2:用于从培养物中收集寄生蠕虫的贝尔曼装置10。 将粪炭培养板的内容物置于一柱温水的顶部。蠕虫迁移到水中,并聚集在漏斗底部。(A) 设置贝尔曼装置时,将贝尔曼漏斗的支架用C形夹固定在实验台上。漏斗末端连接的橡胶管用止水夹封闭,并在管下方放置接液桶以收集滴液。向玻璃漏斗中加入温水。(B) 然后用3片实验室纸巾衬垫粪炭混合物用的塑料环形支架(左)。使用木棒或压舌板(中)将粪炭培养板的内容物(右)转移至塑料环形支架中。(C) 粪炭混合物用塑料环形支架底部的特写,显示支架底部由双层尼龙网衬垫。(D) 将粪炭支架放置在玻璃漏斗顶部。(E) 用水润湿实验室纸巾,并将其覆盖在粪炭混合物上。再加入更多温水,使粪炭混合物大部分浸没。(F) 完整的贝尔曼装置,其中粪炭培养物完全浸没于温水中。请点击此处查看该图的放大版本。
- 使用O型环将带有橡胶收集管的玻璃漏斗安装在铁架台上,并用夹子固定。用两个压紧夹关闭收集管(图2A)。
- 在漏斗下方放置一个接液桶,用于收集滴液。
- 向漏斗中加入温水(约40 °C),加至距边缘5 cm处。检查系统是否无泄漏。
- 在Baermann收集器(由两个塑料环夹住两层尼龙网制成的筛子)内铺上3片重叠的实验室纸巾。将粪便-活性炭混合物加入Baermann收集器中(图2B,C)。
- 将装有粪便-活性炭混合物的Baermann收集器放入漏斗中。将纸巾包裹住粪便-活性炭混合物,并加入足够的水,使大部分粪便-活性炭浸没。加水不要超过漏斗边缘2 cm(图2D,E)。
- 用一个15 cm的塑料培养皿盖盖住漏斗,以防止气味逸出。根据需要标记漏斗(图2F)。
- 静置30分钟至1小时,以从Baermann装置中收集线虫。
- 将一个50 mL离心管置于漏斗底部的橡胶管下方。小心打开底部的夹子,使含有线虫的30–40 mL水流入50 mL离心管中。
- 将含有线虫的Baermann水转移15 mL至一个15 mL离心管中。以约750 × g(低速)离心1分钟。或者,也可让线虫在静置条件下沉降10–15分钟。
- 吸除上清液至约2 mL,将上清液弃入含碘的废液容器中以杀死任何残留线虫。
- 向15 mL收集管中补充更多Baermann水,重复离心步骤。将上清液吸除至约2 mL,并按步骤4.11的方法弃去。
- 重复步骤4.11和4.12,直至所有线虫均收集至15 mL离心管中。最后一次离心后,尽可能去除上清液。
- 检查管底的线虫沉淀(40–100 µL)。若未观察到线虫,可再等待1–2小时,并尝试从Baermann装置中进一步收集线虫。
- 将线虫连同尽可能少的水分转移至一个6 cm的2% NGM平板上,该平板上已铺有E. coli HB101菌苔。将此平板用作显微注射的来源平板。
- 将废弃的粪便-活性炭混合物用稀释碘液(卢戈氏碘液与水按1:1稀释)处理,用塑料膜包裹以防滴漏,然后放入生物危害废物容器中。
- 向接液桶中加入10 mL稀释碘液,并将Baermann装置中的剩余水排入其中。
- 将可重复使用的部件(漏斗、接液桶、带尼龙网的塑料支架、塑料盖和夹子)用10%次氯酸钠溶液清洗,并彻底冲洗干净。
5. 显微注射针的拉制与装样:注射前操作
- 使用拉针仪拉制玻璃毛细管以制备显微注射针。
注意:以配备3 mm铂/铱丝的商用拉针仪为例,推荐参数设置为加热值(Heat)= 810–820,拉力值(Pull)= 800–820,微米计(micrometer)= 2.5。 - 在解剖显微镜下观察针尖。若针的形状符合预期(图3A-F),则再拉制4–6根针(使用2–3根毛细管)。为获得理想的针形,可根据需要调整参数:每次将加热值或拉力值调整10,重新拉制新针,直至锥形部分和针杆的形状更为合适。

图3:显微注射针和一个 粪类圆线虫 已确定显微注射最佳位点的成年雌性 (A-F显微注射针的图像。A-B) 柄部锥度(A)和尖端(B用于显微注射的针头应具有合适的形状,其尖端足够锋利以刺穿角质层,且足够细小以避免造成过度损伤。C-D) 柄部锥度(C)和尖端(D显微注射针头形状不正确,不适合进行显微注射。针头过于钝且宽,会对线虫造成过度损伤。E-F) 柄部锥度(E)和尖端(F) 的针头可能过长且过于细长,不适合用于显微注射。针尖在 F 与尖端非常相似 D然而,针体较窄且过于柔韧,难以有效刺穿表皮。此外,过于细长的针头容易堵塞。G) 一条正确放置以进行显微注射的完整线虫图像,假设显微注射针从右侧进入。图中下方偏左为前端;箭头指示阴门位置。雌虫右侧可见其生殖腺。该雌虫子宫内仅含一枚卵(由星号标示)。H,I微注射位点的放大图。箭头的角度近似于注射针的角度。可将阴门作为定位标志;它位于与性腺臂相对的线虫体侧。性腺臂环绕肠道弯曲,其末端(含有分裂核)与阴门相对。H) 性腺的后臂;(I前臂。可注射一侧或双侧手臂。对于 H,I,约定与原文相同 G比例尺 = 50 µm (B、D、F、H、I); 100 µm (A、C、E、G). 请点击此处以查看此图的放大版本。
- 将拉制好的针头存放在直径15 cm的塑料培养皿中,并用卷好的胶带固定针头,以防止灰尘在针尖积聚。
- 在针杆的开口端滴加0.7 µL显微注射混合液。用卷好的胶带将针头垂直悬挂在架子上,在10分钟内使混合液充满锥形针杆。每次准备2个针头,以防第一个无法使用。
6. 准备显微镜并折断针头
注意:显微注射使用配备5倍和40倍物镜的倒置显微镜,并连接显微注射装置以控制针头的移动。倒置显微镜应放置在重型实验台或防震气浮台上,以减少振动噪声。显微注射针头夹持器连接氮气,以提供输送显微注射混合液所需的压力。附近可配备一台较小的解剖显微镜,用于转移线虫。
- 根据液体流动情况,将气罐压力设置为约40-60 psi以折断针尖,设置为约30-50 psi用于显微注射。
- 在解剖显微镜下,使用标准铂金线虫挑取器将卤代烷油覆盖在显微注射垫盖玻片的玻璃碎片上。
- 将显微注射垫盖玻片置于显微注射显微镜上,找到被油覆盖的玻璃碎片。调整玻璃碎片的位置,使其边缘垂直于针头方向,作为折断针尖的接触面。
- 使用解剖显微镜检查针头锥形部分是否含有气泡或杂质。然后将针头固定插入加压持针器中1-1.5 cm。
- 肉眼观察,将针尖置于显微镜视野中心。接着在低倍镜下调整针尖位置,使其垂直于玻璃碎片的一侧并位于视野内。
- 切换至高倍镜,将针尖与玻璃边缘对齐,靠近但不接触。
注意:拉制后的针头末端为熔融封闭状态。 - 为打开针尖以允许液体流出,需在持续供气压力下(补充图S1),轻轻将针尖轻敲玻璃边缘。一旦液体开始流出,检查针尖形状,确保其锋利且液体流动顺畅。
注意:若液体流速过快或针尖过于钝化,在显微注射过程中将损伤线虫(视频1和图3A-F)。 - 当针头液体流出良好时,将显微注射载片移至解剖显微镜下,并在琼脂垫上滴加1-2 µL卤代烷油液滴,用于放置线虫。
- 将20-30条年轻成虫期的Strongyloides转移至无菌的2% NGM平板上,静置至少5分钟以去除表面多余细菌,并挑选单条线虫进行显微注射。注射过程中可根据需要补充更多线虫至NGM平板上。
7. 显微注射 Strongyloides
- 在无菌的2% NGM平板上,用线虫挑针蘸取少量卤代烃油,挑选一条生殖腺内含有1-4个卵的Strongyloides年轻成年雌虫。
- 将线虫转移至琼脂垫上的微小油滴中。使用线虫挑针轻轻调整线虫位置,使其不卷曲,且生殖腺清晰可见并易于操作。注意观察生殖腺的方向(图3G)。
- 将线虫置于显微注射镜的视野中。确保生殖腺位于与注射针同一侧,并调整位置,使针头能以轻微角度接触生殖腺(图3H,I)。
- 将针尖移至线虫侧面,保持在同一焦平面上。目标为线虫中部附近的生殖腺臂。使用显微注射仪将针头轻柔地插入生殖腺(视频2)。
- 立即对针头施加压力,缓慢将DNA溶液注入整个生殖腺臂。通过肉眼判断注入液体是否充足(视频2)。
注意:注满生殖腺可能需要长达2秒。 - 抽出针头后检查伤口是否闭合。
注意:若生殖腺从体壁突出,则表明线虫损伤过重,无法产生后代(补充视频S1)。 - 若另一侧生殖腺臂可见,重复上述注射步骤。
- 完成注射后,迅速在琼脂垫上轻压针尖以施加压力,检查针头是否堵塞。将载有已注射线虫的载玻片转移至解剖显微镜下。
- 为回收已注射的线虫,首先在虫体上滴加数滴BU溶液,使其从琼脂垫上浮起。
- 用线虫挑针蘸取少量HB101细菌,用附着细菌的挑针触碰线虫,将其从液体中取出。
- 轻柔地将线虫转移至恢复平板,即含有HB101菌苔的2% NGM平板。
注意:线虫应在数分钟内开始爬行。 - 在完成若干雌虫注射后,从原培养平板中加入一些未注射的雄虫。
注意:每五只雌虫至少加入一只雄虫为宜;雄虫数量略多更佳。 - 重复所有步骤,直至完成实验所需数量的雌虫注射。
- 注射后,将成虫留在恢复平板上至少1小时,以确保线虫充分恢复并完成交配。
8. 注射后胚胎的回收与培养 粪类圆线虫
- 从未感染的宿主动物中,按照与感染动物相同的操作流程收集过夜粪便样本。
- 将未感染的粪便与少量木炭混合(这些培养板中粪便与木炭的比例约为2:1)。
- 将少量粪便-木炭混合物倒入已铺有湿润滤纸的6 cm培养皿中,确保混合物不接触皿盖。
- 用BU浸没回收平板。使用设定在 3 µL将线虫转移到粪便-活性炭平板中的粪便上,直接放置在线虫粪便上,而非活性炭上。
- 使用解剖镜确认成虫是否位于粪便-活性炭培养基平板上。
- 将培养皿置于湿润的培养箱中以培养线虫, 即一个带有紧密贴合盖子的塑料盒,内衬湿润的纸巾。
注意:培养2天后,将出现不同幼虫阶段的混合物;培养5天后,大部分幼虫将发育为感染性第三期幼虫(iL3s),仍有少量较年轻的幼虫存在;培养7天后,所有幼虫均应发育为iL3s。
9. 收集并筛选F1代幼虫以获得转基因/敲除个体
- 使用贝尔曼装置,从小规模粪便-木炭培养板中收集注射后的幼虫。为获得尽可能多的幼虫,需在贝尔曼装置中至少等待2小时后再回收线虫。
- 将幼虫按步骤4.10–4.14收集至15 mL离心管中,并用BU将幼虫转移至小培养皿中。
- 若幼虫将用于行为学实验,筛选时应使用含浓密HB101菌苔的2% NGM平板。
- 将20-30只幼虫转移至HB101菌苔上。
注意:细菌会减缓幼虫的运动。 - 在荧光解剖显微镜下,鉴定表达目标转基因的幼虫。使用线虫挑取工具挑选转基因幼虫,并将其转移至含有 BU 的小培养皿中。
- 使用新的HB101平板筛选另一小批幼虫。当收集到足够用于实验的幼虫后,将HB101平板及多余的线虫用稀释的碘液(50%卢戈氏碘液加水稀释)处理,并作为生物危害废弃物丢弃。或者,也可使用含有烷基苄基氯化铵的浓缩犬舍清洁剂杀死多余的线虫。
- 立即使用这些线虫,或将其置于少量 BU 中,于浅碟形培养皿内过夜。
注意:若液体过深,线虫可能缺氧。将幼虫留在 BU 中过夜可能影响某些行为;因此,用于行为实验的幼虫应在 6 小时内使用。
- 将20-30只幼虫转移至HB101菌苔上。
- 如果幼虫将用于显微镜观察而非行为学检测,则可通过可逆的尼古丁麻痹法固定线虫以进行筛选。
- 使用剃刀片在10 cm趋化作用培养板的塑料底部刻划出网格12 以便更方便地追踪平板上蠕虫的位置。
- 滴加 ~3 µL 将幼虫从BU转移到网格中的方格内,根据需要填满尽可能多的方格。请勿使用靠近培养皿边缘的方格,因为幼虫可能会爬向培养皿的边缘。
- 加入15-20 µL 向线虫滴加水中的1%尼古丁溶液。
注意:4分钟后,线虫将出现麻痹。 - 使用荧光解剖显微镜筛选线虫。
- 使用线虫挑针将转基因幼虫转移至含有1-2 mL BU的小型表面皿中。
注意:幼虫将在数小时内处于麻痹状态,可轻松固定于显微镜载玻片上进行显微观察。若在BU中放置过夜,iL3幼虫将恢复活动能力,可用于某些检测或哺乳动物宿主感染实验。然而,尼古丁诱导的麻痹及在BU中过夜孵育可能会影响某些行为表现。
访问受限。请登录或开始试用以查看此内容。
结果
如果实验成功,F1 幼虫将表达目标转基因和/或突变表型(图4)。然而,转化率具有高度变异性,取决于所用构建体、线虫的健康状况、注射后的培养条件以及实验人员的技术水平。通常情况下,一次成功的实验将获得 >15 F1 每只注射雌虫的幼虫数及转化率 >3%用于荧光标记。如果每只雌虫产生的存活后代平均少于10条幼虫,则可能表明该构建体具有毒性,导致转基因幼虫无法存活。观察到大量荧光卵但无荧光幼虫是注射混合物可能存在毒性的另一迹象。初次学习该技术时,建议使用表达效果良好的构建体,例如 act-2::mRFPmars, 在体壁肌中驱动强烈表达13 (图4).
在通过CRISPR/Cas9介导的靶向诱变产生突变体时,建议使用包含act-2::mRFPmars或act-2::GFP转基因的修复模板
访问受限。请登录或开始试用以查看此内容。
讨论
本显微注射方案详细介绍了将转基因构建体以及CRISPR/Cas9介导的诱变构建体导入粪类圆线虫(S. stercoralis)和鼠类圆线虫(S. ratti)的方法。对于粪类圆线虫(S. stercoralis)和鼠类圆线虫(S. ratti)而言,注射后的存活率以及转基因或诱变效率均受多种可优化调节的因素影响。
成功进行转基因的首要关键因素是质粒转基因的构建方式。先前的研究发现,外源转基因在 粪类圆线虫 需要使用 粪类圆线虫 5' 启动子和 3' 非翻译区元件3,13,19. 与……类似 秀丽隐杆线虫 构建体, 粪类圆线虫 构建体通常使用基因特异性启动子和一个常见的3'非翻译区(UTR),例如来自 Ss-e...
访问受限。请登录或开始试用以查看此内容。
披露
作者声明无利益冲突。
致谢
pPV540 和 pPV402 是由宾夕法尼亚大学的 James Lok 博士慷慨赠送的。我们感谢 Astra Bryant 对手稿提出的有益意见。本研究由布罗德-韦尔奇基金会传染病发病机制研究者奖、霍华德·休斯医学研究所教员学者奖以及美国国立卫生研究院 R01 DC017959 项目(E.A.H.)资助。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| (−)-尼古丁,≥99%(GC),液体 | Sigma-Aldrich | N3876-5ML | 用于麻痹线虫的尼古丁 |
| 3" 铁制C型夹,3" x 2"(容量 x 深度) | VWR | 470121-790 | 用于将装置固定在实验台面上的C型夹 |
| 低电渗琼脂糖(Agarose LE) | Phenix | RBA-500 | 用于载玻片的琼脂糖 |
| 骨炭,4磅桶装,10 x 28目 | Ebonex | n/a | 用于粪便-炭培养的活性炭 |
| 骨炭,颗粒状,10 x 28目 | Reade | bonechar10x28 | 用于粪便培养的活性炭(上述产品的替代品) |
| 粗调微操作器 | Narishige | MMN-1 | 粗调微操作器 |
| Corning Costar Spin-X 离心管滤器 | Fisher | 07-200-385 | 微型滤柱 |
| 盖玻片,48 x 60 mm,1号厚度 | Brain Research Lab | 4860-1 | 盖玻片(48 x 60 mm) |
| 深型培养皿,加厚型,带6个通气孔,直径100 mm | VWR | 82050-918 | 10 cm 培养皿(用于粪便-炭培养) |
| Eisco 带杆铁架台底座 | Fisher | 12-000-101 | Baermann 装置用支架 |
| Eppendorf FemtoJet 显微注射器微加载吸头 | VWR | 89009-310 | 用于填充显微注射针头 |
| Fisherbrand 吸水垫巾 | Fisher | 14-206-62 | 实验台纸(用于样品制备) |
| Fisherbrand 铸铁环 | Fisher | 14-050CQ | Baermann 装置用O型环 |
| Fisherbrand 三角形聚丙烯烧杯 | Fisher | 14-955-111F | 塑料烧杯(用于混合) |
| Fisherbrand 三角形聚丙烯烧杯 | Fisher | 14-955-111F | 塑料烧杯(用于接液桶/水桶) |
| Fisherbrand 三角形聚丙烯烧杯 | Fisher | 14-955-111F | 塑料烧杯(x2)(用于制作支架) |
| 注射器装Gorilla环氧树脂 | McMaster-Carr | 7541A51 | 胶水(用于连接管路) |
| 卤代烃油700 | Sigma-Aldrich | H8898-50ML | 卤代烃油 |
| 食品饮料级耐高温硅橡胶管,内径1/2",外径5/8" | McMaster-Carr | 3038K24 | 管路(用于漏斗) |
| KIMAX 长颈漏斗,60° 角,Kimble Chase | VWR | 89001-414 | Baermann 漏斗 |
| Kimberly-Clark Professional Kimtech Science 实验台保护垫 | Fisher | 15-235-101 | 实验台纸(用于样品制备) |
| 带荧光功能的Leica体视显微镜 | Leica | M165 FC | 用于鉴定和分选转基因线虫的GFP体视显微镜 |
| microINJECTOR 黄铜直臂针夹 | Tritech | MINJ-4 | 显微注射针夹 |
| microINJECTOR 系统 | Tritech | MINJ-1 | 显微注射系统 |
| 蒙古沙鼠 | Charles River Laboratories | 213-Mongolian Gerbil | 用于维持粪类圆线虫(S. stercoralis)的沙鼠,雄性,4–6周龄 |
| Nasco Whirl-Pak 易封袋,18盎司 | VWR | 11216-776 | Whirl-Pak 样品袋 |
| 尼龙网纱(网状) | Jo-Ann Fabrics | zprd_14061949a | Baermann 支架用尼龙网 |
| 铂丝,36号规格,每英寸 | Thomas Scientific | 1233S72 | 用于制作线虫挑取针的铂/铱合金丝 |
| Puritan 压舌板,152 mm(长)x 17.5 mm(宽) | VWR | 62505-007 | 木棒(用于混合样品) |
| QIAprep Spin Miniprep 试剂盒(250次) | QIAGEN | 27106 | QIAGEN 质粒小提试剂盒 |
| 大鼠-Long Evans品系 | Envigo | 140 HsdBlu:LE Long Evans | 用于维持类圆线虫(S. ratti)的大鼠,雌性,4–6周龄 |
| 大鼠-Sprague Dawley品系 | Envigo | 002 Hsd:Sprague Dawley SD | 用于维持类圆线虫(S. ratti)的大鼠,雌性,4–6周龄 |
| Really Useful Boxes 半透明带盖储物盒,容量1.6 L,尺寸7-5/8" x 5-5/16" x 4-5/16" | Office Depot | 452369 | 用于加湿培养室的塑料盒 |
| Shepherd 技术板,8 x 16.5英寸 | Newco | 999589 | 技术板 |
| 不锈钢抬高式金属网底板 | Ancare | R20SSRWF | 金属网笼底 |
| StalkMarket 可降解餐具勺,6",白色,每包1000个 | Office Depot | 9587303 | 勺子 |
| Stender 培养皿,叠放式,37 x 25 mm | Carolina (Science) | 741012 | 表面皿(小型,圆形) |
| 体视显微镜 | Motic | K-400 LED | 解剖制备用体视显微镜 |
| 储物箱,透明/白色,外部高度4-7/8英寸,外部长度13-5/8英寸,Sterilite品牌 | Grainger | 53GN16 | 用于加湿培养室的塑料盒 |
| Sutter P-30 微量移液管拉制仪 | Sutter | P-30/P | 带铂/铱丝加热丝的针头拉制仪 |
| Syracuse 表面皿 | Fisher | S34826 | 表面皿(大型,圆形) |
| Thermo Scientific Castaloy 固定角度夹具 | Fisher | 05-769-2Q | 漏斗夹具(2个) |
| 三轴悬挂式操纵杆油压微操作器 | Narishige | MM0-4 | 精细微操作器 |
| United Mohr 压夹钳 | Fisher | S99422 | 压夹钳(2个) |
| 带通气孔的锐边培养皿(直径60 mm) | Tritech Research | T3308P | 6 cm 培养皿(用于小规模粪便-炭培养) |
| VWR 轻型擦拭纸 | VWR | 82003-820 | Baermann 支架内衬 |
| 表面皿,方形,1-5/8英寸 | Carolina (Science) | 742300 | 表面皿(小型,方形) |
| Whatman 定性滤纸圆片,1号等级,直径5.5 cm | Fisher | 09-805B | 滤纸(用于6 cm 培养皿) |
| Whatman 定性滤纸圆片,1号等级,直径9 cm | Fisher | 09-805D | 滤纸(用于10 cm 培养皿) |
| World Precision Instrument 硼硅酸盐玻璃毛细管,1.2 mm x 4英寸 | Fisher | 50-821-813 | 用于显微注射针头的玻璃毛细管 |
| X-Acto 刀具,1号刀柄配11号刀片 | Office Depot | 238816 | 无刀片的X-Acto刀具,用于固定线虫挑针 |
| Zeiss AxioObserver A1 | Zeiss | n/a | 倒置显微镜 |
参考文献
- Krolewiecki, A. J., et al. A public health response against Strongyloides stercoralis: time to look at soil-transmitted helminthiasis in full. PLoS Neglected Tropical Diseases. 7 (5), 2165(2013).
- Buonfrate, D., et al. The global prevalence of Strongyloides stercoralis infection. Pathogens. 9 (6), 468(2020).
- Castelletto, M. L., Gang, S. S., Hallem, E. A. Recent advances in functional genomics for parasitic nematodes of mammals. Journal of Experimental Biology. 223, Pt Suppl 1 206482(2020).
- Evans, T. C., et al. Transformation and microinjection. WormBook. , ed. The C. elegans Research Communnity (2006).
- Lok, J. B., Unnasch, T. R., et al. Transgenesis in animal parasitic nematodes: Strongyloides spp. and Brugia spp. WormBook. , ed. The C. elegans Research Communnity (2013).
- Shao, H. G., Li, X. S., Lok, J. B. Heritable genetic transformation of Strongyloides stercoralis by microinjection of plasmid DNA constructs into the male germline. International Journal for Parasitology. 47 (9), 511-515 (2017).
- Schafer, T. W., Skopic, A. Parasites of the small intestine. Current Gastroenterology Reports. 8 (4), 312-320 (2006).
- Stiernagle, T. Maintenance of C. elegans. The C. elegans Research Community, WormBook. , (2006).
- Gang, S. S., et al. Targeted mutagenesis in a human-parasitic nematode. PLoS Pathogens. 13 (10), 1006675(2017).
- Lok, J. B. Strongyloides stercoralis: a model for translational research on parasitic nematode biology. The C. elegans Research Community, WormBook. , (2007).
- Hawdon, J. M., Schad, G. A. Long-term storage of hookworm infective larvae in buffered saline solution maintains larval responsiveness to host signals. Proceedings of the Helminthological Society of Washington (USA). 58 (1), 140-142 (1991).
- Bargmann, C. I., Hartwieg, E., Horvitz, H. R. Odorant-selective genes and neurons mediate olfaction in C. elegans. Cell. 74 (3), 515-527 (1993).
- Junio, A. B., et al. Strongyloides stercoralis: cell- and tissue-specific transgene expression and co-transformation with vector constructs incorporating a common multifunctional 3' UTR. Experimental Parasitology. 118 (2), 253-265 (2008).
- Gang, S. S., et al. Chemosensory mechanisms of host seeking and infectivity in skin-penetrating nematodes. Proceedings of the National Academy of Sciences of the United States of America. 117 (30), 17913-17923 (2020).
- Bryant, A. S., et al. A critical role for thermosensation in host seeking by skin-penetrating nematodes. Current Biology. 28 (14), 2338-2347 (2018).
- Lok, J. B. Nucleic acid transfection and transgenesis in parasitic nematodes. Parasitology. 139 (5), 574-588 (2012).
- Shao, H., et al. Transposon-mediated chromosomal integration of transgenes in the parasitic nematode Strongyloides ratti and establishment of stable transgenic lines. PLoS Pathogens. 8 (8), 1002871(2012).
- Lok, J. piggyBac: a vehicle for integrative DNA transformation of parasitic nematodes. Mobile Genetic Elements. 3 (2), 24417(2013).
- Li, X., et al. Successful transgenesis of the parasitic nematode Strongyloides stercoralis requires endogenous non-coding control elements. International Journal for Parasitology. 36 (6), 671-679 (2006).
- Bryant, A. S., Hallem, E. A. The Wild Worm Codon Adapter: a web tool for automated codon adaptation of transgenes for expression in non-Caenorhabditis nematodes. G3. 3 (7), (2021).
- Crane, M., et al. In vivo measurements reveal a single 5'-intron is sufficient to increase protein expression level in Caenorhabditis elegans. Scientific Reports. 9 (1), 9192(2019).
- Han, Z., et al. Improving transgenesis efficiency and CRISPR-associated tools through codon optimization and native intron addition in Pristionchus nematodes. Genetics. 216 (4), 947-956 (2020).
- Adams, S., Pathak, P., Shao, H., Lok, J. B., Pires-daSilva, A. Liposome-based transfection enhances RNAi and CRISPR-mediated mutagenesis in non-model nematode systems. Scientific Reports. 9 (1), 483(2019).
- Dulovic, A., Puller, V., Streit, A. Optimizing culture conditions for free-living stages of the nematode parasite Strongyloides ratti. Experimental Parasitology. 168, 25-30 (2016).
- Harvey, S. C., Gemmill, A. W., Read, A. F., Viney, M. E. The control of morph development in the parasitic nematode Strongyloides ratti. Proceedings of the Royal Society B: Biological Sciences. 267 (1457), 2057-2063 (2000).
- Kim, A., Pyykko, I. Size matters: versatile use of PiggyBac transposons as a genetic manipulation tool. Molecular and Cellular Biochemistry. 354 (1-2), 301-309 (2011).
- Lok, J. B., Shao, H., Massey, H. C., Li, X. Transgenesis in Strongyloides and related parasitic nematodes: historical perspectives, current functional genomic applications and progress towards gene disruption and editing. Parasitology. 144 (3), 327-342 (2017).
- Farboud, B., Meyer, B. J. Dramatic enhancement of genome editing by CRISPR/Cas9 through improved guide RNA design. Genetics. 199 (4), 959-971 (2015).
- Cheong, M. C., et al. Identification of a nuclear receptor/coactivator developmental signaling pathway in the nematode parasite Strongyloides stercoralis. Proceedings of the National Academy of Sciences of the United States of America. 118 (8), 2021864118(2021).
- Nolan, T. J., Megyeri, Z., Bhopale, V. M., Schad, G. A. Strongyloides stercoralis: the first rodent model for uncomplicated and hyperinfective strongyloidiasis, the Mongolian gerbil (Meriones unguiculatus). Journal of Infectious Diseases. 168 (6), 1479-1484 (1993).
- Li, X., et al. Transgenesis in the parasitic nematode Strongyloides ratti. Molecular and Biochemical Parasitology. 179 (2), 114-119 (2011).
- Viney, M. E. Exploiting the life cycle of Strongyloides ratti. Parasitology Today. 15 (6), 231-235 (1999).
- Stoltzfus, J. D., Massey, H. C., Nolan, T. J., Griffith, S. D., Lok, J. B. Strongyloides stercoralis age-1: a potential regulator of infective larval development in a parasitic nematode. PLoS ONE. 7 (6), 38587(2012).
- Castelletto, M. L., Massey, H. C., Lok, J. B. Morphogenesis of Strongyloides stercoralis infective larvae requires the DAF-16 ortholog FKTF-1. PLoS Pathogens. 5 (4), 1000370(2009).
- Douglas, B., et al. Transgenic expression of a T cell epitope in Strongyloides ratti reveals that helminth-specific CD4+ T cells constitute both Th2 and Treg populations. PLoS Pathogens. 17 (7), 1009709(2021).
访问受限。请登录或开始试用以查看此内容。
重印与许可
