创新竞技场是一种用于研究动物单位时间内技术创新速率的新型比较方法。该方法包含20种不同的问题解决任务,所有任务同时呈现。创新行为可自由发生,且该装置设计对个体、种群或物种层面的先天倾向具有较强的抗干扰能力。
本文内容
摘要
摘要
解决问题任务通常用于研究技术性和创新性行为,但在广泛物种之间对这种能力进行比较却是一项具有挑战性的工作。特定的先天倾向,例如物种的形态工具包或探索技术,可能会显著影响在这些任务中的表现,从而使直接比较变得困难。本文介绍的方法旨在针对这些物种特异性差异更具稳健性:创新竞技场包含了20种不同的解决问题任务。所有任务同时呈现,受试个体被反复暴露于该装置前,从而能够测量创新行为随时间的出现情况——这是研究动物如何通过创新行为适应变化环境条件的重要下一步。
每个个体均使用该装置进行测试,直至其不再发现新的解决方案。测试结束后,我们分析了视频录像,对成功获取奖励以及多种针对装置的行为进行了编码。后一类行为采用主成分分析法进行分析,所得主成分连同实验轮次数以及所关注的组间比较因素,共同纳入广义线性混合模型,以预测成功的概率。
我们在此前的首个研究中采用了该方法,旨在探讨长期圈养是否会影响一种以创新行为著称的鹦鹉物种——戈芬氏凤头鹦鹉的问题解决能力。研究发现,不同组别在动机程度上存在差异,但在短期与长期圈养群体之间,问题解决能力并无显著差别。
引言
一只大山雀(Parus major)面对一瓶牛奶,但由于瓶口被铝箔封住,无法直接获取牛奶。它通过用喙啄穿铝箔解决了这一问题,从而得以饮用牛奶表面的奶油。这一情境描述了动物创新行为中最广为人知的案例之一1。
解决此类问题可能具有优势,尤其是在频繁变化的环境中。Kummer 和 Goodall2 将创新广义地定义为“找到一个新问题的解决方案,或为旧问题找到新的解决方法”。Tebbich 及其同事3 提出了更详细的定义,即“发现与社会或物理环境之间新的行为互动,利用已有的机会和/或创造新的机会”。
观察自发性创新行为需要详尽且耗时的观察,而在包含多种物种的研究框架中,这往往难以实现。为了应对这一挑战,研究人员已开展严格的文献综述,以估算创新频率4,5,并揭示了创新倾向与其他因素之间的相关性,例如神经学指标6,7,8和取食生态学特征9,10,11。然而,实验测试能够在受控环境中诱发创新行为。因此,动物在技术性问题解决任务中的表现常被用作衡量其创新能力的替代指标(参见综述12)。
已有多种不同方法被用于研究创新性问题解决能力:例如,可通过动物群体在特定任务中的表现进行比较。此类研究通常针对特定的创新行为或认知能力(如弯钩行为;参见13,14,15)。这种方法可使研究人员在特定情境下获得详细信息,但对相似性或差异性的解释受限于任务本身的性质,因为不同群体可能需要表现出不同程度的创新能力才能完成该任务(如文献13,14中所述)。
其他研究已采用一系列连续的任务16,17。该方法使得对多个任务的表现进行比较,并可在特定领域内评估整体能力。然而,此类研究的局限性在于不同任务是依次呈现的,因而无法对创新行为随时间的出现过程进行考察。
另一种方法是同时提供获取单一奖励的不同途径。这通常通过使用多通路箱(Multi Access Box, MAB)来实现。18,19,20,21,22,23,24,25,26,其中一个奖励物被放置在益智盒的中心位置,可被取出 通过 四种不同的解决方案。一旦动物持续使用同一种解决方案,该方案就会被封锁,动物必须转换到另一种解决方案才能获取奖励。通过此类实验,可以检测并考虑物种间和物种内的偏好差异,但该设计仍然将每次试验中的创新行为限制为仅能采用一种解决方案。18,19,20,21在其他研究中,动物也被同时呈现包含多种解决方案的装置,每种方案对应不同的奖励。这使得单次试验中可能出现多种创新行为,但迄今为止,这些任务大多局限于少数几种运动方式上存在差异的解决方案。由于这些研究的重点并非如此,实验设计未包含对装置的重复接触,而重复接触本可以用于衡量单位时间内的创新速率。27,28,29.
本文介绍了一种方法,该方法结合其他研究手段,可能有助于实现对不同物种创新性问题解决能力的比较。我们在单一实验装置中设计了更广泛的测试任务,这些任务在不同群体或物种中的难度预期各不相同。因此,特定任务带来的差异对整体解题概率的影响将大大降低。此外,我们将所有任务同时且重复地呈现给受试个体,以测量创新行为随时间的出现过程。这一指标有望加深我们对创新行为适应价值的理解。
一项首次采用该方法的研究探讨了长期圈养是否会影响戈芬氏凤头鹦鹉(Cacatua goffiniana;以下简称戈芬氏鹦鹉)的问题解决能力(即所谓“圈养效应”;见30),该物种是研究技术性创新行为的鸟类模型物种(综述见31)。
方案
本研究经维也纳兽医大学伦理与动物福利委员会批准,符合良好科学实践指南和国家法律法规。实验纯属非侵入性且仅涉及动物的趋利行为,因此根据奥地利《动物实验法》(TVG 2012)被归类为非动物实验。在印度尼西亚开展的实验部分已获得研究、技术与高等教育部(RISTEK)批准,依据是外籍研究人员许可协调小组会议(10/TKPIPA/E5/Dit.KI/X/2016)向 M.O.(410/SIP/FRP/E5/Dit.KI/XII/2016)和 B.M.(411/SIP/FRP/E5/Dit.KI/XII/2016)发放的研究许可。
1. 前提条件/先决条件
- 基础
- 确保能够对个体进行识别。研究物种可能具有独特的个体特征,或可通过标记(如彩色脚环或无毒颜料)对个体进行标识。
注意:有关鸣声记录以及捕捉和放生野生戈芬氏凤头鹦鹉的更多信息,请参见补充信息中的捕捉-放生操作流程32. - 确保提供一个视觉遮蔽的房间用于测试,以避免受试者之间发生社会学习。
- 确定研究物种和群体高度偏好的奖励物,方法是测试多种可获得的不同零食(参见33 或参考文献补充信息中的食物偏好测试32).
- 考虑各组之间的喂食时间是否存在显著差异。如果存在,应考虑采用一种确保喂食时间不会大幅减少其中一组完成任务可用时间的方案(更多信息请参见步骤4.8)。
注意:本研究中,长期圈养组更偏好腰果,而短期圈养组更偏好干玉米。
- 确保能够对个体进行识别。研究物种可能具有独特的个体特征,或可通过标记(如彩色脚环或无毒颜料)对个体进行标识。
- 设计创新竞技场
注意:完整的装置,即创新竞技场,由20个不同的谜题箱组成,排列在木质平台上的半圆形区域中。- 为研究物种设计适用尺寸的箱体基本轮廓。使用透明的梯形箱体(便于半圆形排列),配备可拆卸的盖子(以便在各次实验间补充诱饵)和可分离的底座(参见 图1).
注意:每个基座后续将保持固定位置,而其余盒子将变换位置。在本研究中,盒子的尺寸选择旨在确保每只凤头鹦鹉均可轻松接触拼图。可根据不同研究物种调整尺寸。 - 设计一个用于放置20个益智盒的平台。
- 设计一种固定系统,用于在测试期间固定盒盖,防止受试者在测试过程中将其取下。
注意:该部件必须可从设备上拆卸,因为需要取下盒子的盖子以放置诱饵。 - 为每个盒子的正面设计20个不同的任务,每个任务构成一项不同的技术挑战(参见 图2).
注意:本实验设计的任务旨在使解决方案处于多种不同物种的形态学范围之内。为了便于比较,最好使用与这些任务尽可能相似的任务,但需注意,任务对受试对象而言具有新颖性更为重要。参见 材料表 用于精确测量和该 补充技术图纸 有关任务的更详细说明。 - 获取装置所需的所有材料。
- 确保配备广角摄像头和编码软件(推荐使用,例如行为观察研究交互式软件,BORIS)34)以及用于统计分析的软件(推荐,例如 R35).
注意:对于野外研究,理想情况下应在离开前往研究地点前设计好实验区域,并尽可能携带所有必要设备,例如预先切割好的丙烯酸玻璃等。
- 为研究物种设计适用尺寸的箱体基本轮廓。使用透明的梯形箱体(便于半圆形排列),配备可拆卸的盖子(以便在各次实验间补充诱饵)和可分离的底座(参见 图1).
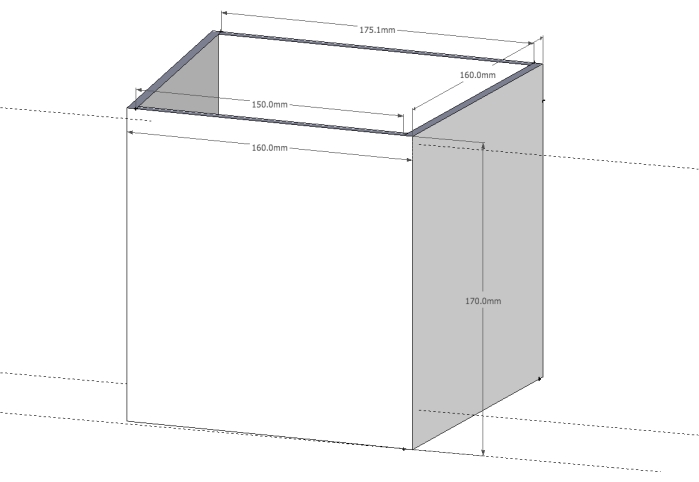
图1:一个基本的三边盒子示意图。 请点击此处查看此图的放大版本。
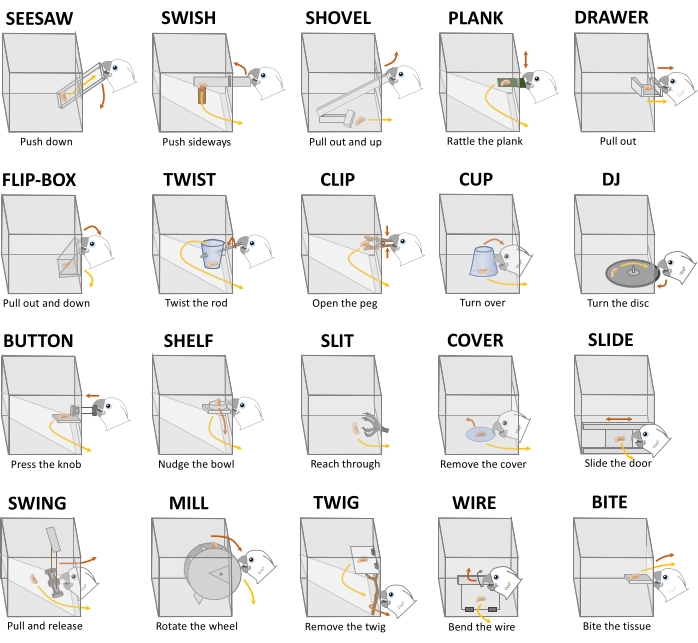
图2:创新竞技场中的各项任务,并附有解决任务所需动作的说明( = 奖励;红色箭头表示解决问题所需的动作方向;黄色箭头表示奖励的移动轨迹)。任务按其平均难度排列(从左到右,从上到下)。此前已发表于32。 请点击此处查看此图的放大版本。
2. 准备工作
- 将盒子的左侧、后侧和右侧三面粘合,但不要粘合前侧、顶部和底面。
- 将每个三面盒放置在底座上方,并在平台上将其均匀排列成半圆形(图3)。每个盒子的前部应距离中心1米。
注意:构成任务的装置(盒子的前表面及可能的内容物)将在实验的后续阶段添加。 - 从每个盒子向竞技场中心方向画一条20厘米长的线,并将这些线连接起来,形成一个邻近性网格(图3)。
注意:根据研究物种的体型大小,可能需要采用不同的距离。本研究中选择20厘米,因其大致相当于一只戈芬氏凤头鹦鹉的体长(不包括尾羽)。 - 除盒子底座外,移除所有部件,并将底座永久固定在平台上。这将确保盒子在实验过程中保持位置不变。
- 在竞技场上方的天花板安装一个广角摄像头。
- 为每位受试者在每轮实验中的每个盒子位置制定安排表。每位受试者在每次实验中都将面对所有盒子,但每轮实验的排列顺序需更新。每个任务的位置(位置1至20)应随机分配,限制条件为每位受试者在同一次实验中不得重复出现在同一位置。
注意:这是理想情况。如果无法预先规划受试者的测试顺序(在野外研究中更常见),则只需确保不同轮次之间(而非同一受试者内部)没有盒子重复出现在同一位置即可满足随机化要求。
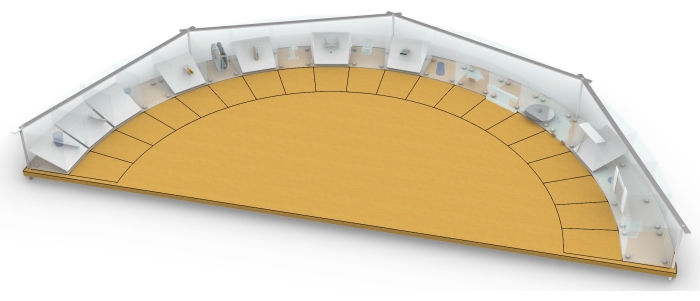
图3:创新竞技场。 任务呈半圆形排列;20个任务的位置可互换。每个箱体前方20 cm处标有黑色近场网格。请点击此处查看该图的放大版本。
3. 习惯化
注意:适应的目的是减少动物对实验区域产生新奇恐惧反应的影响。应通过适应程序确保所有受试对象达到最低适应水平,该程序要求每个个体满足以下两个标准。
- 在非功能性实验装置中进行适应训练(直至达到标准 I)
- 将所有三面箱体放置在底座上,盖上每个箱体的盖子,并使用固定系统将其固定到位(此时不放入受试对象)。
注意:应根据每个物种的特点分阶段对受试对象进行适应训练,例如逐步增加平台上箱体的数量、在受试对象的生活区域展示整个实验装置、在平台的任意位置(如周围、顶部、箱体附近)放置奖励物,或先以较大群体形式让受试对象接触装置,再逐步减少群体规模。 - 使受试对象熟悉任务中可能引发新奇恐惧反应的各个独立组件。
注意:这些独立组件(即除基本箱体、平台和固定系统之外的所有部件)在此阶段不得组合成可操作的机制。 - 将一个奖励物放入箱体内部(中央位置),然后将受试对象带入隔间。
- 在不干预的情况下等待一个完整实验周期的时间。此时受试对象应已取食奖励物。
注意:本实验中这些适应训练阶段的持续时间有所不同:长期圈养的鸟类为10分钟,短期圈养的凤头鹦鹉为20分钟,以适应因奖励物类型不同而导致的显著进食时间差异。此问题在后续测试阶段采用了不同的处理方式(见步骤4.8)。 - 对每个受试对象重复上述操作(每天一次实验),直至达到标准:每个个体在连续三个实验周期内,均能在与群体视觉隔离的条件下,取食完所有三面箱体中的奖励物(每箱一个奖励物)。
- 将所有三面箱体放置在底座上,盖上每个箱体的盖子,并使用固定系统将其固定到位(此时不放入受试对象)。
- 在功能性实验装置中进行适应训练(直至达到标准 II)
- 将所有必需组件粘贴并永久固定在箱体上,使其成为可操作的谜题箱。
注意:此时实验装置已完全具备测试阶段的功能。 - 将箱体随机放置在平台上(由底座固定位置),并将盖子牢固地固定在箱体上。
- 在每个箱体盖子上靠近实验区域中心的一侧边缘放置一个奖励物。
- 将受试对象带入隔间。
- 在不干预的情况下等待一个完整实验周期的时间。
注意:此时受试对象应已取食奖励物。 - 对每个受试对象重复上述操作(每天一次实验),直至达到标准。
注意:标准 II:个体在一次实验周期内,在与群体视觉隔离的条件下,取食完所有功能性谜题箱盖子上的全部奖励物(每箱一个奖励物)。该标准 II 可确保受试对象即使在装置新增部件后也不会产生恐惧反应。但此时受试对象不应与机械结构发生互动,若出现此类行为应立即中断。
- 将所有必需组件粘贴并永久固定在箱体上,使其成为可操作的谜题箱。
4. 测试
- 根据随机化方案将箱子放置在平台上。
- 在箱子内部的相应位置设置每个任务的诱饵(见图2)。
注意:每种奖励的具体位置取决于特定任务,可在视频中查看。 - 将箱盖固定到箱子上,并使用固定系统锁紧(确保受试者无法将其取下)。
- 单独分离一个个体并将其带入测试隔间。每次仅测试一个受试者,以避免社会学习的干扰。
- 将其置于起始位置(即平台中心处与所有任务等距的点),或在起始位置放置一个激励物(例如奖励),以确保受试者从此处开始。
- 启动计时器,并在20分钟(单次实验时长)内不进行干预或与受试者互动。受试者可尽可能多地完成任务。
- 如果受试者被与装置无关的物体分散注意力,实验人员可将其重新放回 arena 的起始位置(如可行)。
- 如果受试者取食奖励的时间超过3秒,暂停计时器,待取食结束后再继续计时。
注意:此举旨在确保用于解决问题的最大可用时间不会因取食时间而减少,从而保证两组之间的时间相等。 - 如果受试者在前3分钟内未与任何任务互动,且无焦躁表现,则实施激励方案(见第5节)。
- 当20分钟结束(单次实验最长持续时间)或受试者已完成所有任务后,当日测试结束,可将其释放回居住区域。
- 在下一个测试日,重复此程序。
- 持续对每个个体进行测试,直至其在最近连续五次实验中未解决任何新任务,或在连续十次实验中完全未解决任何任务为止。
5. 动机诱导方案
注意:如上文所述(步骤 4.9),如果个体在会话开始的前 3 分钟内未与任何任务发生交互,可实施激励方案。
- 在三个箱子的顶部各放置一个奖励物(分别选择左侧、中间和右侧的箱子)。如果受试者在摄取奖励物后3分钟内开始与任一任务互动,则恢复实验会话(此时开始计算20分钟的持续时间)。
- 如果未发生上述情况,则在接近线(即邻近网格)上分散放置五个奖励物。如果受试者在摄取奖励物后3分钟内开始与任一任务互动,则恢复实验会话(此时开始计算20分钟的持续时间)。
- 如果仍未发生上述情况,则在起始位置放置五个奖励物。如果受试者在摄取奖励物后3分钟内开始与任一任务互动,则恢复实验会话(此时开始计算20分钟的时间段)。
- 如果仍然没有互动,则在起始位置放置一小把奖励物,并终止当天的测试会话(但需给予受试者一定时间以摄取奖励物)。
6. 分析
- 行为编码
- 在分析视频之前,详细检查编码方案(表1),并考虑是否需要针对被测试物种进行调整。
注意:编码变量的描述应尽可能具体,以避免不同研究人员之间的编码差异。 - 标注以下点事件:接触的不同任务数量(TasksTouched;注意,接触任务的最大数量为20)、解决的任务数量(TasksSolved)、接触已设饵任务(BaitedContact)以及接触已解决任务(SolvedContact)。
- 标注以下持续时间:受试者穿过网格线外边界的潜伏期(LatencyGrid),以及在网格内停留的时间(GridTime)。
- 在分析视频之前,详细检查编码方案(表1),并考虑是否需要针对被测试物种进行调整。
- 统计分析
- 确定针对装置的行为指标(LatencyGrid、GridTime、TasksTouched、BaitedContact、SolvedContact)之间是否存在相关性。
- 如果存在相关性,则在将这些指标作为预测变量纳入模型之前,使用主成分分析提取主成分。
- 如果不存在相关性,则将这些指标分别作为预测变量纳入模型。
- 运行广义线性混合模型,采用二项分布误差结构和logit链接函数36。为预测成功概率(即响应变量为SolvedTasks),拟合具有最大随机斜率结构的模型,并为受试者、任务、受试者与会话的组合因子(SessionID)以及受试者与任务的组合因子(Subj.Task)设置随机截距,以避免伪重复。将关注的比较因素(例如物种)和主成分作为预测变量,并控制会话效应。考虑可能存在的交互作用。
- 为避免隐性多重检验37,应首先将该模型与一个缺少所有关注的固定效应的模型进行比较,然后再检验各个预测变量。
- 为检验不同组间任务难度是否存在总体差异,可将(完整)模型与一个缺少任务内组别随机斜率的模型进行比较。
结果
使用创新竞技场对19只受试个体进行了测试:其中11只为长期圈养的凤头鹦鹉,8只为短期圈养的凤头鹦鹉(图4)。
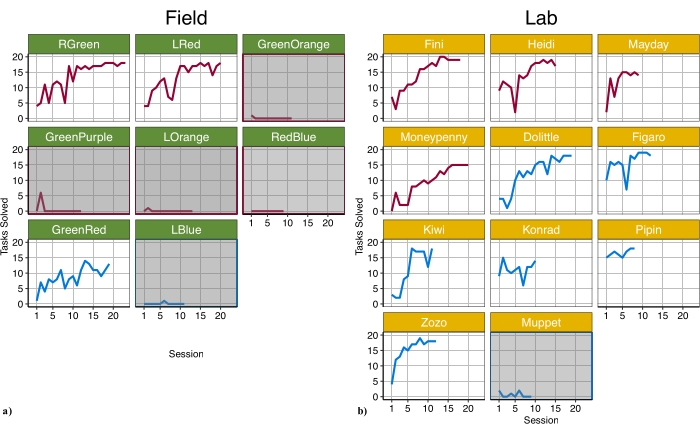
图4:每位受试者每节完成任务数量的概览。 a) 野外组,b) 实验室组。红线 = 雌性;蓝线 = 雄性。因不愿与装置互动而接受动机干预方案的受试者被归类为缺乏动机,并以灰色背景表示。此前发表于32的补充信息中。 请点击此处查看此图的放大版本。
主成分分析得到两个成分,其特征值高于凯泽准则38(PCA结果见表2)。PC1在任务接触频率、在任务附近(即在网格内)停留的时间以及接触任务的数量上具有高载荷。PC2受已解决任务的接触次数正向影响,并受未解决任务的接触次数负向影响。这类以任务为导向的行为常用于衡量动机(综述见12)。因此,在我们的模型中,将PC1和PC2作为与装置互动动机的定量指标。这两个成分共同解释了装置导向行为中76.7%的变异,且PC1、PC2以及实验阶段均显著影响任务解决的概率(PC1:估计值 = 2.713,SE ± 0.588,χ2 = 28.64,p < 0.001;PC2:估计值 = 0.906,SE ± 0.315,χ2 = 9.106,p = 0.003;实验阶段:估计值 = 1.719,SE ± 0.526,χ2 = 6.303,p = 0.001;见图5;见表4)。
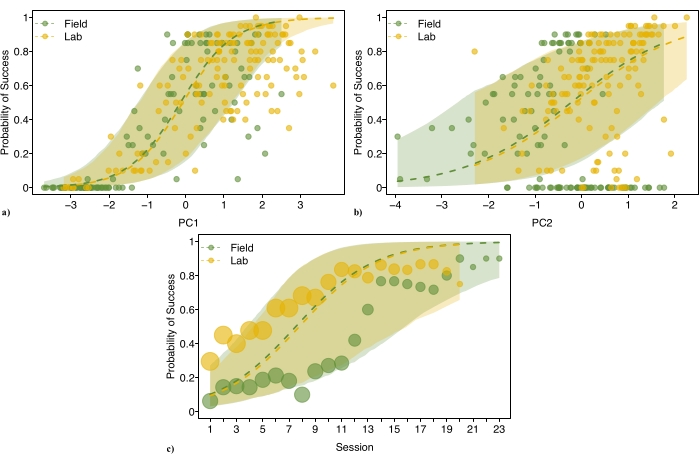
图5:控制预测变量对解决问题概率的影响:(a)PC1,(b)PC2,(c)实验轮次。图中圆点表示观测数据,圆点面积表示每个数据点的观测次数,虚线表示模型的拟合值,阴影区域表示模型的置信区间。此前发表于32。请点击此处查看该图的放大版本。
在19名受试者中,有6名在实验期间接受了动机干预方案(实验室环境:11名中有1名;野外环境:8名中有5名)。这些被归类为缺乏动机的鸟类的PC1值介于-2.934至-2.2之间,而所有其他具有动机的个体均表现出正值(表3)。
通过所提出的方法,我们发现各组在解决创新竞技场(Innovation Arena)中的20项技术性问题任务的概率上无显著差异(估计值 = −0.089,SE ± 1.012,χ2 = 0.005,p = 0.945;图5;固定效应估计值见表4;包含所有鸟类个体)。
包含组别与会话交互项的模型与原模型进行事后比较的结果显示(估计值 = 2.924,SE ± 0.854,χ2 = 14.461,p < 0.001),野外组在早期会话中解决问题的概率较低,但在后期会话中无此差异。早期会话中的这一差异可能源于野外组中缺乏/动机不足的鸟类数量较多(因在连续10次会话中均未解决任何任务而根据规则终止测试的个体接受了10至13次会话)。
此外,我们发现各组在任务总体难度方面无显著差异(包含所有鸟类的完整模型与缺少“任务内组别”随机斜率的简化模型比较:χ2 = 7.589, df = 5, p = 0.18)。然而,对那些从未需要动机试验的鸟类进行视觉比较,提示在个别任务能力上可能存在一些差异(例如,参见按钮任务中的表现) 图6).
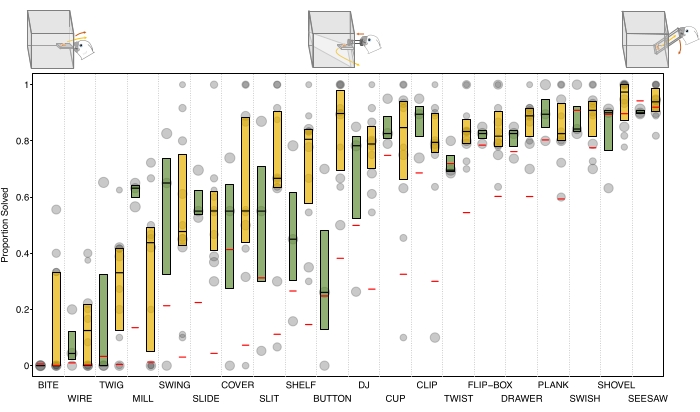
图6:不同任务和组别中动机明确个体的观测数据与模型拟合值:箱线图显示了两组在各项任务中的成功比例(绿色 = 野外组;橙色 = 实验室组)。粗水平线表示中位数,箱体范围为鸟类个体的第一至第三四分位数。箱线图仅展示具有明确动机的鸟类数据(以提高视觉清晰度)。单个观测值以点表示(点面积越大,表示该数据点包含的观测数量越多)。红色水平线表示模型拟合值,拟合值来源于完整数据集。图中包含“咬合”(左下)、“按钮”(中上)和“跷跷板”(右上)任务的示意图。此前发表于32。 请点击此处查看此图的放大版本。
这些结果表明,即使动物具有不同的经历和生态条件,该方法学仍适用于比较研究。仅使用单一任务(如按钮任务)来比较创新性解决问题的能力,可能会得出错误的结论,即长期圈养的鸟类更擅长解决问题。这种差异可能是由于实验室种群具有插入棍棒实验的经验所致,而该动作对野生种群而言生态相关性可能较低。当比较不同物种时,此类差异可能更为显著(见19)。我们还能够进一步检验动机如何影响解决问题的能力,同时在控制动机因素的情况下对两组结果进行比较。
因此,创新竞技场的20项技术问题不仅可以用于检测特定任务上的群体差异,还可以用于评估群体的整体创新能力。以戈芬氏凤头鹦鹉为例,如果两个群体愿意(即有动机)与装置互动,它们都具备获取大量奖励的能力。
表1:行为编码方案: 编码行为变量的详细描述。先前已发表32。请点击此处下载该表格。
表2:主成分分析结果: 因子载荷大于0.40的数值以粗体显示。先前已发表于32。 请点击此处下载该表格。
表3:受试者信息及任务导向行为与主成分的数值详情: 若各主成分(PC)的测量负荷超过0.40,则以上标标注。此前发表于32。请点击此处下载该表格。
表4:解决概率模型的固定效应结果。 之前已发表于32。请点击此处下载该表格。
补充文件:创新竞技场的技术图纸(InnovationArena.3dm)。 尺寸可能存在轻微偏差。可使用例如 3dviewer.net 打开,该软件是一个免费开源的三维模型查看器39。 请点击此处下载该文件。
讨论
创新竞技场是一种用于测试创新性技术问题解决能力的新方案。在设计创新竞技场的任务时,我们充分考虑到这些任务应能够适应不同物种的形态学限制(例如使用喙、吻部、爪子、爪或手)。为了促进已测试物种与未来待测试物种之间更广泛的可比性,我们鼓励在可行的情况下使用这些任务作为相应模型的研究工具。然而,我们也意识到某些任务可能需要根据特定物种的形态学限制进行调整。最重要的是,这些任务对受试个体而言必须是新颖的,这可能需要设计新的替代方案。创新竞技场的一个优势在于,由于其包含大量不同类型的任务,即使在未来研究中某些任务需要调整或更换,物种间的比较仍然可行且具有信息价值。
在规划研究时,应考虑到预实验阶段(例如,设计和构建实验装置)可能需要相当长的时间。此外,必须让受试个体充分适应实验装置。不同群体在探索行为和新奇反应方面可能存在显著差异40,41,42。消除(或减少)新物恐惧反应将使组间比较更加可靠,并有助于识别动机所起的作用。为了测量个体在时间进程中的创新行为出现情况,并避免社会学习的影响,必须对受试个体进行反复且单独的测试,这在野外条件下可能具有挑战性。对于许多物种而言,野外捕获的个体需要较长时间来适应新环境、人类的存在与互动,并建立有效的隔离程序。此外,可能难以在每次测试中严格遵守每个个体的随机化安排。在本研究中,长期圈养的凤头鹦鹉经过训练,可在听到自己名字被呼叫时进入测试隔间;而在野外,我们则需根据实际情况决定哪个个体进入测试房间。除了动机水平外,我们还发现另一个可能影响使用创新竞技场进行比较研究结果的因素。由于取食偏好和食物可获得性的差异,我们为两个群体使用了不同类型的食物奖励,这导致野生凤头鹦鹉的进食时间比实验室个体更长。为控制这一差异,我们将进食时间(若超过3秒)计入个体面对竞技场的总时长中。该方案确保了某一组因进食时间延长而未减少与竞技场互动的实际时间。未来的研究应考虑这一潜在问题,并可考虑在适应阶段即实施此方案。
该方法的优势和新颖之处在于结合了更多样化的任务、同时呈现这些任务、每次接触装置时提供多个奖励,以及对每个受试个体进行重复暴露。
此外,个体将被持续测试,直至其无法解决任何新任务。与固定次数的测试不同,这种解决方案发现的最大值(或渐近水平)以及每轮测试中解决的任务数量,能够为群体对变化环境的潜在适应能力提供重要信息。
一种替代方法的示例是多通路箱(Multi Access Box, MAB),其中可通过四种不同的方式解决同一任务,但每次与装置接触仅能获取一次奖励18,因此对创新速率随时间变化的评估受到显著限制。此外,个体任务上的困难(可能具有物种特异性)会强烈影响基于认知能力的表现比较。据我们所知,在以往研究中,同时呈现具有不同运动方式解决方案的任务数量最多仅为六项(Federspiel,针对八哥的六通路MAB,相关数据尚未发表)。尽管MAB是揭示探索技术的有力工具,但我们认为创新竞技场(Innovation Arena)更适用于直接比较创新本身的能力。更广泛的任务类型,且在难度上有所差异,能够更全面地反映整体技术性问题解决能力29。
在我们的首次研究中,我们成功比较了同一物种——戈芬氏凤头鹦鹉——的两个群体,它们在经验上存在显著差异。通过这一比较,我们重点关注了长期圈养是否会影响解决问题的能力。先前的研究表明,长期圈养的生活方式可能会增强这些能力(见30,43),但通过受控实验方法进行的直接比较仍较为罕见(但见44,45)。借助创新竞技场,我们得以探讨这一问题,结果并未发现圈养对戈芬氏凤头鹦鹉整体寻找新解决方案能力的影响,而仅发现其在动机水平上的影响32。
此外,创新竞技场还可用于探讨创新性问题解决能力的不同方面。下一步研究可包括针对发散性与收敛性影响的调查。例如,生态位不同的近缘物种之间的比较(如岛屿物种与非岛屿物种),以及远缘物种之间的比较,如鹦鹉与鸦科代表物种,或鸟类与灵长类物种——这些物种在以往的个体物理问题解决任务中表现出相似的能力46。创新竞技场的开发旨在实现对多种不同物种(甚至远缘物种)的比较研究。
尽管如此,该方法也可用于研究个体间的差异。例如,可以使用个性评分作为预测因子,以评估其对创新速率的影响。我们相信,本研究所提出的方法可由从事动物与人类创新研究的科研团队单独使用,或由专注于不同物种研究的实验室协作使用。
披露
作者声明无利益冲突。
致谢
感谢Stefan Schierhuber和David Lang在本视频制作过程中的协助,感谢Christoph Rössler在技术绘图方面的帮助,以及感谢Poppy Lambert对本文稿的校对。本出版物由奥地利科学基金(FWF;授予A.A.的START项目Y01309)资助。本研究所述工作由奥地利科学基金(FWF;授予A.A.的项目P29075和P29083,以及授予M.O.的项目J 4169-B29)以及维也纳科学与技术基金(WWTF;授予A.A.的项目CS18-023)资助。 此外,本研究还部分得到了奥地利科学基金(FWF)“DK Cognition and Communication 2”项目W1262-B29 [10.55776/W1262]的资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 木质平台 | 尺寸:木制半圆,半径约1.5 m | ||
| 固定系统 | |||
| 5 个金属螺母 | 尺寸M8 | ||
| 5 根杆 | (可能带有U型轮廓) | ||
| 5 根螺纹杆 | 尺寸:M8;长度:25 cm | ||
| 5 个翼形螺母 | 尺寸M8 | ||
| 无功能部件的益智盒 | |||
| 20 块亚克力玻璃背板 | 尺寸:17厘米 × 17.5厘米 × 0.5厘米 | ||
| 20 块亚克力玻璃底板 | 距离每侧约 2 厘米处设 4 个螺丝孔 尺寸:梯形 :17.5厘米 (后部)15厘米(前部)15厘米(两侧);厚1厘米 | ||
| 20 块亚克力玻璃前板 | 每个益智盒的亚克力玻璃前板需要以不同方式切割(参见示意图) 尺寸17厘米 × 15厘米 × 0.5厘米 | ||
| 20 个亚克力玻璃盖 | 在边缘裁剪0.5厘米以获得更好的贴合度 尺寸梯形:18.5厘米 × 16厘米 × 16厘米 × 1厘米(厚) | ||
| 40 块亚克力玻璃侧板 | 尺寸:17 cm × 16 cm × 0.5 cm | ||
| 80 个小型螺丝 | 使用4颗螺丝将底座固定到平台 | ||
| 每个任务中每种机制的部件 | |||
| 使用技术图纸 InnovationArena.3dm 组装各部件 | 可加载至例如 3dviewer.net,这是一个免费开源的 3D 模型查看器。GitHub 仓库:https://github.com/kovacsv/Online3DViewer;如需其他格式,请联系作者 | ||
| 任务扭转 | |||
| 5个小型螺母 | 用于将玻璃(打孔)和亚克力玻璃立方体固定到螺纹杆上 | ||
| 丙烯酸玻璃 | 尺寸2 cm × 2 cm × 1 cm | ||
| 纸板斜面 | 尺寸梯形:17.5厘米(后边)×15厘米(前边)×17厘米(侧边) | ||
| 塑料量杯 | 尺寸高度:5 cm; rim 直径:4.5 cm;底座直径:3 cm | ||
| 细螺纹杆 | 尺寸:长度:约10 cm | ||
| 任务按钮 | |||
| 2个坚果 | 将外螺母粘附于杆上;将外螺母用胶固定在杆上 尺寸M8 | ||
| 丙烯酸玻璃 | V型切口以方便杆的滑动 尺寸4厘米 × 3厘米 × 1厘米(中间0.5厘米V型切口) | ||
| 纸板斜面 | 尺寸梯形:17.5厘米(后边)×15厘米(前边)×17厘米(侧边) | ||
| 螺纹杆 | 尺寸:M8,长度:5 cm | ||
| 任务架 | |||
| 亚克力玻璃顶盖 | 尺寸5 cm × 4 cm × 0.3 cm | ||
| 亚克力玻璃下部 | 尺寸5 cm × 4 cm × 1 cm | ||
| 亚克力玻璃侧板1 | 尺寸4厘米 × 3厘米 × 0.5厘米 | ||
| 亚克力玻璃侧板 2 | 尺寸4.5 cm × 3 cm × 0.5 cm | ||
| 薄塑料桶 | 一侧被切掉以适配 尺寸直径:约 4.5 cm;高度:1 cm | ||
| 纸板斜面 | 尺寸梯形:17.5厘米(后边)×15厘米(前边)×17厘米(侧边) | ||
| 任务狭缝 | 伸手进入的空间:高度2cm | ||
| - | 建议:在奖励物后方添加小型塑料挡板,以防止其被进一步推入盒内 | ||
| 任务片段 | |||
| 2x 丙烯酸玻璃 | 尺寸1 cm × 1 cm × 2 cm | ||
| 纸板斜面 | 尺寸梯形:17.5厘米(后边)×15厘米(前边)×17厘米(侧边) | ||
| 栓钉 | 尺寸长度:约 6 cm | ||
| 细螺纹杆 | 尺寸:长度:约 6 cm | ||
| 任务磨盘 | |||
| 2个丙烯酸玻璃三角形 | 尺寸:10 cm × 7.5 cm × 7.5 cm;厚度:1 cm | ||
| 2x 塑料圆盘 | 尺寸:直径:12 cm | ||
| 4个小型螺母 | 用于固定 | ||
| 7块丙烯酸玻璃 | 尺寸4.5厘米 × 2厘米,0.5厘米 | ||
| 亚克力玻璃长条 | 将研磨器放置到位,使较长的有机玻璃接触前部下半部分(这样研磨器只能朝一个方向转动) 尺寸6.5厘米 × 2厘米,0.5厘米 | ||
| 细螺纹杆 | 尺寸:长度:约4 cm | ||
| 木圆柱 | 尺寸:直径:2 cm | ||
| 任务挥击 | |||
| 2x 丙烯酸玻璃 | 尺寸2 cm × 1 cm × 1 cm | ||
| 4个小型螺母 | 用于固定 | ||
| 丙烯酸玻璃 | 尺寸10 cm × 2 cm × 1 cm | ||
| 纸板斜面 | 尺寸梯形:17.5厘米(后边)×15厘米(前边)×17厘米(侧边) | ||
| 细螺纹杆 | 尺寸:长度:约7 cm | ||
| 木圆柱体 | 尺寸直径:2 cm,斜切;最长部分:7 cm,最短部分:5 cm | ||
| 任务铲 | |||
| 丙烯酸玻璃 | 尺寸20 cm × 2 cm × 1 cm | ||
| 丙烯酸玻璃 | 尺寸7.5厘米 × 2厘米 × 1厘米 | ||
| 丙烯酸玻璃 | 尺寸5 cm × 1 cm × 1 cm | ||
| 小铰链 | |||
| 任务摆动 | |||
| 4个坚果 | 尺寸M8 | ||
| 丙烯酸玻璃 | 尺寸7.5厘米 × 5厘米 × 1厘米 | ||
| 纸板斜面 | 尺寸梯形:17.5厘米(后边)×15厘米(前边)×17厘米(侧边) | ||
| 绳索 | 尺寸:2个,约11厘米 | ||
| 细弯塑料片 | 用于盛放奖励物的斜置桶 | ||
| 螺纹杆 | 尺寸:M8;长度:7厘米 | ||
| 任务跷跷板 | |||
| 2x 丙烯酸玻璃 | 尺寸10 cm × 1.5 cm × 0.5 cm | ||
| 2x 丙烯酸玻璃 | 尺寸4厘米 × 1.5厘米 × 0.5厘米 | ||
| 丙烯酸玻璃 | 尺寸10 cm × 3 cm × 0.5 cm | ||
| 丙烯酸玻璃 | 尺寸4 cm × 1.5 cm × 1 cm | ||
| 小铰链 | |||
| 任务板 | |||
| 纸板斜面 | 尺寸梯形:17.5厘米(后边)×15厘米(前边)×17厘米(侧边) | ||
| 薄锡片 | 在盒子内部约弯曲1厘米 尺寸6.5厘米 × 3厘米 | ||
| 任务杯 | |||
| 塑料量杯 | 尺寸高度:5 cm; rim 直径:4.5;底座直径:3 cm | ||
| 任务翻转盒 | |||
| 2x 丙烯酸玻璃三角形 | 尺寸:7 cm × 5 cm × 5 cm;厚度:0.5 cm | ||
| 2x 丙烯酸玻璃 | 尺寸4.5 cm × 5 cm × 0.5 cm | ||
| 2x 丙烯酸玻璃 | 尺寸7 cm × 1 cm × 1 cm | ||
| 小铰链 | |||
| 任务幻灯片 | |||
| 4块丙烯酸玻璃 | 尺寸15 cm × 1 cm × 0.5 cm | ||
| 亚克力玻璃门 | 尺寸6 cm × 6 cm × 0.5 cm | ||
| 任务 DJ | |||
| 2x 小号螺母 | 用于固定 | ||
| 丙烯酸玻璃 | 与盒子底座相同 尺寸:梯形:17.5厘米(后边)×15厘米(前边)×15厘米(侧边);厚1厘米 | ||
| 塑料圆盘 | 尺寸:直径 12 cm | ||
| 细螺纹杆 | 尺寸:长度:约3 cm | ||
| 任务金属丝 | |||
| 丙烯酸玻璃 | 尺寸9.5厘米 × 9.5厘米 × 0.5厘米 | ||
| 丙烯酸玻璃 | 尺寸12 cm × 2 cm × 1 cm | ||
| 2个小型铰链 | |||
| 回形针的金属丝 | |||
| 任务枝条 | |||
| 2个小型铰链 | |||
| 丙烯酸玻璃 | 尺寸5 cm × 1 cm | ||
| 纸板斜面 | 尺寸:梯形:17.5厘米(后边)×15厘米(前边)×17厘米(侧边) | ||
| 白色纸板 | 尺寸13厘米 × 4厘米 | ||
| Y形小枝 | 尺寸:长度:约14 cm | ||
| 任务封面 | |||
| 丙烯酸玻璃 | 与盒子底座相同 尺寸梯形:17.5厘米(后边)×15厘米(前边)×15厘米(侧边);厚1厘米 | ||
| 薄塑料 | 尺寸:直径:5 cm | ||
| 任务咬合 | 建议:在平台两侧贴上胶带,以防止奖励物掉落 | ||
| 2-3 个回形针 | |||
| 2x 剪贴板剪下的镂空部分 | 尺寸10 cm × 3 cm | ||
| 丙烯酸玻璃 | 中间的孔 尺寸5 cm × 3 cm × 1 cm | ||
| 卫生纸 | |||
| 任务抽屉 | |||
| 2x 丙烯酸玻璃 | 尺寸5 cm × 2.5 cm × 0.5 cm | ||
| 2x 丙烯酸玻璃 | 尺寸4厘米 × 3厘米 × 1厘米 | ||
| 丙烯酸玻璃 | 孔距前端约 2 cm 尺寸5 cm × 5 cm × 1 cm | ||
| 其他材料 | |||
| 广角摄像机 |
参考文献
- Fisher, J. The opening of milkbottles by birds. British Birds. 42, 347-357 (1949).
- Kummer, H., Goodall, J. Conditions of innovative behaviour in primates. Philosophical Transactions of the Royal Society of London. B, Biological Sciences. 308 (1135), 203-214 (1985).
- Tebbich, S., Griffin, A. S., Peschl, M. F., Sterelny, K. From mechanisms to function: an integrated framework of animal innovation. Philosophical Transactions of the Royal Society B: Biological Sciences. 371 (1690), 20150195(2016).
- Reader, S. M., Laland, K. N. Social intelligence, innovation, and enhanced brain size in primates. Proceedings of the National Academy of Sciences. 99 (7), 4436-4441 (2002).
- Reader, S. M., Laland, K. N. Primate innovation: Sex, age and social rank differences. International Journal of Primatology. 22 (5), 787-805 (2001).
- Lefebvre, L., Whittle, P., Lascaris, E., Finkelstein, A. Feeding innovations and forebrain size in birds. Animal Behaviour. 53 (3), 549-560 (1997).
- Lefebvre, L., et al. Feeding innovations and forebrain size in Australasian birds. Behaviour. 135 (8), 1077-1097 (1998).
- Timmermans, S., Lefebvre, L., Boire, D., Basu, P. Relative size of the hyperstriatum ventrale is the best predictor of feeding innovation rate in birds. Brain, Behavior and Evolution. 56 (4), 196-203 (2000).
- Ducatez, S., Clavel, J., Lefebvre, L. Ecological generalism and behavioural innovation in birds: technical intelligence or the simple incorporation of new foods. Journal of Animal Ecology. 84 (1), 79-89 (2015).
- Sol, D., Lefebvre, L., Rodríguez-Teijeiro, J. D. Brain size, innovative propensity and migratory behaviour in temperate Palaearctic birds. Proceedings of the Royal Society B: Biological Sciences. 272 (1571), 1433-1441 (2005).
- Sol, D., Sayol, F., Ducatez, S., Lefebvre, L. The life-history basis of behavioural innovations. Philosophical Transactions of the Royal Society B: Biological Sciences. 371 (1690), 20150187(2016).
- Griffin, A. S., Guez, D. Innovation and problem solving: A review of common mechanisms. Behavioural Processes. 109, Pt. B 121-134 (2014).
- Laumer, I. B., Bugnyar, T., Reber, S. A., Auersperg, A. M. I. Can hook-bending be let off the hook? Bending/unbending of pliant tools by cockatoos. Proceedings of the Royal Society B. Biological Sciences. 284 (1862), 20171026(2017).
- Rutz, C., Sugasawa, S., Vander Wal, J. E. M., Klump, B. C., St Clair, J. J. H. Tool bending in New Caledonian crows. Royal Society Open Science. 3 (8), 160439(2016).
- Weir, A. A. S., Kacelnik, A. A New Caledonian crow (Corvus moneduloides) creatively re-designs tools by bending or unbending aluminium strips. Animal Cognition. 9 (4), 317-334 (2006).
- Herrmann, E., Hare, B., Call, J., Tomasello, M. Differences in the cognitive skills of bonobos and chimpanzees. PloS One. 5 (8), 12438(2010).
- Herrmann, E., Call, J., Hernández-Lloreda, M. V., Hare, B., Tomasello, M. Humans have evolved specialized skills of social cognition: The cultural intelligence hypothesis. Science. 317 (5843), 1360-1366 (2007).
- Auersperg, A. M. I., Gajdon, G. K., von Bayern, A. M. P. A new approach to comparing problem solving, flexibility and innovation. Communicative & Integrative Biology. 5 (2), 140-145 (2012).
- Auersperg, A. M. I., von Bayern, A. M. P., Gajdon, G. K., Huber, L., Kacelnik, A. Flexibility in problem solving and tool use of Kea and New Caledonian crows in a multi access box paradigm. PLoS One. 6 (6), 20231(2011).
- Daniels, S. E., Fanelli, R. E., Gilbert, A., Benson-Amram, S. Behavioral flexibility of a generalist carnivore. Animal Cognition. 22 (3), 387-396 (2019).
- Johnson-Ulrich, L., Holekamp, K. E., Hambrick, D. Z. Innovative problem-solving in wild hyenas is reliable across time and contexts. Scientific Reports. 10 (1), 13000(2020).
- Johnson-Ulrich, L., Johnson-Ulrich, Z., Holekamp, K. Proactive behavior, but not inhibitory control, predicts repeated innovation by spotted hyenas tested with a multi-access box. Animal Cognition. 21 (3), 379-392 (2018).
- Williams, D. M., Wu, C., Blumstein, D. T. Social position indirectly influences the traits yellow-bellied marmots use to solve problems. Animal Cognition. 24 (4), 829-842 (2021).
- Cooke, A. C., Davidson, G. L., van Oers, K., Quinn, J. L. Motivation, accuracy and positive feedback through experience explain innovative problem solving and its repeatability. Animal Behaviour. 174, 249-261 (2021).
- Huebner, F., Fichtel, C. Innovation and behavioral flexibility in wild redfronted lemurs (Eulemur rufifrons). Animal Cognition. 18 (3), 777-787 (2015).
- Godinho, L., Marinho, Y., Bezerra, B. Performance of blue-fronted amazon parrots (Amazona aestiva) when solving the pebbles-and-seeds and multi-access-box paradigms: ex situ and in situ experiments. Animal Cognition. 23 (3), 455-464 (2020).
- Bouchard, J., Goodyer, W., Lefebvre, L. Social learning and innovation are positively correlated in pigeons (Columba livia). Animal Cognition. 10 (2), 259-266 (2007).
- Griffin, A. S., Diquelou, M., Perea, M. Innovative problem solving in birds: a key role of motor diversity. Animal Behaviour. 92, 221-227 (2014).
- Webster, S. J., Lefebvre, L. Problem solving and neophobia in a columbiform-passeriform assemblage in Barbados. Animal Behaviour. 62 (1), 23-32 (2001).
- Haslam, M. 34;Captivity bias" in animal tool use and its implications for the evolution of hominin technology. Philosophical Transactions of the Royal Society B: Biological Sciences. 368 (1630), 20120421(2013).
- Lambert, M. L., Jacobs, I., Osvath, M., von Bayern, A. M. P. Birds of a feather? Parrot and corvid cognition compared. Behaviour. , 1-90 (2018).
- Rössler, T., et al. Using an Innovation Arena to compare wild-caught and laboratory Goffin´s cockatoos. Scientific Reports. 10 (1), 8681(2020).
- Laumer, I. B., Bugnyar, T., Auersperg, A. M. I. Flexible decision-making relative to reward quality and tool functionality in Goffin cockatoos (Cacatua goffiniana). Scientific Reports. 6, 28380(2016).
- Friard, O., Gamba, M. BORIS: a free, versatile open-source event-logging software for video/audio coding and live observations. Methods in Ecology and Evolution. 7 (11), 1325-1330 (2016).
- R. Core Team. R: A language and environment for statistical computing. R Foundation for Statistical Computing. , (2020).
- McCullagh, P., Nelder, J. A. Generalized linear models. Monographs on Statistics and Applied Probability. , (1989).
- Forstmeier, W., Schielzeth, H. Cryptic multiple hypotheses testing in linear models: overestimated effect sizes and the winner's curse. Behavioral Ecology and Sociobiology. 65 (1), 47-55 (2011).
- Kaiser, H. F. The application of electronic computers to factor analysis. Educational and Psychological Measurement. 20 (1), 141-151 (1960).
- Kovacs, V. Online 3D Viewer. , Available from: https://github.com/lovacsv/Online3DViewer (2021).
- Greenberg, R. S., Mettke-Hofmann, C. Ecological aspects of neophobia and neophilia in birds. Current Ornithology. 16, 119-169 (2001).
- Mettke-Hofmann, C., Winkler, H., Leisler, B. The Significance of Ecological Factors for Exploration and Neophobia in Parrots. Ethology. 108 (3), 249-272 (2002).
- O'Hara, M., et al. The temporal dependence of exploration on neotic style in birds. Scientific Reports. 7 (1), 4742(2017).
- Chevalier-Skolnikoff, S., Liska, J. O. Tool use by wild and captive elephants. Animal Behaviour. 46 (2), 209-219 (1993).
- Benson-Amram, S., Weldele, M. L., Holekamp, K. E. A comparison of innovative problem-solving abilities between wild and captive spotted hyaenas, Crocuta crocuta. Animal Behaviour. 85 (2), 349-356 (2013).
- Gajdon, G. K., Fijn, N., Huber, L. Testing social learning in a wild mountain parrot, the kea (Nestor notabilis). Animal Learning and Behavior. 32 (1), 62-71 (2004).
- Shettleworth, S. J. Cognition, Evolution, and Behavior. , Oxford University Press. (2009).
重印与许可
