本文介绍了一种在秀丽隐杆线虫(Caenorhabditis elegans)中评估受试化合物神经保护活性的实验方案,包括多聚谷氨酰胺聚集、神经元死亡和趋化回避行为的检测,以及多种表型整合分析的示例。
方法文章
Caenorhabditis elegans 作为发现抗多聚谷氨酰胺介导神经毒性的生物活性化合物的模型系统
* These authors contributed equally
本文内容
摘要
摘要
病理性蛋白随年龄增长发生的错误折叠和聚集是多种神经退行性疾病的原因。例如,亨廷顿病(HD)主要由CAG核苷酸重复序列引起,该序列编码亨廷顿蛋白中异常扩展的谷氨酰胺片段。因此,抑制多聚谷氨酰胺(polyQ)的聚集,特别是与聚集相关的神经毒性,是预防HD及其他polyQ相关疾病的有效策略。本文介绍了一套通用的实验方案,利用已建立的polyQ转基因秀丽隐杆线虫(Caenorhabditis elegans)模型,评估待测化合物对HD的神经保护能力。在polyQ聚集实验中选用AM141品系,因其在成虫阶段体壁肌肉中特异性表达polyQ::YFP融合蛋白,可清晰观察到随年龄出现的离散荧光聚集物表型。相比之下,HA759模型在ASH神经元中强烈表达扩展的polyQ片段,适用于检测神经元死亡及化学回避行为。为了全面评估目标化合物的神经保护能力,上述测试结果最终以雷达图形式呈现,通过多种表型的轮廓分析实现直接比较和直观观察。
引言
亨廷顿病(HD)中的进行性神经退行性变涉及致病性突变亨廷顿蛋白,该蛋白含有由CAG三核苷酸重复序列编码的异常延长的多聚谷氨酰胺(polyQ)片段1,2,3。含有超过37个谷氨酰胺重复序列的突变亨廷顿蛋白易于聚集,并在HD患者及动物模型的脑内蓄积4,5,最终导致神经元退化6。尽管目前对polyQ聚集体在疾病病理过程中的具体作用尚不明确5,但抑制polyQ聚集及其相关毒性仍是治疗HD及其他polyQ相关疾病的有效策略之一4,7,8。
由于神经信号通路的高度保守性以及易于构建转基因疾病模型,Caenorhabditis elegans 已被广泛用作研究神经系统疾病的主要模式生物9,10,11,12。例如,表达易聚集多聚谷氨酰胺(polyQ)扩展片段的转基因 C. elegans 模型能够客观地模拟亨廷顿病(HD)样特征,如选择性神经元丢失、胞质内聚集物形成以及行为缺陷13。通过研究待测样品在已建立的 polyQ 线虫模型中逆转上述表型的潜在作用,已鉴定出多种具有治疗前景的候选物质,例如多糖7,14,15、寡糖16、天然小分子化合物17,18,以及中药提取物和复方制剂19,20。
本文描述了两种主要的多聚谷氨酰胺(polyQ)C. elegans 模型及相关实验方案,其潜在应用以黄芪多糖(astragalan)的研究为例进行说明。黄芪多糖是从Astragalus membranaceus7中分离得到的一种多糖。在C. elegans多聚谷氨酰胺聚集检测中,所用模型为转基因品系AM141,该品系在成年期因其表达Q40::YFP融合蛋白——即由40个残基组成的多聚谷氨酰胺片段(polyQ40)与黄色荧光蛋白(YFP)融合而成——而在体壁肌中呈现分散的荧光斑点21,22。品系HA759用于检测神经元存活和趋化回避行为,该品系在ASH神经元中强烈表达绿色荧光蛋白(GFP)和Htn-Q150(一种来源于人亨廷顿蛋白的含150个残基的多聚谷氨酰胺片段),在其他神经元中表达较弱,导致进行性神经退行性变和ASH细胞死亡7,13。通过整合不同实验的结果,可全面评估治疗候选物的神经保护潜力。
方案
注意:本方案中所用溶液的配方详见表1。
1. 线虫(Caenorhabditis elegans)实验材料的准备
- 维持 C. elegans 菌株
- 获取 C. elegans (AM141 和 HA759)以及 大肠杆菌 (OP50 和 NA22)菌株(参见 材料表).
- 在接种了大肠杆菌OP50的线虫生长培养基(NGM)平板上培养线虫 E. coli OP50 在 20 °C 用于 AM14121 或 15 °C for HA75923.
- 制备 E. coli OP50 菌株培养物
- 挑取单个菌落 E. coli 从LB平板上挑取OP50单菌落,接种至50 mL液体LB培养基中。
- 在摇床中孵育 OP50 细菌 37 °C 以及200 rpm振荡培养至570 nm处光密度值(OD)约为0.5570).
- 将OP50菌液培养物保存于 4 °C 并在两周内使用。
- NGM 平板的制备及 OP50 细菌接种
- 加入20 g琼脂、2.5 g蛋白胨、3.0 g NaCl和975 mL去离子水至1 L可高压灭菌瓶中。在 121 °C 30 分钟。
- 将液体 NGM 琼脂瓶置于实验台上冷却至约 ~60 °C,然后加入以下无菌储备液:1 mL 1 M CaCl2,1 mL 1 M MgSO₄45 mg/mL 胆固醇溶液 1 mL 和 1 M 磷酸钾缓冲液(pH 6.0)25 mL
- 将20 mL NGM倒入无菌的90 mm培养皿中,置于实验台上冷却并凝固。将平板倒置,在室温下于实验台上干燥2天。
- 分配 200 µL 将OP50菌液均匀涂布于每块NGM平板上,使用无菌玻璃涂布棒 spread evenly。盖上皿盖,于37°C过夜培养。 37 °C.
- 将接种了OP50的NGM平板置于带盖塑料盒中,室温保存,并在两周内使用。
- 年龄同步化制备 秀丽隐杆线虫 种群
- 收集带有卵的成年线虫至无菌的1.5 mL微量离心管中,以1000 × g 孵育1分钟。用M9缓冲液洗涤三次,并将线虫重悬于M9缓冲液中。
- 加入等体积的漂白液,轻轻振荡3-5分钟。每隔15秒在解剖显微镜下观察一次漂白情况。
注意:使用前必须将10% NaOCl与1 M NaOH等体积混合,新鲜配制次氯酸钠溶液(表1)20. - 当大部分线虫破碎后,加入M9缓冲液终止消化。迅速离心以去除上清液,并将沉淀重悬于M9缓冲液中,重复洗涤三次。
- 将沉淀重悬于S培养基中。静置2-3分钟,使线虫残渣依靠重力沉降,而虫卵保留在上清液中。
- 吸弃上清液至新的无菌微量离心管中。以1000 × g离心收集卵子。 g 1 分钟。
- 弃去约80%的上清液,将卵转移至含有20 mL S培养基的无菌烧瓶中。将烧瓶置于摇床中,在120 rpm条件下避光振荡培养过夜,以获得同步化的L1期线虫。
2. 多聚谷氨酰胺(PolyQ)聚集实验
- 聚Q蛋白聚集实验用线虫的制备
- 将300-500条同步化的AM141 L1期幼虫转移至48孔板的每个孔中 500 µL 含 OP50 的 S 培养基(OD570 0.7–0.8)和5 mg/mL的黄芪多糖,通常每个处理组每个时间点设一个孔。
- 用封口膜密封培养板,并在 20 °C 24、48、72 和 96 小时,转速为 120 rpm。
- 在无菌的1.5 mL微量离心管中收集线虫,并用M9缓冲液洗涤 >3 次离心(1000 × g 离心1分钟以去除残留的OP50。用M9缓冲液重悬AM141线虫,并准备好进行成像。
- 荧光图像采集与数据分析
注意:该高内涵成像系统可自动分析数据。若无自动化成像设备,可采用常规方法制备琼脂糖垫,结合普通荧光显微镜进行图像采集,以达到类似效果。7,15,17 (见步骤 3.2 和 3.3)。- 将10–15条线虫转移至384孔板的每个孔中(终体积 80 µL 每孔。每种处理设置10个复孔。
- 添加 10 µL 向每孔加入 200 mM 叠氮化钠,以麻痹线虫并使其沉降至孔底(5–10 分钟)。
- 将培养板放入高内涵成像系统中以获取荧光图像(参见 材料清单 有关设备和软件信息)。
- 打开图像采集软件并设置以下参数。
- 打开 平板获取设置 窗口并创建新的实验集并命名。
- 选择 放大倍数 作为 2x, 相机像素合并 作为 1,以及 培养皿类型 作为 384孔板.
- 设置待访问的孔和位点(单个位点)。
- 选择荧光素异硫氰酸酯(fluorescein isothiocyanate,FITC滤光片 并启用基于图像的对焦选项。
- 设置 暴露 作为 300 ms.
注意:上述设置可进行测试和调整,以优化成像参数。 - 保存 图像采集 设置并点击 获取培养板 运行按钮。
- 使用图像分析软件分析图像数据。
- 打开 审查平板数据 窗口并选择 测试板 用于图像分析。
- 双击一个测试孔以显示其图像。
- 选择 计数细胞核 作为分析方法并单击 配置设置 按钮以弹出一个窗口进行以下设置。
- 定义来自 FITC 通道的源图像并选择 标准算法.
- 设置图像分析参数如下:近似最小宽度 = 10 µm (= 2像素);近似最大宽度 = 50 µm (= 12像素);局部背景以上的强度 = 1,000–2,000灰度级。
- 测试当前设置以优化分析方法。
- 保存设置并对所有孔进行分析。
注意:分析一个384孔板大约需要20分钟。 - 导出 总细胞核 每个孔中Q40::YFP聚集体的总数。
- 统计每个孔中的线虫数量。
- 计算每组线虫中Q40::YFP聚集体的平均数量,并对每个时间点的数据进行非线性曲线拟合。
- 使用公式(eq)计算抑制指数1如下所示:
抑制指数 =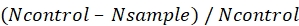 (1)
其中 N对照 和 N样本 分别为对照组和处理组中Q40::YFP聚集体的平均数量。
3. 多聚谷氨酰胺介导的神经毒性检测
- 测试样品对 C. elegans 的处理
- 为进行多聚谷氨酰胺(polyQ)神经毒性检测,将300–500条同步化的HA759 L1期幼虫转移至48孔板的每个孔中,每孔加入含OP50(OD570为0.7–0.8)和5 mg/mL黄芪多糖的S培养基500 µL,每种处理通常设三个重复孔。
- 用封口膜密封培养板,在15 °C、120 rpm条件下振荡培养3天23。
- 通过离心收集线虫,并用M9缓冲液洗涤3–5次。将线虫重悬于M9缓冲液中,用于后续神经元存活率和回避行为检测。
- 琼脂糖垫的制备
- 将2 g琼脂糖加入100 mL M9缓冲液(2%,w/v),在微波炉中加热至接近沸腾。
- 将0.5 mL熔化的琼脂糖滴加至置于两片2 mm厚玻璃板之间的1 mm厚显微镜载玻片中央。垂直覆盖另一张载玻片。待琼脂糖冷却凝固后,轻轻移去上层载玻片。
- ASH神经元存活率检测
- 在琼脂糖垫上滴加一滴20 mM叠氮化钠。将15–20条HA759线虫转移至液滴中以固定其活动。
- 轻轻盖上盖玻片,将载玻片置于配备数码相机的荧光显微镜下。选择40倍物镜和FITC滤光片,检测线虫头部区域表达GFP的ASH神经元。
- 每组随机选取超过50条线虫,统计头部区域具有GFP标记的双侧ASH神经元的线虫数量7。使用下方公式(2)计算ASH神经元的存活率。
神经元存活率(%)=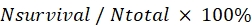 (2)
其中Nsurvival和Ntotal分别为每组中具有GFP阳性ASH神经元的线虫数量和检测的总线虫数量。
- 渗透压回避检测
- 在无食物的NGM培养板(9 cm)中央划一条8 M甘油(约30 µL)线,将培养板分为正常区(N)和陷阱区(T)。在距甘油线约1 cm处再划一条200 mM叠氮化钠(约20 µL)线,用于麻痹穿过甘油屏障进入T区的线虫。
- 每组在三个重复培养板的N区各转移约200条线虫。在T区(距培养皿边缘1 cm处)滴加一滴1%丁二酮(约2 µL)以吸引线虫。立即盖上培养皿盖,在23 °C下孵育90分钟。
- 在显微镜下计数N区和T区的线虫数量。使用公式(3)20计算回避指数。
回避指数 =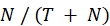 (3)
其中N和T分别为N区和T区的线虫数量。数据以三次重复的均值±标准差(SD)表示,代表>3次独立实验的结果。 - 采用非配对双尾t-检验比较黄芪多糖组与对照组的数据。
4. 创建雷达图
- 打开绘图软件,将不同实验的数据导入新工作表中。将 A(X) 列作为径向轴的标题,A(Y) 列作为对照组的数据,B(Y) 列作为处理组的数据。
- 选择所需数据并点击 绘图 | 专业类型:雷达图 单击工具栏菜单中的按钮以生成雷达图。
- 双击径向轴并进行调整 比例尺,蜱虫,以及 刻度标签 根据需要调整每个轴的参数。
- 点击 文件 在菜单中选择 导出图表 将图像另存为 *.tiff.
注意:软件网站在 材料表 提供有关创建雷达图的详细帮助文档和视频教程。
结果
转基因多聚谷氨酰胺(polyQ)品系 AM141 在其体壁肌细胞中强烈表达 Q40::YFP 融合蛋白7,21。如图1A所示,该品系的离散聚集表型可通过本文所述的自动成像与分析方案进行识别。AM141 线虫中 Q40::YFP 聚集体的数量自 L1 阶段起 48 小时后显著增加。然而,这一增加趋势可被黄芪多糖(astragalan)处理所抑制(图1B),表明黄芪多糖对 polyQ 聚集具有保护潜力。通常可选择 72 小时或 96 小时作为观察时间点,用于计数 Q40::YFP 聚集体,以评估待测样品的抗聚集效应。在本方案中,AM141 线虫的荧光聚集体通过自动成像系统进行捕获,尽管也可使用荧光显微镜完成此目的7。
的 秀丽隐杆线虫 菌株 HA759 在其感觉 ASH 神经元中同时表达 GFP 标记和 Htn-Q150,导致这些神经元进行性丧失和功能障碍11,13将线虫置于2%琼脂糖垫上以检测ASH神经元的存活性图2A)并在显微镜下观察以检测 ASH 神经元。线虫头部区域双侧 ASH 神经元中绿色荧光蛋白(GFP)荧光信号的缺失表明 ASH 神经元死亡(图2B)。HA759线虫中ASH神经元的存活率 <对照组在孵育后为40% 15 °C 3天7,20,表明多聚谷氨酰胺介导的神经毒性。因此,该ASH神经元存活率检测可用于直观评估待测化合物对神经元存活的影响 秀丽隐杆线虫 神经元,例如黄芪多糖具有神经保护作用,但其他成分则无此效果 多孔菌 糖链(图 2C).
由于行为功能障碍是多聚谷氨酰胺(polyQ)疾病的主要临床症状,因此利用大量HA759线虫进行的化学感受回避实验(图3A)被设计为一种简化的方法,用于检测待测样品对由polyQ聚集介导的ASH神经元功能丧失的影响。如图3B所示,未处理对照组中HA759线虫的回避指数约为0.5,与先前报道的结果相似14。有趣的是,在15 °C下用黄芪多糖处理3天的线虫,其回避指数升高至>0.6(图3B),表明该多糖对行为功能障碍具有神经保护作用。
为了评估受试化合物的整体神经保护能力,可将上述各项实验的数据进行整合,并以多种表型的雷达图形式呈现,从而为多聚谷氨酰胺(polyQ)相关表型提供一个统一的特征,便于直接比较和直观观察。如图4所示,黄芪多糖处理组三角形的面积大于对照组,表明该多糖具有抗多聚谷氨酰胺的作用效应。
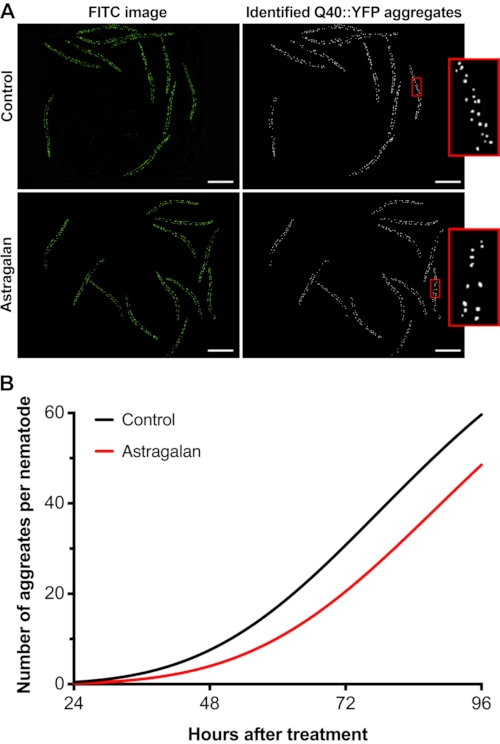
图1:黄芪多糖对polyQ40聚集的影响。(A)AM141线虫在20 °C条件下经黄芪多糖处理或未处理96小时后的代表性图像。荧光图像(左侧面板)来自384孔板,使用高内涵成像与分析系统获取;Q40::YFP聚集物(右侧面板)由系统自动识别。插图为线虫图像的放大视图,显示polyQ聚集物。比例尺 = 500 µm。(B)Q40::YFP聚集物的定量分析。使用高内涵成像系统,在20 °C条件下经黄芪多糖处理或未处理后,连续4天每24小时监测AM141线虫中Q40::YFP聚集物的数量。每组约100–150条线虫在每个时间点被评分统计聚集物数量。结果以每条线虫平均聚集物数量拟合的曲线表示。缩写:polyQ = 多聚谷氨酰胺;YFP = 黄色荧光蛋白;FITC = 异硫氰酸荧光素。请点击此处查看该图的放大版本。
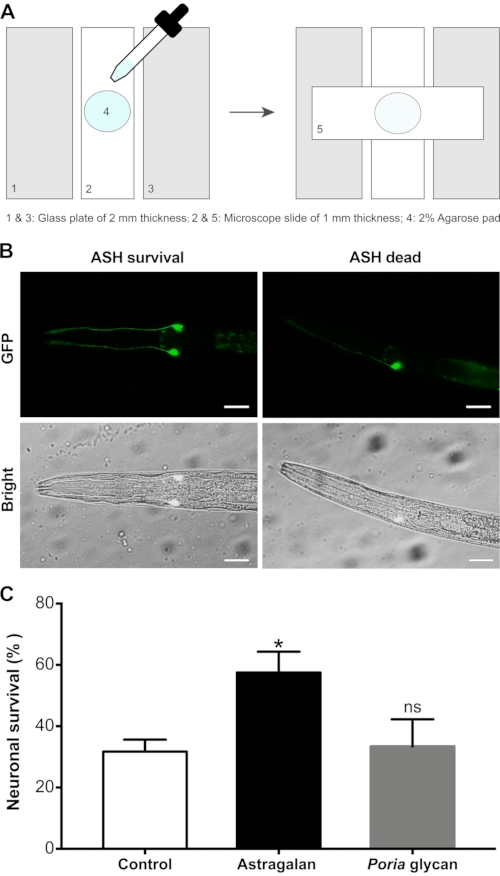
图2:黄芪多糖对Htn-Q150介导的ASH神经元死亡的影响。 (A)琼脂糖载玻片制备示意图。(B)经或未经黄芪多糖处理的HA759线虫在L1期起于15 °C培养3天后,使用400倍放大倍数拍摄的ASH神经元存活与死亡的代表性显微图像。比例尺 = 20 µm。(C)黄芪多糖对多聚谷氨酰胺(polyQ)介导的ASH神经元死亡的保护作用。Poria多糖(来自茯苓Poria cocos的一种多糖)作为对照。数据以三次重复实验的均值±标准差表示,且代表三次以上独立实验的结果。采用非配对双尾t检验比较对照组与黄芪多糖组及Poria多糖组的数据。*p < 0.05;ns = 无显著差异。缩写:GFP = green fluorescent protein(绿色荧光蛋白)。请点击此处查看该图的高清版本。
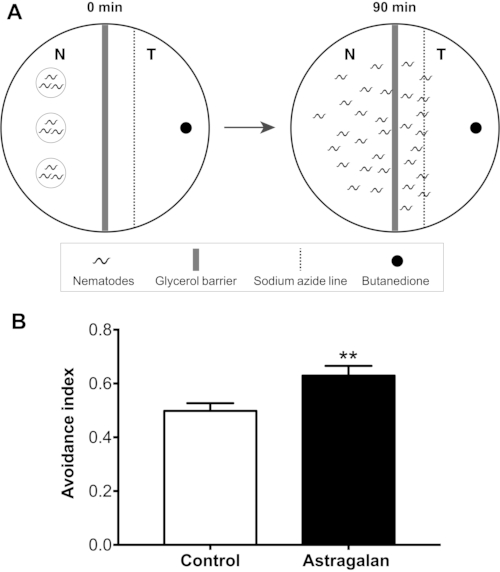
图3:阿斯特拉甘对Htn-Q150介导的行为功能障碍的影响。(A)回避实验平板的示意图。(B)回避实验的代表性结果。回避指数定义为位于N区的线虫数量与平板上总线虫数量的比值。结果以三次重复实验的均值±标准差表示,且代表三次独立实验。回避指数的统计学分析采用非配对双尾t-检验。**p < 0.01。 请点击此处查看该图的放大版本。
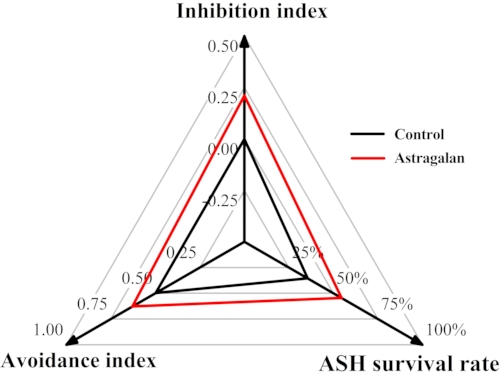
图4:黄芪多糖的整体神经保护能力。 来自三种不同实验的数据被导入OriginPro软件生成雷达图,用于描述黄芪多糖对多聚谷氨酰胺(polyQ)介导的多种表型的总体效应。请点击此处查看该图的放大版本。
表1. 请点击此处下载该表格。
讨论
由于多聚谷氨酰胺(polyQ)聚集和蛋白毒性是亨廷顿病等polyQ疾病的重要特征13,我们建议采用多种模型和方法全面评估受试化合物的神经保护能力,包括在AM141菌株中进行polyQ聚集检测、在HA759菌株中进行ASH神经元存活检测,以及在HA759菌株中进行化学感受回避检测。本文所介绍的实验方案已被用于评估受试样品对polyQ毒性的神经保护作用,包括对polyQ聚集及其相关神经毒性的抑制作用7,14,15,16,17,19,20,表明这些方法在亨廷顿病及其他polyQ疾病药物研发中具有重要应用潜力。
本文介绍了一种用于多聚谷氨酰胺(polyQ)聚集实验中检测和计数polyQ聚集体的自动化成像与分析系统。该方法具有高通量、高效省时的优点,可显著减少人工计数过程中繁琐且易产生主观误差的问题。对于整块384孔板,完成图像采集与分析仅需<1小时。然而,本实验室此前在未使用自动化成像设备的情况下,采用传统显微镜成像方法也获得了类似的结果7。
在典型的Q40::YFP聚集实验中,建议每个时间点每种处理使用100–150条线虫,可将线虫分至多个重复孔中,每孔含10–15条。但需注意,L1幼虫可能对某些处理或较高浓度更为敏感。因此,测试化合物的高剂量可能会抑制其生长,导致因生长缓慢而延迟多聚谷氨酰胺(polyQ)聚集,从而产生假阳性结果。通常可通过进行食物清除实验来解决此问题,并确定测试化合物的合适浓度范围23。
在多聚谷氨酰胺(polyQ)神经毒性实验中使用的HA759转基因线虫共同表达OSM-10::GFP和Htn-Q150,从而能够明确识别双侧ASH感觉神经元。因此,ASH神经元的存活情况通过GFP表达的有无来评估;通常情况下,对照组线虫中约有40–75%的ASH神经元发生死亡23,24。有趣的是,HA759品系中pqe-1(多聚谷氨酰胺增强因子-1)基因突变背景(pqe-1;Htn-Q150)会加速polyQ介导的毒性,导致大多数ASH神经元在三天内死亡,即使在15 °C条件下亦如此。因此,如先前报道所述,该品系在神经元存活实验中需在15 °C下培养23,24。
在HA759线虫中,ASH神经元的功能丧失可能发生在细胞死亡和蛋白质聚集体被检测到之前13;因此,渗透回避行为实验对于评估多聚谷氨酰胺(polyQ)介导的毒性至关重要。为了尽量减少低温下活动性较低的HA759线虫对行为实验的潜在影响,回避实验所用培养板应置于湿度控制的23 °C培养箱中孵育,而不是像该品系神经元存活实验那样在15 °C进行。此外,已有报道指出,Htn-Q150/OSM-10::GFP转基因线虫对鼻部触碰高度敏感;因此,另一种检测ASH神经元功能的方法是鼻触实验13。
披露
作者声明不存在任何竞争性经济利益。
致谢
感谢黄实验室的前成员,他们帮助开发并改进了本文所用的实验方案,特别是 Hanrui Zhang、Lingyun Xiao 和 Yanxia Xiang。本研究得到了“111 计划”(项目编号 B17018)和河北省自然科学基金(项目编号 H2020207002)的资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| C. elegans 品系 | |||
| AM141 rmIs133 [unc-54p::Q40::YFP] | Caenorhabditis Genetics Center (CGC) | https://cgc.umn.edu/strain/AM141 | |
| HA759 rtIs11 [osm-10p::GFP + osm-10p::HtnQ150 + dpy-20(+)] | Caenorhabditis Genetics Center (CGC) | https://cgc.umn.edu/strain/HA759 | |
| E. coli 品系 | |||
| NA22 | Caenorhabditis Genetics Center (CGC) | https://cgc.umn.edu/strain/NA22 | |
| OP50 | Caenorhabditis Genetics Center (CGC) | https://cgc.umn.edu/strain/OP50 | |
| 试剂 | |||
| 琼脂 | 上海伊凯尔生物科技有限公司 | EQ1001-500G | https://www.ekear.com |
| 琼脂糖 | Biowest | 111860 | |
| 丁二酮 | 国药集团化学试剂有限公司 | 80042427 | https://www.reagent.com.cn/goodsDetail/d027c00e64c9404d9aa41391fbb59 5d0 |
| 胆固醇 | Sigma-Aldrich | C8667 | https://www.sigmaaldrich.cn/CN/zh/product/sigma/c8667?context=product |
| 甘油 | 阿拉丁有限公司 | G116203 | https://www.aladdin-e.com/zh_cn/g116203.html |
| 蛋白胨 | 广东环凯微生物科技有限公司 | 050170B | https://www.huankai.com/show/21074.html |
| 叠氮化钠 | 国药集团化学试剂有限公司 | 80115560 | https://www.reagent.com.cn/goodsDetail/5e981aa807664e26af 551e96ff5f07cd |
| 氢氧化钠 | 国药集团化学试剂有限公司 | 10019718 | https://www.reagent.com.cn/goodsDetail/450dfdb1132a4d8a817 d3d8c68ec25e6 |
| 次氯酸钠溶液 | 广州化学试剂厂 | 7681-52-9 | http://www.chemicalreagent.com/product/DetailProduct.aspx?id=125 |
| 胰蛋白胨 | Oxoid Ltd. | LP0042B | https://www.thermofisher.cn/order/catalog/product/LP0042B#/LP0042B |
| 酵母提取物 | Oxoid Ltd. | LP0021B | https://www.thermofisher.cn/order/catalog/product/LP0021B#/LP0021B |
| 设备 | |||
| 384孔细胞培养板 | 巢生科技有限公司 | 761001 | https://www.cell-nest.com/page94?_l=en&product_id=85 |
| 48孔细胞培养板 | 巢生科技有限公司 | 748001 | https://www.cell-nest.com/page94?_l=en&product_id=85 |
| 90 mm 培养皿 | 生工生物工程(上海)股份有限公司 | F611003 | https://www.sangon.com/productDetail?productInfo.code=F611003 |
| 高压灭菌器 | Panasonic | MLS-3781L-PC | |
| 体视显微镜 | 重庆光学仪器有限公司 | ZSA0745 | http://www.coicuop.com/plus/view.php?aid=64 |
| 荧光显微镜 | 广州麦可罗非光学科技有限公司 | Mshot MF31-LED | https://www.mshot.com/article/442.html |
| 高内涵成像系统 | Molecular Devices | ImageXpress | https://www.moleculardevices.com/products/cellular-imaging-systems#High-Content-Imaging |
| 微量离心机 | 基康公司 | GENESPEED X1 | https://www.genecompany.com/index.php/Home/Goods/goodsdetails/gid/189.html |
| 显微镜数字相机 | 广州麦可罗非光学科技有限公司 | MS60 | https://www.mshot.com/article/677.html |
| 微波炉 | 美的集团股份有限公司 | M1-211A | https://www.midea.cn/10000/10000000001 00511264425.html |
| Parafilm M | Sigma-Aldrich | P7793-1EA | https://www.sigmaaldrich.cn/CN/en/product/sigma/p7793?context=product |
| 摇床 | 智城公司 | ZWY-2102C | http://www.zhicheng.net/Product/0865291356.html |
| 软件 | |||
| 图像采集与分析软件 | Molecular Devices | MetaXpress | https://www.moleculardevices.com/products/cellular-imaging-systems/acquisition-and-analysis-software/metaxpress |
| OriginPro | OriginLab Corp. | 版本 9.8.5.204 | 1. 软件介绍:https://www.originlab.com/index.aspx?go=Products/Origin 2. 雷达图创建指南:https://www.originlab.com/doc/Origin-Help/RadarChart-Graph 3. 雷达图视频教程:https://www.originlab.com/videos/details.aspx?pid=1813 |
参考文献
- The Huntington's Disease Collaborative Research Group. A novel gene containing a trinucleotide repeat that is expanded and unstable on Huntington's disease chromosomes. Cell. 72 (6), 971-983 (1993).
- Bauer, P. O., et al. Harnessing chaperone-mediated autophagy for the selective degradation of mutant huntingtin protein. Nature Biotechnology. 28 (3), 256-263 (2010).
- Lieberman, A. P., Shakkottai, V. G., Albin, R. L. Polyglutamine repeats in neurodegenerative diseases. Annual Review of Pathology. 14, 1-27 (2019).
- Sakahira, H., Breuer, P., Hayer-Hartl, M. K., Hartl, F. U. Molecular chaperones as modulators of polyglutamine protein aggregation and toxicity. Proceedings of the National Academy of Sciences of the United States of America. 99, Suppl 4 16412-16418 (2002).
- Bäuerlein, F., Fernández-Busnadiego, R., Baumeister, W. Investigating the structure of neurotoxic protein aggregates inside cells. Trends in Cell Biology. 30 (12), 951-966 (2020).
- Tu, Z., Yang, W., Yan, S., Guo, X., Li, X. J. CRISPR/Cas9: a powerful genetic engineering tool for establishing large animal models of neurodegenerative diseases. Molecular Neurodegeneration. 10, 35(2015).
- Zhang, H., et al. Inhibition of polyglutamine-mediated proteotoxicity by Astragalus membranaceus polysaccharide through the DAF-16/FOXO transcription factor in Caenorhabditis elegans. Biochemical Journal. 441 (1), 417-424 (2012).
- Koyuncu, S., et al. The ubiquitin ligase UBR5 suppresses proteostasis collapse in pluripotent stem cells from Huntington's disease patients. Nature Communications. 9 (1), 2886(2018).
- Dimitriadi, M., Hart, A. C. Neurodegenerative disorders: insights from the nematode Caenorhabditis elegans. Neurobiology of Disease. 40 (1), 4-11 (2010).
- Li, J., Le, W. Modeling neurodegenerative diseases in Caenorhabditis elegans. Experimental Neurology. 250, 94-103 (2013).
- Wang, Q., et al. Caenorhabditis elegans in Chinese medicinal studies: making the case for aging and neurodegeneration. Rejuvenation Research. 17 (2), 205-208 (2014).
- Hassan, W. M., Dostal, V., Huemann, B. N., Yerg, J. E., Link, C. D. Identifying Aβ-specific pathogenic mechanisms using a nematode model of Alzheimer's disease. Neurobiology of Aging. 36 (2), 857-866 (2015).
- Faber, P. W., Alter, J. R., MacDonald, M. E., Hart, A. C. Polyglutamine-mediated dysfunction and apoptotic death of a Caenorhabditis elegans sensory neuron. Proceedings of the National Academy of Sciences of the United States of America. 96 (1), 179-184 (1999).
- Zhang, J., et al. Antioxidant and neuroprotective effects of Dictyophora indusiata polysaccharide in Caenorhabditis elegans. Journal of Ethnopharmacology. 192, 413-422 (2016).
- Xiang, Y., et al. Epimedium polysaccharide alleviates polyglutamine-induced neurotoxicity in Caenorhabditis elegans by reducing oxidative stress. Rejuvenation Research. 20 (1), 32-41 (2017).
- Zhong, G., et al. Physicochemical and geroprotective comparison of Nostoc sphaeroides polysaccharides across colony growth stages and with derived oligosaccharides. Journal of Applied Phycology. 33 (2), 939-952 (2021).
- Xiao, L., et al. Salidroside protects Caenorhabditis elegans neurons from polyglutamine-mediated toxicity by reducing oxidative stress. Molecules. 19 (6), 7757-7769 (2014).
- Cordeiro, L. M., et al. Rutin protects Huntington's disease through the insulin/IGF1 (IIS) signaling pathway and autophagy activity: Study in Caenorhabditis elegans model. Food and Chemical Toxicology. 141, 111323(2020).
- Yang, X., et al. The neuroprotective and lifespan-extension activities of Damnacanthus officinarum extracts in Caenorhabditis elegans. Journal of Ethnopharmacology. 141 (1), 41-47 (2012).
- Xiao, L., et al. The traditional formula Kai-Xin-San alleviates polyglutamine-mediated neurotoxicity by modulating proteostasis network in Caenorhabditis elegans. Rejuvenation Research. 23 (3), 207-216 (2020).
- Morley, J. F., Brignull, H. R., Weyers, J. J., Morimoto, R. I. The threshold for polyglutamine-expansion protein aggregation and cellular toxicity is dynamic and influenced by aging in Caenorhabditis elegans. Proceedings of the National Academy of Sciences of the United States of America. 99 (16), 10417-10422 (2002).
- Gidalevitz, T., Ben-Zvi, A., Ho, K. H., Brignull, H. R., Morimoto, R. I. Progressive disruption of cellular protein folding in models of polyglutamine diseases. Science. 311 (5766), 1471-1474 (2006).
- Voisine, C., et al. Identification of potential therapeutic drugs for huntington's disease using Caenorhabditis elegans. PLoS One. 2 (6), 504(2007).
- Faber, P. W., Voisine, C., King, D. C., Bates, E. A., Hart, A. C. Glutamine/proline-rich PQE-1 proteins protect Caenorhabditis elegans neurons from huntingtin polyglutamine neurotoxicity. Proceedings of the National Academy of Sciences of the United States of America. 99 (26), 17131-17136 (2002).
重印与许可
