在事件场景中,此优化的“日常记忆”方案旨在采用稳定的家庭基点,以促进动物使用以外部环境为参照的异位空间表征。该动物模型为未来利用行为学与生理学技术研究事件记忆的形成与保持提供了一个有效的实验平台。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
方法文章
一种在事件场景中模拟啮齿类动物“日常记忆”的行为任务,以促进其以环境为中心表征的形成
* These authors contributed equally
本文内容
摘要
摘要
事件场地为研究学习与记忆提供了理想的平台。本文所述的趋利性日常记忆任务为研究啮齿类动物的情节性记忆和空间记忆提供了一种可靠的实验方案,该方案特别有助于促进以环境为中心(allocentric)的记忆表征。在编码阶段,大鼠被训练去寻找并挖掘食物;经过一段时间延迟后,再让大鼠选择在正确位置寻找奖励用的食物颗粒。本方案中有两个关键要素可促进大鼠采用以环境为中心的空间策略:1)大鼠在每次实验内及实验间均从不同的起始位置出发;2)设置一个稳定的“家基地”,大鼠必须将食物带回该处进食。通过这些改进,我们有效地促使啮齿类动物在执行任务时依赖以环境为中心的空间表征。此外,该任务为被试内实验设计提供了良好的范式,允许实验者操控不同条件以减少个体差异。结合行为学与生理学技术,该啮齿类动物模型为未来关于记忆形成与保持的研究提供了一个有效的实验平台。
引言
为了研究学习与记忆的神经生物学机制,需要采用侵入性技术,而这些技术通常在人类中难以实施。因此,一个多世纪以来,研究人员为实验动物设计了各种行为学实验方案,以模拟人类记忆的不同形式。任务与实验装置的设计和选择,对于成功建立有效的人类记忆模型至关重要。目前已开发出多种复杂程度各异的实验范式,从简单的经典条件反射和操作式条件反射实验1,2,3,到各类迷宫实验,如T型迷宫4、放射臂迷宫5、Barnes迷宫6、水迷宫7以及奶酪板迷宫8。然而,尽管这些任务能够反映联想学习和空间导航的某些方面,却无法明确用于研究短暂事件的记忆表征(即类似情节性记忆)。此外,尽管新物体识别9及其衍生的自发性记忆任务(如物体-位置记忆10)为识别记忆的研究提供了重要见解,但它们并不能检测对事件的明确回忆。为满足这一研究需求,研究者专门开发了事件场(event arena),其应用使得长时程的成对联想记忆编码与回忆11,12,13,以及在熟悉环境中离散事件的编码与回忆研究成为可能14,15,16,17,18。后者正是本文的重点内容。
事件场地是一个大型方形开阔区域,用于啮齿类动物的行为实验。该场地的尺寸可根据需要调整,以适应大鼠或小鼠,且能够促使啮齿类动物进入并进行探索。在场地内进行的典型实验事件包括在特定位置的沙井中寻找并获取食物。该事件场地专为这类趋利性任务设计,训练大鼠或小鼠搜寻、发现并挖掘食物。实验利用了它们将食物搬运回黑暗环境的自然习性,此处的黑暗环境位于场地旁边,动物可在其中进食。经过简单的挖掘取食训练后,啮齿类动物能够自然地完成任务,在编码试验以及随后的回忆选择试验中表现良好,回忆试验与编码试验之间有短暂的30分钟延迟。在选择试验中,提供多个沙井(即挖掘位置),但仅有一个沙井有食物奖励。
在事件区域中可以开展多种任务(例如,空间记忆、类似情景记忆和成对联想学习)。鉴于人们对建立有效的情景记忆模型的兴趣,本研究开发了一种实验方案,其中食物可获取的位置每天都会改变。在此任务中,啮齿类动物需要记住最近一次在事件区域中挖掘并成功获取食物奖励事件发生的位置。以下方案包括一个编码试验,大鼠每天在新的位置寻找沙井,经过一段延迟后,进行回忆选择试验,在该试验中,最近编码的沙井位置会提供食物奖励,而位于其他不同位置的替代沙井中则不含可获取的食物。记住前一天食物所在的位置并无帮助:正确的沙井位置必须每天重新编码并至少在一段时间内记住。因此,我们引入了“日常记忆”这一术语,以描述本任务所模拟的记忆形式,这种记忆是人类日常生活中经常使用的。人类日常记忆的一个例子是记住自己在购物中心停车的位置。图1A)或把眼镜放在家里的某个位置。在本方案中,所有 arena 内和 arena 外的线索均保持稳定,正如我们日常生活环境(例如家庭、办公室、停车场等)中的情况一样。因此,啮齿类动物必须记住在熟悉环境中最近发生某事的位置图1B)。该任务类似于但优于水迷宫中的延时位置匹配(DMP)任务。19作为一种具有吸引力的任务,它利用了啮齿类动物觅食的自然行为20,而不是出于逃离水的意愿。然而,与水迷宫实验中的情况相同7,没有局部线索可用来区分正确与错误的位置;动物必须在不同的记忆延迟时长后,利用回忆而非识别来确定正确的沙井位置。

图 1:日常记忆。 (A) 人类的日常记忆。示意图显示一辆绿色汽车停放在停车场内。经过一段时间延迟后,驾驶员试图回忆她确切的停车位置。(B) 动物的日常记忆。示意图显示一只大鼠在事件场地内的某个位置挖掘并从沙井中取出一粒食饵。经过一段时间延迟后,给予大鼠一次选择试验,其中包含多个错误的沙井(灰色)和一个正确的沙井(绿色)。请点击此处查看该图的放大版本。
事件竞技场已被成功应用于“日常记忆”的研究。这些记忆是每天自动编码并存储在长时记忆中的,但通常在相对较短的时间后就会被遗忘。Bast 等人14展示了单调的延迟依赖性事件记忆,即在短时间间隔后记忆效果极佳,而在24小时后则降至随机水平。然而,记忆的保持可以通过编码后的新颖性刺激,或通过多次编码试验并延长试验间隔时间而得到有效增强15,17。
该实验场地具有多功能性且对动物的应激较小;实验过程中不使用任何厌恶刺激。场地的尺寸以及可容纳的任务类型均可根据大鼠14,15和小鼠16的需求进行调整。此外,由于该任务在陆地上进行,因此适用于生理信号记录和钙成像研究,这一点不同于水迷宫21。同时,根据“3R原则”(减少、优化、替代),采用该实验场地的研究可在获得足够统计效力的同时减少实验动物的使用数量,因为可采用受试者内实验设计(即每只动物自身作为药理学干预、光遗传学刺激等的对照),且无需依赖厌恶刺激来驱动动物完成任务。尽管初始训练所需时间较长、训练次数较多(相较于新物体识别等任务),但一旦动物达到稳定且渐近的任务表现水平,即可在少量追加训练的间隔中穿插药物、溶剂对照或光遗传学刺激等干预措施17。此外,在该实验场地中,动物在完成任务时所依赖的空间表征性质等表征特征可直接接受实验操控。
表征问题涉及大鼠在记忆近期事件发生位置时所采用的心理框架18。它们是记住了食物所在的位置,还是仅仅记住了如何到达食物所在地?大鼠可在实验区域内利用以环境为中心的(类似地图的)或以自我为中心的(以身体为参照的)空间表征方式来完成趋利性任务18。然而,为了控制并识别每个实验对象在执行任务时所采用的空间策略,已有特定的训练方案能够选择性地促进仅使用其中一种空间表征方式。通常情况下,当大鼠将获得的食物奖励带回每日试验起始位置时,会采用以自我为中心的表征方式,这使其在往返过程中有多次机会记忆奖励位置。这种空间策略无论在每日起始位置发生变化或保持恒定时均可使用。相反,当要求大鼠将食物奖励运送至实验区域侧边一个固定的“家基”位置(该位置不同于每日变化的起始点)时,则倾向于采用以环境为中心的表征方式。相较于以自我为中心的策略,以环境为中心的表征方式在大脑存储能力方面具有多种优势。
本文介绍了以家基为中心的实验方案,该方案鼓励仅使用以环境为中心的空间表征。我们提供了该任务的代表性结果,清楚地展示了利用这种“日常记忆”的啮齿类动物模型在学习与记忆研究中的优势,并阐明了如何促进类似情景记忆的空间表征中以环境为中心的编码方式。
访问受限。请登录或开始试用以查看此内容。
方案
本文所述方法已获得爱丁堡大学伦理审查委员会批准,符合英国《1986年动物(科学程序)法》以及欧洲共同体理事会1986年11月24日指令(86/609/EEC)中关于实验动物饲养和用于科学实验的相关法律规定。
注意:以下方案的实验对象为 Lister-hooded 大鼠,但也可根据需要调整用于其他啮齿类品系。
1. 动物处理、饲养与食物控制
- 大鼠到达后,给予 1 周时间适应环境。在此期间,每天在笼内轻柔抚摸和搔抓大鼠进行日常抓握训练。待其适应后,开始每天将其抓起操作,持续约 5 分钟。
- 在大鼠到达时记录其体重,并每周每 2–3 天记录一次体重。调整其食物摄入量,使每只大鼠的体重逐步降低至自由进食体重的约 85%–90%;可通过自由进食大鼠的标准生长曲线估算该目标值。在整个实验过程中,维持大鼠体重处于该食物限制范围之内。
- 将大鼠饲养于 12 小时光照/12 小时黑暗的光周期环境中,并在光照阶段(上午 7 点至晚上 7 点)内开展所有实验。
2. 装置的设置
- 实验房间、控制房间与事件场地
- 实验房间与控制房间可以是一个被分隔成两部分的房间,或由帘子或门隔开的两个相邻房间,本实验需要这样的空间分隔。
注:这种分隔可防止实验人员在动物执行和学习这一复杂行为任务时对其产生影响或干扰。 - 将一个房间专门用于事件场地、静态环境线索及实验操作(即实验房间),另一个房间则供实验人员记录大鼠的行为表现(即控制房间)。
注:事件场地是一个方形的开放场区域,用于研究事件-位置关联(图2A)。“事件场地”这一名称源于该装置是一个“事件”发生的场所(即一个开放但受限制的空间),例如在沙井中挖掘埋藏的食物颗粒(图2B)17,18。为防止实验人员过度劳累和受伤(如腰部劳损),场地应高于地面约1米。 - 使用透明有机玻璃构建一个方形(160 cm × 160 cm)的场地。场地地面由7 × 7的网格组成,共49块可移动的白色有机玻璃板(每块20 cm × 20 cm;图2A、B)。额外制作五块带中央孔(直径6 cm)的板,用于在场地内固定沙井。这些改造板的位置根据每次实验阶段的沙井分布图确定。
注:五个沙井位置的布局在每次新阶段中均会改变(见步骤4.2)。 - 将事件场地放置在指定的实验房间内。设置场内线索:在场地内两个位置(第4行第2列和第4行第6列)放置两个具有不同触觉表面的显著标志物(例如,用胶水粘合的高尔夫球堆(30 cm(高)× 11 cm(宽)× 11 cm(长))和一个黑色水瓶(22 cm(高)× 9 cm(直径));图2C)。
- 在整个实验过程中保持场内线索所用物体及其位置不变,但每天用70%乙醇清洁一次。
- 设置三维场外线索:在实验房间中央的事件场地周围,沿其周边布置显著的标志物(例如,图案化球形灯笼(直径40 cm);红色星形灯笼(宽60 cm);蓝色灯笼(高70 cm × 宽35 cm))和图案(图2D)。
- 在整个实验过程中保持场外线索所用物体及其位置不变。
- 实验房间与控制房间可以是一个被分隔成两部分的房间,或由帘子或门隔开的两个相邻房间,本实验需要这样的空间分隔。
- 黑色箱体
- 为使动物能够进入场地,使用黑色有机玻璃制作四个相同的黑色箱体(每个箱体长30 cm,宽25 cm,高35 cm;图2E)。每个黑色箱体的一个长侧面上应安装一个遥控滑动门,以便实验人员控制大鼠进入场地的时机。
注:黑色有机玻璃使箱体内部保持黑暗,这是大鼠相较于明亮的开放场事件场地更偏好的环境。 - 将这四个黑色箱体分别置于场地四面墙的中点位置。这些黑色箱体将根据控制室内计算机接收的摄像头实时视频画面的顶部方向,以事件场地的四个方位(北(上)、东(右)、南(下)、西(左))进行标识。
- 允许大鼠从其中三个黑色箱体之一进入场地,该箱体称为起始箱(例如东、南、西;图2A,橙色矩形)。将剩余的一个黑色箱体(例如北;图2A,蓝色矩形)作为“家基”(home-base),大鼠将从中带回食物奖励(即颗粒)并在其中进食。
注:任一黑色箱体位置(即北、东、南、西)均可被指定为家基,但必须在整个实验过程中保持不变:其位置的稳定性对于成功促进异位空间表征至关重要。 - 在起始箱和家基中各放置两个小型透明平底井,分别用于盛水和食物颗粒(家基中的食物颗粒仅在习惯化阶段作为奖励使用),并在每个起始箱和家基中放入木屑。
- 为使动物能够进入场地,使用黑色有机玻璃制作四个相同的黑色箱体(每个箱体长30 cm,宽25 cm,高35 cm;图2E)。每个黑色箱体的一个长侧面上应安装一个遥控滑动门,以便实验人员控制大鼠进入场地的时机。
- 沙井
- 使用透明丙烯酸塑料制作沙井,内径(d)为6 cm,总深度(h)为6 cm,用于隐藏大鼠需挖掘获取的食物奖励(即定位、挖出并带回家基食用)。在距顶部4 cm处插入一个带孔的球形塑料碗。将沙井插入场地内的改造板中。
注:塑料碗形成一个可接触区域(6 cm(d)× 4 cm(h)),供大鼠获取奖励颗粒,以及一个不可接触区域(6 cm(d)× 2 cm(h)),大鼠无法进入(图3A、B)。 - 在编码和回忆选择试验的奖励沙井中,于可接触区域放置4颗0.5 g颗粒,不可接触区域放置8颗食物颗粒(图3C)。在非奖励沙井中,将12颗颗粒全部置于不可接触区域(图3C)。
注:奖励与非奖励沙井均总共含有12颗颗粒,并填充特制沙子以掩盖颗粒气味。 - 使用沙子与香料粉混合物(2.5 g香料粉/2.5 kg沙子)填充沙井,以掩盖食物颗粒散发的任何气味。每次实验开始时需新鲜配制沙/香料混合物(图3D)。
注:步骤2.3.2和2.3.3旨在掩盖编码和选择试验期间沙井可能散发的嗅觉线索。这将确保大鼠对正确沙井位置的搜索及其任务表现完全依赖于其对食物挖掘位置的记忆,而非来自奖励沙井的气味线索,从而避免暴露食物奖励的存在。 - 在探测试验中(用于测试大鼠对先前唯一获得奖励的沙井位置的记忆,即曾含有食物颗粒的沙井),将场地内所有五个沙井均设为非奖励状态(即可接触区域无食物颗粒),包括正确位置的沙井。
注:场地内所有沙井的不可接触区域均含有相同数量的颗粒(n = 12)。
- 使用透明丙烯酸塑料制作沙井,内径(d)为6 cm,总深度(h)为6 cm,用于隐藏大鼠需挖掘获取的食物奖励(即定位、挖出并带回家基食用)。在距顶部4 cm处插入一个带孔的球形塑料碗。将沙井插入场地内的改造板中。
- 整体设置与软件
- 使用壁挂式卤素灯将实验房间的光照维持在中等亮度水平(115–125 lux),并保持室温在19至23 °C之间。
- 在实验房间的事件场地正上方安装一个电荷耦合器件(CCD)摄像头,用于记录和监控大鼠的运动与行为(图4A)。摄像头将实时画面传输至相邻的控制房间,供定制视频采集系统和定制计算机软件(由爱丁堡大学P. A. Spooner开发)使用。
- 使用定制计算机软件监控大鼠的运动(图4B)。该程序控制每个黑色箱体的门,使实验人员可在相邻的控制房间内远程管理大鼠进出场地的权限。记录每只动物在选择试验和探测试验中定位正确沙井的潜伏期,以及在各沙井挖掘所花费的时间。
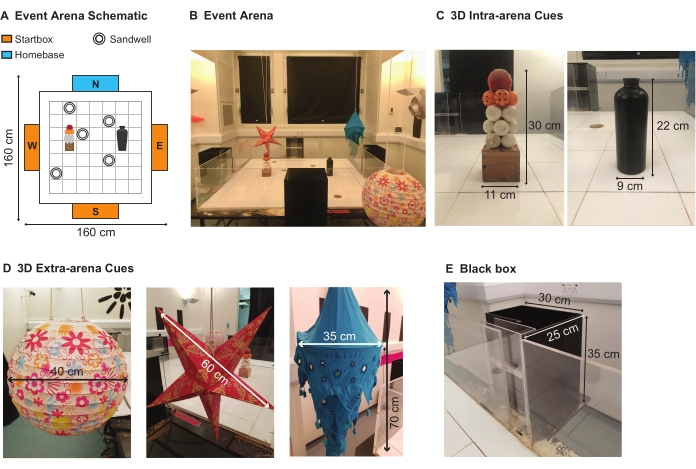
图 2:事件 arena 及其线索。 (A) 事件 arena 的示意图(缩写:N = 北,E = 东,S = 南,W = 西)。(B) 带有 arena 内和 arena 外三维线索的事件 arena。(C) 两个 arena 内的三维线索(从左至右):高尔夫球堆叠体和圆柱形黑色瓶子。(D) 多个 arena 外的三维线索(从左至右):带图案的球形灯笼;红色星星灯笼;蓝色灯笼。(E) 四个黑色箱体中的每一个均位于事件 arena 各侧墙的中点位置。其中三个黑色箱体作为起始箱,为每次试验开始时大鼠提供起始位置;第四个黑色箱体为家园基地,大鼠在此消耗从 arena 中获取的食物奖励。请点击此处查看该图的放大版本。
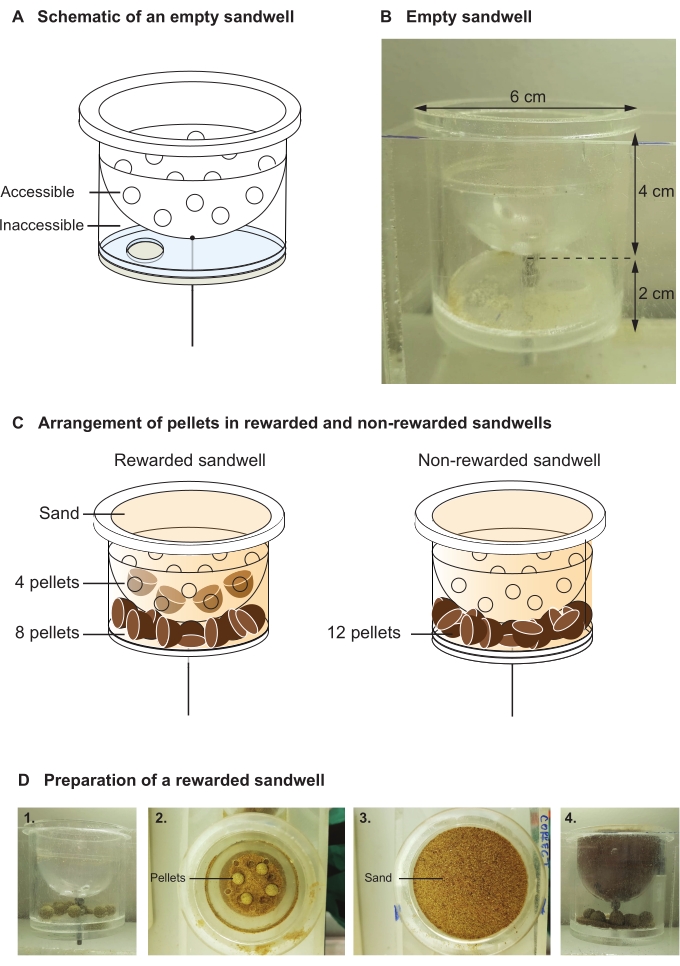
图3:沙井。 (A) 空沙井示意图,标示出可进入区域和不可进入区域。(B) 含有可进入区域和不可进入区域的空沙井。(C) 示意图展示有奖励(左)和无奖励(右)沙井中的颗粒排列方式。有奖励和无奖励的沙井均共含有12个颗粒,并填充了特殊制备的沙子,以掩盖颗粒在沙井中的位置。(D) 一系列照片展示有奖励沙井的制备过程,包括将颗粒正确放置于可进入区域的步骤(步骤1-4)。请点击此处查看该图的放大版本。
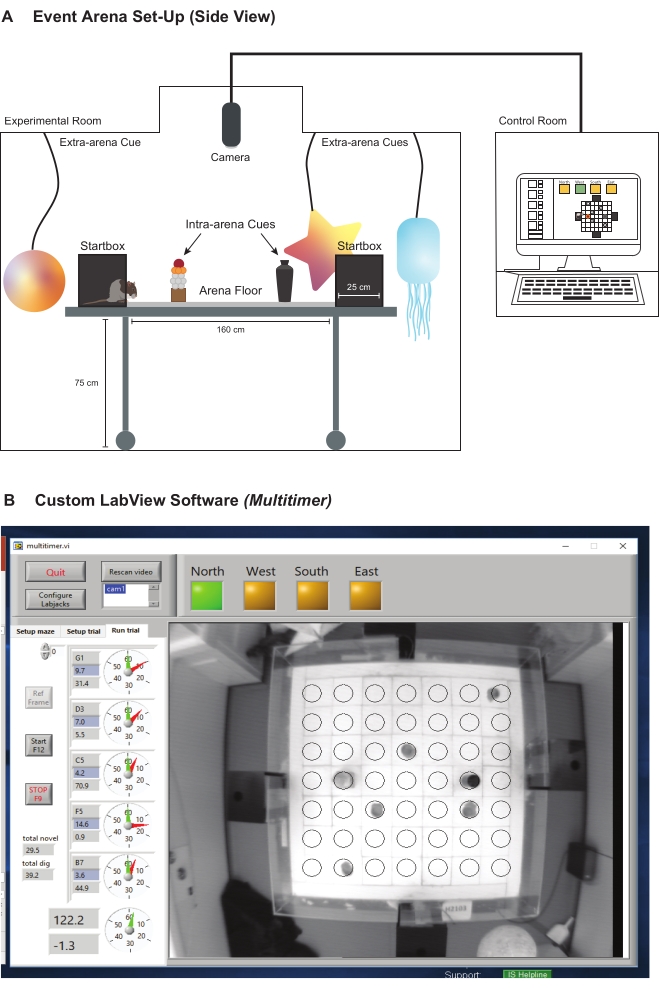
图4:事件竞技场的实验装置示意图。(A)实验房间与控制房间的实验装置示意图。(B)通过定制计算机软件查看实验房间实时画面的截图。该定制计算机软件允许实验人员远程控制起始箱门,并提供其他测量参数。请点击此处查看此图的高清版本。
3. 习惯化方案
注意:在适应期,大鼠被训练用于寻找沙井、挖掘以获取食物奖励,并探索事件发生区域。
- 学习挖掘以获取食物奖励
- 在单个笼子中放置一个装有沙子的小容器。在第一次训练(即 H1)时,在沙子表面下方放置三颗 0.5 g 的食物颗粒,并在沙子表面放置一颗。此后,将全部四颗食物颗粒均埋入沙子下方(图5)。
- 将每只大鼠放入带有沙井的单独笼子中,每只大鼠使用前需更换新的沙井。让大鼠留在笼内,直至其挖掘并成功从沙井中取出全部四颗食物颗粒。
- 适应性训练第1次
- 将一只大鼠放入其中一个起始箱(例如,南方)中,持续 30 秒,并在基地箱(例如,北方)中专用于放置食物的小型平底井中放入一颗 0.5 g 的食物颗粒。放置的食物颗粒作为奖励,促使大鼠前往基地箱进食。
- 打开起始箱门(例如,南方)。当大鼠离开起始箱、进入实验区域并开始探索这一新环境时,关闭起始箱门。
- 如果大鼠在 5 分钟内未离开起始箱,则采用以下两种方式之一进行干预。可将画笔置于起始箱门外侧稍远处以吸引大鼠进入实验区。当大鼠表现出兴趣后,将画笔进一步移入实验区,引导大鼠跟随。当大鼠进入实验区并远离起始箱门至安全距离时,关闭起始箱门。
- 或者,将大鼠从起始箱中取出,关闭起始箱门,然后将大鼠直接放置在起始箱门外侧的实验区内,即其原本应进入的位置。若某只大鼠缺乏动机且任务表现不佳(例如,无法自主离开起始箱、挖掘效率低下等),应检查该大鼠的体重,并计算其自由摄食体重百分比(%)。
注:若自由摄食体重百分比远高于 85%,表明大鼠可能并不饥饿;此时,可能需要进一步限制其每日总食物供给量(g)。 - 当大鼠在实验区内探索 10 分钟后,打开北方黑箱门(即基地箱)。若门开启后 5 分钟内大鼠仍未进入,将其从实验区取出,关闭北方黑箱门,并将大鼠放入基地箱内。
- 待大鼠吃完在训练开始时放置于基地箱内的食物颗粒后,将其送回其居住笼中。
- 适应性训练第2次
- 在实验区域内放置一个沙井,将全部四颗食物颗粒(0.5 g/颗)埋入沙子下方。此后每次训练均需更换该奖励沙井的位置。
注:由于食物颗粒较大(0.5 g),大鼠倾向于将其搬运至自认为安全的环境(即黑暗环境)中进食22。 - 在选定的起始箱(即东方)中专用于放置食物的平底井内放入一颗提示颗粒,随后放入一只大鼠。
- 当大鼠吃完提示颗粒(约 45 秒后),打开起始箱门(例如,东方)。
- 当大鼠进入实验区并远离起始箱门至安全距离时,关闭起始箱门。若大鼠未主动离开起始箱,请参考步骤 3.2.3–3.2.4。
- 让大鼠在沙井中搜寻第一颗食物颗粒。为成功获取食物奖励,它必须在实验区内唯一存在的沙井中进行挖掘。
- 当大鼠取出第一颗食物颗粒后,打开基地箱门(即北方)。大鼠应随即寻找并进入基地箱以进食奖励。若大鼠在实验区内开始进食,应轻柔引导其返回基地箱进食。
注:此步骤至关重要,必须鼓励每只大鼠在基地箱内进食;若缺乏适当训练,它们倾向于返回进入实验区的起始箱中进食。 - 当大鼠在基地箱内吃完第一颗食物颗粒后,允许其离开基地箱并重新进入实验区以获取第二颗食物颗粒。
- 当大鼠取出第二颗食物颗粒后,让其再次寻找基地箱以进食奖励。当大鼠进入基地箱后,关闭北方黑箱门。
- 当大鼠在基地箱内吃完第二颗食物颗粒后,轻柔地将其从基地箱中取出,并送回其居住笼中。
- 在实验区域内放置一个沙井,将全部四颗食物颗粒(0.5 g/颗)埋入沙子下方。此后每次训练均需更换该奖励沙井的位置。
- 第3–7次训练
- 重复适应性训练第2次(步骤 3.3.1–3.3.9)共五次,每次训练中逐渐加深沙井内食物颗粒的埋藏深度(图5)。在适应性训练结束时,应促使所有大鼠能够迅速跑向实验区内存在的奖励沙井,连续获取可用的食物颗粒并将其运回基地箱进食。
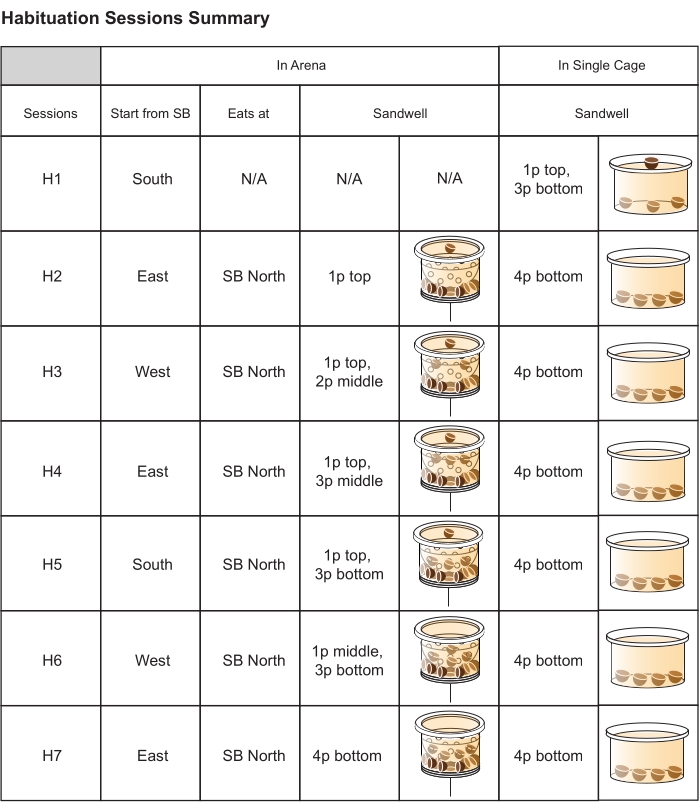
图 5:适应期实验的设计。 从左至右:适应期(H1-H7);各次实验使用的起始箱(例如,H1:南侧起始箱(SB));大鼠需前往取食食物奖励的位置(即北侧巢穴区);奖励用沙井中可获取食丸的位置(以文字和图示形式表示;p = 食丸),该沙井将在每次实验中置于指定位置;单个饲养笼内平底沙井中食丸的位置(以文字和图示形式表示),旨在促进大鼠挖掘行为,并强化其对“在沙井中挖掘可获得食物奖励”这一关联的认知。最后两列表示单个饲养笼内的沙井(位于实验区域外)。缩写:N/A = 不适用 请点击此处查看本图的放大版本。
4. 主要训练方案
注意:每次主要训练会话包括两次记忆编码试验(E1、E2),之后经过短暂的时间延迟(约30分钟),进行一次回忆选择试验(C1)。在所有试验中,大鼠需依次从有奖励的沙井中取出两粒食丸。在找到每粒食丸后,大鼠应定位并进入巢穴以食用该食物奖励。正确(即有奖励)沙井的位置在各次会话中对所有大鼠进行交叉平衡(图5)。
- 平衡措施
- 仔细平衡各次实验中沙井位置和起始箱顺序的使用序列图6)。每次实验前,准备位置图(图6A);确定每只大鼠在每次实验中正确的桑德威尔位置,该位置在各次实验中必须发生明显变化(图6B);并制作平衡表(图6B,C)和记录表(补充图1).
- 制备三组沙氏培养皿,每组五个沙氏培养皿(图6C每组需要五个沙井,因为在每次回忆选择试验中,竞技场内会使用五个沙井位置(一个正确位置和四个错误位置),并且需要三组沙井,以便在每次实验过程中轮换使用各组沙井。
- 每次实验过程中,每只大鼠的编码试验使用一套沙井装置(sandwell set)图 6B,C;编码1:第1组,A孔;编码2:第1组,B孔)以及另一组不同的sandwell组(图6B,C;回忆选择:第二组,C孔)作为其回忆选择试验。
- 每次实验中,为每只大鼠使用不同组合的Sandwell板组图 6B, C),并在不同实验阶段交替使用不同的沙井装置组合对每只大鼠进行测试。
- 编码试验
- 根据位置图和平衡表,将已标记的砂井放置在正确的位置图7)。切勿将 arena 内的提示位置、中心方格或四个起始箱正前方的三个方格用作沙井位置。
- 将一粒食饵和一只大鼠依次放入指定用于编码试验1(E1)的起始箱(例如,东侧);该食饵将作为任务的提示线索。在开始试验前,留出足够时间(约30秒),使大鼠吃完此提示食饵。
- 按下屏幕上的按钮 开始 使用按钮在内部视频采集系统中记录试验过程。
注意:必须保留大鼠编码试验的记录,原因包括:(1)研究透明性(即每只动物任务表现的原始证据),(2)重新评分,以及(3)后续参考(即为进一步分析和收集其他行为指标数据提供依据)。 - 使用定制的计算机软件远程打开起始箱的门(图4B).
- 当大鼠进入实验区域时,在定制的计算机软件中启动计时器并关闭起始箱门。
- 给予大鼠 200 秒时间寻找正确的沙井、挖掘并取出第一颗食丸。如果大鼠在 200 秒后仍未找到正确的沙井或取出第一颗食丸,则从沙下取出一颗食丸并放置于沙面。若大鼠在接下来的 200 秒内仍未前往正确的沙井并取回该食丸,则使用刷子轻轻引导其至正确的沙井。
- 一旦大鼠找到食物奖励,应将其携带至巢穴(例如,北侧黑色箱子)并在内部进食。如果大鼠未能定位并进入巢穴,而选择在开放区域内进食第一颗食丸,应迅速将大鼠从开放区域取出并放入巢穴中。
- 在大鼠于起始区吃完第一颗食丸后,让其从起始区进入实验 arena,并从正确的沙井中找到第二颗食丸。
- 取回第二块食饵后,让大鼠定位并进入巢穴进食。
- 大鼠安全进入后关闭基地门,并给予充足时间使其吃完第二粒饲料。
- 停止自定义计算机软件上的自定义视频采集录制和计时器。按下屏幕上的 停止 自定义视频采集软件中的按钮。然后,单击 停止 自定义计算机软件中屏幕计时器上的按钮
- 大鼠进食时,用浸有70%乙醇溶液的布擦拭实验区域地面。每次试验之间均需执行此步骤。
- 为编码试验2(E2)准备正确的沙井,并将其放置于事件 arena 内的正确位置。
- 将大鼠从饲养笼中取出,放入为E2指定的起始箱(例如,西侧)。
注意:使用不同的起始箱对于有效促使大鼠仅采用以环境线索为基础的空间策略完成任务至关重要,因为大鼠无法依赖固定的 arena 视角或沿用先前的行进路径来成功定位正确的沙井。相反,它们必须关注 arena 内部和外部的线索,从而促进以环境为中心的编码。 - 重复步骤 4.3.2 至 4.3.12,然后将大鼠放回其饲养笼中。
- 回忆选择试验
注意:每只大鼠的回忆选择试验在第二次编码试验(E2)后30-40分钟进行,试验中提供一个包含五个沙井的实验区域。- 将有奖励的沙井放置在该次实验指定的正确位置,而将四个无奖励的沙井放置在针对该次实验和大鼠指定的四个错误位置。图 8A)。在回忆选择实验中,五个沙井的位置图在每次实验会话中均会调整,并在各会话间进行平衡。
- 将含有四个可获取食丸的砂井板放置在正确位置。根据该实验环节的砂井板位置图,在错误位置的可接触区域放置四个额外的砂井板,每个砂井板均无奖励且不含有食丸。
- 将提示颗粒和大鼠放入回忆选择试验的起始箱(例如,南方)。确保该起始位置(例如,C1:西方)与两次编码试验中使用的位置(例如,E1:东方,E2:南方)不同。
- 使用内部视频采集系统开始记录试验过程。
注意:记录大鼠回忆选择试验的过程至关重要,原因包括:(1)确保研究透明性(即每只动物任务表现的原始证据,可作为论文补充材料提交),(2)便于重新评分,以及(3)供未来参考(即用于探索和收集其他行为指标的数据)。 - 在自定义计算机软件中,选择与本次实验所用砂井(sandwell)相对应的计时器(sandwell timers)图4B).
- 当大鼠吃完提示颗粒(约30秒)后,使用定制计算机软件打开门。当大鼠离开起始箱时,关闭起始箱门,并在定制计算机软件上启动计时器。
- 当大鼠在沙井中挖掘时,点击屏幕上的 桑德韦尔 使用图标记录大鼠在每个沙井中挖掘所花费的时间。持续记录大鼠在回忆选择试验结束前访问的每个沙井中的挖掘时间。
- 让大鼠随后寻找并进入巢穴以摄取该食物奖励。
- 采用与编码试验(见步骤4.2)相同的程序,在回忆选择试验中从正确的沙井中取出第二颗食丸。
- 不要点击并记录大鼠在寻找第二颗食丸时所访问的每个沙井的挖掘时间。仅记录大鼠成功定位到含有奖励的沙井并取回第二颗食丸之前所访问沙井的顺序(使用分配给每个沙井位置的编号1-5)。这需要集中注意力。
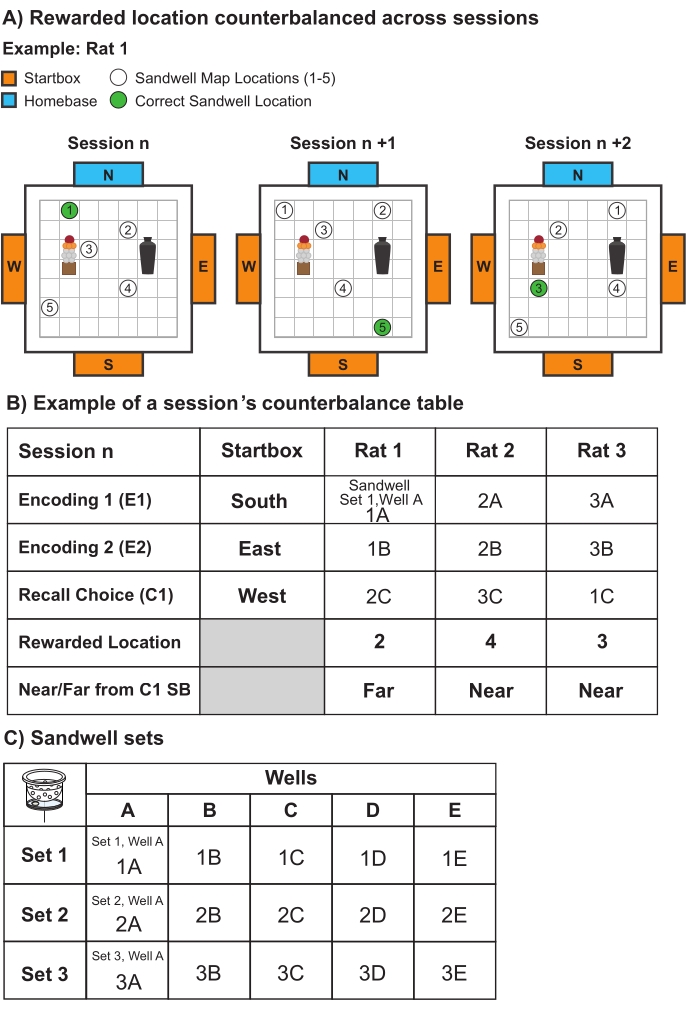
图 6:典型的平衡设计。(A)示意图,展示在不同实验环节中,沙井(sandwell)位置图以及大鼠遇到的正确沙井位置的变化情况(例如,大鼠1)。(B)单个实验环节(例如,环节1)的平衡设计表示例。在单个环节内的每次试验中使用不同的起始箱(即,编码试验1(E1)从南侧起始箱(SB)开始),但所有动物使用起始箱的顺序保持一致(例如,大鼠1-3)。用于表示正确位置的沙井(例如,位置2、4、3)及其对应的集合,在回忆选择试验中完整使用,这些沙井及其集合在每个环节的各次试验(例如,编码1、编码2、回忆选择)以及执行任务的不同动物(例如,大鼠1-3)之间进行平衡。(C)列出在环节内和环节间进行平衡的沙井集合的表格。共有15个沙井,分为三组集合(集合1-3),每组包含五个井(A-E)。每只大鼠在每次编码试验和回忆选择试验中使用不同的沙井。例如,如图 6B所述,大鼠1在编码试验1中使用沙井1A,在编码试验2中使用沙井1B,在回忆选择试验中使用沙井2C。请点击此处查看该图的放大版本。
5. 回忆探测试验
- 使用与回忆选择试验相同的设置,但五个沙井中均不放置可获取的食丸,包括该次实验中先前有奖励的正确沙井位置(图8A,B)。
注意:与回忆选择试验相同,在探针测试期间,所有五个沙井均可供大鼠选择,大鼠可自由挖掘任意一个或多个沙井;然而,所有沙井中均不含有可获取的食物奖励——12颗食丸均位于每个沙井的不可触及区域(图3C)。 - 将五个不含可获取食丸的沙井按照该次实验的沙井分布图所示位置放置于实验 arena 中(图8)。
- 将大鼠放入起始箱,并在其中放置一枚提示食丸。使用在该次实验的两次编码试验中均未使用的起始位置。
- 在定制计算机软件中设置沙井计时器,使其与该次实验的沙井分布图相对应(图4B)。确保定制计算机软件中的沙井计时器设置与该次实验的沙井分布图准确匹配。
- 启动实验室自建视频采集系统,开始记录探针试验。
注意:记录大鼠回忆探针试验过程至关重要,原因包括:(1)研究透明性(即每只动物任务表现的原始证据,可作为论文补充材料提交);(2)重新评分;以及(3)未来参考(即用于探索和收集其他行为指标的数据)。 - 当大鼠吃完提示食丸后,使用定制计算机软件远程打开起始箱门(图4B)。
- 当大鼠进入 arena 并远离起始箱门至安全距离后,关闭起始箱门,并在定制计算机软件中启动计时器。
- 在120秒的探针试验期间,通过点击大鼠访问的每个沙井并持续按住,记录其在每个沙井的挖掘时间及到达潜伏期。该120秒倒计时从大鼠首次挖掘第一个沙井时开始。
- 在60秒和120秒时间点,通过截取定制计算机软件界面的屏幕截图,记录此时的挖掘时间和潜伏期。
- 120秒探针试验结束后,在正确沙井(即编码试验中曾有奖励的沙井位置)中放入三颗食丸,以防止记忆衰退。要求大鼠取回其中两颗食丸。取回一颗食丸后,大鼠必须找到并进入起始位置以进食该食丸。
- 120秒探针测试结束后,点击定制计算机软件界面上的停止按钮。清除文件名,仅记录大鼠取回第一颗和第二颗食丸的潜伏期,这两颗食丸已放置于当前有奖励的正确沙井位置。
注意:在正确位置的偏好性挖掘被用作记忆的指标:若大鼠在编码试验中对日常事件(即遇到该次实验的正确沙井位置)的记忆良好,则其在正确位置的挖掘时间将显著长于在错误位置的平均挖掘时间。 - 在训练初期安排一次回忆探针测试,以检查大鼠表现是否处于随机水平。此后,可在特定时间间隔(例如每第六次实验)安排探针测试,或仅在大鼠达到稳定任务表现时进行安排:若大鼠在连续三次实验中的平均表现指数(%)达到60%或以上,则可进行探针测试。平均表现指数的定义见步骤7.3.1。
6. 非编码对照试验
注意:非编码试验是一种对照措施,用于确定大鼠在执行任务时是否依赖嗅觉残留物,而非依赖对正确沙井位置的记忆。顾名思义,“非编码对照试验”意味着在回忆选择试验之前不进行任何编码试验;仅实施回忆选择试验。预期结果是,若未允许大鼠对日常记忆事件的位置进行编码,则其在选择试验中的表现应处于随机水平。若实际情况并非如此,即大鼠在非编码对照试验中表现良好,则可能需要重新设计沙井及其可接近与不可接近的隔室。
- 按照第4.3节(步骤4.3.1至4.3.10)所述方法进行回忆选择试验。
7. 性能测量
注意:将测量多个参数,补充图 1 展示了一个示例数据表。
- 挖砂井选择数
注:选择数定义为大鼠在回忆选择试验和回忆探测试验中,挖掘直至并包括正确砂井在内的砂井数量。由于共有五个砂井,选择数的最大可能值为5。- 在实验的每次试验(回忆选择试验和回忆探测试验)中,确定大鼠做出的选择次数:即其前肢是否接触或伸入某个砂井。如果大鼠仅跑过某个砂井,或仅在附近短暂嗅探,则不视为一次选择。
- 在极少数情况下,若从视频监控难以判断大鼠是否做出了上述定义的选择,则在试验结束时检查是否有挖掘痕迹:即砂井周围的砂子是否发生位移。只要有挖掘迹象,无论多么轻微,均视为一次选择。在某个砂井处短暂停留但未挖掘,仅视为一次访问,不应计为选择。
- 错误次数
注:错误次数定义为大鼠在找到正确砂井之前访问的错误砂井(无奖励)的数量。选择数定义为大鼠在回忆选择试验和回忆探测试验中挖掘的砂井数量,直至并包括正确砂井。由于共有五个砂井,错误次数的最大值为4。- 使用以下公式计算错误次数:
错误次数 = (选择数 − 1) - 当大鼠再次访问错误砂井时,不应将其计为另一次错误,因为由于共有五个砂井,错误次数最大为4。
- 使用以下公式计算错误次数:
- 表现指数(PI)
注:表现指数定义为大鼠在回忆选择试验中找到正确砂井前所犯的错误次数。在五个砂井条件下,最多可出现四次错误。因此,在五个砂井中随机选择的表现水平为两次错误(即50%)。- 使用以下公式计算表现指数:
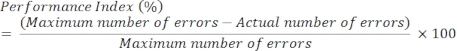
- 当大鼠再次访问错误砂井时,不应将其计为另一次错误,因为由于共有五个砂井,错误次数最大为4。
- 使用以下公式计算表现指数:
- 潜伏期
注:潜伏期定义为从开始到在正确砂井处开始挖掘所经过的时间。- 从大鼠离开起始箱开始测量潜伏期,直至其到达正确砂井。使用定制计算机软件监测并记录潜伏期。
- 挖掘时间
- 在回忆探测试验中,测量大鼠在每个砂井(包括正确和错误砂井)中的挖掘时间。
注:对日常事件的良好记忆定义为:在120秒探测试验中,大鼠在正确砂井(n = 1)的挖掘时间占总时间的比例,高于其在错误砂井(n = 4)中平均挖掘时间的比例。 - 使用以下公式分别计算正确和错误砂井的挖掘时间百分比:
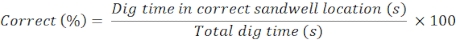
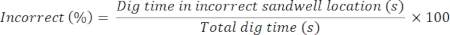
- 在回忆探测试验中,测量大鼠在每个砂井(包括正确和错误砂井)中的挖掘时间。
8. 避免无意偏倚
注意:在整个实验方案中实施以下对照措施,以确保该日常记忆任务的可重复性和可靠性。
- 在各次实验中交替设置沙井的位置,以避免动物对事件 arena 的某一侧产生奖励偏好。
- 在各次实验及每次实验中的不同大鼠之间,交替使用不同的沙井组合,以及组合中用于正确位置的沙井。这可以防止大鼠试图追踪前一只或前几只大鼠实验后残留的气味线索。
- 每次试验之间,使用浸有70%乙醇溶液的布擦拭事件 arena 的地面,以防止之前大鼠的行进路径影响后续的实验表现。
访问受限。请登录或开始试用以查看此内容。
结果
该稳定的“家基”实验方案已成功用于训练大鼠学习基于外界参照系(allocentric)的日常记忆任务。本方案包含两个关键要素。首先,动物在不同训练阶段内及阶段之间从不同的黑色起始箱(例如东、南、西)出发(图7A)。每个阶段包含两次编码试验和一次回忆选择试验(在某些情况下以探测试验替代选择试验),所有试验均从不同的起始箱开始。这种设计促使动物在进入实验 arena 时必须同时关注 arena 内部和外部的线索。由于从每个起始箱到达正确沙井位置所需的路径各不相同,动物无法仅依赖自身运动路径整合(idiothetic path integration)来完成任务。其次,动物能够快速学会在位于北方的稳定“家基”处进食食物奖励颗粒。在编码试验和回忆选择试验中,大鼠会挖掘并获取食物奖励,然后自然地跑回北方“家基”处食用第一颗食物颗粒(图7A)。在吃完第一颗颗粒后,它们从北侧箱体中出来并寻找第二颗颗粒。前往第二颗颗粒的路径不同于第一颗,大鼠必须重新调整方向以成功定位正确的沙井位置。这一过程进一步促使动物利用 arena 内外的环境线...
访问受限。请登录或开始试用以查看此内容。
讨论
人类会自动编码日常生活中的单个事件。我们容易回忆起某些事件,而遗忘其他事件。上述描述的类情景性日常记忆实验方案为研究人员提供了一种研究啮齿类动物此类记忆(情景记忆)的可靠方法。由于该任务涉及每天从特定位置寻找并获取食物颗粒的行为,因此利用了啮齿类动物觅食的自然本能。该任务基于一个合理的假设:大鼠每天在特定但不断变化的位置发现并挖掘食物的行为,对其而言即为一次事件。
情景记忆被认为是对特定时间和地点发生的事件的整合性记忆。继自发性新物体识别被引入作为研究识别记忆的方法之后9,Dix 和 Aggleton 的研究23进一步深化了该领域,将位置和背景作为额外的关联属性纳入其中。此后又出现了进一步的发展,包括 Langston 与 Wood 的研究24,将物体-位置-背景视为三重关联。这些方法都具有重要意义,但它们均依赖于识别记忆。事件场域(event arena)则代表了一种概念上不同的发展,因为它是一种回忆任务,而非仅依赖识别记忆。当动物需要记...
访问受限。请登录或开始试用以查看此内容。
披露
作者声明无利益冲突。
致谢
本工作得到了医学研究理事会项目资助、欧洲研究理事会(ERC-2010-AdG-268800-NEUROSCHEMA)以及惠康信托高级研究员资助(207481/Z/17/Z)的支持。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 相机 | CCTVFirst | N/A | |
| 事件实验场 | 爱丁堡大学(自主设计与建造) | 爱丁堡大学(自主设计与建造) | 用于日常记忆任务的实验场 |
| Lister-hooded 大鼠 | Charles River UK | 603 | |
| Multitimer Labview | 爱丁堡大学(自主设计与建造) | 爱丁堡大学(自主设计与建造) | |
| 事件实验场的气动装置、框架、螺丝 | RS Components Ltd. | 爱丁堡大学(P. Spooner) | 用于搭建事件实验场的工具 |
| 砂井板 | Adam Plastics (http://www.adamplastics.co.uk) | 爱丁堡大学(P. Spooner) | 实验场用砂井板 |
| 起始箱 | Adam Plastics (http://www.adamplastics.co.uk) | 爱丁堡大学(P. Spooner) | |
| 视频记录 | 配备 OBS 软件的 Windows 10 计算机,Blackmagic Decklink Mini Recorder 采集卡 | N/A |
参考文献
- Pavlov, I. P. The work of digestive glands. Bristol Medico-Chirurgical Journal. 21 (80), 158-159 (1903).
- Thorndike, E. L. Animal intelligence: An experimental study of the associative processes in animals. Psychological Review. 5 (5), 551-553 (1898).
- Dickinson, A., Mackintosh, N. J. Reinforcer specificity in the enhancement of conditioning by posttrial surprise. Journal of Experimental Psychology: Animal Behaviour Processes. 5 (2), 162-177 (1979).
- Tolman, E. C., Gleitman, H. Studies in spatial learning: VII. Place and response learning under different degrees of motivation. Journal of Experimental Psychology. 39 (5), 653-659 (1949).
- Olton, D. S., Samuelson, R. J., Wagner, A. R. Remembrance of places passed: Spatial memory in rats. Journal of Experimental Psychology: Animal Behaviour Processes. 2 (2), 97-116 (1976).
- Barnes, C. A. Memory deficits associated with senescence: A neurophysiological and behavioral study in the rat. Journal of Comparative and Physiological Psychology. 93 (1), 74-104 (1979).
- Morris, R. G. M., Garrud, P., Rawlins, J. N. P., O'Keefe, J. Place navigation impaired in rats with hippocampal lesions. Nature. 297 (5868), 681-683 (1982).
- Kesner, R. P., Farnsworth, G., Kametani, H. Role of parietal cortex and hippocampus in representing spatial information. Cerebral Cortex. 1 (5), 367-373 (1991).
- Ennaceur, A., Delacour, J. A new one-trial test for neurobiological studies of memory in rats. 1: Behavioural data. Behavioural Brain Research. 31 (1), 47-59 (1988).
- Ennaceur, A., Neave, N., Aggleton, J. P. Spontaneous object recognition and object location memory in rats: the effects of lesions in the cingulate cortices, the medial prefrontal cortex, the cingulum bundle and the fornix. Experimental Brain Research. 113 (3), 509-519 (1997).
- Day, M., Langston, R. F., Morris, R. G. M. Glutamate-receptor-mediated encoding and retrieval of paired-associate learning. Nature. 424 (6945), 205-209 (2003).
- Tse, D., et al. Schemas and memory consolidation. Science (American Association for the Advancement of Science). 316 (5821), 76-82 (2007).
- Bethus, I., Tse, D., Morris, R. G. M. Dopamine and memory: modulation of the persistence of memory for novel hippocampal NMDA receptor-dependent paired associates. The Journal of Neuroscience. 30 (5), 1610-1618 (2010).
- Bast, T., da Silva, B. M., Morris, R. G. M. Distinct contributions of hippocampal NMDA and AMPA receptors to encoding and retrieval of one-trial place memory. The Journal of Neuroscience. 25 (25), 5845-5856 (2005).
- Wang, S. -H., Redondo, R. L., Morris, R. G. M. of synaptic tagging and capture to the persistence of long-term potentiation and everyday spatial memory. Proceeding of the National Academy of Sciences. 107 (45), 19537-19542 (2010).
- Takeuchi, T., et al. Locus coeruleus and dopaminergic consolidation of everyday memory. Nature. 537 (7620), 357-362 (2016).
- Nonaka, M., et al. Everyday memory: towards a translationally effective method of modelling the encoding, forgetting and enhancement of memory. The European Journal of Neuroscience. 46 (4), 1937-1953 (2017).
- Broadbent, N., et al. A stable home-base promotes allocentric memory representations of episodic-like everyday spatial memory. The European Journal of Neuroscience. 51 (7), 1539-1558 (2020).
- Steele, R. J., Morris, R. G. M. Delay-dependent impairment of a matching-to-place task with chronic and intrahippocampal infusion of NMDA-antagonist D-AP5. Hippocampus. 9 (2), 118-136 (1999).
- Whishaw, I. Q., Coles, B. L. K., Bellerive, C. H. M. Food carrying: a new method for naturalistic studies of spontaneous and forced alternation. Journal of Neuroscience Methods. 61 (1), 139-143 (1995).
- Morris, R. G. M. Spatial localization does not require the presence of local cues. Learning and Motivation. 12 (2), 239-260 (1981).
- Whishaw, I. Q., Nicholson, L., Oddie, S. D. Food-pellet size directs hoarding in rats. Bulletin of the Psychonomic Society. 27 (1), 57-59 (1989).
- Dix, S. L., Aggleton, J. P. Extending the spontaneous preference test of recognition: Evidence of object-location and object-context recognition. Behavioural Brain Research. 99 (2), 191-200 (1999).
- Langston, R. F., Wood, E. R. Associative recognition and the hippocampus: differential effects of hippocampal lesions on object-place, object-context and object-place-context memory. Hippocampus. 20 (10), 1139-1153 (2010).
访问受限。请登录或开始试用以查看此内容。
重印与许可
本文已发表
视频即将推出