本文介绍了利用eGFP荧光在黑腹果蝇(Drosophila)复眼中对光感受器膜蛋白进行定位以及评估视网膜变性的非侵入性方法。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
膜蛋白运输调控受体和离子通道向质膜的整合与清除。这一过程对神经元的细胞功能和细胞完整性具有根本性的重要意义。Drosophila 感光细胞已成为研究膜蛋白运输的模型。除视紫红质外,后者在光照后会从感光细胞膜内化并被降解,Drosophila 中的瞬时受体电位样(TRPL)离子通道也表现出光依赖性的转位现象:在黑暗中位于小膜室感光膜,而在光照后被转运至感光细胞胞体。通过在感光细胞中表达eGFP标记的TRPL,可以以一种简单且非侵入性的方式研究TRPL的这种细胞内运输过程。随后可通过深部假瞳孔法或浸水显微镜观察eGFP荧光。这些方法可在完整眼球中检测荧光,因此适用于针对TRPL转位缺陷型Drosophila 突变体的高通量分析和遗传筛选。本文详细介绍了用于研究TRPL光诱导转位的果蝇制备方法、显微技术以及定量分析方法。这些方法也可应用于其他Drosophila 感光细胞蛋白(例如视紫红质)的运输研究。此外,通过使用eGFP标记的小膜室蛋白,这些方法还可用于评估感光细胞的退行性变。
引言
通过将蛋白质运送至细胞膜以及从细胞膜移除,神经元中的膜蛋白运输调控着细胞膜上受体和离子通道等膜蛋白的分布,从而调节神经元功能。蛋白质运输的失调或缺陷通常会对细胞产生有害影响,并导致神经元退行性变。在人类中,这可能引发阿尔茨海默病和帕金森病等神经退行性疾病。 视网膜色素变性1复眼中的感光细胞 黑腹果蝇 已成为 体内 研究膜蛋白转运的模式系统2. 这不仅归因于其基因的多功能性 果蝇 能够实现高效的遗传筛选,还因为光感受器膜中所有吸收光的关键组分均已得到详尽表征,并且已有多种高效的显微技术可用于果蝇复眼研究。本文重点介绍这些技术。
在 果蝇 光感受器细胞的顶端质膜在细胞的一侧形成密集排列的微绒毛束,称为小眼杆(rhabdomere)。光感受器细胞R1-6的小眼杆呈特征性的梯形排列,而光感受器细胞R7和R8则在该梯形中心形成单个小眼杆。3膜蛋白运输对于视网膜小柱膜蛋白(如视紫红质以及光激活的瞬时受体电位(TRP)和类瞬时受体电位(TRPL)离子通道)的受控更新是必需的,以确保这些光转导蛋白在视网膜小柱中维持适当含量。光感受器膜蛋白在内质网中合成,并被运输 通过 高尔基体到小网膜。在视紫红质被光激活后,一个视紫红质分子可通过吸收第二个光子而失活,或通过网格蛋白介导的内吞作用从小网膜中移除。内吞后的视紫红质要么在溶酶体中被降解,要么被回收至小网膜4,5离子通道 TRPL 在光转导级联反应激活后也会发生内化,并在光照依赖的条件下于小柱状突(果蝇在暗处时 TRPL 所在的位置)与细胞体内的内质网富集储存区室之间发生转位(光照数小时内被转运至此区室)。6,7,8,9,10与内吞的视紫红质不同,只有少量TRPL被降解 通过 内吞溶酶体途径,且大部分在细胞内储存,并在暗适应时被循环回小网膜6因此,TRPL 可用于分析光触发的质膜蛋白的转运。 果蝇 感光细胞也常被用于研究神经元变性。感光细胞的变性通常通过评估杆状突的结构来确定,后者会因变性过程而发生解体。5.
为了研究光感受器细胞中 TRPL 和视紫红质的亚细胞定位或光感受器细胞的退化,本文采用了两种在分析速度和分辨率上有所不同的荧光显微镜方法。一种是快速、无创的方法,可用于遗传筛选,但空间分辨率有限,即深部假瞳孔(DPP)中荧光的检测。DPP 是节肢动物复眼的一种光学现象,其几何起源早在1971年由 Franceschini 和 Kirschfeld 详细阐明11。简而言之,在视网膜下方的多个光学平面上,可观察到来自相邻小眼的微绒毛束的重叠图像。在穿过眼球曲率中心的焦平面上,这些叠加的投影形成一个图像,其形状类似于单个小眼中微绒毛束的梯形排列,但尺寸放大了若干数量级。该现象即使不依赖荧光蛋白的外源表达(例如 TRPL::eGFP8)也可观察到,但荧光蛋白的表达有助于更清晰地检测 DPP(图 1A-A'')12。第二种无创方法是水浸显微镜技术,其原理是通过用水中和眼睛的屈光系统后,对荧光标记的蛋白进行成像(图 1B-C'')12。利用水浸法,可对单个光感受器细胞中微绒毛束或胞体内的 TRPL::eGFP 相对含量进行定量评估。此外,可利用不发生转位的荧光标记蛋白来评估微绒毛束的完整性,并以定量方式确定潜在退化过程的时间进程,如本文所述。
尽管DPP记录是这些方法中最简单、最快捷的,但其生成数据的空间分辨率有限。此外,DPP缺失的原因有很多,而这些原因通常无法通过DPP成像本身加以辨别。由于DPP代表多个小眼的信号总和,因此会丢失关于单个细胞的信息。因此,低分辨率的DPP成像在筛选大量果蝇方面具有重要作用,但通常应随后通过浸水显微镜进行更高分辨率的记录。浸水显微成像可实现对单个细胞、发育缺陷、眼形态、蛋白质错位或视网膜变性等现象的分析,并可对这些效应进行定量评估。本实验方案将详细描述这两种技术。
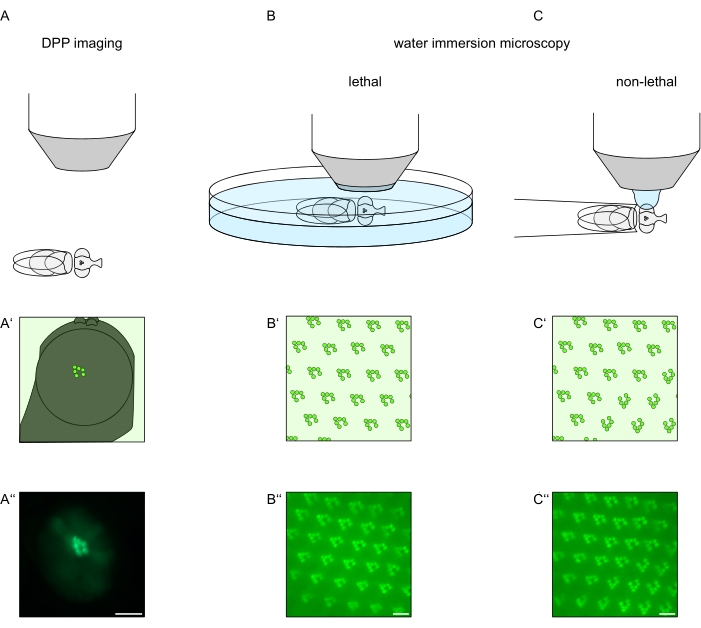
图1显微镜技术变体概述 果蝇 本方案中展示的眼睛。 (示意图与典型显微照片A-A''荧光深部假瞳孔(DPP)成像,(B-B'') 荧光小眼杆致命性水浸显微观察,以及 (C-C'')非致死性水滴显微镜观察荧光小眼面。比例尺(A''): 100 µm. 比例尺(B''-C''): 10 µm该图已根据参考文献进行了修改13. 请点击此处以查看此图的放大版本。
访问受限。请登录或开始试用以查看此内容。
方案
1. 一般注意事项
- 使用 果蝇 表达永久定位于小网的荧光蛋白以用于形态学分析(如 TRP::eGFP、eGFP::NINAC),以及表达可转运蛋白以用于蛋白质转运研究(如 TRPL::eGFP、Arr2::eGFP)。
- 预先确定实验所选果蝇的光照暴露条件。
- 暗适应期间,将果蝇置于暗盒中,在指定时间内保持黑暗环境 25 °C在易位实验(例如表达 TRPL::eGFP 的果蝇)中,若需进行长达 16 小时的光照处理,请将果蝇置于室温下荧光灯管照射环境中。
- 在评估感光细胞退化的实验中(例如表达 TRP::eGFP 的果蝇),将果蝇置于荧光灯管下培养 25 °C 在12小时光照/12小时黑暗循环条件下,以白光进行长达28天的长期照射。
- 使用不同颜色的透明塑料盒与荧光灯管结合,以彩色光照射果蝇。
- 若使用红眼品系的果蝇,应精确控制动物年龄以进行比较分析,因为眼色素沉积可能随年龄显著增加。
注意:在数据分析解释时,需注意由于小眼杆结构的光波导效应,会导致信号偏差。因此,在DPP成像和水浸显微镜观察中,相较于细胞体产生的信号,小眼杆来源的荧光信号总会在一定程度上被放大。这种现象在有色眼果蝇中尤为明显,因为色素会吸收小眼杆以外区域的荧光信号,当检测细胞内易位的融合蛋白时,该效应尤其重要。因此,在关键实验步骤中,本研究将白眼和红眼果蝇分别予以考虑。 - 关于水浸显微技术,描述了两种变体:一种为较快的致死性方法,另一种为非致死性方法,后者允许样本恢复以用于后续研究。
2. DPP 成像
- 按照图2所示,准备好所需的设备和试剂。使用CO2在翻板上对表达光感受器细胞荧光蛋白的果蝇(1-3日龄)进行麻醉。在体视显微镜下,利用常规光源和低倍放大(例如10倍)选择用于成像的个体。
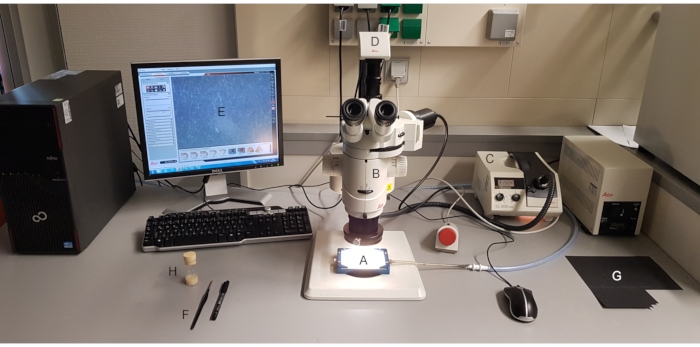
图 2:DPP 成像工作区。所需材料包括(A)CO2 麻醉装置,(B)配备紫外灯和荧光滤光片组的体视显微镜,(C)光源,(D)显微镜连接的相机,以及(E)软件,(F)毛笔,(G)黑色卡纸,和(H)果蝇小瓶。请点击此处查看该图的放大版本。
- 进行DPP成像时,保持所选果蝇处于麻醉状态,并将其侧置于显微镜物镜中心,使左眼或右眼精确地沿径向朝向物镜(图3A)。
注意:由于感光细胞的小眼排列在背腹中线上呈镜像对称,因此在眼球赤道略上方或下方观察DPP效果最佳(图3B)。
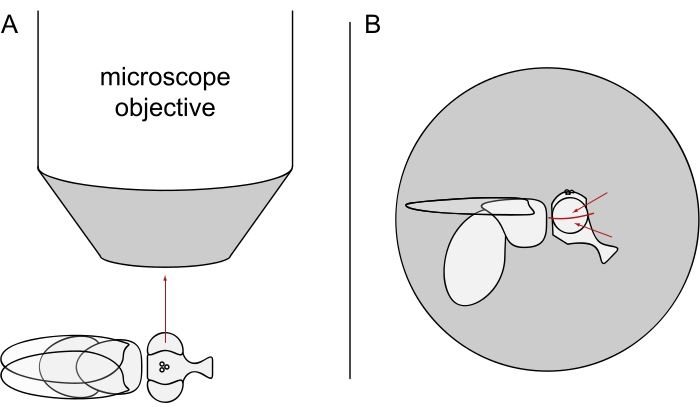
图 3:果蝇在体视显微镜下进行DPP成像时的位置。(A)果蝇侧放,一只眼睛朝向显微镜物镜径向方向的示意图。(B)需要将果蝇头部略微向上或向下转动,使物镜聚焦于眼睛赤道上方或下方的某一点,如红色箭头所示。请点击此处查看此图的放大版本。
- 增加放大倍数以使整个眼睛充满视野(例如 100 倍),并将复眼的中央小眼居中。通过将双虹彩光圈调节至较窄的开孔,减小显微镜的景深(图 4A-B')。
- 关闭常规光源,打开显微镜的紫外灯并调至最大强度,根据眼睛中表达的荧光蛋白选择相应的荧光滤光片组(图 4C-E)。将光路切换至显微镜所连接的相机。
- 利用软件中的实时成像功能,通过调整曝光时间和增益值(例如分别为 80 ms 和 12 倍),将图像亮度调节至仅能检测到眼睛中特异性信号的水平。重新调整显微镜焦距,使焦点“进入”眼睛内部(角膜下方),以获得 DPP 的叠加图像(图 4C-E')。
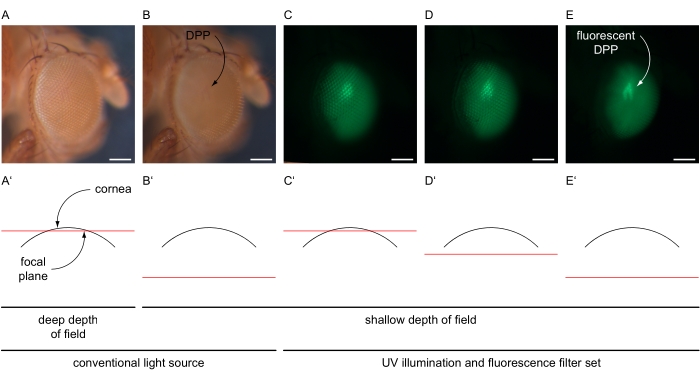
图4:DPP及荧光标记DPP成像示意图。在传统照明和紫外光(UV)照明下使用GFP滤光片组拍摄的Drosophila复眼图像,焦平面在不同位置获取,示意图中显示了通过复眼的横截面结构。(A) 使用常规光源高亮度设置拍摄的显微图像,曝光时间30 ms,增益1x,景深较大,焦平面位于角膜表面附近,如示意图(A')所示。(B) 使用常规光源高亮度设置拍摄的显微图像,曝光时间30 ms,增益1x,景深较浅,焦平面位于角膜表面下方约180 µm处,如示意图(B')所示,图中已标明DPP。(C-E) 使用高强度紫外光源和GFP滤光片组拍摄的显微图像,曝光时间80 ms,增益12x,景深较浅,焦平面分别位于(C')角膜表面附近、(D')略低于表面,或(E')角膜表面下方约180 µm处。荧光标记的DPP以弯曲箭头指示。比例尺:100 µm。 请点击此处查看该图的放大版本。
- 拍摄荧光 DPP 的图像。将显微镜切换回可见光模式,并将光路重新导向目镜。根据该动物的 DPP 表型(例如杂交实验)将其回收至果蝇小瓶中,以备后续实验。返回步骤 2.2 继续处理下一个动物。
3. 水浸显微镜技术
- 果蝇准备
- 按照图5所示,准备好所需仪器和试剂的工作区域。将已确定年龄和光照条件的果蝇转移至预冷的15 mL离心管中,并在冰上孵育15至30分钟以进行麻醉。
注意:请同时准备1日龄、暗适应的果蝇作为对照。通常情况下,暗适应果蝇应在黑暗环境中转移至带盖的冰盒内。光适应果蝇则可在室内光线下直接转移至冰上。
- 按照图5所示,准备好所需仪器和试剂的工作区域。将已确定年龄和光照条件的果蝇转移至预冷的15 mL离心管中,并在冰上孵育15至30分钟以进行麻醉。
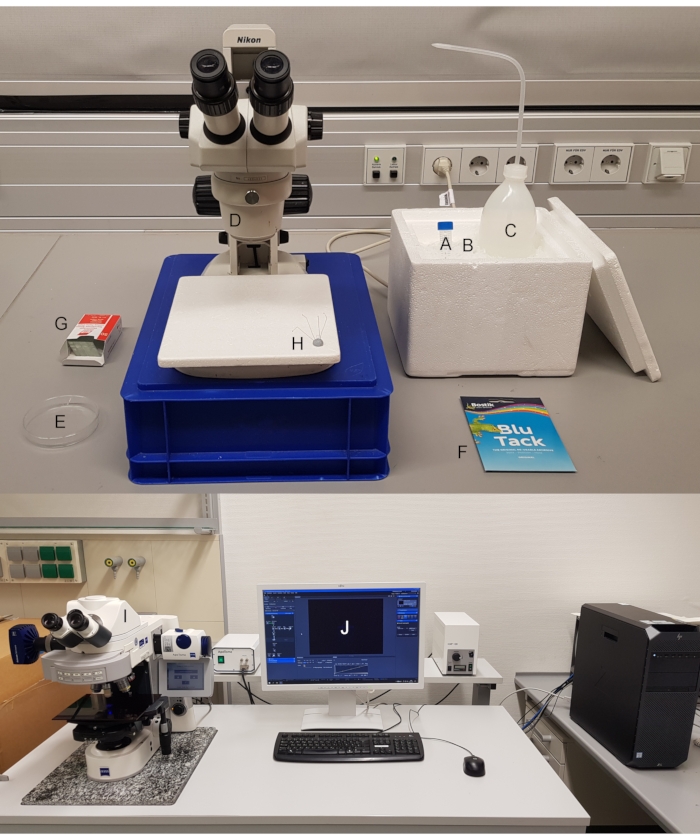
图5:水浸显微成像工作区。所需材料包括:(A)15 mL 离心管,(B)冰屑,(C)预冷的蒸馏水,(D)体视显微镜,(E)培养皿,(F)橡皮泥,(G)载物片,(H)昆虫针或移液器吸头和解剖刀,(I)荧光显微镜,以及(J)配套软件。请点击此处查看该图的放大版本。
- 从下述两种制备方法中选择适当的一种(3.1.3 致死型或 3.1.7 非致死型),并在需要区分有色眼与无色眼时,遵循相应的步骤。
- 按以下步骤准备致死型实验的果蝇。
- 将一块塑料泥粘附在载物片上,另取一块置于培养皿(例如,直径 94 mm)中央,暂时分开存放。向培养皿中加入冰镇的蒸馏水及少量冰屑(图6A)。
- 将一只经冰麻醉的果蝇置于体视显微镜下,放在涂有塑料泥的载物片上。将果蝇背部朝上,用昆虫针从胸中部垂直穿刺(图6B)。将针水平固定在涂有塑料泥的载物片上,并使果蝇的左眼或右眼朝上(图6C)。
- 将载物片(无塑料泥的一面朝下)小心固定于培养皿中,防止果蝇旋转。确保果蝇的眼睛被水覆盖(图6D)。使用解剖针小心去除眼睛周围可能形成的气泡,并立即开始图像采集以获得最佳效果。
注意:图像采集的显著延迟会导致果蝇苏醒并移动,从而造成图像模糊。
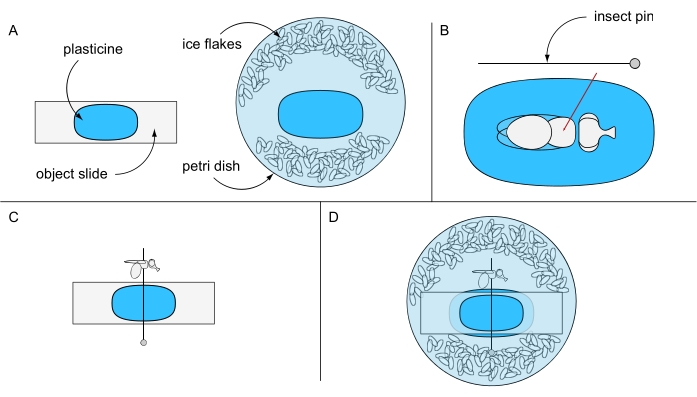
图6:致死性水浸显微观察的准备工作。 示意图显示了(A)涂有橡皮泥的载物玻片与培养皿,(B)通过胸部将果蝇固定在橡皮泥基底上,(C)果蝇在涂有橡皮泥的载物玻片上的摆放方向,以及(D)最终的实验装置。请点击此处查看该图的放大版本。
- 按如下步骤为非致死性实验准备果蝇。
- 将一只经冰麻醉的果蝇头部朝前转移至一个 200 µL 吸头中,并用压缩空气小心地将果蝇推向吸头尖端。
- 使用解剖刀在果蝇头部前方切断吸头尖端。用镊子小心地将果蝇向后推离尖端数毫米,再次切断吸头尖端,并用压缩空气将果蝇重新推向尖端,使仅果蝇头部从吸头末端伸出。
- 将一小块橡皮泥粘附在载物片上,并将吸头插入其中,使果蝇的左眼或右眼朝上(图 7A)。在开始成像前,立即用移液器吸取一滴冰水并附着于浸水物镜的下表面(图 7B)。为获得最佳成像效果,应立即开始图像采集。
注意:图像采集的显著延迟会导致果蝇苏醒并产生运动,从而引起图像模糊。
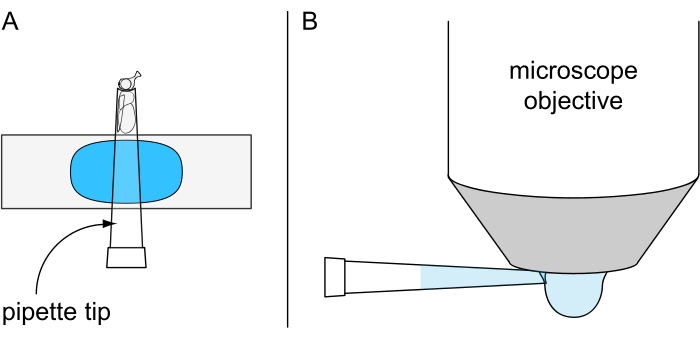
图7:非致死性水滴显微镜的准备工作。示意图显示(A)一只经低温麻醉的果蝇被固定在插于塑料黏土包被载玻片上的200 µL移液器吸头内,以及(B)将冷却的水滴加至浸水物镜的底面。请点击此处查看该图的放大版本。
- 图像采集
- 将已制备好果蝇的培养皿(步骤 3.1.3)或载玻片(步骤 3.1.7)小心地放置在显微镜载物台上,并选择水浸物镜。
- 将浸水物镜手动下移,直至其接触水面(步骤 3.1.3)或果蝇的眼睛接触到液滴(步骤 3.1.7)(图 8A,B).
- 打开显微镜紫外灯并选择合适的滤光片组。使用目镜将果蝇置于物镜下,并调节显微镜聚焦于眼睛表面。
- 将光路切换至显微镜相机,并在相应软件中生成实时图像。重新调节相机焦距,评估眼球的朝向,注意眼球需如图中更详细所示,沿径向面对显微镜物镜。 图8C-.
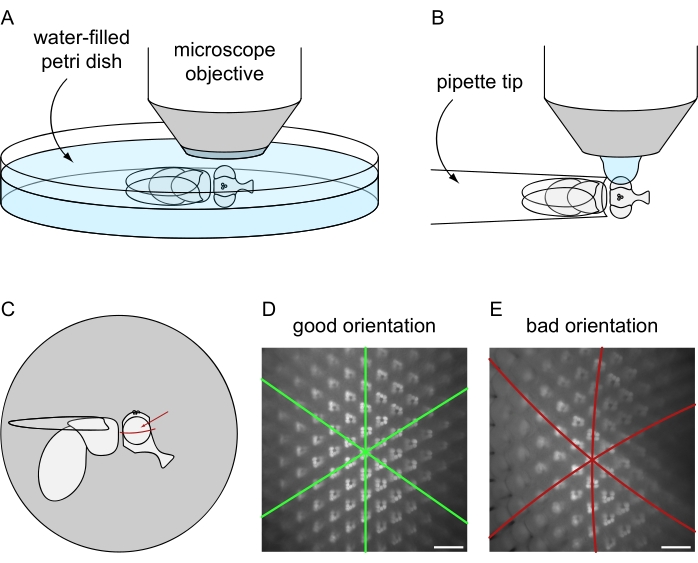
图8:果蝇在荧光显微镜下进行水浸没成像时的定位。 使用(A)致死性或(B)非致死性果蝇制备方案进行图像采集的装置与最终取向。(C)为获得最佳水浸没显微成像效果的果蝇取向示意图。理想的对焦位置并非严格位于眼面前/后轴和背/腹轴的正中心,而是略高于复眼的赤道平面,如红色箭头所示。(D)眼睛位置理想时的水浸没成像示例。六边形小眼排列的全部三个对称轴均呈现为直线,且最多数量的小眼可同时处于焦平面内。(E)眼睛位置不当时水浸没成像的示例。图像中对称轴呈弯曲状,景深较浅。比例尺:20 µm。 请点击此处查看该图的放大版本。
- 在成像软件中使用适当的 LUT(查找表)来检测过饱和现象(以红色像素表示)。
- 对于非色素型果蝇,调整曝光时间,使每个图像中最亮的像素刚好低于饱和阈值。
- 对于色素型果蝇及致死型变异,调整曝光时间,确保至少五只独立的1日龄、暗适应果蝇中所有最亮像素均刚好低于饱和阈值。将计算得到的平均曝光时间应用于所有其他实验条件(基因型、光照条件、时间点等)。
- 对于色素型果蝇(例如红眼果蝇)及非致死型变异,针对每只1日龄、暗适应果蝇 individually 调整曝光时间,使所有最亮像素刚好低于饱和阈值,并将该曝光时间应用于该果蝇的所有其他实验条件(光照条件、时间点等)。
- 采集图像并将其保存为原始文件,以归档所有相关元数据。随后将图像导出为 .tif 格式用于后续定量分析。
注意:对于非致死型变异,若果蝇将在后续实验中继续使用,则在图像采集后立即用红光(例如 630 nm)照射果蝇 5 分钟。红光可关闭在图像采集过程中因强短波光过度激活的光转导级联反应。
- 水浸显微照片中感杆体相对 eGFP 荧光的数据分析与定量
- 下载、安装并运行 ImageJ/Fiji 软件。
- 通过点击 分析 > 设置测量值... 调整 ImageJ 的设置,仅勾选 平均灰度值。通过点击 文件 > 打开... 或拖放方式导入 .tif 图像。选择图像中一个处于焦点的代表性区域,并通过连续按 Ctrl 和 + 键将其放大至 200%-300%。
- 选择 椭圆 工具,在按住 Shift 键的同时,在图像中生成一个明显小于一个荧光感杆体的圆形选区。在释放鼠标按钮前,查看 ImageJ 主窗口工具栏下方显示的精确尺寸。所有分析均需使用相同大小的圆形选区。
注意:圆形选区的精确尺寸(以像素或微米为单位)取决于具体实验设置。建议使用直径约为1天龄、暗适应对照果蝇感杆体直径的1/3或1/4的圆。 - 通过鼠标点击并拖动,或通过键盘上的方向键移动圆形选区。
- 为测量圆形选区内的荧光强度,将圆移至第一个感杆体(r1)处,然后点击 分析 > 测量,或使用快捷键 Ctrl + M。将弹出一个 结果 窗口,列出所测得的灰度值。
- 继续对 r2-r6 进行重复测量,并测量背景信号(b)。对于无色素果蝇,还需额外测量相应细胞体区域(c1-c6)(图9)。
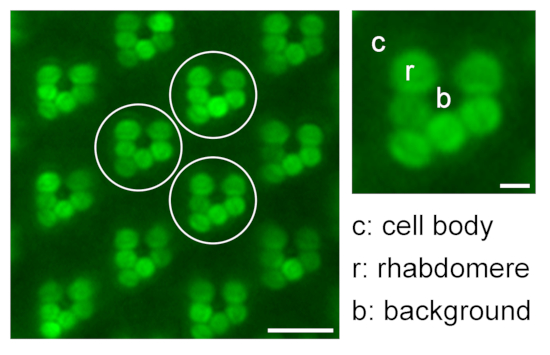
图9:感杆结构荧光相对定量用于转位研究。 通过测量水浸显微图像中三个不同代表性小眼(白色圆圈)的感杆结构(r)、细胞体(c)和背景(b)的荧光强度,对感杆结构中eGFP荧光的相对强度进行定量分析的示意图;比例尺:10 µm。右侧显示一个放大后的小眼结构;比例尺:2 µm。 请点击此处查看该图的高清版本。
- 重复步骤 3.3.5 和 3.3.6,再对另外两个小眼进行操作,共获得三个技术重复。使用以下方法标记已分析的小眼: 铅笔 工具并保存该图像以供记录。
- 选择并复制测得的灰度值 结果 窗口并将数据粘贴至电子表格软件中以进行进一步计算。根据荧光强度数值的来源,将其分类为小眼(r), 细胞体(c)和背景(b)。计算每个类别的平均强度Ir,我c,我b).
- 使用以下公式(1)计算无色素眼中共生小体(rhabdomere,R)中 eGFP 的相对含量,公式(2)用于有色色素眼:
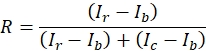 (1)
 (2)
- 继续执行步骤3.3.3中的下一张图像。建议从每个实验组中至少选取五个个体的图像作为生物学重复,以获得可靠的测量结果。
- 通过水浸显微照片中的 eGFP 荧光对眼形态进行数据分析与量化
- 下载、安装并运行 ImageJ/Fiji 软件。通过点击 文件 > 打开... 或通过拖放方式导入 .tif 图像。在图像中一个处于焦平面上的代表性区域选择三个相邻的小眼。
- 根据所选区域中 18 个微绒杆的 eGFP 荧光强度、边缘清晰度以及相对于周围背景信号的对比度,分别进行评估,以生成退变指数。将清晰可见的微绒杆记为 2 分,微弱可见的记为 1 分,不可见的记为 0 分(图 10)。
注意:该量化方法可使完整眼睛得分为 36 分,完全退变的眼睛得分为 0 分。建议将 36 分设定为退变指数的 100%。
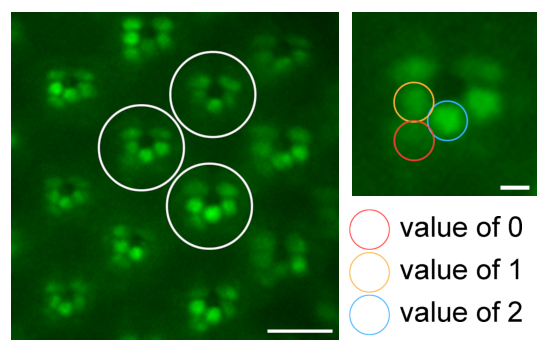
图10定量分析 通过 用于变性研究的微绒毛结构评估 通过评分一只浸水显微镜图像中三个不同代表性小眼(白色圆圈)的小眼面感杆体,来说明眼形态的量化。评分标准为:2分(清晰可见,蓝色圆圈)、1分(微弱可见,橙色圆圈)或0分(缺失,红色圆圈)。比例尺: 10 µm右图显示放大后的单眼;比例尺: 2 µm. 请点击此处以查看此图的放大版本。
- 打开下一张图像,并继续执行步骤 3.4.2。建议每个实验组至少使用来自八个个体的图像作为生物学重复,以获得可靠的测量结果。
注意:由于此定量方法相较于通过荧光强度定量转位的方法客观性较低,因此建议使用更多的重复数量。
访问受限。请登录或开始试用以查看此内容。
结果
已构建在视紫红质1启动子控制下表达TRPL::eGFP融合蛋白的转基因Drosophila果蝇。在这些果蝇中,TRPL::eGFP在复眼的光感受器细胞R1-6中表达,并表现出依赖光照的定位变化。当果蝇处于黑暗环境中时,TRPL::eGFP被整合到外部小网膜中;经过数小时光照后,TRPL会转位至细胞体,并储存在富含内质网的区室中。8,10 当TRPL::eGFP位于小网膜中时,其荧光可在DPP中观察到。然而,由于TRPL::eGFP发生转位,光照下小网膜的荧光会消失(图11A、B)。该现象已被用于开展遗传筛选,以鉴定TRPL::eGFP内化缺陷的突变体(图11C、D)14,15。为了能够分离潜在的纯合致死...
访问受限。请登录或开始试用以查看此内容。
讨论
荧光蛋白的应用以及通过DPP成像和视网膜浸水显微镜进行筛选的简便性已被多个研究团队证实是成功的12。已有多种遗传筛选采用了与本文所述相似的策略,利用Rh1::eGFP检测视紫红质表达水平、稳态、视网膜组织结构或细胞完整性的缺陷17,18,19,20,21。如上所述,像TRPL::eGFP这类可转运的融合蛋白可用于检测从或到小网膜的蛋白质转运过程是否受损,例如在诱变筛选中。另一方面,像TRP::eGFP这类永久定位于小网膜的融合蛋白则可用于研究小网膜的形态结构。DPP和浸水显微镜被公认为是在果蝇(Drosophila)眼模型中进行高通量分析和筛选的优秀方法。然而,建议最终对分离的单眼或冷冻切片的视网膜组织进行(免疫)组织化学分析,以验证通过DPP或浸水...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
我们谨向多年来参与研究的学生研究人员表示感谢。特别感谢Nina Meyer、Sibylle Mayer、Juliane Kaim和Laura Jaggy,本方案中所展示的代表性结果使用了她们的数据。本研究小组的工作由德国研究基金会(Deutsche Forschungsgemeinschaft)资助(项目编号:Hu 839/2-4、Hu 839/7-1),项目负责人为Armin Huber。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 15 mL 离心管 | Greiner Bio-One | 188271 | |
| 一氧化碳2 麻醉果蝇板 | Flystuff | 59-172 | |
| 冷光源灯(KL 1500 LCD) | 蔡司 | ||
| Fiji/ImageJ | 美国国立卫生研究院 | ||
| 荧光显微镜,配备紫外灯、相机、滤光片组和软件(AxioImager.Z1m,Axiocam 530 mono,38 HE,ZEN2 blue edition) | 蔡司 | ||
| 荧光灯管(Lumilux T8,L 30W/840,4000 K,G13) [1750 勒克斯,Ee470 nm = 298 µW cm-2,Ee590 nm = 215 µ厘米-2] 和[760 勒克斯,Ee470 nm = 173 µ厘米-2,Ee590 nm = 147 µW cm-2] | Osram | 4050300518039 | |
| 实验室移液器(20-200) µL) | Eppendorf | ||
| 载物片 | Roth | 0656.1 | |
| 培养皿(94 mm) | Greiner Bio-One | 633102 | |
| 移液器吸头(200 µL) | Labsolute | 7695844 | |
| 橡皮泥(Blu-Tack) | Bostik | 30811745 | |
| 体视显微镜(SMZ445) | 尼康 | ||
| 配备紫外灯、相机、滤光片组和软件的体视显微镜(MZ16F,MC170 HD,GFP3,LAS 4.12) | Leica |
参考文献
- Wang, X., Huang, T., Bu, G., Xu, H. Dysregulation of protein trafficking in neurodegeneration. Molecular Neurodegeneration. 9. 9, 31(2014).
- Schopf, K., Huber, A. Membrane protein trafficking in Drosophila photoreceptor cells. European Journal of Cell Biology. 96 (5), 391-401 (2017).
- Hardie, R. C. The photoreceptor array of the dipteran retina. Trends in Neurosciences. 9, 419-423 (1986).
- Wang, T., Montell, C. Phototransduction and retinal degeneration in Drosophila. Pflügers Archiv - European Journal of Physiology. 454 (5), 821-847 (2007).
- Xiong, B., Bellen, H. J. Rhodopsin homeostasis and retinal degeneration: lessons from the fly. Trends in Neurosciences. 36 (11), 652-660 (2013).
- Bähner, M., et al. Light-regulated subcellular translocation of Drosophila TRPL channels induces long-term adaptation and modifies the light-induced current. Neuron. 34 (1), 83-93 (2002).
- Cronin, M. A., Lieu, M. -H., Tsunoda, S. Two stages of light-dependent TRPL-channel translocation in Drosophila photoreceptors. Journal of Cell Science. 119, 2935-2944 (2006).
- Meyer, N., Joel-Almagor, T., Frechter, S., Minke, B., Huber, A. Subcellular translocation of the eGFP-tagged TRPL channel in Drosophila photoreceptors requires activation of the phototransduction cascade. Journal of Cell Science. 119, Pt 12 2592-2603 (2006).
- Oberegelsbacher, C., Schneidler, C., Voolstra, O., Cerny, A., Huber, A. The Drosophila TRPL ion channel shares a Rab-dependent translocation pathway with rhodopsin. European Journal of Cell Biology. 90 (8), 620-630 (2011).
- Wagner, K., Smylla, T. K., Lampe, M., Krieg, J., Huber, A. Phospholipase D and retromer promote recycling of TRPL ion channel via the endoplasmic reticulum. Traffic. , (2021).
- Franceschini, N., Kirschfeld, K. Les phénoménes de pseudopupille dans l'oeil compose de Drosophila. Kybernetik. 9 (5), 159-182 (1971).
- Pichaud, F., Desplan, C. A new visualization approach for identifying mutations that affect differentiation and organization of the Drosophila ommatidia. Development. 128 (6), 815-826 (2001).
- Smylla, T. K., Wagner, K., Huber, A. Application of fluorescent proteins for functional dissection of the Drosophila visual system. International Journal of Molecular Sciences. 22 (16), (2021).
- Meyer, N. Mechanisms of the light-dependent translocation of the ion channel TRPL in the photoreceptors of Drosophila melanogaster: Dissertation for obtaining the academic degree Dr. rer. nat. University of Karlsruhe (TH). , Karlsruhe. (2005).
- Meyer, N., Oberegelsbacher, C., Dürr, T. D., Schäfer, A., Huber, A. An eGFP-based genetic screen for defects in light-triggered subcelluar translocation of the Drosophila photoreceptor channel TRPL. Fly. 2 (1), 36-46 (2008).
- Zheng, L., Carthew, R. W. Lola regulates cell fate by antagonizing Notch induction in the Drosophila eye. Mechanisms of Development. 125 (1-2), 18-29 (2008).
- Hibbard, K. L., O'Tousa, J. E. A role for the cytoplasmic DEAD box helicase Dbp21E2 in rhodopsin maturation and photoreceptor viability. Journal of Neurogenetics. 26 (2), 177-188 (2012).
- Huang, Y., Xie, J., Wang, T. A Fluorescence-based genetic screen to study retinal degeneration in Drosophila. PloS One. 10 (12), 0144925(2015).
- Zhao, H., Wang, J., Wang, T. The V-ATPase V1 subunit A1 is required for rhodopsin anterograde trafficking in Drosophila. Molecular Biology of the Cell. 29 (13), 1640-1651 (2018).
- Xiong, L., et al. ER complex proteins are required for rhodopsin biosynthesis and photoreceptor survival in Drosophila and mice. Cell Death and Differentiation. 27 (2), 646-661 (2020).
- Zhao, H., Wang, T. PE homeostasis rebalanced through mitochondria-ER lipid exchange prevents retinal degeneration in Drosophila. PLoS Genetics. 16 (10), 1009070(2020).
- Cerny, A. C., et al. The GTP- and phospholipid-binding protein TTD14 regulates trafficking of the TRPL ion channel in Drosophila photoreceptor cells. PLoS Genetics. 11 (10), 1005578(2015).
- Richter, D. Structural and functional analyses of TRP ion channels in the photoreceptor cells of Drosophila melanogaster: Dissertation for obtaining the academic degree Dr. rer, nat. University of Karlsruhe (TH). , Karlsruhe. (2007).
- Gambis, A., Dourlen, P., Steller, H., Mollereau, B. Two-color in vivo imaging of photoreceptor apoptosis and development in Drosophila. Developmental Biology. 351 (1), 128-134 (2011).
- Hardie, R. C., Liu, C. -H., Randall, A. S., Sengupta, S. In vivo tracking of phosphoinositides in Drosophila photoreceptors. Journal of Cell Science. 128 (23), 4328-4340 (2015).
- Chakrabarti, P., et al. A dPIP5K dependent pool of phosphatidylinositol 4,5 bisphosphate (PIP2) is required for G-protein coupled signal transduction in Drosophila photoreceptors. PLoS Genetics. 11 (1), 1004948(2015).
访问受限。请登录或开始试用以查看此内容。
重印与许可
