使用200 kV透射电子显微镜(TEM)也可获得大分子的高分辨率冷冻电镜图谱。本方案介绍了实现精确光学对中、数据采集策略以及成像区域选择的最佳实践,这些步骤对于利用200 kV TEM成功获取高分辨率数据集至关重要。
方法文章
使用200 kV透射电子显微镜常规采集高分辨率冷冻电镜数据集
* These authors contributed equally
本文内容
摘要
摘要
冷冻电子显微镜(cryo-EM)在过去十年中已成为蛋白质结构测定的常规方法,在已发表的结构数据中所占比例日益增加。透射电子显微镜(TEM)技术与自动化方面的最新进展,显著提高了数据采集速度和图像质量,同时降低了获得亚3 Å分辨率冷冻电镜图谱所需的专业技术门槛。尽管大多数高分辨率结构是利用先进的300 kV冷冻透射电镜系统获得的,但配备能量过滤器的200 kV冷冻透射电镜系统同样能够解析出高分辨率结构。此外,显微镜校准与数据采集的自动化,结合实时图像质量评估,降低了系统的操作复杂性,并确保显微镜始终处于最优设置状态,从而提高了高质量图像的产出率及整体数据采集通量。本实验方案展示了在200 kV冷冻透射电子显微镜上实施最新技术进展与自动化功能的具体方法,并说明如何采集可用于三维结构重构的足够数据 从头合成 原子模型构建。我们重点关注实现此类高分辨率冷冻电镜数据集常规采集所需遵循的最佳实践、关键变量及常见问题。特别详细评述了以下核心主题:i)显微镜校准的自动化,ii)数据采集区域的合理选择,iii)高质量、高通量数据采集的最优光学参数,iv)能量过滤器的调谐以实现零损失成像,以及 v)数据管理与质量评估。通过脱铁铁蛋白(apo-ferritin)的实例展示最佳实践的应用,该样品经重建达到1.6 Å分辨率,并演示了使用能量过滤器提升可实现分辨率的效果。 Thermoplasma acidophilum 使用配备能量过滤器和直接电子探测器的200 kV透射电子显微镜,将20S蛋白酶体重构至2.1 Å分辨率。
引言
确定蛋白质结构对于理解参与关键细胞过程(如细胞代谢、信号转导或宿主-病原体相互作用)的蛋白质复合物的分子架构、功能及调控机制至关重要。冷冻电子显微镜(cryo-EM)已发展成为一种强大技术,能够解析许多传统结构生物学方法(如X射线衍射和核磁共振波谱)难以处理的蛋白质及其复合物的三维结构。特别是,cryo-EM已被证明是研究膜蛋白的首选方法,这类蛋白难以结晶或难以用传统结构技术所需的数量进行制备,该技术为理解重要的细胞受体和离子通道的结构与功能提供了新的见解1,2,3,4,5。最近,cryo-EM在抗击新冠疫情中发挥了重要作用,通过在分子水平上解析SARS-CoV-2感染机制,阐明了新冠疾病的起源,并为快速开发高效疫苗和治疗药物奠定了基础6,7,8,9,10。
通常,高分辨率生物大分子结构的测定采用高端300 kV透射电子显微镜(TEM),结合冷冻电镜单颗粒分析(SPA)技术,以揭示其构象及相互作用。近年来,当常见的基准冷冻电镜样品——脱铁铁蛋白(apo-ferritin)在配备冷场发射电子枪(E-CFEG)、直接电子探测器和能量过滤器的300 kV TEM上被重构至原子分辨率(1.2 Å)时,单颗粒分析技术达到了新的里程碑11,12。在此分辨率下,能够明确解析结构中各个原子的位置、单个氨基酸侧链的构象,以及氢键和其他相互作用,这为基于结构的新靶点药物发现以及现有候选药物的优化开辟了新的可能性。
中端200 kV透射电子显微镜(TEM)通常用于在高端TEM显微镜进行最终高分辨率数据采集前的样品筛选和优化,尤其是在规模较大的冷冻电镜设施中。通常情况下,成像样品的分辨率可达3–4 Å范围,足以满足转移至高端300 kV TEM进行最终数据采集的要求。因此,使用200 kV TEM的数据采集通常不会进一步优化以追求尽可能高的分辨率。此外,许多重要的生物学问题在该分辨率下已可得到解答并发表,因为此时所有氨基酸侧链均已清晰可辨,配体结合位点的占据情况也可被可靠确定13。已有研究表明,对于多种样品,200 kV TEM的分辨率可突破3 Å14,15,16,17,18。在200 kV下获取的图像中,成像颗粒本身具有更高的固有对比度,尽管在高分辨率区域的信号衰减较300 kV图像更为明显,但这一特性甚至可能有助于颗粒更精确的初始对齐。需要指出的是,冷冻电镜重构图谱所达到的分辨率也受到样品结构柔性和构象异质性的限制,这对200 kV和300 kV的重构结果均有影响。事实上,使用300 kV系统获得的冷冻电镜重构图谱中,处于3–4 Å分辨率范围的数量远多于更高分辨率的结果19。由于200 kV TEM显微镜结构更简单且占用空间更小,因此对于通过冷冻电镜技术解析生物大分子结构而言,这类显微镜是一种成本较低的理想选择,同时仍可保持对存储在显微镜自动进样系统中的多个样品进行长时间自动化数据采集的能力。
要获得可用于高分辨率结构解析的冷冻电镜数据集,需要对显微镜光学系统进行精确校准。光路校准按顺序系统性地从电子源开始,依次进行聚光镜系统、物镜以及配备电子探测器的能量过滤器的校准。通常情况下,并不需要执行完整的校准流程。当需要校准时,用户可通过显微镜用户界面(Direct Alignments控制面板)中的半自动化程序进行操作,每一步均有上下文相关的帮助窗口提供详细说明。一旦显微镜完成全面校准,电子光学系统将保持稳定,校准参数在至少几个月内无需更改。只有最敏感的几项校准,例如样品平面的平行照明、物镜像散和无彗差校准,必须在每次数据采集开始前进行精细优化。数据采集过程中,可使用多种软件包(如EPU Quality Monitor、cryoSPARC Live20、Relion21、Scipion22、WARP23 或 Appion24)实时监测所采集数据的质量。
除了显微镜的精确校准外,获得高质量且高度纯化的样品(具有最小的构象和组成异质性)也是采集高分辨率数据集并解析高分辨率结构的先决条件。有关典型实验流程、常见挑战及可能解决方案的更多细节,可参见其他专注于该主题的综述文献25,26,27。本质上,关键在于找到冷冻电镜载网上冰层足够薄的区域,以保留高分辨率信息,并且单个颗粒以随机取向均匀分布且无重叠。然而,典型的冷冻电镜载网冰层厚度往往不均一,因此寻找并选择最佳成像区域至关重要。目前已有多种方法可用于估计载网上的冰层厚度,这些功能包含在专用于自动化采集冷冻电镜数据集的软件包中,例如 EPU 2、Leginon28 或 SerialEM29。
快速且灵敏的直接电子探测器的出现使得图像能够以电影形式采集为多个分帧,从而实现了对电子束诱导运动的校正,显著提高了图像处理和最终三维重构所用数据的质量和数量30。与此同时,自动化和高通量的数据采集产生了包含数千张图像/电影的海量数据集,给数据存储和访问带来了挑战。对于服务于数十至数百名用户的大型冷冻电镜设施而言,尤其需要在既定的冷冻电镜流程中实施有序的数据管理,实现有效的数据追踪与共享31,32。
本研究描述了一种利用200 kV Glacios透射电子显微镜常规采集高分辨率冷冻电镜数据集的实验方案。文中介绍了显微镜光学系统的必要校准步骤,以及冷冻电镜样品的评估方法和适合高分辨率数据采集区域的选择流程。同时展示了在Athena——一个数据管理平台中,如何组织采集到的数据及其与样品信息相关的元数据,该平台有助于对样品信息和采集数据进行审查。利用小鼠脱铁铁蛋白样品,成功获得了分辨率为1.6 Å的三维重构结果13。根据所述实验方案,我们还对嗜热酸浆菌(Thermoplasma acidophilum)的20S蛋白酶体实现了分辨率为2.1 Å的三维密度图重构。
方案
本方案的所有步骤均针对配备 Selectris-X 能量过滤器(下文简称能量过滤器)和 Falcon 4 探测器(下文简称直接电子探测器)的 200 kV Glacios 透射电子显微镜系统(下文简称 200 kV TEM)进行描述。该方案步骤专用于 EPU 软件,这是每台 Glacios 系统上预装的默认单颗粒分析(SPA)数据采集软件。 以下方案步骤对应 EPU 版本 2.14,若使用其他 EPU 版本,预计会有少量修改。本方案的前提条件包括:i)电子枪和镜筒的光路已正确对中,ii)电镜的校准参数准确,iii)EPU 的自动功能已正确校准。
1. 将载网装入显微镜
注意:本实验所用的 200 kV 透射电子显微镜可在载样盒中容纳最多 12 个自动网格(即装入特殊卡匣中的常规透射电镜载网),该载样盒被置于显微镜的自动进样器内,并持续保持在 -170 °C 以下的温度,以防止样品脱玻璃化。
- 在液氮条件下,将自动网格插入自动进样器盒中。
- 将装有自动网格的盒插入经液氮冷却的转移胶囊中。
- 将胶囊插入显微镜,并在显微镜用户界面中点击 Dock 按钮,以将盒从胶囊加载至显微镜的自动进样器中。
- 点击 Inventory 按钮,检查已加载盒中自动网格的存在情况。
- 点击 Load 和 Unload 按钮,将自动网格送入透射电子显微镜成像用的镜筒中。
2. 在数据管理平台中设置项目(可选)
注意:样本信息和收集的数据可以整理在提供的数据管理平台中,该平台允许存储所有连接仪器的结构化数据。可以创建项目,并定义任意工作流程步骤,以有组织的方式捕获图像和元数据,便于审查和导出。
- 启动数据管理门户应用程序,并使用用户名和密码登录。
- 在门户界面的左侧面板中,单击Add Project按钮以创建新项目,或单击下方列表中已有项目的按钮以打开该项目。
- 单击Add Experiment按钮,在已打开的项目中创建新的实验。
- 在新实验的Metadata 面板中填写描述信息,然后单击Add Workflow按钮,在该实验中创建一个新的工作流程(例如,单颗粒分析)。
- 可选地,单击中间面板中的Add Step按钮,以创建自定义工作流程,或向预定义的SPA工作流程中添加额外步骤(图1 和 图2)。
注意:这些步骤可代表样品制备、生化技术对样品的表征、样品玻璃化、冷冻电镜载网筛选、数据采集会话以及数据分析等。 - 可选地,在每个步骤的Notes 中填写描述信息,其中可包含图像和照片。
- 在工作流程中创建一个数据集步骤,并将数据集类型选择为EPU。
注意:这将允许分析软件在数据采集期间自动将所有结果数据/元数据放置到数据管理门户中的正确位置,并在保持完整记录所有步骤和数据传输的同时,自动将数据导出至指定目标位置。 - 在Biochemistry 步骤中填写有关样品和电镜载网的模板信息,并将每个载网与一个样品相关联(注意:一个样品可与多个载网相关联)。
- 在Dataset 步骤的元数据部分中,关联样品-载网的组合。
3. 在分析软件中设置成像预设参数和图像漂移校准
- 根据表1所示,为各个成像模式设置成像参数。特定参数选择的考虑因素在讨论部分中有详细描述。
- 在分析软件的数据采集预设中,为所选放大倍数设置平行照明
注意:对于本研究中使用的200 kV透射电子显微镜等双聚光镜系统,在给定的SPOT尺寸(即C1透镜的预设强度)下,仅存在一个C2透镜设置可实现样品的平行照明。因此,单位面积上的电子剂量率(e-/Å2/s)只能通过更改SPOT尺寸设置,并按照以下步骤重新调整C2强度(电子束强度)来调节。- 移动至载网碳膜区域,且该区域冰层较薄或无冰。
- 在透射电镜用户界面(TEM UI)的光阑菜单中,选择100 µm或70 µm的物镜光阑。
- 按下控制面板上的衍射按钮,切换至衍射模式。
- 插入荧光屏,并将FluCam模式更改为高分辨率。
- 将中心衍射斑移至光阑边缘。若不可见光阑边缘,则增加相机长度(使用放大倍数旋钮)。
- 仔细旋转控制面板上的聚焦旋钮,使物镜背焦面聚焦清晰。当光阑边缘明显清晰时,表明背焦面已聚焦完成。
- 将FluCam的灵敏度降至最低,并将中心衍射斑移至FluCam的中心位置。
- 使用控制面板上的强度旋钮,将中心斑的尺寸最小化。
- 在TEM UI中撤回物镜光阑,并切换回成像模式。
- 在分析软件中点击获取按钮,将当前设置保存至数据采集预设中。
- 在数据采集预设中调整适用于所用探测器的最佳电子剂量率:
- 移动至载网上无样品的区域(例如碳膜破裂的网格方格)。
- 在分析软件中点击测量剂量按钮,以测量电子剂量率。
- 更改SPOT尺寸以达到最佳剂量率。对于本方案中使用的直接电子探测器,高分辨率数据采集通常采用4–5 e-/像素/s的剂量率,这通常对应SPOT尺寸4–6。
- 按照上述方法,在新的SPOT尺寸设置下检查并调整平行照明。
- 在分帧选项下选择EER,以在直接电子探测器上启用EER模式33。
- 在分析软件中点击获取按钮,将设置保存至数据采集预设中。
- 切换至自动聚焦预设,按下获取按钮以保存该聚焦模式下的照明设置。手动将曝光时间设为1 s,binning模式设为2。
- 切换至Thon Rings预设,按下获取按钮以保存该预设的照明设置。手动将曝光时间设为1–2 s,binning模式设为2。
- 切换至零损失预设,按下获取按钮以保存该预设的照明设置。手动将曝光时间设为0.5 s,binning模式设为4。
- 使用分析软件“准备”(Preparation)选项卡中的图像偏移校准任务,按照分析软件手册所述方法,对各设定光学条件之间的图像偏移进行校准(补充图1)。
表1:使用配备能量过滤器和直接电子探测器的200 kV冷冻透射电子显微镜进行高分辨率数据采集的典型成像参数 。表中列出了用于设置自动化数据采集(方案第3节)的各个光学预设条件下的参数设置。这些参数针对本研究中所使用的200 kV透射电子显微镜和直接电子探测器而设定。请点击此处下载该表格。
4. 冷冻电镜载网的网格化扫描及最佳载网筛选用于数据收集
- 选择 图谱 选项卡,然后点击 新建会话 按钮以打开一个新会话。
- 填写会话名称和数据存储位置等详细信息,然后点击 应用 按钮,打开一个新的 筛选 任务窗口,该窗口显示自动进样器库存中所有载网的列表。可选地,编辑载网的名称。
- 通过选中相应载网编号旁边的复选框来选择感兴趣的载网。
- 点击 开始 按钮,以全自动方式采集所有选定载网上图谱的数据。
- 当采集完成后,点击载网标签以查看已获取的图谱。
注意:单个载网方格根据其相对冰层厚度进行分类,该分类基于每张图谱中灰度值的相对评估。分类后的载网方格以不同的颜色方案显示,可用于指导数据采集区域的选择。使用 Vitrobot Mk IV 制备的载网通常在整个载网上呈现冰层厚度梯度,这有助于识别用于数据采集的理想冰层厚度。理想的载网应尽可能减少转移冰污染,并包含足够多完整且无裂纹的载网方格(图3)。对于具有合适冰分布的载网,可进一步在高倍率下检查冰中颗粒的分布情况(即单个颗粒的密度和取向)。 - 在顶部菜单中点击 加载样品 按钮,将具有合适冰分布的选定载网插入电镜镜筒中。
- 选择 图谱 选项卡,在图谱图像中右键单击合适的载网方格,并从下拉菜单中选择 将载物台移至此处,以将载物台移动至该载网方格位置。
- 选择 自动功能 选项卡,将载网方格设置为等中心高度。切换到 等中心高度 预设,点击所选载网方格中心位置的 通过电子束倾斜自动调平等中心 自动功能,然后点击 开始 按钮。
- 切换到 载网方格 预设并采集图像。通过右键单击并选择 将载物台移至此处 选项,将载物台移动到有冰且无污染或污染极少的孔洞位置。
- 切换到 孔洞/等中心高度 预设并采集图像。通过右键单击并选择 将载物台移至此处 选项,将载物台移动到目标孔洞旁边的碳膜区域。
- 点击 自动对焦 自动功能,并将期望的离焦值设为 0 µm,迭代至 -2 µm。切换到 自动对焦 预设,然后点击 开始 按钮。
- 再次选择 准备 选项卡,并切换到 孔洞/等中心高度 预设。在先前获取的孔洞图像上,选择孔洞内的感兴趣区域,并通过右键单击并选择 将载物台移至此处 选项,将载物台移动至该位置。
- 切换到 数据采集 预设,将束流偏移后的等待时间设为 0.5 s,载物台移动后的等待时间设为 20 s。使用 -3 µm 至 -5 µm 的离焦量采集图像,以增强低分辨率对比度,从而更清晰地观察单个颗粒。
- 可选地,根据需要重复步骤 4.7–4.13 ,以在不同冰厚度的多个孔洞和不同载网方格中成像颗粒。
- 一旦确定并选定了最适合高分辨率数据采集的载网,点击顶部菜单中的 加载样品 按钮,将选定的载网装入透射电子显微镜(TEM)中。
注意:或者,如果需要更多信息和/或希望实现该筛选过程的自动化,请执行第5节操作。
5. 在单颗粒分析软件中设置数据采集会话
注意:如果使用金箔网格,客观散光和彗差校准(第6节)可能无法可靠地进行。建议加载碳箔网格或交叉刻栅透射电镜网格,并在开始数据采集前完成这些最终校准。
- 选择 EPU 选项卡,然后点击左侧面板中的会话创建按钮以创建新会话。选择新建会话 选项以使用 当前 光学预设,或选择从偏好设置新建选项以加载先前导出的会话配置。
- 填写会话名称和数据存储位置。
注意:此位置将用于在以会话名称命名的子文件夹中保存数据采集会话期间整合的图像和元数据。尽管这些数据不会占用大量存储空间,但建议将这些数据保存在DMP服务器的Falcon卸载数据存储中,因为EER相机帧始终存储在此数据存储根目录下以会话名称命名的目录中。 - 选择会话的手动类型,以便在后续协议中对选定用于数据采集的网格方格中的单个孔洞进行控制。
- 选择快速采集模式,以使用无像差图像偏移(AFIS)进行数据采集,从而减少单个孔洞之间的载物台移动,降低整体样品漂移,并在不降低图像质量的前提下提高数据采集通量。
- 选择保存整合图像的默认mrc 格式。
- 指定所用的载网及其类型。本方案中,载铁蛋白使用R-1.2/1.3 UltraAufoil载网,20S蛋白酶体使用R-2/1 Quantifoil载网。在样品载体下选择Quantifoil,在Quantifoil类型下选择R1.2/1.3或2/1。
- 可选:点击右下角的Athena登录按钮以启用EPU质量监控器(EQM)。
- 在浏览器弹出窗口中输入登录信息,以激活会话设置概览中的设置部分。
- 点击设置部分中的选择按钮,浏览并选择先前创建的数据集(协议第2节),将其与当前数据采集关联。勾选启用质量监控器复选框。
- 点击应用按钮以创建新会话。
注意:此操作将在左侧菜单中打开新任务。在会话过程中的任何时刻,若发现某些细节有误,可返回到会话设置任务,修改/更新详细信息,然后再次点击应用按钮以更新会话。 - 在左侧面板中选择方格选择任务,以显示采集的载网图谱。
- 可选:双击图谱中的任意图块以查看更高品质的图像,从而更好地判断载网方格中的冰层质量。再次双击图像可返回载网图谱。
- 识别具有以下特征的载网方格(图4):(i) 载网方格中的支撑膜完整无损;(ii) 膜孔中为玻璃态薄冰(孔洞比支撑碳膜更亮);(iii) 尽可能减少方格内的结晶冰污染(黑色斑点);(iv) 载网方格及单个膜孔内亮度梯度最小。
注意:结合所选预设和优质载网,本研究使用的200 kV冷冻透射电镜可实现约每小时200–300个电影图像的成像速率。据此,可根据可用的显微镜时间选择所需数量的方格,或稍后返回方格选择任务添加更多方格。作为参考,为获得载铁蛋白1.6 Å分辨率,共采集了3000个电影图像。 - 在完整图谱或高质量图块图像中选择用于数据采集的载网方格
- 右键单击感兴趣的载网方格,并在上下文菜单中选择选择选项
- 或者,按住键盘上的Ctrl键并左键单击所需的载网方格
- 反之,右键单击并选择取消选择,或按住Shift键并左键单击以移除方格
- 在左侧面板中选择孔洞选择任务,以在已选载网方格中选择孔洞。
- 点击自动同心按钮,自动移动至第一个选定的载网方格,调整同心高度,并采集一张载网方格图像以查找膜孔。
- 点击查找孔洞按钮以在图像中识别膜孔。
注意:若孔洞识别效果不佳(例如图像中存在遗漏或尺寸错误的孔洞),请检查会话设置任务中Quantifoil类型条目是否输入了正确数值,并重新查找孔洞。若仍无法正确识别孔洞,请点击测量孔洞尺寸按钮,手动设置孔洞直径和间距后重新查找。 - 点击靠近载网条按钮的移除孔洞按钮,以取消选择靠近载网条的孔洞。
- 调整软件窗口右下角冰层滤波器亮度直方图中的限值,使用左侧限值线去除冰层过厚的孔洞,使用右侧限值线去除空孔洞,如图4所示。
注意:如需进一步优化,可在应用按钮旁的对应文本框中输入特定强度值。 - 可选:使用选择画笔 手动优化孔洞选择:左键单击并拖动画笔以取消选择不需要的孔洞。按住Ctrl键并左键单击可重新选择膜孔。按住Shift键并滚动鼠标滚轮可调整画笔大小。
- 选择一个孔洞以设置和测试将在整个数据采集中重复使用的采集模板:在载网方格图像中右键单击一个孔洞,并选择将载物台移至该位置选项。
- 在左侧面板中选择模板定义任务。
- 选择孔洞/同心预设,然后点击采集按钮以获取图像。
- 点击查找并居中孔洞按钮,使图像中的孔洞居中。
- 将图像偏移后延迟设为0.5秒(默认值),将载物台偏移后延迟设为20秒。
注意:由于本研究使用的200 kV冷冻透射电镜系统中平行电子束直径固定,通常在使用50-µm 光阑时对应1.6–1.7 µm,因此使用R-1.2/1.3载网时每个孔洞只能采集1张图像,而使用R-2/1或R-2/2载网时每个孔洞可采集2张图像(靠近对边边缘)。请注意,屏幕上设置的采集区域大小并不对应实际电子束直径。可利用图像比例尺估算合适的放置距离。 - 点击添加采集区域按钮,然后在图像上点击以选择在居中孔洞中进行高倍率图像采集的位置。
- 点击添加自动对焦区域按钮,然后在图像上点击以选择在居中孔洞旁的支撑膜上进行图像自动对焦的位置。
注意:对焦时电子束大小为1.6–1.7 µm,应等距放置于碳膜上相邻孔洞之间。 - 点击绿色采集区域,在软件窗口顶部的离焦列表中设置一系列离焦值。为在后续模板执行任务的测试运行中增强颗粒可视化效果,请将最大离焦值设为第一个值。
- 点击蓝色自动对焦区域,在同一区域设置自动对焦相关参数:
- 选择居中后选项,以便在每个AFIS簇开始时进行自动对焦。
- 选择物镜选项以实现更快的自动对焦并减少载物台漂移。
- 选择模板执行任务,然后点击执行按钮。
- 观察数据采集过程的各个步骤(居中孔洞、在选定区域自动对焦、在设定区域进行图像采集),并检查最终高倍率图像中成像颗粒的质量。
- 点击高倍率图像窗口右下角的FFT按钮,查看FFT图像,并目视评估Thon环是否显示出多次振荡并延伸至FFT图像的高分辨率区域。
- 若模板执行成功完成,请在孔洞选择任务中点击准备所有方格按钮,系统将根据首个载网方格中使用的设置,自动为所有其他选定的载网方格配置数据采集。
6. 开始数据采集前的最终显微镜校准
注意:为了获得最佳的高分辨率结果,最敏感的对中操作应与数据采集软件中的数据采集模式使用完全相同的设置,并在开始实际数据采集之前进行。这些对中操作应在载网的支持碳膜较薄的位置进行,该位置需距离任何载网杆足够远,并在等心高度下完成对中。
- 选择模板执行任务,获取一幅新图像,通过右键单击并选择菜单选项将载物台移动至此处,将载物台移动至碳膜上的洁净区域。
- 选择自动功能选项卡,将期望离焦值设置为 0 µm,迭代设置为 -2 µm。切换到自动对焦预设,然后单击开始按钮以运行自动对焦功能。
- 放下荧光屏,并在透射电子显微镜(TEM)用户界面中打开直接校准菜单。
- 为获得最佳结果,经验丰富的用户可验证合轴点校准:在直接校准菜单中选择nP 电子束倾斜 pp X任务,使用控制面板上的多功能旋钮使跳动的电子束最大程度重叠。对np 电子束倾斜 pp Y任务重复此操作。
- 在荧光屏相机菜单中单击EF按钮,显示一个绿色圆圈,该圆圈指示能量过滤器入口光阑,将电子束对准绿色圆圈中心。
注意:继续操作前请确保涡轮泵已停止;其振动会减少可见的索恩环数量,并经常导致自动功能失败。 - 返回软件窗口,在菜单栏中选择自动功能选项卡。
- 选择自动消像散任务,切换到索恩环预设,然后按下开始按钮。观察过程以确保:(i) 所采集的图像位于碳膜上,(ii) 索恩环清晰可见,(iii) 计算得到的CTF拟合(虚线)准确地位于索恩环极小值处(补充图2)。
- 选择自动彗差校正任务,然后按下开始按钮。观察过程以确保所采集的图像位于碳膜上,索恩环清晰可见,且计算得到的拟合曲线(虚线)准确地位于索恩环极小值处。使用鼠标滚轮放大每个索恩环图像(补充图3)。
注意:若显微镜配备能量过滤器,应在校准流程中进行能量过滤器调谐,以将过滤器狭缝对准零损失峰,并校正能量过滤器棱镜中的任何畸变(步骤6.9–6.14)。这些校准应在网格的空白区域(例如破损的网格方格内部)进行。 - 打开Sherpa UI,选择能量过滤器应用程序(补充图4)。
- 在设置窗口中,将相机设置为EF-Falcon,binning 为4x,曝光时间为0.2 s。
- 在零损失选项中单击居中按钮,以使零损失能量过滤器狭缝居中。
- 在等色性选项中单击调谐按钮(补充图4)。
- 在几何与色差畸变选项中,依次单击调谐放大倍数和调谐畸变(补充图5、补充图6)。
- 如果结果未达到规定指标并在输出报告中以红色显示,请从步骤6.11开始重复校准操作。
注意:尽管直接电子探测器的增益参考可能在数月内保持稳定,但如果空白区域图像未显示均匀强度,而是出现条纹或其他明显特征,则应使用Falcon 4 参考图像管理器重新获取增益参考。或者,可计算该图像的快速傅里叶变换(FFT),并确保无可见线条。 - 在软件窗口中选择准备选项卡,并切换到数据采集预设。
- 将剂量设置为 40 e-/Å2,然后单击测量剂量率按钮。
- 转到EPU选项卡,选择自动采集任务,并可选地勾选自动零损失功能;单击开始运行按钮以启动全自动数据采集。
7. 数据采集过程中数据质量的监测与优化
注意:在数据采集过程中,用户可通过数据管理门户使用电子显微镜质量监控工具(EQM)实时监测已采集的数据。EQM 能够实时执行运动校正和对比度传递函数(CTF)测定,并在门户中显示结果。用户可据此评估每次采集数据的质量,查看各项质量指标的图表,筛选掉不需要的采集数据,并将数据实时或批量导出至最终存储位置。
- 使用网络浏览器导航至分析软件存放数据的数据集位置。
- 在数据集概览中,采集卡片以图形形式显示运动校正和CTF测定的相关信息。点击各个卡片可查看详细信息。
- 启用 DataViz 面板,以显示来自完整数据集的聚合图表,展示每次采集的离焦值、像散及CTF置信范围(补充图7)。
- 使用面板顶部的筛选器,选择仅包含在指定离焦范围内的数据、像散接近零的数据,以及CTF可确定至指定(目标)分辨率的数据。设置好筛选条件后,点击 应用 按钮,仅在数据集概览窗口中显示所选数据。
- 当大多数采集的图像均符合设定标准时,可让数据采集会话继续直至完成。若仅有极小部分采集图像满足设定标准,则应重新配置分析软件参数、移动至样品上的其他区域(在分析软件中点击 下一个网格方格 按钮),或停止数据采集。
结果
数据管理平台提供了一个单一的软件平台,用于高效、结构化地存储来自多个实验流程的采集图像、数据及相关元数据。在创建的项目中,每个定义的实验均由一个工作流程组成,该工作流程包含客户自定义的步骤,用于记录样本信息、采集数据及相关元数据,且不受任何限制,从而为各种可能的实验和所有使用场景提供最大程度的灵活性和可用性(图1,图2)。数据管理平台还具备实验室笔记功能,可用于展示工作流程步骤,包括带有中间结果的图像处理过程,所有这些内容均可与项目关联,为数据分析以及报告和论文的撰写提供尽可能完整的记录。
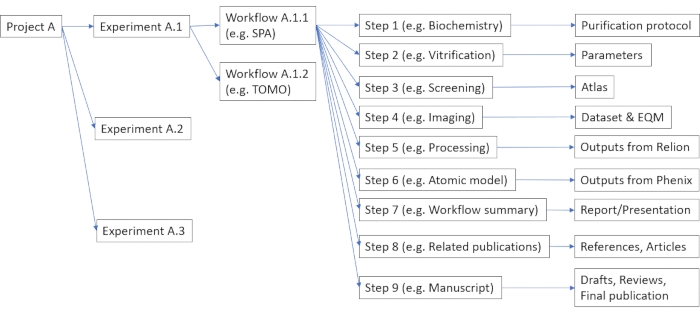
图1:数据管理平台中数据与元数据可能组织方式的示例。 每个项目可包含多个实验,例如冷冻电镜或质谱分析(参见实验方案步骤2.3)。每个实验可包含多个用户自定义的工作流程(参见实验方案步骤2.5),每个工作流程由多个可配置的步骤组成(参见实验方案步骤2.7)。请点击此处查看此图的放大版本。
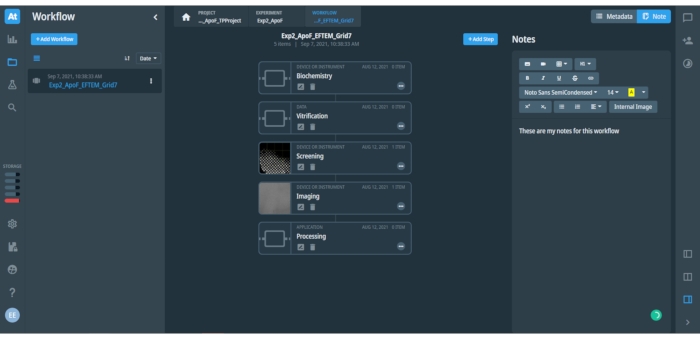
图 2:数据管理平台中已打开项目工作流程的视图。该图展示了工作流程中已打开步骤的相关元数据和备注。左侧的图标栏可快速访问数据管理平台的不同选项和菜单。左侧面板包含已保存工作流程的列表(此处仅显示一个已保存的工作流程“Exp2_ApoF_EFTEM_Grid7”)以及一个用于添加新工作流程的蓝色按钮。中央面板显示已打开工作流程中的各个步骤,此处以单粒子分析(SPA)工作流程为例展示。右上角的蓝色按钮可在已打开的工作流程中添加额外步骤。右侧面板用于记录工作流程的元数据或用户输入的备注,可包含文本、表格和图像。文本支持多种格式化选项。请点击此处查看此图的放大版本。
使用传统冷冻电镜载网制备设备(如Vitrobot)制备的冷冻电镜载网,其表面通常会呈现冰层厚度梯度。部分载网在手动操作和/或夹入自动载网环载体后可能发生损坏(弯曲)。图3展示了Atlas概览中不同载网的示例。冰层过厚或已损坏的载网应排除在后续研究之外。
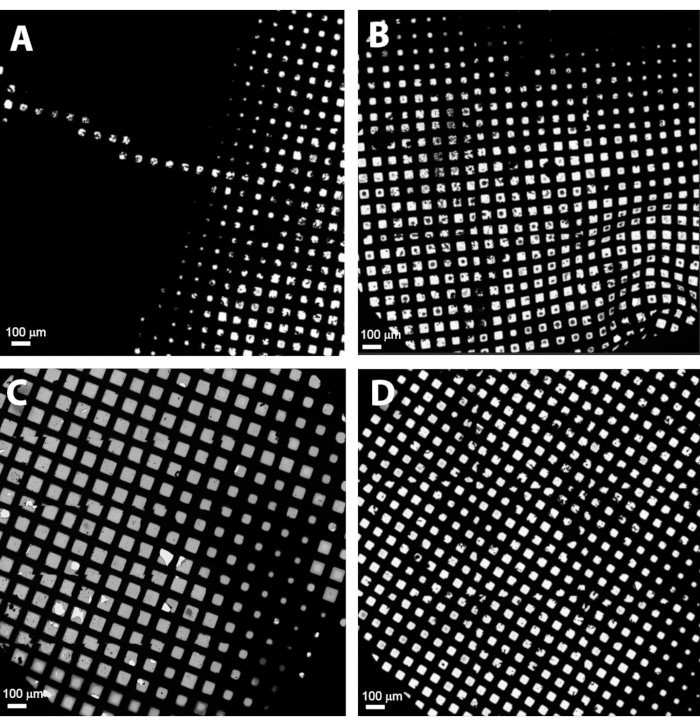
图3:Atlas概览中观察到的不同网格图集。(A)冰层过厚的劣质网格,(B)弯曲且冰质差并伴有冰污染的网格,(C)具有理想冰层梯度的可接受网格,(D)具有良好薄冰层和较小冰层梯度的典型网格。请点击此处查看该图的放大版本。
选择无损伤且冰层厚度适宜的网格区域对于采集高分辨率数据集至关重要。即使在单个网格区域内,冰层厚度也可能存在差异,因此必须从每个选定的网格区域中仅挑选冰层最薄的孔洞。图4展示了一个支撑膜完整且中心区域冰层较薄的合适网格区域。该网格区域适用于设置筛选条件,以在所有选定的网格区域中自动挑选冰层较薄的孔洞,因为它包含了不同冰层厚度的区域以及无冰的空白孔洞,这对于在“孔洞选择”任务中设定冰层滤波的合适强度范围极为有用。

图 4:一个具有冰厚度梯度的网格方格示例,中心为无冰的网格孔,靠近网格条处为厚冰。 冰的质量过滤可用于选择孔洞内具有理想冰厚度的强度范围,这些孔洞在网格方格中被相应地选中(绿色覆盖的孔洞)。请点击此处查看该图的放大版本。
使用所述方案对川香组提供的小鼠脱铁铁蛋白(apo-ferritin, apoF)样品进行测试,获得了基准结果11。apoF是一种富含α-螺旋的蛋白质,可形成高度稳定的八面体笼状结构。其高稳定性和高对称性使其成为高分辨率冷冻电镜成像与图像处理的理想样品。因此,apoF已成为评估冷冻电镜仪器性能的标准样品11,12,13。取一管含15 mg/mL纯化apoF的冻存样品,置于冰上解冻,并在10,000 ×g条件下离心10分钟以澄清。将上清液用含20 mM HEPES(pH 7.5)和150 mM NaCl的缓冲液稀释至5 mg/mL。取3 µL稀释后的样品滴加于经辉光放电处理的R-1.2/1.3型、300目金载网上,孵育30秒。随后滤纸吸去多余液体5秒,立即将载网浸入由液氮冷却的液态乙烷中进行速冻。速冻过程使用全自动玻璃化系统完成,环境湿度为100%,温度为4 °C。所有载网均装入自动载网夹后,载入200 kV冷冻透射电镜中。以每小时约300张电影图像的速度共收集约3000张电影图像。数据处理采用文献所述方法11,并作如下修改:i)使用Relion 4-beta版本替代Relion 3.1;ii)使用先前apoF重构结果的二维分类平均图作为参考模板,进行自动化颗粒挑选;iii)初始三维模型由先前apoF重构结果经低通滤波至15-Å分辨率后生成。本数据集未进行光学分组,因为所采用的AFIS流程34已被证实能高效且可靠地最小化由电子束倾斜引起的相位偏移,从而不会限制数据质量以达到报道的分辨率水平。经过贝叶斯抛光和CTF精修后的三维精修,获得了分辨率为1.68 Å的三维密度图。进一步通过埃瓦尔德球校正,分辨率提升至1.63 Å。数据收集与处理参数概览见表2,最终重构的密度图见图5,傅里叶壳层相关(FSC)曲线见补充图8。
表2:用于脱辅基铁蛋白三维重构的数据采集与图像处理参数。 请点击此处下载该表格。
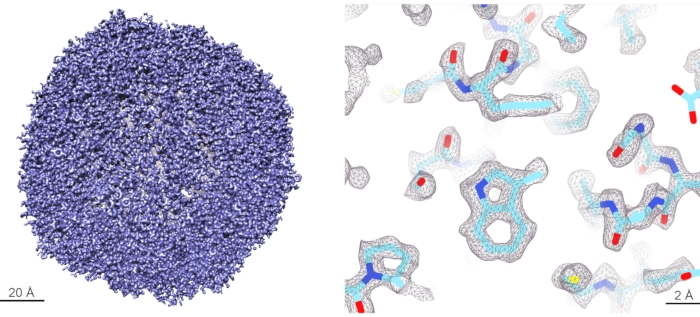
图 5:脱铁铁蛋白的冷冻电镜重构。(左图)在1.6 Å分辨率下重构的脱铁铁蛋白(apoF)冷冻电镜密度图的三维渲染图。(右图)重构密度图在单个氨基酸侧链水平的详细视图。氨基酸侧链的密度清晰可辨,原子模型可明确地构建于该密度图中。请点击此处查看该图的高清版本。
使用能量过滤器在单颗粒冷冻电镜(SPA)重构中的效果和优势通过来自 T. acidophilum的原核20S蛋白酶体进行了评估。原核20S蛋白酶体也被用作标准的冷冻电镜样品,因其代表了具有D7对称性的蛋白酶体复合物的稳定催化核心。载网的制备方法是将4.5 µL纯化的T. acidophilum 20S蛋白酶体样品加到经辉光放电处理的200目R 2/1铜载网上。样品使用全自动玻璃化系统在4 °C和100%湿度条件下,以20的 blot 力度和4.5 s的 blot 时间,在液态乙烷/丙烷混合物中进行玻璃化冷冻。
使用相同冷冻电镜载网上的相似载网方格,通过不同能量过滤器狭缝宽度依次收集了三组不同的数据集,顺序如下:i) 狭缝完全打开(未插入狭缝),ii) 20 eV 狭缝,iii) 10 eV 狭缝。载网方格通过分析软件中的冰层质量筛选功能进行选择。数据收集和数据处理的所有其他参数均保持一致。每组数据集采集时长为15小时,共采集4000个电影文件,并按照文献11所述方法使用Relion 3.1进行处理,唯一修改之处是采用拉普拉斯高斯粒子挑选算法,从完整数据集中生成初始2D分类平均图,用于基于参考的粒子挑选。每组数据集均随机选取相同数量(102,200个)的粒子用于最终迭代及3D重构。数据处理参数详见下表(表3),以获得最终重构的EM电子密度图(如图6所示),其FSC曲线见于补充图9。这些数据集均未进行光学分组或埃瓦尔德球面校正。
表3:用于嗜酸热原体(T. acidophilum)20S 蛋白酶体三维重构的数据采集与图像处理参数。 请点击此处下载该表格。
表4:冷冻电镜三维重构达到的分辨率与B因子总结 T. acidophilum 使用不同能量狭缝宽度的数据集研究20S蛋白酶体。 请点击此处下载此表格。

图6:能量过滤对冷冻电镜图像的影响。 (A)使用或不使用10 eV狭缝在不同离焦值下采集的冷冻电镜图像。(B)带有分段亚基的20S蛋白酶体冷冻电镜图谱概览。(C)拟合原子模型的20S蛋白酶体图谱的局部放大视图。 请点击此处查看该图的放大版本。
补充图1:使用在100倍至165,000倍全放大范围内均可见的六角冰晶,对分析软件中不同光学预设(红椭圆)之间的图像位移进行校准(黄椭圆)。(顶部)数据采集与孔/等中心高度预设之间的校准,(中部)孔/等中心高度与网格方格预设之间的校准,(底部)网格方格与图谱预设之间的校准。请点击此处下载该文件。
补充图2:分析软件中的自动消像散功能(黄色椭圆)。(左图)采集的图像。(右图)采集图像的傅里叶变换,显示同心的索恩环及其在径向光束中的CTF拟合结果。请点击此处下载该文件。
补充图3:分析软件中用于彗差校正的Autocoma功能的用户界面(黄色椭圆)。 图像面板显示了在不同电子束倾斜角度下采集的傅里叶变换图像及其CTF拟合结果,这些用于计算彗差。请点击此处下载该文件。
补充图4:能量滤波器调谐的用户界面。 能量滤波器等色性良好调谐示例,所有参数(以绿色文字显示)均在规格范围内。请点击此处下载该文件。
补充图5:能量滤波器调谐的用户界面。 能量滤波器放大倍率畸变的良好调谐示例,所有参数(以绿色文字显示)均在规格范围内。请点击此处下载该文件。
补充图6:能量滤波器调谐的用户界面。 能量滤波器色差畸变的良好调谐示例,所有参数(以绿色文本显示)均在规格范围内。 请点击此处下载该文件。
补充图7:EPU质量监控器的DataViz面板,展示所收集的冷冻电镜数据集的数据质量概览。 该面板中的图表汇总了所有采集的图像/电影数据,显示了若干关键质量指标的数值(点状图)和分布情况(柱状图),例如CTF拟合置信度(蓝色)、离焦值(橙色)和像散(绿色)。用户可在DataViz面板顶部设置参数过滤条件,以选择部分采集的图像/电影数据。应用过滤后,可将选中的图像/电影导出,用于Relion或CryoSpark等其他图像处理软件的进一步处理。请点击此处下载该文件。
补充图8:根据Relion 4-beta报告的脱辅基F(apoF)最终重构结果在1.6 Å分辨率下的FSC曲线。 蓝色曲线显示了由两个互斥的半数据集独立精修得到的两个掩膜3D图谱之间的FSC。根据0.143黄金标准FSC阈值,由完整数据集重建的最终3D图谱分辨率为1.6 Å。橙色曲线显示了相位随机化后掩膜3D重构图谱的FSC。FSC曲线的迅速下降表明所使用的掩膜在约2 Å分辨率以上并未对原始重构图谱(蓝色曲线)的FSC产生显著影响。请点击此处下载该文件。
补充图9:使用不同能量过滤器狭缝宽度对T. acidophilum 20S蛋白酶体进行最终重构的FSC曲线(由Relion 3.1报告)。 蓝色曲线显示了分别来自每套数据两个半数据集独立精修所得的掩膜3D图谱之间的FSC。依据“黄金标准”FSC阈值0.143,最终从各完整数据集重建的3D图谱分辨率分别为2.3 Å、2.2 Å和2.1 Å。红色曲线显示了相位随机化后掩膜图谱的FSC。红色FSC曲线迅速下降,表明所使用的掩膜在约3 Å分辨率以上并未对原始重构图谱的FSC产生显著影响。绿色曲线显示了未掩膜3D图谱的FSC,由于受到整个重构3D体积中噪声的影响,其下降早于掩膜3D图谱的FSC。请点击此处下载该文件。
数据可用性: 冷冻电镜密度图已存入电子显微镜数据银行,登录编号如下:脱铁铁蛋白:EMD 14173,EMPIAR-10973;20S 蛋白酶体:EMD 14467,EMPIAR-10976。
讨论
本方案假设所用透射电子显微镜(TEM)的光学系统处于良好对中状态。对于本方案中使用的200 kV TEM,此类镜筒对中工作由经验丰富的服务工程师在显微镜安装或重大维护操作后完成、验证并保存。这些对中设置可随时在显微镜用户界面(UI)中调用。用户可使用显微镜UI中的直接对中程序重新微调关键参数。某些对中参数(如电子枪倾斜和电子枪平移)较为稳定,无需用户每日调整。建议显微镜主管每半年检查并重新对中(如需要)电子枪倾斜与平移一次。另一方面,某些对中步骤至关重要,必须在每次数据采集前按照上述方案进行(例如物镜像散和无彗差对中)。如果分析软件中的自动无彗差(Autocoma)功能无法收敛,应验证并调整电子束倾斜枢轴点和/或旋转中心,并确认C2光阑的正确居中。随后应运行自动消像散(Autostigmate)功能,因为物镜消像散器也用于彗差校正。应反复执行这些对中步骤,直至自动消像散 和自动无彗差功能在首次迭代时均能成功完成。如有必要,可选择另一区域(例如无冰的支撑碳膜),调整欠焦量,延长图像采集时间,以优化所获图像的信噪比,以及提高傅里叶变换图像中多个萨恩环的可见度。
现代冷冻电镜显微镜产生的数据量巨大,单个数据集通常超过1 TB,以实现高分辨率三维结构重建,特别是对于低对称性的蛋白质而言。在每个科研项目中,冷冻电镜的数据和结果通常还需结合正交方法获得的数据与结果,以全面理解结构与功能之间的关系。收集数据的组织、将其传输至图像处理流程,以及在合作者之间共享最终的冷冻电镜重建结果,这些都对新采用冷冻电镜技术的研究人员提出了额外要求,即必须建立本地IT基础设施。数据管理软件(如Athena)可实现由注册用户操作的任何连接仪器或软件所获取数据的集中存储。存储的数据及元数据可通过简单的网页浏览器界面供多位用户访问,用户在项目中可具有不同角色(如所有者、合作者或查看者),并根据其登录凭证及实验设置中的数据共享定义获得相应的访问权限。实验流程的数字化为合作者之间共享数据和元数据提供了便利,避免了不必要的重复,提高了工作流程的效率和可追溯性。数据管理软件中项目、实验和工作流程的通用且可定制的结构设计具有普适性,支持将采用互补方法的正交实验进行定制化整合,统一纳入单一项目数据库中。
在冷冻电镜载网上选择合适的数据采集区域,对于成功获取高分辨率数据集至关重要。使用传统冷冻制样设备(如Vitrobot,一种全自动玻璃化冷冻系统)制备的冷冻电镜载网,其表面通常会呈现出冰层厚度的梯度分布(图4)。这种梯度可能具有优势,因为载网上存在不同冰层厚度的区域;然而,仍需按照上述方案中所述方法,识别出适合数据采集的理想冰层厚度区域。理想的冷冻电镜载网应尽可能减少转移过程中引入的冰污染,并包含足够数量具有完整孔状支持膜的载网方格。不建议在存在裂纹或破损区域的载网方格上采集数据,因为这些区域在电子束照射下会产生显著更强的整体漂移,从而影响所采集图像的质量。过量的晶状冰可能堵塞大部分支持膜孔洞,和/或干扰自动对焦,此类载网方格也应避免使用。冰层较薄的载网方格通常在Atlas预设模式下成像时表现出较大的玻璃态冰区域以及许多明亮的孔洞。靠近载网条的区域出现较厚的冰层是正常现象,且无需担忧,因为在“孔洞选择”步骤中,这些区域的孔洞将被自动排除。单个载网方格中若存在多个空孔,可能表明周围孔洞中的玻璃态冰极薄,其中的颗粒可能已受损或完全缺失。通常情况下,建议在载网的不同区域选择具有多种冰层厚度的方格进行初步筛选和评估,以确定哪些区域具备最佳的高分辨率数据采集条件,并展现出理想的颗粒密度和取向分布。对于本研究中使用的apoF和20S蛋白酶体样品,可观察到冰层最薄的区域为这些样品进行高分辨率成像的最佳区域。
使用数据采集 软件在所有选定的网格方格中自动选择孔位时,建议在每个网格方格中对一个代表性孔位执行模板运行任务,以检查并确保未选择过厚、过薄或意外非玻璃态的冰层区域用于数据采集。在数据采集过程中,可利用EQM监测所采集图像的关键质量指标,例如图像漂移和CTF拟合情况。随后可根据图像质量跳过质量较差的区域,从而优化数据采集。然而,即使CTF拟合达到高分辨率的图像,仍可能包含颗粒取向高度偏好,或因冰层过薄导致颗粒变性的图像。对采集的图像进行实时颗粒挑选和二维分类,可进一步提供有关成像颗粒结构数据质量的信息,揭示完整颗粒在冰层中的优势取向,或(部分)变性颗粒结构的不一致性。因此,计算类别平均图像有助于进一步优化合适的数据采集区域,该策略已在其他软件包中实现并得到验证23,28。
用于数据采集的成像参数设置(如放大倍数、电子剂量率和离焦范围)需根据多个标准进行选择,包括目标分辨率、蛋白质尺寸、样品浓度、期望的显微镜通量等。对于本实验中使用的直接电子探测器相机,电子剂量率选择在每像素每秒4-5个电子的范围内。-通过选择适当的光斑尺寸和强度来维持平行照明。如图所示 表1,可在“孔/等心高”预设中使用不同的SPOT尺寸,以确保在数据采集过程中,图像具有足够的信噪比用于孔的居中。放大倍数应选择为使像素尺寸至少比冷冻电镜三维重构的目标分辨率小2-3倍。然而,放大倍数越高(即像素尺寸越小),图像的视场越小,每幅图像中的颗粒数越少,最终导致需要更长的数据采集时间,以获得足够数量的颗粒用于高分辨率三维重构。对于apoF样品,我们采用0.43 Å的像素尺寸,因为样品浓度足够高,图像中颗粒密度较高,且目标为达到2 Å以下的重构分辨率。对于20S蛋白酶体样品,我们采用0.68 Å的像素尺寸,以在采集的图像中覆盖更大的视场。通常对于200 kV透射电子显微镜,冷冻电镜图像的欠焦范围为0.8至2.0 µm。然而,由于使用能量滤波器可提高图像对比度和信噪比,数据采集可更接近于焦点进行,从而因像差更小、CTF包络函数衰减更少,更好地保留图像中的高分辨率信息。我们也不使用物镜光阑,因为光阑可能引入额外的图像像差,而使用能量滤波器已能充分增强图像对比度。对于apoF和20S蛋白酶体样品,我们使用的欠焦值设置为0.5 µm、0.7 µm和0.9 µm。对于较小的蛋白质(<200 kDa),我们采用了离焦量设置 -0.5 µm、-0.7 µm 和 -0.9 µm 以提高颗粒的对比度,便于在三维重构的3D refinement步骤中更易进行颗粒挑选和初始粗略对齐,从而获得约2.5 Å分辨率的三维图谱(未发表结果)。
我们此前已证实,在高端 300-kV 透射电子显微镜(TEM)上采集的冷冻电镜(cryo-EM)图像中,使用能量过滤器成像可提高信噪比(SNR)11。事实上,当电子穿过样品时,会发生两种主要类型的相互作用:i)弹性散射电子保持其能量,并通过相位衬度机制与未散射的入射电子束发生干涉,从而参与成像;ii)非弹性散射电子在样品中损失部分能量,主要对图像噪声产生贡献。因此,通过使用窄能量狭缝滤除能量低于入射电子束和弹性散射电子的非弹性散射电子,可显著提高信噪比(SNR)。然而,在高分辨率冷冻电镜数据集的长时间(12 小时以上)自动化数据采集过程中,必须使用足够稳定能量过滤器(例如 Selectris 或 Selectris-X),才能有效应用非常窄(10 eV 或更小)的能量狭缝。
在与300 kV透射电子显微镜(TEM)相同条件下,使用200 kV TEM显微镜获取的冷冻电镜(Cryo-EM)图像由于CTF包络函数衰减更快,其高分辨率下的信噪比(SNR)较低(特别是<4 Å时)。因此,使用200 kV TEM时,需要更多的颗粒数量(从而需要采集更多的图像)才能达到特定分辨率。此外,在2–3 Å分辨率范围内,200 kV图像的景深(10–25 nm)也比300 kV图像约小20%35,这意味着在通常为20–50 nm厚的冰层中,较少的颗粒会完全处于焦点内,除非在三维重构后期对每个颗粒独立优化离焦值,否则这些颗粒无法对计算所得三维重构图中的所有高分辨率特征产生有效贡献。对于较大的颗粒(如二十面体病毒颗粒或其他大分子复合物),其尺寸可能超过高分辨率下的景深范围,从而在标准三维重构算法中因对Ewald球面进行平面近似而引入相位误差36。这些误差可通过已在常用冷冻电镜图像处理软件包中实现的先进算法进行校正37,28,39。由于200 kV数据的Ewald球面曲率大于300 kV数据,因此在使用200 kV TEM时,Ewald球面校正需在相对较低的分辨率下和/或针对相对较小的大分子复合物进行。另一方面,当冰层较薄(20–50 nm),且显著薄于200–300 keV电子的平均自由程(220–280 nm)时,200 kV图像中颗粒的对比度更高。这种更高的对比度有助于改善单个颗粒的全局正确对齐,尤其对于散射信号较弱的小型蛋白质(其结构尚未明确)以及尚未建立良好三维参考模型的情况尤为有利。
本文以20S蛋白酶体为例,证明了在使用200 kV透射电子显微镜(TEM)时,通过能量过滤器同样可以提高图像的对比度和质量。在使用相同数量颗粒的情况下,采用20 eV狭缝收集的数据重建分辨率达到2.26 Å,而使用完全打开的能量狭缝所收集的数据仅重建到2.34 Å分辨率。最佳的重建结果来自使用10 eV狭缝收集的数据,其分辨率达到了2.14 Å。这些结果与理论预测一致:过滤掉非弹性散射电子可提高所采集图像的信噪比(SNR),从而在给定颗粒数量的情况下促进冷冻电镜(cryo-EM)三维重构实现更高分辨率,如表4所总结。这些结论进一步通过从各数据集计算得到的B因子得到验证,B因子结果表明能量过滤后的数据集图像质量更高。
因此,我们可以得出结论:尽管300 kV透射电子显微镜(TEM)在冷冻电镜重构中能够提供最高的通量和最高的分辨率,但200 kV TEM显微镜同样能够获得用于高分辨率冷冻电镜重构的高质量数据集。本文表明,使用配备能量过滤器和直接电子探测器的200 kV TEM,可进一步提升所获取图像的质量,从而缩短整体结构解析时间。本方案详细描述了利用该设备常规获取高分辨率冷冻电镜数据所需的全部步骤,揭示大分子三维结构的精细结构细节,这对于理解结构生物学中的关键结构-功能关系以及基于结构的药物设计至关重要。
披露
Sagar Khavnekar 报告无利益冲突。其他作者为赛默飞世尔科技公司 MSD-EM 部门的员工。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| AutoGrid 圆环 | Thermo Fisher Scientific | 1036173 | 标准电镜载网用 AutoGrid 圆环,每包 100 个。 |
| C-Clip | Thermo Fisher Scientific | 1036171 | 每包 100 个夹子,用于将标准电镜载网固定在 AutoGrid 圆环内。 |
| 数据管理平台 | Thermo Fisher Scientific | 1160939 | Glacios 基础配置的组成部分;包含 Athena 软件 |
| EPU 质量监控模块 | Thermo Fisher Scientific | 1179770 | |
| EPU 软件 | Thermo Fisher Scientific | 1025080 | Glacios 基础配置的组成部分 |
| Ethane 3.5 | Westfalen | A06010110 | 用于制备液态乙烷的乙烷气体(纯度至少为 N35,即 99.95% 体积分数) |
| Falcon 4 200kV | Thermo Fisher Scientific | 1166936 | 直接电子探测器 |
| Glacios | Thermo Fisher Scientific | 1149551 | 200 kV 透射电子显微镜 |
| GloQube Plus 电镜载网辉光放电系统及表面改性系统 | Quorum | N/A | 亦可通过 Thermo Fisher Scientific 购得(货号 1160602) |
| QuantiFoil 载网 | Quantifoil | N/A | R-2/1,300 目;碳支持膜载网 |
| Relion | MRC 分子生物学实验室 | N/A | 开源软件: https://relion.readthedocs.io/en/release-3.1/ |
| Selectris 配 Falcon 4(适用于 200 kV) | Thermo Fisher Scientific | 1191753 | 能量过滤器 |
| Selectris X 配 Falcon 4(适用于 200 kV) | Thermo Fisher Scientific | 1191755 | 能量过滤器 |
| UltrAuFoil 载网 | Quantifoil | N/A | R-1.2/1.2,300 目;金支持膜载网 |
| Vitrobot Mk. IV | Thermo Fisher Scientific | 1086439 | 自动化玻璃化冷冻系统 |
| Whatman 595 滤纸 | Thermo Fisher Scientific | AA00420S |
参考文献
- Wang, J., Hua, T., Liu, Z. -J. Structural features of activated GPCR signaling complexes. Current Opinions in Structural Biology. 63, 82-89 (2020).
- Chen, S., Gouaux, E. Structure and mechanism of AMPA receptor - auxiliary protein complexes. Current Opinions in Structural Biology. 54, 104-111 (2019).
- Kühlbrandt, W. Structure and mechanisms of F-Type ATP synthases. Annual Review of Biochemistry. 88, 515-549 (2019).
- Laverty, D., et al. Cryo-EM structure of the human α1β3γ2 GABA A receptor in a lipid bilayer. Nature. 565 (7740), 516-520 (2019).
- Liu, F., Zhang, Z., Csanády, L., Gadsby, D. C., Chen, J. Molecular structure of the Human CFTR ion channel. Cell. 169 (1), 85-95 (2017).
- Wrapp, D., et al. Cryo-EM structure of the 2019-nCoV spike in the prefusion conformation. Science. 367 (6483), 1260-1263 (2020).
- Ke, Z., et al. Structures and distributions of SARS-CoV-2 spike proteins on intact virions. Nature. 588, 498-502 (2020).
- Yan, R., Zhang, Y., Li, Y., Xia, L., Guo, Y., Zhou, Q. Structural basis for the recognition of SARS-CoV-2 by full-length human ACE2. Science. 367 (6485), 1444-1448 (2020).
- Walls, A. C., Park, Y. -J., Tortorici, M. A., Wall, A., McGuire, A. T., Veesler, D. Structure, function, and antigenicity of the SARS-CoV-2 spike glycoprotein. Cell. 180, 281-292 (2020).
- Chiba, S., et al. Multivalent nanoparticle-based vaccines protect hamsters against SARS-CoV-2 after a single immunization. Communications Biology. 4 (1), 597(2021).
- Nakane, T., et al. Single-particle cryo-EM at atomic resolution. Nature. 587, 152-156 (2020).
- Bai, X. C. Seeing atoms by single-particle Cryo-EM. Trends in Biochemical Sciences. 46 (4), 253-254 (2021).
- Koh, A., et al. High-resolution cryo-EM at 200kV enabled by Selectris-X and Falcon 4. Microscience Microscopy Congress 2021. , Abstract 212 (2021).
- Herzik, M. A., Wu, M., Lander, G. C. Achieving better-than-3-Å resolution by single-particle cryo-EM at 200 keV. Nature Methods. 14 (11), 1075-1078 (2017).
- Herzik, M. A., Wu, M., Lander, G. C. High-resolution structure determination of sub-100 kDa complexes using conventional cryo-EM. Nature Communications. 10 (1), 1032(2019).
- Wu, M., Lander, G. C., Herzik, M. A. Sub-2 Angstrom resolution structure determination using single-particle cryo-EM at 200 keV. Journal of Structural Biology X. 4, 100020-100029 (2020).
- Mori, T., et al. C-Glycoside metabolism in the gut and in nature: Identification, characterization, structural analyses and distribution of C-C bond-cleaving enzymes. Nature Communications. 12 (1), 6294(2021).
- Hamdi, F., et al. 2.7 Å cryo-EM structure of vitrified M. musculus H-chain apoferritin from a compact 200 keV cryo-microscope. PLoS One. 15 (5), 0232540(2020).
- Abbott, S., et al. EMDB web resources. Current Protocols in Bioinformatics. 61 (1), 1-12 (2018).
- Punjani, A., Rubinstein, J. L., Fleet, D. J., Brubaker, M. A. CryoSPARC: algorithms for rapid unsupervised cryo-EM structure determination. Nature Methods. 14 (3), 290-296 (2017).
- Scheres, S. H. W. RELION: Implementation of a Bayesian approach to cryo-EM structure determination. Journal of Structural Biology. 180 (3), 519-530 (2012).
- Gómez-Blanco, J., et al. Using Scipion for stream image processing at Cryo-EM facilities. Journal of Structural Biology. 204 (3), 457-463 (2018).
- Tegunov, D., Cramer, P. Real-time cryo-electron microscopy data preprocessing with Warp. Nature Methods. 16 (11), 1146-1152 (2019).
- Lander, G. C., et al. Appion: an integrated, database-driven pipeline to facilitate EM image processing. Journal of Structural Biology. 166 (1), 95-102 (2009).
- Carragher, B., et al. Current outcomes when optimizing 'standard' sample preparation for single-particle cryo-EM. Journal of Microscopy. 276 (1), 39-45 (2019).
- Drulyte, I., et al. Approaches to altering particle distributions in cryo-electron microscopy sample preparation. Acta Crystallographica. Section D, Structural Biology. 74 (6), 560-571 (2018).
- Bloch, M., Santiveri, M., Taylor, N. M. I. Membrane protein Cryo-EM: Cryo-grid optimization and data collection with protein in detergent. Methods in Molecular Biology. 2127, 227-244 (2020).
- Cheng, A., et al. Leginon: New features and applications. Protein Science. 30 (1), 136-150 (2021).
- Schorb, M., et al. Software tools for automated transmission electron microscopy. Nature Methods. 16 (6), 471-477 (2019).
- Li, X., et al. Electron counting and beam-induced motion correction enable near-atomic-resolution single-particle cryo-EM. Nature Methods. 10 (6), 584-590 (2013).
- Alewijnse, B., et al. Best practices for managing large CryoEM facilities. Journal of Structural Biology. 199, 225-236 (2017).
- Baldwin, P. R., et al. Big data in cryoEM: automated collection, processing and accessibility of EM data. Current Opinion in Microbiology. 43, 1-8 (2018).
- Guo, H., et al. Electron-event representation data enable efficient cryoEM file storage with full preservation of spatial and temporal resolution. International Union of Crystallography Journal. 7, 860-869 (2020).
- Weis, F., Hagen, W. J. H. Combining high throughput and high quality for cryo-electron microscopy data collection. Acta Crystallographica. Section D, Structural Biology. 76 (8), 724-728 (2020).
- Zhou, H., Chiu, W. Determination of icosahedral virus structures by electron cryomicroscopy at subnanometer resolution. Advances in Protein Chemistry. 64, 93-124 (2005).
- DeRosier, D. J. Correction of high-resolution data for curvature of the Ewald sphere. Ultramicroscopy. 81 (2), 83-98 (2000).
- Wolf, M., DeRosier, D. J., Grigorieff, N. Ewald sphere correction for single-particle electron microscopy. Ultramicroscopy. 106 (4-5), 376-382 (2006).
- Leong, P. A., Yu, X., Hong Zhou, Z., Jensen, G. J. Correcting for the ewald sphere in high-resolution single-particle reconstructions. Methods in Enzymology. 482, 369-380 (2010).
- Zivanov, J., et al. New tools for automated high-resolution cryo-EM structure determination in RELION-3. eLife. 7, 42166(2018).
重印与许可
