标准膜饲法(SMFA)被认为是评估和鉴定潜在抗疟化合物的金标准。该人工饲喂系统用于感染蚊子,以进一步评价这些化合物对Plasmodium falciparum寄生虫感染强度和流行率的影响。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
疟疾仍然是全球最具破坏性的疾病之一,迄今为止,非洲地区仍占全球所有病例的94%。这种寄生虫病需要一种原生动物寄生虫和一个 按蚊属 蚊媒和脊椎动物宿主。 按蚊属 属包含500多个物种,其中60种已知为该寄生虫的传播媒介。 疟原虫 寄生虫属包含250个物种,其中48个参与疾病传播。此外, 恶性疟原虫 近年来,该寄生虫导致了撒哈拉以南非洲约99.7%的疟疾病例。
配子体是寄生虫有性阶段的一部分,当雌性蚊子叮咬受感染的人类宿主时会被摄入。在蚊子中肠内有利的环境条件下,寄生虫在蚊体内的进一步发育得以促进。在此过程中,雌雄配子发生融合,并形成可运动的动合子。动合子侵入蚊子中肠上皮,成熟的动合子发育为卵囊,卵囊进而产生可运动的子孢子。这些子孢子迁移至蚊子的唾液腺,并在蚊子吸食血液时被注入新的宿主体内。
为了药物发现的目的,在标准膜饲法(SMFA)中,蚊子被人工感染了含有配子体的血液。为了检测蚊体内的感染情况和/或评估抗疟化合物的效果,感染后取出雌蚊的中肠,并用汞溴红染色。该方法可增强在显微镜下对卵囊的可视化检测,从而准确测定卵囊的感染率和感染强度。
引言
疟疾是全球最具破坏性的疾病之一,至今仍对多个国家构成重大威胁,尤其是非洲地区的国家,其病例数约占全球总数的95%1该疾病由一种原生动物寄生虫引起,并与其共同导致 按蚊属 蚊媒,这些元凶可对人类宿主造成严重危害2更具体地说, falciparum 物种的 疟原虫 疟原虫属导致了撒哈拉以南非洲约99%的疟疾病例1此外,还有几个主要的 按蚊属 蚊媒(包括 An. gambiae Giles An. arabiensis Patton An. coluzzii Coetzee & Wilkerson 新种,以及 An. funestus Giles)在全球范围内可归因于超过95%的寄生虫传播3,4,5,6,7,8要建立理想的寄生虫-媒介共生关系,蚊媒必须对寄生虫易感,并具备传播该寄生虫的能力。9此外,媒介和寄生虫均需克服物理屏障,以形成理想的感染组合——蚊媒应能够支持寄生虫的发育,而寄生虫则应具备克服宿主防御机制的能力。10,11.
P. falciparum 寄生虫的有性阶段——配子细胞,在媒介与寄生虫之间的传播过程中起着关键作用12。有性发育在体内(in vivo)进行,配子细胞形成过程(gametocytogenesis)指的是成熟的配子细胞分化为可运动的雄性微配子和雌性大配子的过程13。另一个在蚊体内发生的过程是出丝现象(exflagellation),即雄性配子细胞转化为配子,并从蚊吸血时摄入的红细胞中释放出来11。研究表明,蚊中肠环境的有利变化可能促进出丝过程的发生14。出丝完成后,雄性和雌性配子融合形成合子13。由合子发育产生可运动的动合子(ookinete),其从中肠内的血餐中迁移至蚊中肠上皮13。在此处,动合子进一步成熟并形成卵囊(oocyst),卵囊继而产生可运动的子孢子(sporozoites)13,15。子孢子随后迁移至蚊的唾液腺,当蚊再次叮咬宿主吸血时,这些子孢子便被注入宿主的血液循环中15。
疟疾防控措施结合了病媒控制策略和有效抗疟药物的使用,在抗击该疾病方面已变得至关重要15。随着疟原虫和蚊虫耐药性的上升,发现新型抗疟化合物的紧迫性日益增加16。因此,对阻断传播的化合物进行体内评价具有重要意义16。在开发出此类有效的传播阻断药物后,标准膜饲法(SMFA)已被用于评估这些化合物是否能够抑制P. falciparum在按蚊(Anopheles)体内的有性发育17,18,19。自20世纪70至80年代以来,该实验已被公认为评估传播阻断效果的金标准20,21。与其他需要专用设备的检测方法(如RT-qPCR)相比,该方法成本更低。此外,实验无需使用患者样本。该实验还包括将含有配子体的血液供给雌性蚊虫,随后解剖蚊虫以判断其中肠是否存在卵囊发育21。这使得研究人员能够对配子体进行定量,并检测因化合物作用而产生的畸形卵囊22。要将一种化合物归类为有效,必须评估蚊虫中肠内卵囊的流行率(即中肠中至少含有一个卵囊的蚊虫所占比例)和卵囊数量(强度),以判断其对感染的抑制效果17,21,22。
访问受限。请登录或开始试用以查看此内容。
方案
请参见图1以了解本方案的示意图。采集和使用人血的伦理许可已由比勒陀利亚大学健康科学伦理委员会(506/2018)批准。
1. 配子体培养
注意:在进行标准膜饲法(SMFA)之前,需在比勒陀利亚大学制备疟原虫配子体培养物(完整实验方案详见 Reader 等人22)。
- 准备含有 NF54 寄生虫株第 V 期配子体的配子体培养物。
- 确保培养物的配子体血症率为 1.5% 至 2.5%,红细胞比容为 50%,使用 A+ 男性血清,并添加新鲜红细胞。
- 将培养物分装至不同的烧瓶中,在进行 SMFA 前 48 小时,为每组相应处理分别加入 2 µM 的各化合物。对照组不作处理。
- 在进行 SMFA 前不久评估配子体培养物,以确认雄性配子的出丝现象,并确保雌雄比例为 3:1。
2. 通过 SMFA 对蚊子进行人工感染
注意:生物安全:感染的蚊子应饲养在具有受限访问权限的生物安全二级(BSL2)设施中。
- 使用口吸器将25只未吸血的雌性An. gambiae蚊子放入一个350 mL的饲喂杯中。对每个处理组饲喂杯进行相同操作,并根据其作为对照组或处理组的用途进行清晰标记。根据技术重复数确定每种处理所需的饲喂杯数量。
注意:在典型的传播阻断化合物评估实验中,使用5至7日龄的实验室饲养蚊子。在进行标准膜饲喂法(SMFA)前,将蚊子饥饿处理3-4小时或更长时间,有助于促进其摄取血液。 - 将玻璃饲喂装置连接至水浴系统,并将温度维持在37 °C。
注意:玻璃饲喂装置包含两个支臂,通过硅胶管与水浴系统相连(图2)。饲喂器的中空结构允许水流循环,从而维持血液温度。 - 用自来水冲洗牛肠(或合成膜),并将其裁剪成适合每个饲喂器的大小。将膜覆盖在每个饲喂器上,并用橡皮筋固定。
注意:由于牛肠购自当地肉铺,作为食品向公众出售,因此无需伦理审批。 - 将感染杯置于饲喂器下方,使膜覆盖在杯网顶部。
- 向对照组饲喂杯的饲喂器中加入1 mL含有配子体的感染血液,向各对应化合物处理组的饲喂器和饲喂杯中加入含化合物的配子体感染血液。
- 让蚊子在无遮盖条件下自由吸血约40分钟。
注意:饲喂过程在昆虫饲养室环境(25 °C,80%相对湿度)下避光进行。饲喂器直径约为13 mm。 - 饲喂结束后,从饲喂杯上取下饲喂器,冲洗饲喂器,并用次氯酸盐处理残留血液。
- 通过将所有蚊子置于冰上击晕(1-2分钟),移除未吸血的蚊子,并将未吸血蚊子与已摄取血餐的蚊子分离。观察腹部是否肿胀且呈红色(提示含有血液),以区分已吸血并完全饱食的蚊子与未吸血蚊子(图3)。
- 将感染杯放入生物安全柜(补充图S1)中,为每个饲喂杯提供10%的蔗糖水垫,并每隔一天更换一次蔗糖水,持续8-10天。
3. 感染蚊虫的制备
注意:本实验步骤需在生物安全二级(BSL2)感染室内进行。仅允许经过授权和培训的工作人员进入饲养感染蚊虫的感染室。蚊虫饲养在经过改造的容器中,容器仅设有一个入口,当移除口吸管时,该入口会自动封闭。这些容器被置于透明的热塑性塑料箱内,以防止蚊虫逃逸。该塑料箱位于感染室内双门系统的内侧。必须制定针对意外暴露于感染蚊虫的全部必要处理规程(补充文件 S1)。这些规程因国家而异,并取决于所在机构的具体要求。
- 在感染喂食后的第8-10天,将感染的蚊子置于冰上使其昏迷,然后转移至含有70%乙醇的标记试管中(确保对照组和处理组的蚊子分开存放)。
- 在离开感染室前,确保所有蚊子均已死亡。
4. 感染蚊子的解剖
注意:本实验步骤在实验室中进行。
- 将蚊虫转移至铺有滤纸的标记培养皿中,保持对照组与实验组分开。
- 在已标记对照组/实验组的显微镜载玻片上滴加一滴磷酸盐缓冲液(PBS),并将滤纸上的一只蚊子转移至PBS中。
- 用解剖针固定蚊子的胸部,同时拉动以从固定住的感染样本中取出中肠th 用镊子夹住腹部节段。
- 肠道暴露并可见后,寻找马氏管(Malpighian tubules)图4A,B) 以区分肠道与卵巢。将其从 PBS 中取出,转移到新的载玻片上的 0.1% 汞溴红液滴中,染色 8–10 分钟。
- 染色后,将盖玻片置于染色后的肠道样本上,在20x–40x放大倍数的明场照明下观察肠道图 4C,D).
- 记录对照组和处理组每只蚊子中肠中卵囊的存在情况及数量(补充文件 S2).
- 使用公式(1):
%待定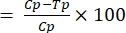 (1)
其中,TBA = 传播阻断活性(卵囊流行率的降低);p = 卵囊流行率;C = 对照组;T = 处理组。 - 使用公式(2):
%TRA = (2)
其中,TRA = 传播阻断活性(卵囊强度的降低);I = 卵囊强度;C = 对照组;T = 处理组。
注意:TBA 可能不会显著降低,但 TRA 可能会观察到显著差异,反之亦然。这取决于所评估的化学物质。 - 使用非参数方法进行统计分析 t-检验(Mann-Whitney)。
访问受限。请登录或开始试用以查看此内容。
结果
共解剖了47个对照样本,平均卵囊流行率为89%,中肠内平均强度为每中肠9.5个卵囊(表1,此前已发表22)。对于化合物MMV1581558,样本量达到共42个样本,卵囊流行率为36%,平均强度为1.5个卵囊。这表明在全部三个生物学重复中,卵囊流行率降低了58%,传播抑制活性(TRA)达到82%(表1)。
MMV1581558 的 %TRA 和 %TBA 均高于 50%;因此,该化合物可被视为具有阻断和降低传播潜力的候选药物。在强度和流行率方面的统计分析均显示,对照组与 MMV1581558 组之间存在显著差异。p < 0.0001) (表1 和 图5).
访问受限。请登录或开始试用以查看此内容。
讨论
为了成功实施本方案,即使该过程可能繁琐且费力,也必须认真对待每一步骤。其中最重要的步骤之一是在开始SMFA之前,确保配子体培养物质量良好,并含有成熟的配子体,且雄雌比例适当23,24。在SMFA过程中,还需严格维持配子体培养物的适宜温度,以防止雄性配子在进入蚊体前过早出丝。另一个对建立成功人工感染至关重要的因素是确保雌蚊具有强烈的吸血欲望,因为蚊子的吸血行为会显著影响实验结果25。为了确保仅对完全吸血的蚊子进行卵囊发育后的解剖,关键是要仔细剔除每个饲养杯中所有未吸血的蚊子,否则将严重影响实验结果。中肠解剖是另一个重要步骤,以保证有足够数量的样本可用于后续分析。中肠组织较易撕裂,可能导致其内容物外溢。本方案中的另一个关键步骤是对中肠进行染色,这对于在显微镜下检测和计数卵囊至关重要。
该方法的一些局限性包括蚊虫样本量较小,这可能影响传播阻断活性(TRA)估计的准确性和变异性20
访问受限。请登录或开始试用以查看此内容。
披露
作者声明无利益冲突。
致谢
作者谨此感谢来自 比勒陀利亚大学生物化学、遗传学与微生物学系,可持续疟疾防控研究所,提供配子体培养物的培养与供应。寄生虫菌株由该部门提供(不属本出版物内容)。同时感谢南非科技部(DSI)与国家研究基金会(NRF);南非研究讲席计划(UID 64763 至 LK,UID 84627 至 LMB);NRF 实践社群计划(UID 110666 至 LMB 和 LK);以及南非医学研究理事会战略健康创新合作伙伴关系(SHIP)提供的资金支持,资金来源于 DSI。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 牛肠道/ | 屠宰 | ||
| 化合物 MMV1581558 | MMV | 大流行应对试剂盒 | |
| 解剖针 | WRIM | 定制制作 | |
| falcon 管 | Lasec | ||
| 玻璃饲喂器 | Glastechniek Peter Coelen B.V. | ||
| Graphpad Prism (8.3.0) | Graphpad | ||
| 汞溴红 | Merck (Sigma-Aldrich) | 129-16-8 | |
| 显微镜载玻片 | Merch (Sigma-Aldrich) | S8902 | |
| Parafilm 封口膜 | Cleansafe | ||
| PBS 片剂 | ThermoFisher Scientific | BP2944 | |
| 有机玻璃生物安全柜 | 威特沃特斯兰德大学(Wits University) | 由威特大学承包商制作 | |
| 塑料杯(350 mL) | Plastic Land |
参考文献
- World Malaria Report. World Health Organization. , Available from: https://www.who.int/publications/i/item/9789240040496 (2021).
- Takken, W., Verhulst, N. O. Host preferences of blood feeding mosquitoes. Annual Review of Entomology. 58, 433-453 (2013).
- Gillies, M. T., Coetzee, M. Supplement to the Anophelinae of Africa south of the Sahara Afrotropical region. Publications of the South African Institute for Medical Research. 55, 1(1987).
- Gillies, M. T., De Meillon, B. The Anophelinae of Africa south of the Sahara. Publications of the South African Institute for Medical Research. 54, (1968).
- Antonio-Nkondjio, C., et al. Complexity of the malaria vectorial system in Cameroon: contribution of secondary vectors to malaria transmission. Journal of Medical Entomology. 43, 1215-1221 (2006).
- Sinka, M. E., et al. The dominant Anopheles vectors of human malaria in Africa, Europe and the Middle East: occurrence data, distribution maps and bionomic précis. Parasites and Vectors. 3, 117(2010).
- Coetzee, M., Hunt, R. H., Wilkerson, R., Della Torre, A., Coulibaly, M. B., Besansky, N. J. Anopheles coluzzii and Anopheles amharicus, new members of the Anopheles gambiae complex. Zootaxa. 3619, 246-274 (2013).
- Kyalo, D., Amratia, P., Mundia, C. W., Mbogo, C. M., Coetzee, M., Snow, R. W. A geo-coded inventory of anophelines in the Afrotropical Region south of the Sahara: 1898-2016. Wellcome Open Research. 2, 57(2017).
- Cohuet, A., Harris, C., Robert, V., Fontenille, D. Evolutionary forces on Anopheles: What makes a malaria vector. Trends in Parasitology. 309, (2009).
- Weathersby, A. B. The role of the stomach wall in the exogenous development of Plasmodium gallinaceum as studies by means of haemocoel injections of susceptible and refractory mosquitoes. The Journal of Infectious Diseases. 91, 198-205 (1952).
- Ally, A. S. I., Vaughan, A. M., Kappe, S. H. I. Malaria parasite development in the mosquito and infection of the mammalian host. The Annual Review of Microbiology. 63, 195-221 (2009).
- Delves, M. J., et al. Male and female Plasmodium falciparum mature gametocytes show different responses to antimalarial drugs. American Society for Microbiology Journal. , (2013).
- Sinden, R. E. Sexual development of malarial parasites in their mosquito vector. Transactions of the Royal Society of Tropical Medicine and Hygiene. 75, (1981).
- Garcia, G. E., Wirtz, R. A., Barr, J. R., Woolfitt, A. Xanthurenic acid induces gametogenesis in Plasmodium, the malaria parasite. Journal of Biological Chemistry. 15, 12003-12005 (1998).
- Oaks, S. C. Jr, Mitchell, V. S., Pearson, G. W., et al. Malaria: Obstacles and Opportunities. , National Academic Press. ISBN 0-309-54389-4 (1991).
- Le Manach, C., et al. Identification and profiling of a novel Diazaspirol[3.4]octane chemical series active against multiple stages of the human malaria parasite Plasmodium falciparum and optimization efforts. Journal of Medicinal Chemistry. 64, 2291-2309 (2021).
- Cibulskis, R. E., et al. Malaria: global progress 2000-2015 and future challenges. Infect Diseases of Poverty. 5, 61(2016).
- Smith, T. A., Chitnis, N., Briet, O. J., Tanner, M. Uses of mosquito-stage transmission-blocking vaccines against Plasmodium falciparum. Trends in Parasitology. 27, 190-196 (2011).
- Boyd, M. F. Epidemiology: factors related to the definitive host. Malariology. Boyd, M. F. , W.B. Saunders. Philadelphia. 608-697 (1949).
- Ponnudurai, T., van Gemert, G. J., Bensink, T., Lensen, A. H., Meuwissen, J. H. Transmission blockade of Plasmodium falciparum: its variability with gametocyte numbers and concentration of antibody. Transactions of The Royal Society of Tropical Medicine. 81, 491-493 (1987).
- Rutledge, L. C., Ward, R. A., Gould, D. J. Studies on the feeding response of mosquitoes to nutritive solutions in a new membrane feeder. Mosquito News. 24 (4), (1964).
- Reader, J., et al. Multistage and transmission-blocking targeted antimalarials discovered from the open-source MMV Pandemic Response Box. Nature Communications. 12, 269(2021).
- Bousema, T., et al. Mosquito feeding assays for natural infections. PLoS One. 7 (8), (2012).
- Churcher, T., et al. Measuring the blockade of malaria transmission - An analysis of the standard membrane feeding assay. International Journal for Parasitology. 42, 1037-1044 (2012).
- Medley, G. F., et al. Heterogeneity in patterns of malarial oocyst infections in the mosquito vector. Parasitology. 106, 441-449 (1993).
- Miura, K., et al. Transmission-blocking activity is determined by transmission reducing activity and number of control oocysts in Plasmodium falciparum standard membrane-feeding assay. Vaccine. 34, 4145-4151 (2016).
- Sattabongkot, J., Maneechai, N., Rosenberg, R. Plasmodium vivax: gametocyte infectivity of naturally infected Thai adults. Parasitology. 102 (01), 27-31 (1991).
- Vallejo, A. F., Garcia, J., Amado-Garavito, A. B., Arevalo-Herrera, M., Herrera, S. Plasmodium vivax gametocyte infectivity in sub-microscopic infections. Malaria Journal. 15 (1), 48(2016).
- Ponnudurai, T., Lensen, A. H. W., van Gemert, G. J. A., Bolmer, M. G., Meuwissen, J. H. E. Feeding behavior and sporozoite ejection by infected Anopheles stephensi. Transactions of the Royal Society of Tropical Medicine and Hygiene. 85, 175-180 (1991).
- Miura, K., et al. Qualification of standard membrane-feeding assay with Plasmodium falciparum malaria and potential improvements for future assays. PLoS One. 8, 57909(2013).
- Griffin, P., et al. Safety and reproducibility of a clinical trial system using induced blood stage Plasmodium vivax infection and its potential as a model to evaluate malaria transmission. PLoS Neglected Tropical Diseases. 10, 0005139(2016).
- Delves, M. J., Sinden, R. E. A semi-automated method for counting fluorescent malaria oocysts increases the throughput of transmission blocking studies. Malaria Journal. 9, 35(2010).
- vander Kolk, M., et al. Evaluation of the standard membrane feeding assay (SMFA) for the determination of malaria transmission-reducing activity using empirical data. Parasitology. 130, 13-22 (2005).
- van der Kolk, M., de Vlas, S. J., Sauerwein, R. W. Reduction and enhancement of Plasmodium falciparum transmission by endemic human sera. International Journal for Parasitology. 36, 1091-1095 (2006).
- Singh, M., et al. Plasmodium's journey through the Anopheles mosquito: A comprehensive review. Biochimie. 181, 176-190 (2021).
- Vos, M. W., et al. A semi-automated luminescence based standard membrane feeding assay identifies novel small molecules that inhibit transmission of malaria parasites by mosquitoes. Scientific Reports. 5, 18704(2015).
- Azevedo, R., et al. Bioluminescence method for in vitro screening of Plasmodium transmission-blocking compounds. Antimicrobial Agents and Chemotherapy. 61, (2017).
- Okell, L. C., Bousema, T., Griffin, J. T., Ouedraogo, A. L., Ghani, A. C., Drakeley, C. J. Factors determining the occurrence of submicroscopic malaria infections and their relevance for control. Nature Communications. 3, 1237(2012).
- Pasay, C. J., et al. Piperaquine monotherapy of drug-susceptible Plasmodium falciparum infection results in rapid clearance of parasitemia but is followed by the appearance of gametocytemia. The Journal of Infectious Diseases. 214, 105-113 (2016).
- Stone, W. J., et al. A scalable assessment of Plasmodium falciparum transmission in the standard membrane-feeding assay, using transgenic parasites expressing green fluorescent protein-luciferase. The Journal of Infectious Diseases. 210, 1456-1463 (2014).
- Hasan, A. U., et al. Implementation of a novel PCR based method for detecting malaria parasites from naturally infected mosquitoes in Papua New Guinea. Malaria Journal. 8, 182(2009).
- Stone, W. J., et al. The relevance and applicability of oocyst prevalence as a read-out for mosquito feeding assays. Scientific Reports. 3, 3418(2013).
- Marquart, L., Baker, M., O'Rourke, P., McCarthy, J. S. Evaluating the pharmacodynamic effect of antimalarial drugs in clinical trials by quantitative PCR. Antimicrobial Agents and Chemotherapy. 59, 4249-4259 (2015).
- McCarthy, J. S., et al. tolerability, pharmacokinetics, and activity of the novel long-acting antimalarial DSM265: a two-part first-in-human phase 1a/1b randomised study. TheLancet Infectious Diseases. 17, 626-635 (2017).
访问受限。请登录或开始试用以查看此内容。
重印与许可
标签
