本方案描述了一种基于iSCAT的图像处理与单粒子追踪方法,可同时研究大分子与脂质膜相互作用时的分子质量及其扩散行为。文中提供了样品制备、质量-对比度转换、视频采集和后期处理的逐步操作指南,并给出了避免潜在问题的建议。
本文内容
摘要
摘要
大分子在脂质膜上及其与脂质膜之间的短寿命或瞬时相互作用——这一界面是众多重要生物反应发生的场所——本质上难以通过标准的生物物理方法进行检测。质量敏感型粒子追踪技术(MSPT)的引入,为对这类过程进行深入的定量表征迈出了重要一步。从技术上讲,这一进展得益于基于干涉散射显微技术(iSCAT)的质量光度法(MP)的发展。当背景去除策略被优化以揭示膜相关粒子的二维运动时,该技术能够实时分析生物膜上无标记大分子的扩散行为和分子质量。本文介绍了一种执行和分析膜相关体系质量敏感型粒子追踪的详细实验方案。在商用质量光度仪上进行的测量可达到毫秒级的时间分辨率,并且根据不同的MP系统,质量检测下限可低至50 kDa。为了展示MSPT在深入分析膜催化大分子动力学方面的普遍潜力,本文展示了典型蛋白质体系(如天然膜相互作用蛋白annexin V)的研究结果。
引言
过去,生物膜仅被视为抵御各种外界物理条件的屏障,而如今则被认为是具有功能的实体和催化平台1,2。由于脂质界面能够对膜相关大分子反应作出响应,实现信号的定位、放大和定向传导,因此在膜运输和信号级联等多种细胞过程中发挥着关键作用3,4,5。作为稳定复合物组装的成核位点,膜结合通常依赖于膜结合形式与胞质形式的大分子之间的动态平衡,因而具有瞬时性6,7。
尽管膜相关大分子反应在生物学中具有重要意义,但迄今为止,开发能够实时获取其组成、空间和时间异质性的方法仍具挑战性7,8。为了揭示其潜在的分子过程,两个实验方面至关重要:足够的时间分辨率和单粒子灵敏度。因此,诸如光漂白后荧光恢复(FRAP)这类集合平均技术,以及更为灵敏的荧光相关光谱(FCS),均存在局限性,因为它们在很大程度上将空间信息与时间信息分离开来9。因此,表征单个分子动力学的一个重要进展是结合高灵敏度显微镜的单粒子追踪(SPT)技术的出现。特别是,已有两种SPT方法在此方面被证明是有效的。首先,使用荧光染料作为标记物及相应的荧光检测系统,实现了纳米级定位精度和毫秒级时间分辨率10,11,12。其次,基于散射的检测方法利用金纳米颗粒,将定位精度和时间分辨率分别提升至亚纳米和微秒量级13,14,15,16。尽管这两种方法具有诸多优势,并对理解膜相关系统的机制做出了重要贡献17,18,但迄今为止,这两种技术仍存在局限: 它们需要对标记目标分子进行标记,这可能会干扰其天然行为,并且 无法检测膜相关粒子的分子组成19,20。
最近,一种基于新型干涉散射(iSCAT)的技术——质量光度法(mass photometry, MP)的出现,已成功克服了上述两项局限21,22,23。该技术可通过生物分子在玻璃界面上产生的iSCAT对比信号,测定其在溶液中的质量分布。然而,为了实现对在脂质膜上扩散的可移动分子的检测与表征,还需开发更为复杂精细的图像分析方法。目前这一挑战已得到成功解决,实现了对单个未标记生物分子在脂质界面上扩散过程的检测、追踪及其分子质量的测定24,25。该技术被称为动态质量光度法或质量敏感性粒子追踪(dynamic mass photometry 或 mass-sensitive particle tracking, MSPT),现可通过对被追踪实体分子质量的实时变化进行直接记录,评估复杂大分子间的相互作用,从而为膜相关分子动力学的机制性研究开辟了新的途径。
本文介绍了进行单分子跟踪(MSPT)所需的样本制备、成像及数据分析流程的详细方案。特别讨论了样本要求以及在测量和分析过程中可能出现的潜在问题。此外,通过多个代表性结果展示了该方法在分析膜相互作用大分子体系方面的独特潜力。
方案
1. 样品制备
- 多层囊泡(MLVs)的制备
- 根据所需的脂质混合物和所需悬浮体积,计算氯仿溶解的脂质含量。
注意:建议在重悬(反应)缓冲液中脂质的最终囊泡浓度为 4 mg/mL。 - 使用配备玻璃吸头的正向置换移液器,将计算好体积的脂质移入1.5 mL玻璃小瓶中。
- 在氮气微弱气流下蒸发脂质溶剂,同时持续旋转离心管,以确保脂质均匀分布在玻璃管壁上。
- 将小瓶置于持续的氮气气流下15分钟,以确保溶剂完全蒸发。
- 在真空干燥器中通过真空干燥再持续一小时,以去除残留的氯仿。
- 用所需的重悬(反应)缓冲液重新水合脂质混合物,并充分涡旋振荡悬浮液,直至瓶壁上的脂质膜完全溶解。
注意:反应缓冲液应确保蛋白质的活性与稳定性。本研究中使用的反应缓冲液包含 50 mM Tris-HCl(pH = 7.5)、150 mM KCl 和 5 mM MgCl₂。2注意,用于稀释脂质或蛋白质的任何缓冲液均需过滤,以去除干扰性的颗粒杂质(见步骤5)。
- 根据所需的脂质混合物和所需悬浮体积,计算氯仿溶解的脂质含量。
- 小单层囊泡(SUVs)的制备
- 对于脂质重悬液的连续冻融循环(步骤1.1.6),在电热板上将500 mL水煮沸(置于烧杯中,温度控制在70 °C至99 °C之间),并准备一个盛有液氮的容器。
- 将脂质重悬液在液氮中速冻。将冻存管转移至盛有热水的烧杯中,直至溶液完全解冻。重复此冻融循环8-10次,或直至原先浑浊的混合物变得澄清。
注意:使用适当的防护服和设备,例如护目镜、手套和镊子,以避免与液氮、冷冻的脂质小瓶或沸水发生直接接触。 - 为获得单一分散的囊泡分布,组装脂质挤出器,并使用反应缓冲液检测其完整性,确保无泄漏。
注意:如果观察到泄漏,请仔细重新组装脂质挤出器,直至无缓冲液渗出。 - 通过孔径为50 nm的核孔膜将脂质悬浮液挤出37次26穿膜次数应为奇数,以确保最终的SUV混合物穿过核孔膜,从而去除脂质聚集体或多层囊泡。所得挤出囊泡将用于后续支撑脂双层的制备(见步骤6和7)。
注意:SUV 也可以通过超声处理再水化的脂质混合物来制备。然而,制备 通过 挤出法可提供更均一的单分散小单层囊泡(SUVs)分布,有利于在支撑脂双层形成过程中囊泡的破裂。挤出后的囊泡可在冰箱中最多保存3天。
2. 显微镜载玻片的清洗
- 将相同数量的显微镜载玻片(No. #1.5;厚度为 0.17 mm,尺寸分别为 24 mm × 60 mm 和 24 mm × 24 mm)均匀分布于聚四氟乙烯(PTFE)显微镜载片架中。
- 将 PTFE 载片架转移至盛有超纯水的烧杯中,在室温下超声处理 15 分钟。
注意:根据烧杯的大小,需调整水量以完全浸没 PTFE 载片架。 - 使用镊子将载片架从烧杯中取出,倒掉水后加入超纯异丙醇。将载片架放入盛有异丙醇的烧杯中,再次超声处理 15 分钟。
注意:根据烧杯的大小,需调整异丙醇的体积以完全浸没 PTFE 载片架。 - 将异丙醇更换为超纯水,对盛有载片架的烧杯再次进行 15 分钟的超声处理。
- 将 PTFE 载片架从烧杯中取出,并在持续的氮气或压缩空气气流下吹干载片架中的显微镜载玻片。
注意:为确保盖玻片的充分清洁,操作时应佩戴手套,使用洁净的烧杯,并用石蜡膜覆盖每个烧杯。否则,残留的灰尘可能在 MSPT 测量过程中引起显著的背景波动。
3. 显微镜载玻片的亲水化处理
注意:为了获得均匀且流动的支撑脂双层,载玻片的亲水化处理至关重要,必须在流动池组装之前立即进行。
- 将仅含有 24 mm × 60 mm 显微镜载玻片的聚四氟乙烯(PTFE)支架放入等离子清洗仪中,以氧气为工艺气体进行等离子清洗(本研究采用的参数:30% 功率,0.3 mbar 氧气压力,清洗 30 秒;等离子清洗仪的具体信息见材料表)。
注意:为了获得具有流动性的脂膜,需针对不同仪器优化等离子清洗参数,如功率、氧气压力和清洗时间。建议使用荧光标记的脂质来验证膜的流动性,该流动性可通过光漂白后荧光恢复(FRAP)实验进行定量评估27。若参数未针对特定实验装置进行优化,膜的扩散能力可能因膜流动性降低而受损。
4. 流动室的组装
- 在组装流动池之前,准备好以下组件:清洁的显微镜载玻片(24 mm × 24 mm)、亲水化处理的显微镜载玻片(24 mm × 60 mm)、铝箔、扁平纸板、手术刀和双面胶带。
- 用铝箔包裹扁平纸板。
- 将清洁的 24 mm × 24 mm 显微镜载玻片均匀地铺在铝箔上,各载玻片之间保持足够间距。
- 在载玻片的上下边缘粘贴双面胶带条。
- 使用手术刀将每张显微镜载玻片裁下,使其能够从铝箔上取下。最终每张载玻片的上下边缘应附有双面胶带条(见图1)。
- 将带有两条双面胶带的 24 mm × 24 mm 载玻片粘附到亲水化处理的 24 mm × 60 mm 载玻片上,从而在较小和较大的载玻片之间形成流动通道。
注意:为确保流动池清洁,操作过程中应始终佩戴手套,并确保工作台无尘。
5. 反应缓冲液的过滤
- 使用0.45 µm醋酸纤维素膜对所有反应缓冲液进行无菌过滤,以确保在MSPT测量期间背景信号最小。
注意:如果实验需要存在核苷酸(如ATP),需注意可能导致背景信号增加。建议仅使用能维持蛋白活性的最低必要用量。
6. 支持性脂质双层(SLB)的形成
注意:建议在质量光度计上进行支撑性脂质双层的形成,以直观确认囊泡成功铺展以及未融合囊泡的完全去除。
- 将新制备的小型单层囊泡(SUVs)(详见步骤1)用所需的反应缓冲液稀释至终浓度为0.4 mg/mL。可选地,为促进囊泡破裂,可在囊泡悬液中加入2 mM CaCl2。
注意:二价阳离子可能导致某些脂质(如PiP2)发生聚集。对于含有此类脂质的混合物,应避免在重悬缓冲液中使用CaCl2或其他二价阳离子以促进囊泡破裂。若实验需要,可在支撑脂双层成功形成后添加二价阳离子。 - 将50 µL囊泡悬液注入流动池(步骤4),并在室温下孵育2分钟。
注意:可通过一小块吸水纸将缓冲液、囊泡或蛋白溶液引入流动池。此外,也可使用机械泵系统进行操作。 - 每次用200 µL反应缓冲液重复冲洗流动池至少三次,以去除未融合的囊泡。
注意:必须彻底清除流动池中的未融合囊泡,以确保在进行MSPT测量时获得稳定的背景信号。
7. 标准曲线的生成
注意:为了将检测到的颗粒的对比度转换为分子质量,需要使用已知大小的蛋白质对其信号进行校准。建议调整标准蛋白质的大小范围,以覆盖目标体系预期的分子质量范围。
- 含有半胱氨酸残基的标准蛋白的生物素化
- 根据制造商说明书计算与标准蛋白反应所需的马来酰亚胺-生物素(maleimide-biotin)的适当用量。
- 将标准蛋白与确定体积的马来酰亚胺-生物素在室温下孵育1小时。
- 为去除结合产物中未反应的马来酰亚胺-生物素,使用适合目标蛋白的凝胶过滤层析柱进行尺寸排阻层析。
- 使用Bradford法测定蛋白浓度。
注意:如需保存标准蛋白以用于后续实验,应将蛋白分装成单次使用量,用液氮速冻后于-80 °C保存。
- 标准蛋白的测量以绘制校准曲线
- 在流动池中,使用含有0.01 mol% (v/v) 生物素化帽PE(Biotinyl Cap PE,1,2-二油酰基-sn-甘油-3-磷脂酰乙醇胺-N-帽生物素)的0.4 mg/mL挤出小单层囊泡(SUVs)制备支撑脂双层(具体步骤详见步骤1和步骤6)。
- 向流动池中的脂双层加入50 µL浓度为2.5 nM的二价链霉亲和素(divalent streptavidin),孵育10分钟。
注意:二价链霉亲和素的表达与纯化方法详见Howarth等人的研究28。也可使用四价链霉亲和素(tetravalent streptavidin),但使用二价链霉亲和素可减少生物素化脂质与连接有生物素基团的标准蛋白之间的可能反应化学计量比,从而有助于明确物种归属。 - 用100 µL反应缓冲液洗去未结合的二价链霉亲和素。
- 向流动池中的脂双层加入50 µL浓度为100 nM的生物素偶联标准蛋白,孵育2分钟。
注意:根据生物素化效率以及所使用的链霉亲和素为二价或四价,生物素偶联标准蛋白和链霉亲和素的最佳浓度可能有所不同。 - 按照步骤8所述条件进行单分子跟踪测量(MSPT)。
警告:样品与校准标准品的成像条件必须完全一致。
8. 成像
- SLB 的形成与样品制备
- 如步骤 6 中更详细所述,将所需脂质混合物的小单层囊泡(SUVs)(25 µL)引入样品流动池,并形成支撑性脂双层。用 100 µL 反应缓冲液彻底清洗流动池(三次),以去除所有未融合的囊泡。
- 向样品池中加入 50 µL 目标蛋白。
注意:由于 MSPT 是一种单颗粒方法,蛋白浓度必须保持在皮摩尔(pM)至纳摩尔(nM)范围内,以确保颗粒的无干扰检测与追踪。
- 视频采集
- 在采集软件中设置所需的成像条件,例如视场大小(FOV)、帧率、曝光时间以及采集时间。
注意:以下设置已被证实适用于商用质量光度计上的 MSPT 实验(参见材料表):视场大小为 128 像素 × 35 像素,帧率为 1 kHz,经后续 5 倍帧平均后实际约为每秒 200 帧,曝光时间为 0.95 ms。 - 自动或手动调节焦距。如有必要,使用侧向控制将视场移动至膜分布均匀的位置。
- 创建项目文件夹并开始录制视频。录制完成后,在采集软件弹出的对话框中指定文件名。视频将自动保存为 MP 文件至项目文件夹,供后续分析使用。
注意:应在不同的流动池中至少记录三个重复样本,以确保各膜的完整性及结果的可重复性。视频持续时间可预先设定,并根据实验类型而定。大多数情况下,建议采集时间为 5 至 7 分钟。
警告:默认情况下,商用质量光度计的采集软件会在保存前对视频记录进行压缩,以减少存储空间。然而,为实现本方案中所述的自定义数据分析,必须关闭文件压缩功能。关闭文件压缩的具体操作详见仪器制造商的用户手册。
- 在采集软件中设置所需的成像条件,例如视场大小(FOV)、帧率、曝光时间以及采集时间。
9. 数据分析
注意:数据分析流程附带两个交互式 Jupyter 笔记本(MSPT analysis.ipynb,Movie visualization.ipynb)。用于执行下述 MSPT 分析的 Jupyter 笔记本及相关自定义 Python 模块可在公开代码仓库中获取:https://github.com/MSPT-toolkit/MSPT-toolkit。有关下述分析的详细说明,请参阅通过上述链接访问的 MSPT analysis.ipynb。
- 视频处理
- 使用逐像素背景估计算法去除光的主导静态散射 图像处理.mp_reader 功能
- 应用背景去除时,选择该选项 连续中位数 参数 模式 并为滑动中位数窗口设置合适的长度(窗口长度) 记录在笔记本的 B.1 部分。可选择在去除背景后保存视频,用于后续的粒子检测与轨迹连接(通过设置参数 保存已处理的视频文件 到 是).
注意:调整窗口大小(窗口长度根据膜上颗粒密度、预期扩散系数、采集帧率以及所需的处理速度,将值设置在101到2001之间。
警告:背景去除策略仅在膜蛋白分布不过于密集且粒子扩散速度足够快(即大多数时间每个像素未被粒子占据)时效果良好。否则,由于粒子无法与背景信号有效区分,其对比度会被系统性低估。可通过增大中值滤波窗口尺寸来补偿此问题,但会降低计算速度。需注意,若窗口尺寸设置过大,可能因样品漂移而对结果产生负面影响。因此,对处理后的视频进行视觉检查至关重要。
- 应用背景去除时,选择该选项 连续中位数 参数 模式 并为滑动中位数窗口设置合适的长度(窗口长度) 记录在笔记本的 B.1 部分。可选择在去除背景后保存视频,用于后续的粒子检测与轨迹连接(通过设置参数 保存已处理的视频文件 到 是).
- 使用该功能检测整段视频中颗粒及其各自的位置 particle_fitting.particle_fitter (参见笔记本部分 B.2)。
- 使用阈值参数调节粒子检测的灵敏度(阈值;参见笔记本部分 B.1),该部分通过图像二值化用于高亮候选斑点。可在另一个笔记本中检查不同阈值参数对斑点检测灵敏度的影响视频可视化.ipynb). 粒子检测结果将自动保存为电影文件子目录中的 CSV 文件。
注意:将阈值参数任意设得过低(例如,对于使用该质量光度计拍摄的视频, 阈值参数低于0.0005时不建议使用,因为候选斑点将主要由虚假噪声构成,从而延长处理时间。
- 使用阈值参数调节粒子检测的灵敏度(阈值;参见笔记本部分 B.1),该部分通过图像二值化用于高亮候选斑点。可在另一个笔记本中检查不同阈值参数对斑点检测灵敏度的影响视频可视化.ipynb). 粒子检测结果将自动保存为电影文件子目录中的 CSV 文件。
- 使用逐像素背景估计算法去除光的主导静态散射 图像处理.mp_reader 功能
- 使用 Python 软件包将连续帧中的颗粒进行轨迹链接 trackpy (v.0.5.0)29.
注意:轨迹连接是在检测到斑点后实时进行的。因此,包含轨迹信息的额外 CSV 文件将存储在粒子检测 CSV 文件的子目录中。- 使用参数去除点数过少的轨迹 最小轨迹长度 (参见笔记本部分 B.1),以实现对扩散系数的可靠测定。有关其他参数的详细说明,请参见 trackpy 功能,请参见 trackpy的 文档记录。
- 轨迹分析
- 在笔记本部分 C.1 中,注明帧率(帧率)以及像素大小(单位:nm)(像素大小),用于视频采集。创建一个包含由系统返回的轨迹信息的CSV文件列表 trackpy (参见步骤 9.2)与 trajectory_analysis.get_csv_files 功能(笔记本部分 C.2)。
- 此外,指定一个用于存储拟合结果的HDF5容器的输出文件名(笔记本部分C.3)。分析所有轨迹的 trajectory_analysis.fit_trajectories 笔记本部分 C.4 中的函数,用于遍历 CSV 文件列表。该函数使用跳跃距离分布(JDD)30 均方位移(MSD)31 通过分析来估算每条轨迹的扩散系数。
- 利用MSPT校准获得的对比度-质量关系(见第7节),将每条轨迹的中值对比度转换为其对应的质量。指定斜率(斜率)和 y 轴截距(偏移量校准曲线的斜率,该曲线描述了iSCAT对比度与分子质量之间的关系(函数 trajectory_analysis.apply_calibration;参见笔记本部分 C.5)。此函数会向每个数据框添加一列,包含轨迹的中位质量。
- 使用该函数评估膜上表观颗粒密度 轨迹分析.膜密度,该操作会在数据框中作为附加列返回每帧中检测到的粒子数和现有轨迹的中位数密度值(参见笔记本部分 C.6)。
注意:由于在检测和轨迹连接过程中会损失部分颗粒,实际颗粒密度可能更高。为获得可靠的颗粒密度及质量直方图结果,应目视检查具有代表性的视频截图,以确认单颗粒追踪的测量条件合理(参见步骤 9.1.1)。
10. 数据可视化
- 利用二维核密度估计(KDE)展示质量与扩散系数之间的相关性,该方法基于 Python 软件包 fastkde (v.1.0.19; https://pypi.org/project/fastkde/) 实现。
- 为生成该图,需指定包含 MSPT 结果的 HDF5 文件(参见步骤 9.3.2 及笔记本 D.1 节),并选择单个数据框(笔记本 D.2 节)或拼接后的数据框(笔记本 D.3 节)作为 plotting.generate_2D_KDE 函数(笔记本 D.4 节)的输入数据。
注意:每个绘图数据集应理想包含超过 1,000 条轨迹,以确保二维 KDE 结果的可靠性。
结果
按照本文所述在流动池中制备支撑脂双层(SLB)的详细方案(图1),在所有显示条件的原始视图中均可清晰观察到斑点状图案(图2)。该效应由玻璃表面的粗糙度引起,通常主导了散射信号,导致在视觉上难以区分不同条件(裸玻璃、含SLB的玻璃或含SLB及附着蛋白的玻璃)。然而,由于囊泡具有较大的散射截面,其存在特征明显可辨,因而能够观察到囊泡破裂并融合形成均质膜的过程(图2B 和 补充影片1)。当采用比值法消除玻璃表面静态散射信号,突出视野中动态成分时24,25,可揭示出在膜上扩散的未标记蛋白质(图2D),而空的SLB(图2C)或玻璃本身(图2A)则呈现为噪声图像。
MSPT 测量的固有背景可通过将电影中每个像素值除以同一图像位置上前 n 个和后 n 个像素的中位数进行局部估计(图 3)。因此,大分子呈现为各向同性的点扩散函数(PSFs),其在膜上的运动可被观察、追踪并量化。事实上,由于同时获得了对比度和动态行为信息,可直接将颗粒的分子尺寸与其相应的扩散行为关联,且无需对颗粒进行标记。然而,为了准确解读 MSPT 实验中测定的 iSCAT 对比度,必须进行校准,将信号幅度转化为分子质量。这可通过利用生物素-链霉亲和素-生物素复合物将已知质量的生物分子连接至支持性脂双层(SLB)来实现(图 4A)。作为一种典型策略,可使用牛血清白蛋白(BSA)、蛋白 A(prA)、碱性磷酸酶(AP)和纤连蛋白(FN)的生物素化变体,这些蛋白可结合到膜中含生物素的脂质(Biotinyl Cap PE)所结合的链霉亲和素(STP)上。如 图 4A 所示,这些代表性大分子逐渐增强的对比度反映了相应生物素化标准品分子量的递增。通过将对比度直方图(图 4B)中各峰对应于标准蛋白寡聚体状态的相应质量,可揭示对比度与质量之间的线性关系21,22,并可用于后续未知大分子体系的分析(图 4C)。
一个展示 MSPT 在分析分子量方面适用性与能力,进而研究寡聚状态及寡聚化事件的很好实例,是针对生物素化的醛缩酶与生物素化的 IgG 的考察图5)。醛缩酶通常被报道为同源四聚体32然而,MSPT 分辨出的质量分布呈现出四个明显的峰,表明存在多个群体(图 5A)。第一个较小的峰对应于未结合的链霉亲和素,这在此类实验的配置中是可预期的;同样可以检测到仅包含两个亚基(2SU)或六个亚基(6SU)的醛缩酶复合物(图 5B有趣的是,与二聚体形式的醛缩酶及单独的链霉亲和素相比,四聚体和六聚体的醛缩酶-链霉亲和素复合物表现出降低的扩散系数,表明其黏性阻力增加,例如 通过 链霉亲和素与第二个生物素化脂质的结合。类似地,生物素化IgG在质荷比分布中呈现三个峰,其中第一个峰再次与单个链霉亲和素的质量相符。最显著峰的质量对应于一条轻链和一条重链(1SU),即一个IgG抗体的一半。完整的抗体(含两个相同半分子,2SU)在约11%的情况下被检测到。随着复合物尺寸增大,扩散系数下降,表明链霉亲和素与多个生物素化脂质之间存在相互作用,或附着的IgG引起额外的拖曳效应,或二者兼有。
除了对膜依赖性寡聚状态进行单独分析外,MSPT 还具有将目标大分子的扩散行为与其寡聚状态相关联的独特优势。此类分析的代表性结果以结合于膜中二油酰磷脂酰丝氨酸(DOPS)或糖鞘脂(GM1)的膜联蛋白 V(AnV)和霍乱毒素 B 亚基(CTxB)为例展示(图 6A)。两种核密度估计(KDE)均呈现出质量和扩散的单峰分布,表明存在一种丰度较高的物种,且具有相似的扩散行为。AnV 的分子质量和扩散系数峰值分别为 49.8 ± 2.2 kDa 和 1.4 ± 0.1 µm2/s,而 CTxB 的相应值分别为 62.7 ± 3.1 kDa 和 0.4 ± 0.1 µm2/s。所测得的扩散系数与先前通过高速原子力显微镜和荧光漂白恢复技术(FRAP)报道的结果相当33,34。与预期大分子质量相比(AnV 三聚体为 52 kDa,CTxB 五聚体为 65 kDa),所测质量略低,可能表明体系中存在亚基数量较少的较小复合物。尽管两种蛋白质的质量差异较小,且接近显微镜的指定检测限(≈50 kDa),但它们的扩散系数差异显著。例如,在等摩尔混合物中,通过将混合物的扩散行为与单独的 AnV 和 CTxB 分布进行比较,可以推断 AnV 在膜上的丰度高于 CTxB(图 6B)。然而,当 CTxB 的浓度是 AnV 的两倍时,膜上优势蛋白的平衡则转向 CTxB。如 AnV 与 CTxB 混合物所示,MSPT 不仅能够根据分子量区分膜结合的大分子,还能依据其扩散行为区分不同的大分子群体。
与所有显微镜技术一样,为获得理想的实验数据质量,必须满足一些关键的实验要求。其中一个重要例子是盖玻片必须彻底清洁。通常情况下,这是与显微镜相关的单分子实验的前提条件,但运动单粒子追踪(MSPT)对样品杂质尤为敏感。未清洁盖玻片的玻璃表面会产生更强的散射,从而阻碍任何定量的干涉散射(iSCAT)测量。值得注意的是,即使玻璃表面残留少量污物或灰尘颗粒,也可能导致明显的图像畸变,在原始成像模式下表现为亮斑(图7A)。尽管由于这些缺陷具有静态特性,可通过背景估计予以消除,但其仍可能干扰对粒子对比度的准确测定,从而对定量分析产生负面影响。在MSPT实验中另一个常见问题是残留囊泡:一些囊泡在视野中漂浮(以橙色圈出),或未融合的囊泡黏附在膜上的特定位置(以蓝色圈出),表现为较大的脉动散射体(图7B)。为最大限度减少其出现并避免干扰视频采集,建议在加入蛋白质之前彻底清洗支撑脂双层(SLB),并使用新近制备的小型单层囊泡(SUVs)与二价阳离子的混合物。
在设计基于质量敏感的粒子追踪实验时,必须考虑与膜界面相关的生物大分子密度。膜上过高的粒子密度实际上会引发两个问题:i) 连续帧中粒子检测结果的轨迹连接变得模糊,从而增加误差和扩散系数误判的可能性;ii) 粒子质量是通过其对应的点扩散函数(PSF)拟合幅度提取的,当静态背景信号与动态粒子信号难以分离时,粒子质量会被系统性低估,且质量峰变宽(图7C)。目前,在采集MSPT视频过程中,由于现有商用显微镜缺乏对数据质量的直观评估手段,因此难以判断成像质量,其采集软件中实现的比值成像视图采用的是为质量光度法建立的背景去除方法21,而非本文及文献24,25中所述的基于中值的算法(图7D)。质量光度法中用于可视化着陆分子的基于均值的连续背景去除方法,会使扩散粒子呈现为前端暗、尾部亮的形态,导致信号斑点表现出高度各向异性,干扰检测过程中的PSF拟合。因此,采集软件中内置的基于均值的图像处理方法不适用于膜上扩散生物分子的分析。
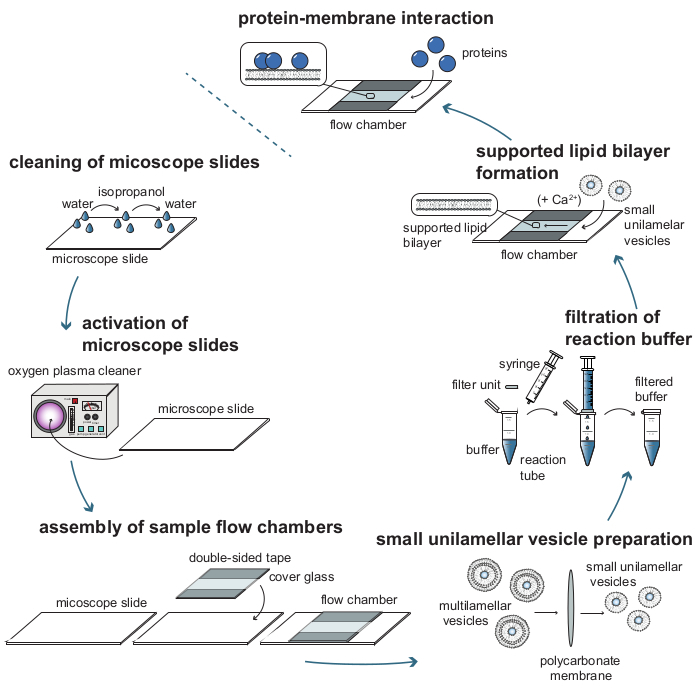
图 1:利用质量敏感粒子追踪技术(MSPT)分析蛋白质-膜相互作用所需各步骤的流程示意图。 为准备用于MSPT测量的样品,需先用氧气等离子体彻底清洗并活化玻璃盖玻片。将其组装成样品流动池后,制备小单层囊泡(SUVs)以形成支撑脂双层(SLB),同时对所有反应缓冲液进行过滤以减少背景散射。将SUVs加入流动池中以形成脂双层。可选择性地向SUVs中添加二价阳离子(如Ca2+)以促进囊泡破裂。最后,将低浓度的目标蛋白质冲洗进入反应室。请点击此处查看该图的放大版本。
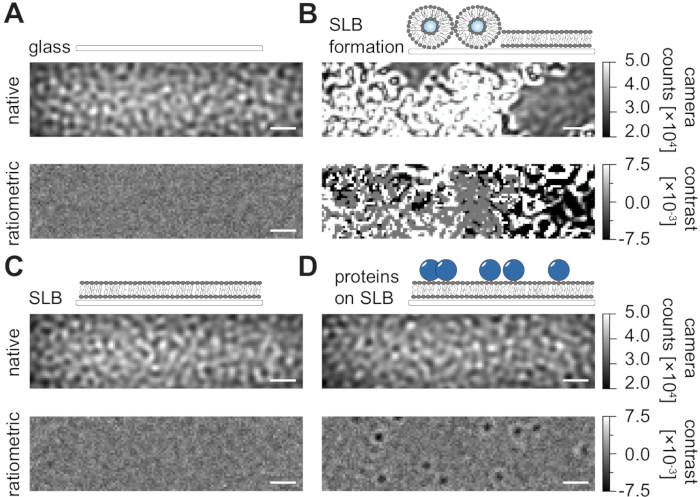
图 2:适用于单粒子追踪测量的代表性表面的天然与比率法视图。 玻璃盖玻片表面粗糙度的代表性图像(A),支持性脂双层形成过程中的图像(B),完整支持性脂双层的图像(C),以及在支持性脂双层上重建的代表性蛋白质图像(D)。这四个示例均以天然模式显示,该模式可在测量过程中直接获取,同时也展示了基于中值背景扣除后处理得到的比率法图像。比例尺为 1 µm。数据分析(参见配套的 Jupyter 笔记本;步骤 9)使用了以下参数:中值窗口大小(window_length)= 1001。 请点击此处查看该图的放大版本。

图3:MSPT数据采集与分析各阶段的逐步示意图。 在质量光度计上完成目标样品的数据采集后,通过逐像素滑动中值法对视频进行处理,以去除静态背景。随后,通过点扩散函数(PSF)对候选粒子进行识别与拟合,并将其连接为粒子轨迹。为确定每个粒子的扩散系数,采用均方位移(MSD)或跳跃距离分布(JDD)分析方法。在此阶段,可根据校准策略确定的对比度-质量关系,将对比度值转换为分子质量。最后,可根据轨迹长度或膜粒子密度对轨迹进行筛选,并通过二维核密度估计(2D-KDE)进行可视化。请点击此处查看该图的放大版本。
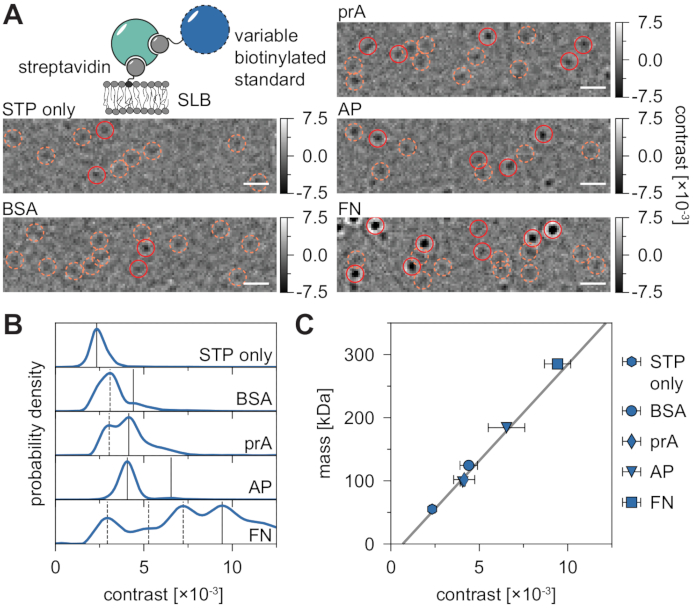
图4:MSPT 测量中质量与对比度关系的校准。 (A代表性比率成像帧图,显示在含少量生物素化脂质(DOPC:DOPG:Biotinyl Cap PE 摩尔比为 70:29.99:0.01)的支撑脂双层上扩散的链霉亲和素-标准蛋白复合物。作为模型分子量标准,使用单价链霉亲和素28 (仅限 STP)或二价链霉亲和素28 与生物素化的牛血清白蛋白(BSA)、生物素化的蛋白A(prA)、生物素化的碱性磷酸酶(AP)或生物素化的纤连蛋白(FN)结合的复合物如图所示。候选斑点以橙色(虚线圆圈)标出,成功检测到的颗粒以红色(实心圆圈)标出。比例尺代表 1 µm. (B) 五种模型标准蛋白获得的对比度值的概率密度分布。所有显示的数据代表每种条件下三次独立实验的合并分布:仅STP n = 82,719;BSA n = 9,034;prA n = 22,204;AP n = 69,065;FN n = 71,759条轨迹。与含有蛋白质的膜所测定的粒子数相比,在中等膜密度下,空双层膜上检测到的粒子数量可忽略不计(补充图1)。用于质量校准的对比峰通过实线标记,而虚线表示未被考虑的寡聚体状态。C) 由图中峰值对比度得出的对比度-质量校准曲线 D 以及各复合物的相应序列质量。误差线表示通过自助法(100次重采样,每次1,000条轨迹)估计的峰位置的标准误差。数据分析(参见Jupyter笔记本;步骤9)使用了以下参数:中位数窗口大小(窗口长度)= 1,001 帧,检测阈值(阈值) = 0.00055,搜索范围(dmax)= 4 像素,内存(最大消失帧数)= 0 帧,最小轨迹长度(最小轨迹长度) = 7帧(仅STP),9帧(BSA/FN),15帧(prA),10帧(AP)。 请点击此处以查看此图的放大版本。
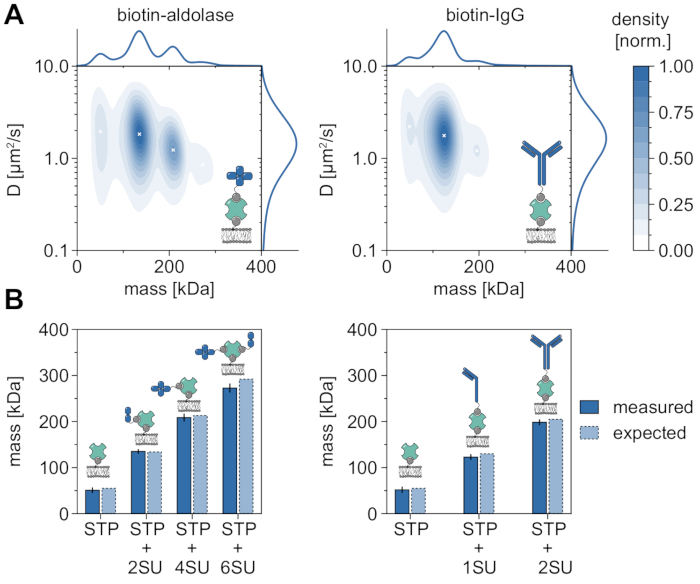
图 5:解析膜相关蛋白的寡聚状态。(A)四价链霉亲和素与生物素化醛缩酶(左图)或与生物素修饰的山羊抗兔 IgG 抗体(右图)复合物的质量和扩散系数的二维核密度估计。两种复合物均在含 DOPC、DOPG 和 Biotinyl Cap PE 的支持性脂双层上重建,其摩尔比分别为 70:29.99:0.01。总共纳入了三个独立重复实验的 116,787 条轨迹用于分析链霉亲和素-醛缩酶复合物(粒子密度为 0.1 µm-2),348,405 条轨迹用于分析链霉亲和素-IgG 复合物(粒子密度为 0.1 µm-2)。仅包含轨迹长度至少为五帧的粒子。图中顶部和右侧分别为分子质量与扩散系数的边缘概率分布。两图中的黑色“x”标记了核密度估计(KDE)的局部最大值。(B)测定的四价链霉亲和素与生物素修饰的醛缩酶(左图)或生物素化 IgG(右图)复合物的寡聚体质量与根据序列质量计算的预期分子量的比较。图中缩写 SU 表示目标蛋白的亚基。误差棒表示通过自助法(100 次重采样,每次 1,000 条轨迹)估计的峰位置的标准误差。数据分析所用参数如下(参见配套的 Jupyter notebook;步骤 9):中值滤波窗口大小(window_length)= 1,001 帧,检测阈值(thresh)= 0.00055,搜索范围(dmax)= 4 像素,记忆帧数(max_frames_to_vanish)= 0 帧,最小轨迹长度(minimum_trajectory_length)= 5。请点击此处查看该图的放大版本。
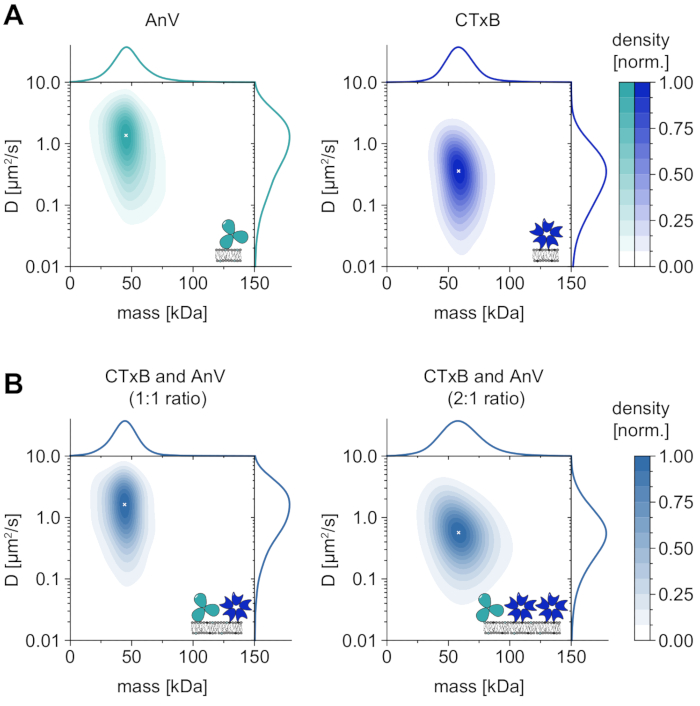
图 6:解析天然膜相互作用蛋白——膜联蛋白 V(AnV)和霍乱毒素 B 亚基(CTxB)的扩散行为。 (A)膜联蛋白 V(左图)和霍乱毒素 B 亚基(右图)的质量与扩散系数的二维核密度估计。AnV 和 CTxB 的膜重建分别采用 80:20 mol% DOPC 与 DOPS 以及 99.99:0.01 mol% DOPC 与 GM1 的脂质组成。AnV 共纳入三个独立重复实验的 206,819 条轨迹(粒子密度为 0.1 µm-2),CTxB 共纳入 142,895 条轨迹(粒子密度为 0.2 µm-2)。 (B)CTxB 与 AnV 按 1:1(左图)或 2:1(右图)比例混合时的二维核密度估计。蛋白混合物的重建在支持性脂双层上进行,其中 DOPC、DOPS 和 GM1 脂质的比例为 80:19.99:0.01 mol%。1:1 混合物共纳入三个独立重复实验的 42,696 条轨迹(粒子密度为 0.1 µm-2),2:1 比例混合物共纳入 264,561 条轨迹(粒子密度为 0.3 µm-2)。在(A)和(B)中,仅包含轨迹长度不少于五帧的粒子。图中展示了分子质量(上方)和扩散系数(右侧)的边缘概率分布。每个图中的白色“x”标记了核密度估计(KDE)的全局最大值。数据分析(参见配套的 Jupyter notebook;步骤 9)使用了以下参数:中值滤波窗口大小(window_length)= 1,001 帧,检测阈值(thresh)= 0.00055,搜索范围(dmax)= 4 像素,记忆帧数(max_frames_to_vanish)= 0 帧,最小轨迹长度(minimum_trajectory_length)= 5。 请点击此处查看该图的放大版本。
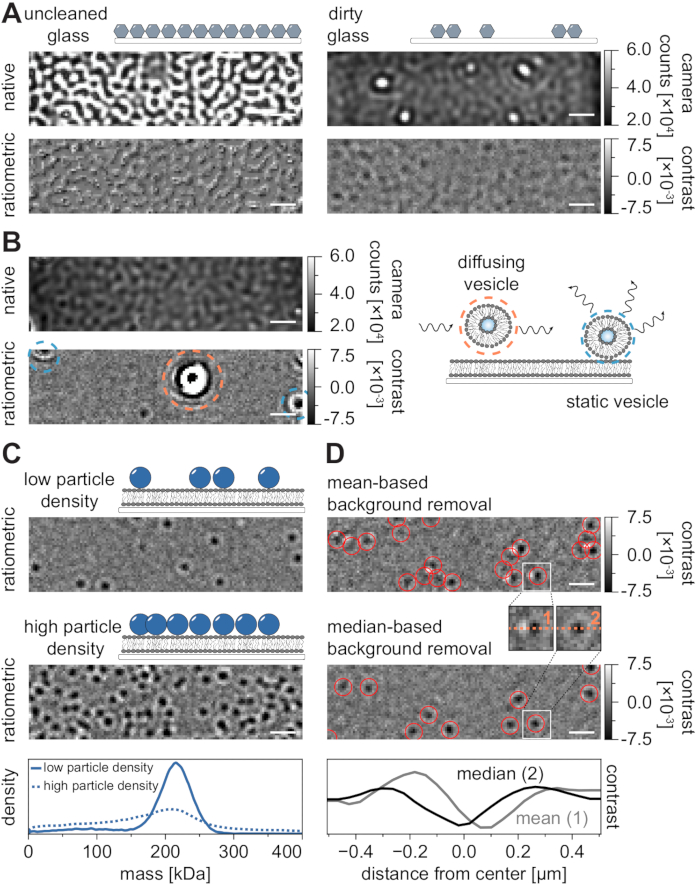
图 7:MSPT 测量过程或数据分析期间可能出现的潜在问题。(A)未经清洗的盖玻片表面在原始状态和经中值法背景校正处理后的比率图像中均显示出表面粗糙度的代表性图像。在两种情况下,亮斑均代表残留的表面杂质,会阻碍无伪影的测量。(B)膜清洗不充分后视野中残留囊泡的示例图像。静态囊泡(以蓝色高亮)和扩散囊泡(以橙色高亮)均会降低测量质量,分别由于脉动和抖动,或由于其定向运动。(C)作为单颗粒技术,MSPT 要求较低的颗粒密度(上层面板中的代表性图像),以实现每个颗粒的正确轨迹连接和质量测定。在膜上颗粒密度过高(中层面板)的情况下,颗粒拟合效果变差,从而影响质量测定(见下层面板)。(D)颗粒在膜界面扩散的代表性比率图像,分别采用基于均值(上层面板)或基于中值的背景校正方法。对于扩散颗粒,基于均值的背景校正策略会导致颗粒点扩散函数(PSF)图像失真,如上层与中层图像之间的小插图所示。相比之下,基于中值的方法可获得无失真的颗粒 PSF 图像。下层面板:采用基于均值或基于中值背景校正后,沿 PSF 中心的线轮廓比较。本图中所有原始图像和比率图像的比例尺均为 1 µm。对于数据分析(参见配套的 Jupyter 笔记本;步骤 9),使用以下参数:中值窗口大小(window_length)= 1,001 帧,检测阈值(thresh)= 0.00055,搜索范围(dmax)= 4 像素,记忆帧数(max_frames_to_vanish)= 0 帧,最小轨迹长度(minimum_trajectory_length)= 5。请点击此处查看该图的放大版本。
补充图1:无蛋白膜与蛋白占据膜的比较。 完整支撑脂双层在加入纯化链霉亲和素(STP)前(A)和后(B)的代表性图像。成功拟合至模型点扩散函数(PSF)的候选信号点以红色圆圈标出。(C)在无蛋白脂膜(膜背景,灰色)和含有扩散性链霉亲和素颗粒的脂双层上检测到的颗粒对比概率分布(蓝色)。两条概率分布曲线均来自三次独立实验的数据整合,实验具有相同的视频采集与分析参数。数据分析(参见配套的Jupyter Notebook;步骤9)所用参数如下:中值滤波窗口大小(window_length)= 1,001帧,检测阈值(thresh)= 0.00055,搜索范围(dmax)= 4像素,记忆时长(max_frames_to_vanish)= 0帧,最小轨迹长度(minimum_trajectory_length)= 7帧。请点击此处下载该文件。
补充视频 1:使用质量光度计记录的囊泡破裂并融合形成均一膜的典型视频。图像处理中值滤波窗口大小(window_length)= 1,001 帧。比例尺:1 µm。相机计数范围:黑色 = 16,892;白色 = 65,408。请点击此处下载该视频。
补充视频 2:典型视频展示通过 MSPT 测量获得的类脂双层膜上膜联蛋白 V(上图)和生物素化醛缩酶(下图)复合物的扩散行为。图像处理中值滤波窗口大小(window_length)= 1,001 帧。比例尺:1 µm。干涉散射对比度范围:黑色 = -0.0075;白色 = 0.0075。请点击此处下载该视频。
讨论
本方案扩展了质量光度法21——一种用于分析单个生物分子在玻璃表面吸附质量的技术,使其成为一种更为通用的工具,能够同时测量未标记膜相互作用生物分子的质量和扩散特性。该分析扩展通过采用一种针对分子侧向运动优化的改进型背景去除策略得以实现24,25。通常情况下,背景去除对于基于干涉散射(iSCAT)的方法至关重要,因为玻璃表面粗糙度产生的强散射是主要的分析障碍,而准确确定每个像素的局部背景对于颗粒质量与位置的定量分析必不可少。除了适配颗粒运动的图像分析外,后续的颗粒检测、轨迹连接以及数据分析共同完成了将质量光度法(MP)拓展为质量敏感型颗粒追踪(MSPT)的新方法。
通常,彻底清洁的玻璃盖玻片和洁净的实验环境是成功进行 MSPT 实验的关键要求。由于无需大分子标记,所获得的信号本质上是非选择性的。因此,样品的洁净程度以及正确的样品操作至关重要,以确保观测结果不会被误读。特别是当检测低分子量分子时,建议对不含蛋白质的膜进行对照测量,以评估背景信号的贡献(补充图 1)。除了进行对照测量外,还建议针对每个流动池遵循 图 2 所示的制备步骤。综合采取这些安全措施,可确保检测到的信号来源于目标生物分子,而非被污染的流动池、缓冲液或膜。
除了实验设计方面的注意事项外,在MSPT图像处理过程中也需格外谨慎。视频处理时,应仔细选择三个参数的取值,以确保结果准确:i) 用于背景去除的中值滤波窗口长度,ii) 粒子检测的阈值,以及 iii) 轨迹连接过程中的最大搜索半径。较大的中值窗口(i)通常有助于将扩散粒子与叠加的近似恒定背景分离开来。然而,若窗口过大,样品漂移最终会变得明显,从而降低背景估计的准确性。最佳参数设置在很大程度上取决于样品特性和测量条件。尽管如此,1,001 可作为一个稳健的起始值。阈值参数(ii)需根据样品中预期的最低分子质量进行调整。对于本研究中所用质量光度计采集的测量数据,不建议将阈值设为低于0.0005。若预期样品中含有高分子量组分,可选择较高的阈值以加快分析速度。轨迹连接中的搜索半径(iii)定义了在连续帧中搜索粒子位移位置的最大径向距离(以像素为单位)。该参数应根据样品中移动最快的粒子进行调整;如有需要,也可采用自适应搜索范围(参见trackpy的文档),以减少计算时间。特别是在项目初期,建议使用不同参数对视频进行重复分析,以验证所得结果的可靠性。
鉴于MSPT具有单分子特性,应避免在高膜颗粒密度下进行测量,因为这可能干扰对比度和质量的准确测定。已有研究表明,每平方微米少于一个颗粒的密度有利于MSPT测量24。另一个需要考虑的因素是样品中预期的扩散系数。尽管MSPT适用于较宽范围的扩散系数,但其可检测的扩散系数存在下限。当颗粒在中值滤波窗口的大部分时间内被局部限制在少数几个像素的区域内时,该颗粒会与静态背景合并。在本实验方案所用的成像条件下,不建议测量低于0.01 µm2/s的扩散系数。例如,在此扩散速度下,颗粒在中值窗口半长期间的均方位移约为4个像素,与点扩散函数(PSF)的范围相近。因此,静态背景估计值很可能包含来自颗粒本身的信号贡献,导致颗粒的表观对比度降低,直至最终接近噪声水平。然而,扩散系数在0.05至10 µm2/s范围内的大分子扩散过程可以被清晰分辨。
为了进一步拓展MSPT的应用范围,可以通过剔除暂时被颗粒占据的像素,或通过校正样品漂移以实现更大的中值滤波窗口,从而改进基于中值的背景算法。这两种方法都将缓解高颗粒密度和慢速扩散条件下的测量难题。随着新一代质量光度计的发展,质量检测灵敏度将进一步提高,有望检测到小于50 kDa的生物分子。因此,未来的MSPT实验将能够研究更广泛膜模拟体系(如缓冲双层膜和大分子系统)中的单分子动力学及与膜相关的相互作用。
致谢
我们衷心感谢Philipp Kukura、Gavin Young以及Refeyn软件团队的支持,并感谢他们共享部分图像分析代码。感谢马克斯·普朗克生物化学研究所(MPIB)冷冻电镜核心设施提供商用Refeyn质量光度计的使用权限。F.S. 感谢Jürgen Plitzko和Wolfgang Baumeister提供的支持与资助。T.H. 和 P.S. 获得德国研究基金会(Deutsche Forschungsgemeinschaft, DFG)的资助——项目编号201269156——SFB 1032(A09)。N.H. 获得DFG返国研究资助 HU 2462/3-1 的支持。P.S. 感谢MaxSynBio研究网络提供的支持。 通过 德国联邦教育与研究部(BMBF)与马普学会的联合资助计划
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| annexin V | Sigma Aldrich | #SRP8026 | 示例性膜相互作用蛋白 |
| Bio-Rad 蛋白检测试剂盒 | Bio-Rad Laboratories Inc. | #5000006 | 用于测定蛋白储备液浓度的 Bradford 检测试剂盒 |
| 生物素标记牛血清白蛋白 | Sigma Aldrich | #A8549 | 可作为 MSPT 实验中标准蛋白的示例性蛋白 |
| 霍乱毒素 B 亚基 | Sigma Aldrich | #SAE0069 | 示例性膜相互作用蛋白 |
| 盖玻片,#1.5,24 × 24 mm | Paul Marienfeld GmbH & Co. KG | #0102062 | |
| 盖玻片,#1.5,24 × 60 mm | Paul Marienfeld GmbH & Co. KG | #0102242 | |
| 二油酰基-sn-甘油-3-磷脂酰胆碱(DOPC) | Avanti Polar Lipids | #850375 | 脂质——需以挤出法制备的小型单层囊泡形式,用于支撑性脂双层的形成 |
| 二油酰基-sn-甘油-3-磷脂酰乙醇胺-N-帽生物素(18:1 Biotinyl Cap PE) | Avanti Polar Lipids | #870273 | 脂质——需以挤出法制备的小型单层囊泡形式,用于支撑性脂双层的形成 |
| 二油酰基-sn-甘油-3-磷脂酰甘油(DOPG) | Avanti Polar Lipids | #840475 | 脂质——需以挤出法制备的小型单层囊泡形式,用于支撑性脂双层的形成 |
| 二油酰基-sn-甘油-3-磷脂酰-L-丝氨酸(DOPS) | Avanti Polar Lipids | #840035 | 脂质——需以挤出法制备的小型单层囊泡形式,用于支撑性脂双层的形成 |
| 双面胶带 | tesa | #57912-00000-02 | 用于组装玻璃样品腔室 |
| 挤出器(Extruder) | Avanti Polar Lipids | #610023 | 脂质挤出装置,用于获得单分散囊泡分布 |
| EZ-Link Maleimide-PEG2-Biotin | Thermo Fisher Scientific | #A39261 | 可与巯基反应的生物素衍生物,可用于对标准蛋白进行生物素标记以用于 MSPT |
| 纤维连接蛋白(生物素化) | Cytoskeleton Inc. | #FNR03-A | 可作为 MSPT 实验中标准蛋白的示例性蛋白 |
| 凝胶过滤高分子量校准试剂盒 | Cytiva | #28403842 | 标准蛋白,例如醛缩酶,可经生物素化后作为 MSPT 的分子量标准 |
| GM1 神经节苷脂(脑源,羊源钠盐) | Avanti Polar Lipids | #860065 | 脂质——需以挤出法制备的小型单层囊泡形式,用于支撑性脂双层的形成 |
| 山羊抗兔 IgG(H+L)二抗,生物素标记 | Thermo Fisher Scientific, Waltham, USA | #31820 | 示例性蛋白,用于展示不同蛋白状态的存在 |
| 异丙醇,99.5%,光谱级 | Thermo Fisher Scientific | #10003643 | |
| 低自发荧光浸油 | Olympus K.K. | #IMMOIL-F30CC | |
| pET21a-Streptavidin-Alive | Addgene | #20860 | 用于共表达并纯化二价链霉亲和素 |
| pET21a-Streptavidin-Dead | Addgene | #20859 | 用于共表达并纯化二价链霉亲和素 |
| Pierce 碱性磷酸酶,生物素化 | Thermo Fisher Scientific | #29339 | 可作为 MSPT 实验中标准蛋白的示例性蛋白 |
| Pierce 蛋白 A,生物素化 | Thermo Fisher Scientific | #29989 | 可作为 MSPT 实验中标准蛋白的示例性蛋白 |
| Refeyn Acquire | Refeyn Ltd. | Refeyn OneMP 的控制软件 | |
| Refeyn One | Refeyn Ltd. | - | 质量光度计 |
| 无菌注射器滤器,0.45 µm 醋酸纤维素膜 | VWR International | #514-0063 | 用于过滤目标缓冲液中的颗粒 |
| 四价链霉亲和素 | Thermo Fisher Scientific | #SNN1001 | 四价链霉亲和素,可提供多个生物素结合位点 |
| Whatman Nuclepore 亲水性膜,0.05 µm 孔径,25 mm 圆形 | Cytiva | #110603 | 在 MSPT 背景下,建议使用 50 nm 孔径的膜以形成支撑性脂双层 |
| Zepto model 2 等离子清洗仪 | Diener electronic GmbH | - |
参考文献
- Robertson, J. L. The lipid bilayer membrane and its protein constituents. Journal of General Physiology. 150 (11), 1472-1483 (2018).
- Grecco, H. E., Schmick, M., Bastiaens, P. I. H. Signaling from the Living Plasma Membrane. Cell. 144 (6), 897-909 (2011).
- Cho, W., Stahelin, R. V. Membrane-protein interactions in cell signaling and membrane trafficking. Annual Review of Biophysics and Biomolecular Structure. 34, 119-151 (2005).
- Whited, A. M., Johs, A. The interactions of peripheral membrane proteins with biological membranes. Chemistry and Physics of Lipids. 192, 51-59 (2015).
- Gonzalez, L., Scheller, R. H. Regulation of membrane trafficking: Structural insights from a Rab/effector complex. Cell. 96 (6), 755-758 (1999).
- Sezgin, E., Levental, I., Mayor, S., Eggeling, C. The mystery of membrane organization: composition, regulation and roles of lipid rafts. Nature Reviews Molecular Cell Biology. 18 (6), 361-374 (2017).
- Bagheri, Y., Ali, A. A., You, M. Current methods for detecting cell membrane transient interactions. Frontiers in Chemistry. 8, 603259(2020).
- Miller, H., Zhou, Z., Shepherd, J., Wollman, A. J. M., Leake, M. C. Single-molecule techniques in biophysics: A review of the progress in methods and applications. Reports on Progress in Physics. 81 (2), 024601(2018).
- Manzo, C., Garcia-Parajo, M. F. A review of progress in single particle tracking: From methods to biophysical insights. Reports on Progress in Physics. 78 (12), 124601(2015).
- Gelles, J., Schnapp, B. J., Sheetz, M. P. Tracking kinesin-driven movements with nanometre-scale precision. Nature. 331 (6155), 450-453 (1988).
- Funatsu, T., Harada, Y., Tokunaga, M., Saito, K., Yanagida, T. Imaging of single fluorescent molecules and individual ATP turnovers by single myosin molecules in aqueous solution. Nature. 374 (6522), 555-559 (1995).
- Schmidt, T., Schütz, G. J., Baumgartner, W., Gruber, H. J., Schindler, H. Imaging of single molecule diffusion. Proceedings of the National Academy of Sciences of the United States of America. 93 (7), 2926-2929 (1996).
- Taylor, R. W., et al. Interferometric scattering microscopy reveals microsecond nanoscopic protein motion on a live cell membrane. Nature Photonics. 13 (7), 480-487 (2019).
- Kukura, P., et al. High-speed nanoscopic tracking of the position and orientation of a single virus. Nature Methods. 6 (12), 923-927 (2009).
- Jacobsen, V., Stoller, P., Brunner, C., Vogel, V., Sandoghdar, V. Interferometric optical detection and tracking of very small gold nanoparticles at a water-glass interface. Optics Express. 14 (1), 405(2006).
- Ueno, H., et al. Simple dark-field microscopy with nanometer spatial precision and microsecond temporal resolution. Biophysical Journal. 98 (9), 2014-2023 (2010).
- Loose, M., Fischer-Friedrich, E., Herold, C., Kruse, K., Schwille, P. Min protein patterns emerge from rapid rebinding and membrane interaction of MinE. Nature Structural and Molecular Biology. 18 (5), 577-583 (2011).
- Bezeljak, U., Loya, H., Kaczmarek, B., Saunders, T. E., Loose, M. Stochastic activation and bistability in a Rab GTPase regulatory network. Proceedings of the National Academy of Sciences of the United States of America. 117 (12), 6504-6549 (2020).
- Ha, T., Tinnefeld, P. Photophysics of fluorescent probes for single-molecule biophysics and super-resolution imaging. Annual Review of Physical Chemistry. 63 (1), 595-617 (2012).
- Garcia-Parajo, M. F., Segers-Nolten, G. M. J., Veerman, J. A., Greve, J., Van Hulst, N. F. Real-time light-driven dynamics of the fluorescence emission in single green fluorescent protein molecules. Proceedings of the National Academy of Sciences of the United States of America. 97 (13), 7237-7242 (2000).
- Young, G., et al. Quantitative mass imaging of single biological macromolecules. Science. 360 (6387), 423-427 (2018).
- Piliarik, M., Sandoghdar, V. Direct optical sensing of single unlabelled proteins and super-resolution imaging of their binding sites. Nature Communications. 5, 4495(2014).
- Cole, D., Young, G., Weigel, A., Sebesta, A., Kukura, P. Label-free single-molecule imaging with numerical-aperture-shaped interferometric scattering microscopy. ACS Photonics. 4 (2), 211-216 (2017).
- Heermann, T., Steiert, F., Ramm, B., Hundt, N., Schwille, P. Mass-sensitive particle tracking to elucidate the membrane-associated MinDE reaction cycle. Nature Methods. 18 (10), 1239-1246 (2021).
- Foley, E. D. B., Kushwah, M. S., Young, G., Kukura, P. Mass photometry enables label-free tracking and mass measurement of single proteins on lipid bilayers. Nature Methods. 18 (10), 1247-1252 (2021).
- Voss, O. H., Lee, H. N., Tian, L., Krzewski, K., Coligan, J. E. Liposome preparation for the analysis of lipid-receptor interaction and efferocytosis. Current Protocols in Immunology. 120, 1-21 (2018).
- Pincet, F., et al. FRAP to characterize molecular diffusion and interaction in various membrane environments. PLoS ONE. 11 (7), 0158457(2016).
- Howarth, M., et al. A monovalent streptavidin with a single femtomolar biotin binding site. Nature Methods. 3 (4), 267-273 (2006).
- Allan, D., et al. soft-matter/trackpy: Trackpy v.0.5.0. Zenodo. , (2021).
- Weimann, L., et al. A quantitative comparison of single-dye tracking analysis tools using Monte Carlo simulations. PLoS ONE. 8 (5), 64287(2013).
- Michalet, X. Mean square displacement analysis of single-particle trajectories with localization error: Brownian motion in an isotropic medium. Physical Review E - Statistical, Nonlinear, and Soft Matter Physics. 82 (4), 041914(2010).
- Sygusch, J., Beaudry, D., Allaire, M. Molecular architecture of rabbit skeletal muscle aldolase at 2.7-A resolution. Proceedings of the National Academy of Sciences of the United States of America. 84 (22), 7846-7850 (1987).
- Heath, G. R., Scheuring, S. High-speed AFM height spectroscopy reveals µs-dynamics of unlabeled biomolecules. Nature Communications. 9 (1), 4983(2018).
- Day, C. A., Kenworthy, A. K. Mechanisms underlying the confined diffusion of cholera toxin B-subunit in intact cell membranes. PLOS ONE. 7 (4), 34923(2012).
重印与许可
