我们总结了一种通过计算建模来模拟视网膜神经元在电刺激下行为的工作流程。该计算模型具有良好的通用性,包含自动化步骤,可用于模拟多种生理场景,并预测未来实验的结果 体内/体外 研究。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
计算建模因其能够预测神经工程中神经系统的活动行为,已成为该领域日益重要的研究方法 体内 和 体外 系统。这种方法的主要优势在于,通过提供对生理结果的高精度预测,显著减少特定研究所需的动物数量。在视觉假体领域,计算建模具有多种实际应用,包括指导可植入电极阵列的设计,以及预测通过该阵列传递电脉冲所可能引发的视觉感知。文献中描述的一些模型结合了三维(3D)形态结构以计算电场,并采用神经元或目标神经网络的电缆模型。为了提高这一两步法对计算建模经验有限的研究人员的可及性,我们提供了一段视频,介绍构建计算模型的基本方法及其在预测刺激方案所引发的生理与心理物理结果中的应用 通过 一种视觉假体。本指南包含在有限元建模(FEM)软件中构建三维模型的步骤、在多隔室神经元计算软件中构建视网膜神经节细胞模型的步骤,以及将两者整合的方法。将使用有限元建模软件对组织电刺激中的电场分布进行物理方程的数值求解。随后,使用专门的软件模拟神经细胞或神经网络的电活动。要完成本教程,需熟悉神经假体的工作原理以及神经生理学概念(例如动作电位机制及对Hodgkin-Huxley模型的理解)。
引言
视觉神经假体是一类向视觉通路中的神经细胞传递刺激(如电刺激、光刺激等)以产生光幻视或感知光觉的装置。对于因退行性视网膜疾病导致永久性失明的患者,该治疗策略已在临床上应用近十年。通常,一个完整的系统包括一个用于捕捉使用者周围视觉信息的外部摄像头、一个用于处理图像并将其转换为一系列电脉冲的电源与计算单元,以及一个植入式的电极阵列,该阵列与神经组织相连接,并将电脉冲传递至神经细胞。其工作原理允许视觉神经假体被植入从视网膜到视觉皮层之间视觉通路的不同位置,只要位于受损组织的下游即可。目前大多数视觉神经假体的研究集中在提高刺激的有效性以及改善空间分辨能力,以提供更接近自然的视觉体验。
为了提高刺激的有效性,计算建模已成为一种经济且高效的方法,用于验证假体设计并模拟其视觉效果。自1999年Greenberg1对视网膜神经节细胞对细胞外电刺激的响应进行建模以来,该领域的计算建模逐渐受到关注。此后,计算建模被广泛用于优化电脉冲参数2,3或电极的几何结构设计4,5。尽管模型在复杂程度和研究问题上存在差异,但这些模型的工作原理均为确定介质(如神经组织)中的电电压分布,并估算邻近神经元因该电电压所产生的电响应。
通过在所有位置求解泊松方程6,可得到导体中的电势分布:


其中 E 为电场,V 为电势,J 为电流密度,σ 为电导率。方程中的  表示梯度算符。在稳态电流情况下,模型上施加以下边界条件:

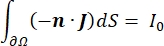
其中,n 为表面的法向量,Ω 表示边界,I0 表示特定电流。三者共同在外部边界处形成电绝缘,并为选定边界提供电流源。若假设在具有各向同性电导率的均匀介质中存在一个单极点源,则任意位置处的胞外电势可通过以下公式计算7:

其中 我e 是电流,是电极与测量点之间的距离。当介质不均匀或具有各向异性,或电极阵列包含多个电极时,采用计算软件对相关方程进行数值求解将更为便捷。有限元建模软件6 将容积导体分解为被称为“单元”的小部分。这些单元相互连接,使得一个单元的变化会影响其他单元的变化,并求解用于描述这些单元的物理方程。随着现代计算机计算速度的提升,该过程可在数秒内完成。一旦计算出电位,便可进一步估算神经元的电学响应。
神经元以电信号的形式发送和接收信息。这类信号有两种形式——分级电位和动作电位。分级电位是膜电位的暂时性变化,表现为膜两侧的电压变得更正(去极化)或更负(超极化)。分级电位通常具有局部效应。在能够产生动作电位的细胞中,动作电位是一种“全或无”式的反应,可沿轴突长距离传播。无论是分级电位还是动作电位,均对电环境和化学环境敏感。当跨膜电位达到阈值时,多种类型的神经元细胞(包括视网膜神经节细胞)均可产生动作电位脉冲。动作电位的发放和传导随后会触发向下游神经元的突触信号传递。神经元可被建模为一条由多个圆柱形节段组成的电缆,每个节段因其脂质双分子层膜而具有电容和电阻8。通过将细胞划分为多个区室并求解数学模型,神经元计算程序9可估算可兴奋细胞的电活动10:
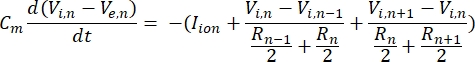
在该方程中,Cm 表示膜电容,Ve,n 表示节点 n 处的细胞外电势,Vi,n 表示节点 n 处的细胞内电势,Rn 表示节点 n 处的细胞内(纵向)电阻,Iion 表示通过节点 n 离子通道的离子电流。当刺激激活时,有限元模型(FEM)中得到的 V 值被用作神经元中所有节点的 Ve,n。
离子通道的跨膜电流可使用霍奇金-赫胥黎(Hodgkin-Huxley)公式进行建模11:
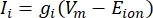
其中,gi 为通道的特异性电导,Vm 为跨膜电位(Vi,n - Ve,n),Eion 为离子通道的反转电位。对于电压门控通道(如 Na 通道),引入了描述通道开放或关闭概率的无量纲参数 m 和 h:
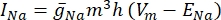
其中, 是特定离子通道的最大膜电导,参数 m 和 h 的值由以下微分方程定义:
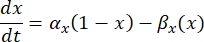
其中 αx 和 βx 是电压依赖性函数,用于定义离子通道的速率常数。它们通常具有以下形式:
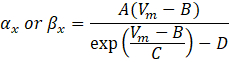
这些方程中的参数值,包括最大电导以及常数 A、B、C 和 D,通常通过实验测量获得。
利用这些基本要素,可按照所述步骤构建不同复杂程度的模型。当容积导体中的电导率不均匀或具有各向异性,或电极阵列几何结构复杂,导致泊松方程无法解析求解时,有限元法(FEM)软件将非常有用。在求解得到细胞外电位值后,即可在神经元计算软件中对神经元电缆模型进行数值求解。结合这两种软件,可实现对复杂神经元细胞或神经网络在非均匀电场中的计算模拟。
将使用上述程序构建一个在脉络膜上刺激下的视网膜神经节细胞的简单两步模型。在本研究中,视网膜神经节细胞将接受一系列不同强度的电脉冲刺激。同时,通过改变细胞相对于刺激电极的位置,以展示距离-阈值关系。此外,本研究还包括将计算结果与一项活体(in vivo)研究进行验证,该研究采用不同尺寸的刺激电极测量皮层激活阈值12,以及一项体外(in vitro)研究,展示电极-神经元距离与激活阈值之间的关系13。
访问受限。请登录或开始试用以查看此内容。
方案
1. 建立用于电势计算的有限元模型
- 确定模拟步骤和模型的复杂性
注意:第一步的目的是明确建模的目标,这将决定模型所需的组成要素及模拟过程。需要重点考虑的是模型需呈现的神经细胞行为,以及证明该行为所需的测试方案。本研究展示了一个神经元在细胞外刺激下的距离-阈值关系,以及电极尺寸-阈值曲线。为此,需要建立一个将神经细胞划分为多个区段的模型(以纳入神经元形态学和生物物理参数的差异),该模型对细胞外电压敏感,并需模拟一系列不同尺寸和位置的电极。- 明确研究问题和实验变量。
- 确定一个研究问题和测试方案,以指导模型的构建。最好从一个明确的问题出发,并构建尽可能简单的模型来回答该问题。
- 确定完整模型中需要包含的必要元素
注意:在此建模方法中,细胞被视为浸没于电导性介质(即生物组织)中。电刺激作用于该“容积导体”(即介质)之上,从而在介质内形成电势分布。- 根据研究问题和需要解决的变量,确定是否需要同时使用有限元法(FEM)和神经元电缆模型这两个要素。例如,如果建模仅涉及一个可简化为点源的电极,且介质是均匀的,则可能无需使用有限元法,可通过解析计算细胞外电场来替代。
- 明确研究问题和实验变量。
- 下载并安装软件
注意:本研究使用了软件应用(COMSOL、NEURON 和 Python Anaconda)和硬件的指定版本 材料表如果使用不同版本的软件/硬件,步骤或结果可能存在细微差异。- 下载适合计算机操作系统的软件,如有必要,请购买许可证。确保下载所有必需的模拟模块,并安装全部软件。
- 收集待建模组织和细胞的解剖学数据
注意:本方法所采用的解剖学与生物物理参数均来源于实证研究结果。由于数据可获得性的限制,计算模型中常会混合使用来自不同物种的测量参数。在进行脉络膜上腔刺激模拟时,模型需包含刺激电极与参考电极之间的各层组织。- 从组织学研究中获取组织的解剖结构。
- 在此模型中,包含脉络膜、视网膜组织和玻璃体区域,每个区域均建模为矩形棱柱,以便于模型构建。从已发表的组织学数据中收集平均视网膜组织厚度14 随后用作每个棱柱的高度。
- 从细胞染色或公开的神经元数据库中收集单细胞形态学数据。
- 从 NeuroMorpho.org 等数据库下载详细的神经元形态数据,该数据库提供 搜索元数据 根据物种、脑区、细胞类型等特征查找相关神经元。在本研究中,查找 Guo 的 OFF RGC 模型(D23WM13_27_1-OffRGC_msa)15 通过输入 兔子 > 新西兰白兔 在“物种”字段中 视网膜 在 脑区 领域。点击模型并下载 .swc 文件。
- 从组织学研究中获取组织的解剖结构。
- 收集所建模细胞的生物物理数据
注意:生物物理参数包括各组织层的电导率值以及神经膜和离子通道的电学参数。- 由于数据的可获得性,使用从兔获取的电导率值16 对于组织模型,离子通道的动力学基于虎蝾螈视网膜的Sheasby和Fohlmeister模型17.
- 在有限元软件中构建组织和电极的有限元模型几何结构
注意:组织和电极阵列的几何形状均会影响电势分布,进而影响神经细胞的行为。因此,构建出细胞所处环境以及电极的真实几何模型至关重要。本教程所使用的有限元法(FEM)软件配备图形用户界面(GUI),可方便地构建模型几何结构。- 在软件的图形用户界面中设置有限元模型:
- 运行有限元法(FEM)软件并点击 模型向导 > 3D. 在 选择物理学 列表框,展开 交流/直流 > 电场与电流 > 电流(ec),然后点击 添加. 点击 研究 并添加一个 静止的 在以下研究中 通识研究 选项,然后单击 完成 (补充图1).
- 设置电极的单元和几何参数。
- 在模型构建器树中,单击 参数 1在表格中,于“名称”字段输入“elec_rad”,在“表达式”字段输入“50”,以创建半径为50单位的电极。然后,单击 几何学,并将长度单位改为 µm,因为典型的视网膜神经节细胞胞体直径约为 10 µm(补充图2).
- 使用块域创建组织层
注意:为构建模型几何结构,使用了三个区块来代表眼睛中的不同结构。区块1代表脉络膜,区块2代表视网膜组织,区块3代表玻璃体。- 右键单击 几何学 1 > 封闭 创建一个块域。重复此步骤两次,共创建三个块。对于所有块,设置两者的 深度 和 宽度 至 5,000 µm,并改变 基底部 选项(在下方 位置) 至 中心. 分配以下内容 高度 (在下方 大小 和 形状)和 z (在……之下 位置每个区段的值:
区块1:高度 = 112 µm,z = 0 µm
区块2:高度 = 151 µm,z = 131.5 µm
第3区块:高度 = 5,000 µm,z = 2,707 µm
- 右键单击 几何学 1 > 封闭 创建一个块域。重复此步骤两次,共创建三个块。对于所有块,设置两者的 深度 和 宽度 至 5,000 µm,并改变 基底部 选项(在下方 位置) 至 中心. 分配以下内容 高度 (在下方 大小 和 形状)和 z (在……之下 位置每个区段的值:
- 创建工作平面以向模型添加电极
- 右键单击 几何学 1 在模型树中,选择 工作平面. 点击 工作平面 1 并改变 平面类型 到 面平行,点击 激活选择 按钮位于下方 平面类型 并选择区块1(blk 1)的底面 > 1).
- 在工作平面上绘制圆盘电极
- 点击 平面几何 在……下方 工作平面 1 并点击 草图 在主工具栏中。选择 圆,点击矩形区域内的任意位置 图形 标签,拖动以创建盘状电极。更改 半径 至 'elec_rad' µm, xw 和 yw 至 0 µm,然后单击 构建全部.
- 为每个区域分配材料属性
注意:通过执行构建几何结构的步骤,模型将被划分为多个“域”,这些域是构成完整几何结构的独立三维部分。每个域都应分配一个电导率值,以计算整个模型中的电场分布。- 在模型树中,右键单击 材料 > 空白材料,然后点击 材料1 并改变 选择 到 手动.
- 在图形窗口中点击相应区域,仅选择区域1。选择 材料特性 > 基本性质 > 电导率,点击 添加至材料 按钮,并将电导率值更改为 0.043 S/m15.
- 对第2和第3个区域重复上述步骤,电导率值为0.716 和 1.5516 S/m,分别(补充图3).
- 对3D模型进行网格划分:要对模型进行网格划分,请转至模型树并右键单击 网格 1 > 自由四面体. 点击 自由四面体 1 并选择 构建全部.
注意:网格划分过程将整个几何体分解为更小的“单元”(单元是模型几何的虚拟片段,在其中对物理方程进行数值求解)。理论上,使用更小的单元进行网格划分可提高近似结果的准确性,但会显著增加计算负担。通常的做法是,首先采用稀疏网格建立模型并记录模拟结果,随后逐步使用更小的网格单元重复模拟,并比较各次结果。当后续细化步骤之间的计算结果无显著差异时,即可停止细化过程。- 评估网格质量:右键单击 网格 1 并选择 统计学 显示单元质量的直方图。按照以下网格细化步骤操作,以提高单元质量。
注意:使用默认网格划分可能会产生大量低质量的网格单元,进而导致计算结果不准确。在大多数情况下,需要一定程度的网格细化。 - 优化电极周边区域的网格
注意:电场可能发生突变的区域通常需要更精细的网格。此处通过使用边分布功能,在电极周边增加了更密集的网格划分。- 首先,删除现有的自由四面体1网格,然后右键单击 网格 1 > 分布,点击 分布 1,更换 几何实体层级 到 边缘 并选择 边缘 19-22 (圆盘电极的周长)
- 设置 分布类型 到 固定数量的元素 并改变 元素数量 领域到 elec_rad*3/10 使各组分尺寸合理缩小。
- 优化脉络膜及视网膜组织的网格划分
- 在模型树中,右键单击 网格 1 > 扫掠. 点击 扫频 1. 选择 结构域 1 和 2。然后,右键单击 网格 1 > 自由四面体,设置 几何实体层级 到 剩余,然后点击 构建全部(可选:再次检查元素质量直方图,以确保低质量元素的比例已降低)。
- 评估网格质量:右键单击 网格 1 并选择 统计学 显示单元质量的直方图。按照以下网格细化步骤操作,以提高单元质量。
- 在软件的图形用户界面中设置有限元模型:
- 将物理原理应用于有限元模型
注意:有限元法(FEM)软件中的“物理场”是指需要分配给模型的一组数学方程和边界条件。在运行模型过程中,实际执行的是对这组联立方程求解的计算。为几何体选择何种物理场取决于所模拟的物理现象。例如,本模型中所采用的电流物理场用于观察电场分布,而忽略磁场(感应)效应。若需求解其他物理问题(如温度分布、机械应力等),则可对同一几何体应用其他相应的物理场。- 物理模型的选择与边界条件的施加
注意:若施加恒定电压脉冲,应将浮置电位边界条件替换为电势边界条件。- 展开 电流 1 在模型树中并检查是否 当前保护 1, 电绝缘 1,以及 初始值 1 已列出。然后,右键单击 电流 1 > 地面 (将远处平面设为 0 V,以模拟远处的参考电极),并将此条件施加于距离电极最远的表面(表面 10)。
- 接下来,右键单击 电流 1 > 浮动电位 (模拟一个具有恒定电流的电流源),分配给盘状电极(表面14),并更改 I 0 将值设为1[µA]以施加一个单位电流。
- 通过参数扫描运行模拟。
注意:此步骤将运行仿真,并添加了参数化扫描,即通过多次仿真,每次改变一个参数的取值。此处对电极半径参数进行了扫描,并将每次仿真得到的电势分布保存在模型文件中。仿真运行完成后,模型树中的“结果”分支将生成一个电势(ec)多切片图。- 在模型树中,右键单击 研究 1 > 参数扫描. 点击 参数扫描,以及在 研究环境 表格,点击 添加,然后选择 电辐射 对于 参数名称.
- 输入“50, 150, 350, 500”作为 参数值列表 和“µm”用于 参数 单位,然后点击 计算 开展本研究(补充图4).
- 物理模型的选择与边界条件的施加
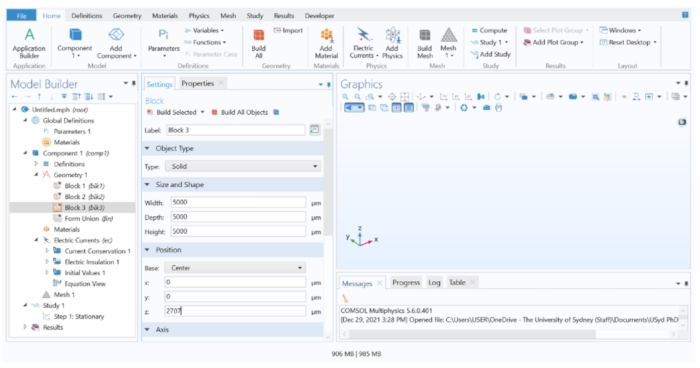
图 1:创建组织几何结构。 在有限元模型中插入一个块状几何体以表示组织。请点击此处查看此图的放大版本。
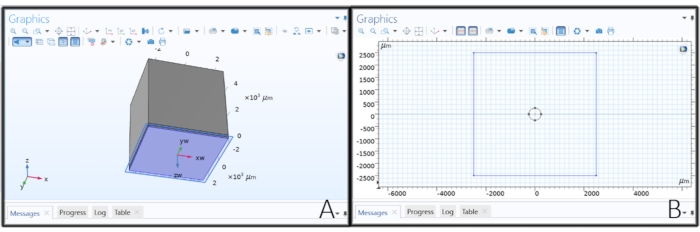
图2:创建电极的几何结构。(A)建立工作平面以绘制盘状电极。(B)在工作平面上绘制圆形以创建盘状电极。请点击此处查看该图的放大版本。
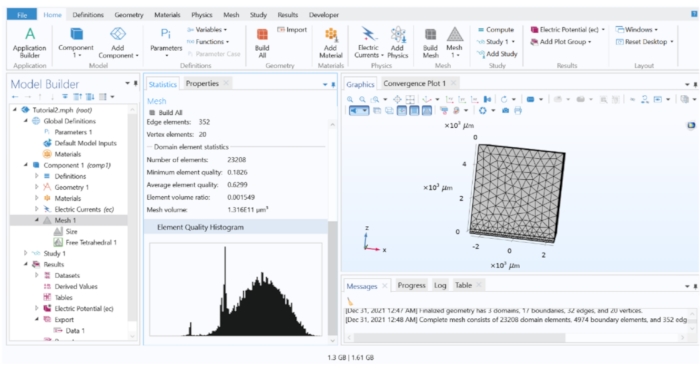
图 3:有限元模型的单元质量直方图。 该直方图显示了模型中所有单元的质量分布情况。如果大量单元位于低质量区域,则需要进行网格细化。请点击此处查看该图的放大版本。
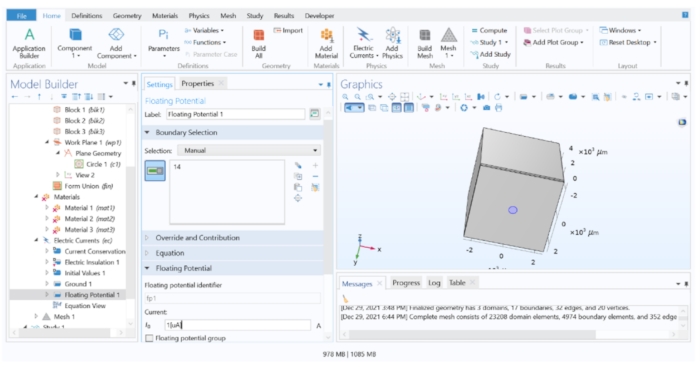
图 4:为电极指定电流值。 在有限元软件中对电极几何结构施加单位电流。 请点击此处查看该图的放大版本。
2. 在神经元计算套件的图形用户界面中导入神经细胞的几何结构
- 构建细胞模型的几何结构
- 使用细胞构建器(Cell Builder)功能导入形态
- 从 NEURON 计算套件的安装文件夹中运行 'nrngui',点击 Tools > Miscellaneous > Import 3D,然后勾选 Choose a File 框。
- 找到下载的 .swc 文件并点击 Read。几何结构导入完成后,点击 Export > Cell Builder(补充图 5)。
- 创建导入细胞形态的 .hoc 文件
- 转到 Subsets 选项卡,查看模型中已预定义的子区域(例如 soma、axon、basal 等)。勾选 Continuous Create 框,进入 Management > Export,将形态导出为 'rgc.hoc'。
- 查看细胞的形态
- 在工具栏上点击 Tool > Model View > 1 Real Cells > Root Soma[0],右键单击弹出的窗口,然后点击 Axis Type > View Axis。通过目视检查,该模型的树突场直径约为 250 µm。现在关闭 NEURON 窗口。
- 使用细胞构建器(Cell Builder)功能导入形态
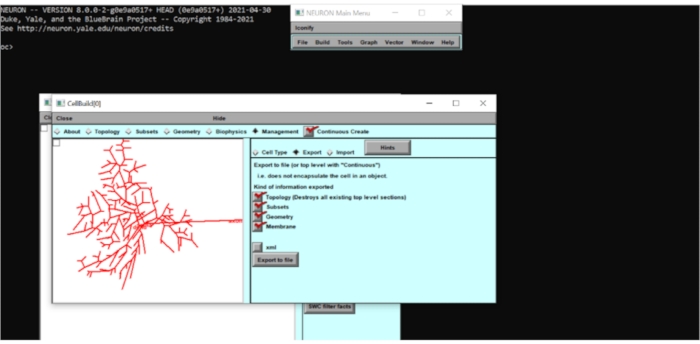
图 5:将神经元模型信息导出为 .hoc 文件。 神经元的几何结构已导出为 .hoc 文件,以便进行进一步修改。请点击此处查看该图的放大版本。
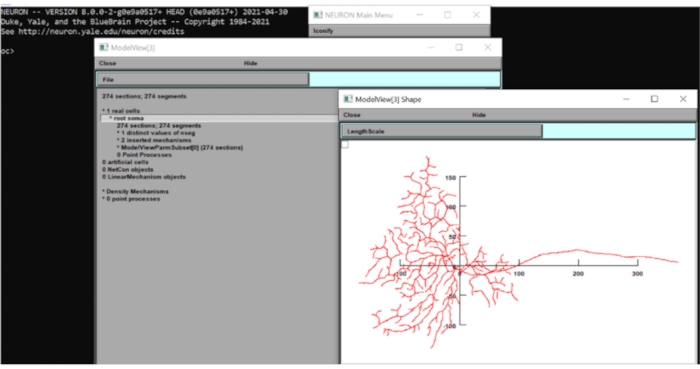
图6:测量神经元的尺寸。 神经元的形态(俯视图)显示在神经元计算套件的图形用户界面中,叠加了x-y坐标轴。比例单位为µm。 请点击此处查看该图的放大版本。
3. 编程 NEURON 计算模拟
- 通过 .hoc 语言编程调节细胞形态
注意:细胞的形态可以调整 通过 GUI 的“细胞构建器”功能。然而,本文演示了如何通过编辑 .hoc 文件来加快该过程。.hoc 文件定义了所建模细胞的拓扑结构(神经元各部分之间的物理连接)、形态学特征(每个神经元区段的长度、直径和位置)以及生物物理特性(离子通道参数)。有关 .hoc 编程的完整文档请见:https://neuron.yale.edu/neuron/static/new_doc/index.html#- 使用文本编辑器(例如记事本)打开生成的 .hoc 文件。按照 Sheasby 和 Fohlmeister 的描述,在靠近胞体的位置添加一段长度为 40 µm 的轴突起始段和一段长度为 90 µm 的细窄轴突段。17,以及改变树突的长度,使树突野大小达到180 µm,以与Rockhill等研究中的G1细胞相匹配。18.
- 创建新的细胞节段并定义每个节段的拓扑连接关系。
- 为了创建轴突起始段(AIS)和狭窄轴突段(NS)的新细胞节段,将以下代码行添加到 rgc.hoc 文件的开头:
创建AIS、NS // 定义名为AIS和NS的细胞区室
然后,将 'connect axon(0), soma[1](1)' 这一行替换为:
连接 ais(0) 与 soma[1](1) // 将轴突起始段的第一个节段连接到 soma[1] 的末端
连接 ns(0) 与 ais(1) // 将 NS 的第一段连接至 AIS 的末端
连接轴突(0)与ns(1) // 将轴突的第一段连接到NS的末端
- 为了创建轴突起始段(AIS)和狭窄轴突段(NS)的新细胞节段,将以下代码行添加到 rgc.hoc 文件的开头:
- 定义细胞节段的三维位置、直径和长度
- 在 'proc shape3d_31()' 括号内编写以下代码行,以定义轴突起始段(AIS)和节点样结构(NS)区室的三维位置和直径:
ais { pt3dadd(-2.25, -1.55, 0, 1) // 前三个数为 xyz 坐标,直径为 1 µm
pt3dadd(37.75, -1.55, 0, 1)} // 第一个点位于 x = -2.25 µm,最后一个点位于 x = 37.75 µm
ns { pt3dadd(37.75, -1.55, 0, 0.3) // NS 节段的三维坐标及直径
pt3dadd(127.75, -1.55, 0, 0.3)} - 在文件末尾,输入以下命令以调整轴突的三维坐标,使其起点与神经束(NS)的终点对齐:
轴突 {对于 i=0 到 n3d()-1 {pt3dchange(i, x3d(i)+130, y3d(i), z3d(i)-5, diam3d(i))}} // 沿 x 坐标方向平移 - 在文件末尾,通过输入以下内容将树突区室缩短18%:
forsec 基底 {L=L*0.82} // 缩放长度以减小树突区域尺寸
define_shape() // 填补缺失的三维信息
- 在 'proc shape3d_31()' 括号内编写以下代码行,以定义轴突起始段(AIS)和节点样结构(NS)区室的三维位置和直径:
- 创建新的细胞节段并定义每个节段的拓扑连接关系。
- 使用文本编辑器(例如记事本)打开生成的 .hoc 文件。按照 Sheasby 和 Fohlmeister 的描述,在靠近胞体的位置添加一段长度为 40 µm 的轴突起始段和一段长度为 90 µm 的细窄轴突段。17,以及改变树突的长度,使树突野大小达到180 µm,以与Rockhill等研究中的G1细胞相匹配。18.
- 确定每个部分的段落数量
注意:神经元的每个区段均可进行空间离散化,类似于有限元模型(FEM)中的网格划分过程。空间离散化在虚拟上将神经元划分为更小的节段,以便在这些节段上进行计算。对于节段数“nseg”,应确保使用奇数,以保证细胞区段的中点处存在一个内部节点;并尝试将nseg数值逐次增至三倍,直至计算结果趋于稳定一致9分段数量越多,数值近似结果越精确,但同时也会增加计算负荷。- 为说明离散化过程,向 rgc.hoc 文件中添加以下代码行,将神经元的胞体和轴突部分划分为多个段:
forsec somatic {nseg=31}
forsec 轴突 {nseg=301}
模型中的其他部分也需要进行离散化处理,方法是输入这些语句,但根据需要修改子集名称(位于 'forsec' 之后)和段数(位于 'nseg' 之后)。
- 为说明离散化过程,向 rgc.hoc 文件中添加以下代码行,将神经元的胞体和轴突部分划分为多个段:
- 插入自定义离子通道机制
- 编写自定义离子通道机制的 .mod 文件:为应用离子通道机制,需创建 .mod 文件,并按照步骤 3.3.1–3.3.3 将这些文件插入到 .hoc 文件的生物物理部分。.mod 文件包含用于求解每个离子通道的变量和微分方程。
注意:正确的离子通道机制定义与实现对于精确的神经元模拟至关重要。在编写 .mod 文件时,需检查单位是否正确(可运行提供的 'modlunit' 工具以验证单位一致性),并确保方程书写无误。为验证离子通道机制的正确性,可在细胞内或细胞外刺激期间绘制每种离子通道的电流,并将其与实证研究结果进行比较。- 电压门控离子通道
注意:创建电压门控离子通道的 .mod 文件通常包括一个 衍生物 包含待求解微分方程的模块 断点 使用选定数值逼近方法求解微分方程的指令模块,以及 实验步骤 用于指示程序计算门控参数的模块(例如,本示例中的 mt、ht 和 d)。该代码将计算每个时间步长通过通道的离子电流值。- 以该过程为例,构建一个具有用于求解门控变量的一阶微分方程的电压依赖性钙通道。
- 在文本编辑器中新建一个文件,并输入以下行 补充材料- 定义一个电压依赖性钙通道。将此文件保存为与 .hoc 文件同一文件夹下的 Cat.mod。此过程需对模型神经元包含的其他离子通道重复进行。
- 电压门控和浓度依赖性离子通道
- 某些离子通道的动力学特性(如视网膜神经节细胞中的钙激活钾通道)不仅依赖于跨膜电压,还依赖于细胞内钙离子浓度19. 为模拟此类机制,创建一个名为 KCa.mod 的文件,并输入如图所示的各行内容 补充材料- 具有电压和浓度依赖性的离子通道。在此 .mod 文件中,变量 'cai' 被定义为细胞内 Ca 离子浓度,该变量随后用于方程中以计算 iKCa 电流。
- 电压门控离子通道
- .mod 文件合集
- 通过运行 NEURON 计算套件来编译所有 .mod 文件 mknrndll 从安装文件夹中启动工具。找到包含 .mod 文件的文件夹,点击编译以生成 O 和 C 文件。完成此步骤后,可将这些机制插入该细胞模型中。
- 在主 NEURON 模型文件中应用 .mod 文件。
注意:除了插入离子通道外,最大钠电导仅针对“胞体”亚群进行定义。如有需要,可针对不同神经元节段 individually 调整最大膜电导。- 为简洁起见,将所有离子通道机制合并到一个 .mod 文件中(补充材料-完整的 .mod 文件)。在 rgc.hoc 文件的 'biophys' 过程中输入以下代码行,将包含所有离子通道及一个被动漏电通道的合并 .mod 文件插入到 'somatic' 子集的所有节段中:
forsec somatic {insert rgcSpike
插入 pas // 被动漏通道
gnabar_rgcSpike = 80e-3
g_pas = 0.008e-3 // 漏膜电导
- 为简洁起见,将所有离子通道机制合并到一个 .mod 文件中(补充材料-完整的 .mod 文件)。在 rgc.hoc 文件的 'biophys' 过程中输入以下代码行,将包含所有离子通道及一个被动漏电通道的合并 .mod 文件插入到 'somatic' 子集的所有节段中:
- 设定轴浆电阻率
- 细胞的轴浆电阻率可根据不同区室进行调整。在本模型中,所有节段的电阻率均相同,为 110 Ω·cm。请在 rgc.hoc 文件中修改轴浆电阻率:
对于所有 {Ra = 110}
- 细胞的轴浆电阻率可根据不同区室进行调整。在本模型中,所有节段的电阻率均相同,为 110 Ω·cm。请在 rgc.hoc 文件中修改轴浆电阻率:
- 编写自定义离子通道机制的 .mod 文件:为应用离子通道机制,需创建 .mod 文件,并按照步骤 3.3.1–3.3.3 将这些文件插入到 .hoc 文件的生物物理部分。.mod 文件包含用于求解每个离子通道的变量和微分方程。
- 插入细胞外刺激电极并定义脉冲波形
- 将细胞外机制插入细胞模型
- 为了使细胞模型能够响应细胞外电压,在 rgc.hoc 文件末尾输入以下代码行,将细胞外机制插入到所有节段中:
对于所有{插入细胞外}
- 为了使细胞模型能够响应细胞外电压,在 rgc.hoc 文件末尾输入以下代码行,将细胞外机制插入到所有节段中:
- 生成双相脉冲
注意:在本演示中,通过创建一个 .hoc 文件中的程序,生成一个用户可调节脉冲宽度、相间间隙和重复次数的恒流双相脉冲。对于更结构化的程序,可使用 rgc.hoc 文件来构建细胞模型,而将刺激过程实现在另一个独立的 .hoc 文件中,该文件将加载细胞模型并施加刺激。- 创建一个名为 stimulation.hoc 的新文本文件,并通过加载细胞模型文件开始编写代码;然后,通过定义一个过程来生成双相脉冲,如图所示 补充材料- 在神经元模拟中创建双相脉冲。
注意:此步骤将生成一个恒定电流的阴极优先双相脉冲,脉冲参数需在运行仿真时由用户设定。目前,阳极和阴极脉冲的幅度为 ±1 µA,但该幅度需根据圆盘电极传递的刺激电流进行相应调整。
- 创建一个名为 stimulation.hoc 的新文本文件,并通过加载细胞模型文件开始编写代码;然后,通过定义一个过程来生成双相脉冲,如图所示 补充材料- 在神经元模拟中创建双相脉冲。
- 将细胞外机制插入细胞模型
4. 运行和自动化多个模拟
- 整合模型
- 提取神经元细胞模型中节点的坐标
注意:整合仿真的目的是获取与细胞模型每个节点相对应的细胞外电位值。然而,两个模型的坐标必须对齐。在此示例中,胞体的中心节段(soma(0.5))被对齐至视网膜组织的水平中平面(对应于视网膜神经节细胞层),且胞体的中心节点正好位于圆盘电极中心的正上方。- 打开有限元法(FEM)模型,并记录参考点的坐标(例如,位于圆盘电极中心正上方的视网膜组织水平中平面),此处为 [0, 0, 131.5] µm。
- 在神经元计算套件中,创建一个名为 calculateCoord.hoc 的文件,用于提取每个节段质心的坐标,并移动每个部分,使胞体的中心节段具有与FEM模型中参考点相同的坐标(补充材料—计算每个节点的坐标)。
- 将坐标点保存为文本文件
- 运行 calculateCoord.hoc 文件(可通过在文件资源管理器中双击打开,或启动神经元计算套件的图形用户界面(GUI),然后在工具栏中点击 文件 > 加载 hoc)。将用于评估细胞外电压值的坐标保存为名为 'coordinates.dat' 的文本文件。
- 运行仿真并将电压数据保存为文本文件
注意:在此步骤中,我们从FEM模型中提取了计算得到的细胞外电位值,但仅保存与每个细胞节段中心重合的相关坐标处的数据。当需要导出大量电位时,请遵循步骤 4.1.6.2。- 在FEM软件中打开组织模型文件;在 模型树 中进入 结果 标题,点击 导出 > 数据 > 数据 1。确保 数据集 设置为 研究 1/参数化解 1,然后在 表达式 列中输入 'V',在 单位 列中输入 'mV'。
- 在 输出 下,将 文件名 更改为 extracellular.dat,并选择 评估点来源:来自文件。在 坐标文件 字段中加载 coordinates.dat,然后点击 导出。
- 向细胞模型施加双相脉冲
注意:在此阶段,已获得每个细胞节段在某一时间点(电流为 1 µA 时)的细胞外电压值。由于本研究旨在对细胞施加双相脉冲,需使用 'vector.play' 方法使细胞所经历的细胞外电压值随时间变化。- 在 stimulation.hoc 文件中添加 补充材料—在 stimulation.hoc 中应用双相脉冲 所示的代码行。
- 运行联合仿真
注意:为运行仿真,需定义用于数值近似的时步 'dt'。与 nseg 类似,更短的 dt 可提高计算精度,但也会增加计算成本。- 在 stimulation.hoc 文件末尾添加 补充材料—执行神经元仿真 所示的代码行。然后双击 stimulation.hoc 文件以加载脚本并自动运行仿真。感兴趣节段的跨膜电位可在神经元计算套件的图形用户界面中显示(步骤 4.2.1),或保存为文本文件供其他程序读取(步骤 4.1.6.1.2)。若需重复计算并导出大量跨膜电位,请遵循步骤 4.1.6.1 和 4.1.6.2。
- 附加:自动执行仿真
注意:为寻找阈值幅度,可多次循环仿真,每次使用不同的电流幅度。若需确定位于刺激电极不同位置的神经元的阈值,则可能需要另一种自动化方法。可在神经元计算套件中使用过程(procedure)实现自动化,也可在FEM软件中使用称为“方法”(method)的脚本实现。- 自动化神经元仿真以确定阈值幅度
注意:可自动批量执行神经元仿真。以下步骤在神经元仿真程序中实现,用于确定不同刺激参数下神经元的阈值幅度。- 在神经元仿真程序中创建重复仿真的过程:在 stimulation.hoc 中创建一个向量,用于包含待测试的一系列电流幅度。然后创建一个过程,用于施加电流幅度并记录是否出现动作电位(跨膜电压由负变正),并将阈值幅度定义为引发动作电位的最小电流幅度。为此,在 stimulation.hoc 文件末尾定义一个名为 findTh() 的过程(补充材料—循环一系列电流幅度)
- 将阈值下的响应保存为文本文件:在 stimulation.hoc 的 findTh() 过程中添加以下代码行,以将每个时间步长下所有神经元区室的计算跨膜电压值存储到文本文件中:
sprint(saveFileName, "Response_%d.dat", th) // 存储阈值
saveFile.wopen(saveFileName)
for i=0,(responseVector.size()-1){
saveFile.printf("%g, ", responseVector.x[i])
if(i==responseVector.size()-1) {saveFile.printf("%g\n", responseVector.x[i])
saveFile.close(saveFileName)
}}
- 在FEM软件中自动化获取不同位置神经元的电压值
注意:另一种可实现的自动化是自动获取位于不同位置的神经元的细胞外电压值。FEM软件中的“应用程序构建器”菜单提供了一种定义“方法”(method)或脚本的方式,以自动化软件执行计算所需的步骤。作为示例,将细胞在 x 方向上的位置以 100 µm 步长移动 5 次(补充图 6)。- 编写FEM仿真自动化的代码。
- 进入 应用程序构建器,在应用程序构建器树中右键点击 方法,选择 新建方法,然后点击 确定。进入 文件 > 首选项 > 方法,勾选 查看所有代码 框,然后点击 确定。
- 编写一个 .hoc 脚本,用于加载坐标文件,将坐标值移动至目标位置,并通过输入 补充材料—定义方法以自动化FEM仿真 中所示的代码,生成包含新位置电压值的文本文件。
- 在FEM软件中运行自动化步骤:切换至 模型构建器,开发者 > 运行方法 > 方法 1。这将生成包含相应电压值的 .dat 文件,文件名为 extracellular_1.dat、extracellular_2.dat 等。
- 编写FEM仿真自动化的代码。
- 使用通用编程语言循环执行仿真
注意:为循环执行仿真,每次需将适当的文本文件加载至神经元计算套件的仿真中,使用一种能够轻松加载和处理文本文件的编程语言20 来执行此步骤较为方便。可使用任何合适的集成开发环境(IDE)21 完成此步骤。- 打开所选的IDE,点击 新建文件 创建新脚本。本示例中使用 .py 文件。输入 补充材料—使用通用编程语言运行仿真 中所示的代码行。
- 最后,点击 运行 或按 F5 运行脚本,该操作还将打开图形用户界面(补充图 7)。
- 自动化神经元仿真以确定阈值幅度
- 提取神经元细胞模型中节点的坐标
- 仿真数据的显示
注意:通过执行上述所有步骤,仿真结果应已存储在文本文件中,包含阈值和阈值下的跨膜电位。但用户也可选择在仿真运行时使用NEURON的图形用户界面(GUI)实时显示仿真结果。- 在神经元计算套件的图形用户界面中绘制神经元模型对细胞外刺激的响应。为此,运行 stimulation.hoc,从工具栏中点击 图形 > 电压轴,然后在图形窗口中任意位置右键点击并选择 绘制内容。
- 在 要绘制的变量 字段中输入 'axon.v(1)',表示将绘制轴突最后一个节段在每个时间步长的跨膜电位。
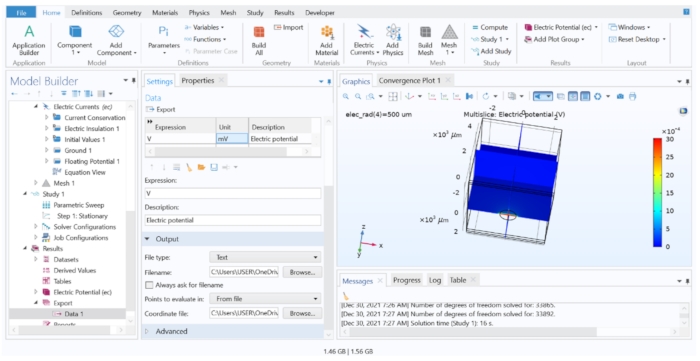
图 7:将有限元计算结果展示并导出为文本文件。 图形窗口显示了以 V 为单位的电势多切片图。数据导出设置中的选项允许将计算变量导出为文本文件。请点击此处查看该图的放大版本。
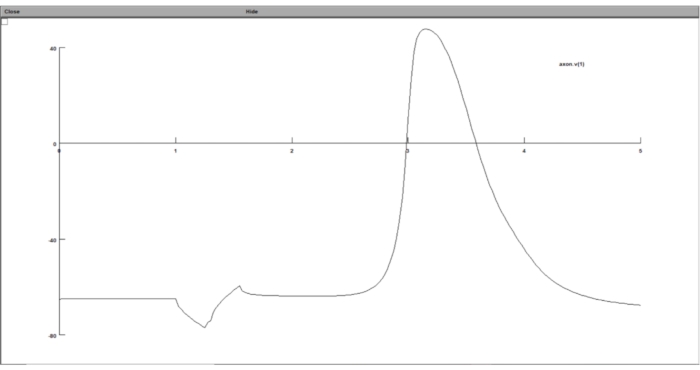
图8:使用电压图显示跨膜电位的曲线图。 神经元跨膜电位在神经元计算套件的图形用户界面(GUI)中显示。横轴为时间,单位为毫秒(ms),纵轴为所选神经元节段的跨膜电位,单位为毫伏(mV)。请点击此处查看该图的放大版本。
访问受限。请登录或开始试用以查看此内容。
结果
我们采用了两种模拟方案来演示该模型的使用。第一种方案是在保持神经元位置和电脉冲参数不变的情况下,改变电极的尺寸。第二种方案是在x方向上以100 µm为步长移动神经元的位置,同时保持电极尺寸不变。在这两种方案中,所使用的脉冲均为单个阴极优先的双相脉冲,脉宽为0.25 ms,相间间隔为0.05 ms。在第一种方案中,电极半径分别设置为50、150、350和500 µm;而在第二种方案中,电极半径始终保持在50 µm。
此处描述的模型表明,在0.25 ms脉冲宽度下,增大脉络膜上腔电极尺寸会提高模型神经元的激活阈值(图9A)。该结果反映了 体内 梁等人研究发现12,表明在此脉冲宽度下,皮层激活阈值随电极尺寸的增加而升高。
模型激活阈值的大小与实证研究结果存在差异,原因有多个方面。首先,该模型仅包含一种特定类型的单个视网膜神经节细胞(RGC),而这种细胞类型可能并不存在于被激活的细胞群体中 体内
访问受限。请登录或开始试用以查看此内容。
讨论
本文展示了一种结合有限元与生物物理神经元建模的建模工作流程。该模型具有高度灵活性,可根据不同需求调整其复杂程度,并提供了将结果与实证研究发现进行验证的方法。我们还展示了如何对模型进行参数化以实现自动化。
两步建模方法结合了有限元法(FEM)和神经元计算套件的优势,用于求解存在细胞外刺激时神经元的电缆方程。有限元法在精确计算容积导体中细胞外电场分布方面具有优势,而此类问题在几何结构复杂或电导率不均匀的情况下通常难以通过解析方法求解。由于该模型假设为静态条件,其计算成本也相对较低。
尽管所描述的建模方法在易用性和灵活性方面具有优势,但该建模流程仍存在局限性。首先,该方法在计算电场时未考虑神经膜的存在。Joucla 等人25将两步法与完整的有限元法(whole FEM)进行了比较,后者在有限元模型中包含了神经元几何结构和膜特性。他们表明,当在几何结构中包含较大的细胞结构(如胞体)时,将神经元纳入电场计算会影响跨膜电位的计算结果。具体而言,两步法对神经元几何结构的简化意味着,某一区室中任...
访问受限。请登录或开始试用以查看此内容。
披露
作者声明无竞争利益。
致谢
本研究由澳大利亚国家卫生与医学研究委员会项目资助(资助编号 1109056)。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 计算机工作站 | N/A | N/A | Windows 64位操作系统,至少4GB内存,至少3 GB磁盘空间 |
| Anaconda Python | Anaconda Inc. | 版本 3.9 | 开源的个人版,包含 Python 3.9 及预安装的数据处理相关软件包,以及 Spyder 集成开发环境。可用于控制仿真过程,并显示和分析仿真数据。 |
| COMSOL Multiphysics | COMSOL | 版本 5.6 | 用于执行有限元建模的仿真套件。需购买 AC/DC 模块的许可证。许可证中应包含 Application Builder 功能,以便遵循自动化教程。 |
| NEURON | NEURON | 版本 8.0 | 一款免费分发的软件,用于神经元细胞和/或神经网络的计算模拟。 |
参考文献
- Greenberg, R. J., Velte, T. J., Humayun, M. S., Scarlatis, G. N., de Juan, E. A computational model of electrical stimulation of the retinal ganglion cell. IEEE Transactions on Bio-medical Engineering. 46 (5), 505-514 (1999).
- Guo, T., et al. Mediating retinal ganglion cell spike rates using high-frequency electrical stimulation. Frontiers in Neuroscience. 13, 413(2019).
- Loizos, K., et al. Increasing electrical stimulation efficacy in degenerated retina: Stimulus waveform design in a multiscale computational model. IEEE Transactions on Neural Systems and Rehabilitation Engineering. 26 (6), 1111-1120 (2018).
- Cao, X., Sui, X., Lyu, Q., Li, L., Chai, X. Effects of different three-dimensional electrodes on epiretinal electrical stimulation by modeling analysis. Journal of Neuroengineering and Rehabilitation. 12 (1), 73(2015).
- Wilke, R. G. H., Moghadam, G. K., Lovell, N. H., Suaning, G. J., Dokos, S. Electric crosstalk impairs spatial resolution of multi-electrode arrays in retinal implants. Journal of Neural Engineering. 8 (4), 046016(2011).
- AC/DC module user's guide. COMSOL AB. , Available from: https://doc.comsol.com/5.4/doc/com.comsol.help.acdc/ACDCModuleUsersGuide.pdf (2018).
- Malmivuo, P., Malmivuo, J., Plonsey, R. Bioelectromagnetism: Principles and Applications of Bioelectric and Biomagnetic Fields. , Oxford University Press. New York. (1995).
- Rall, W. Electrophysiology of a dendritic neuron model. Biophysical Journal. 2, 145-167 (1962).
- Carnevale, N. T., Hines, M. L. The Neuron Book. , Cambridge University Press. Cambridge. (2006).
- Rattay, F. The basic mechanism for the electrical stimulation of the nervous system. Neuroscience. 89 (2), 335-346 (1999).
- Hodgkin, A. L., Huxley, A. F. A quantitative description of membrane current and its application to conduction and excitation in nerve. The Journal of Physiology. 117 (4), 500-544 (1952).
- Liang, T., et al. Threshold suprachoroidal-transretinal stimulation current required by different-size electrodes in rabbit eyes. Ophthalmic Research. 45 (3), 113-121 (2011).
- Jensen, R. J., Rizzo, J. F., Ziv, O. R., Grumet, A., Wyatt, J. Thresholds for activation of rabbit retinal ganglion cells with an ultrafine, extracellular microelectrode. Investigative Ophthalmology and Visual Science. 44 (8), 3533-3543 (2003).
- Kim, W., Choi, M., Kim, S. -W. The normative retinal and choroidal thicknesses of the rabbit as revealed by spectral domain optical coherence tomography. Journal of the Korean Ophthalmological Society. 62 (3), 354-361 (2021).
- Guo, T., et al. Influence of cell morphology in a computational model of ON and OFF retinal ganglion cells. 35th Annual International Conference of the IEEE Engineering in Medicine and Biology Society (EMBC). 2013, 4553-4556 (2013).
- Haberbosch, L., et al. Safety aspects, tolerability and modeling of retinofugal alternating current stimulation. Frontiers in Neuroscience. 13, 783(2019).
- Sheasby, B. W., Fohlmeister, J. F. Impulse encoding across the dendritic morphologies of retinal ganglion cells. Journal of Neurophysiology. 81 (4), 1685-1698 (1999).
- Rockhill, R. L., Daly, F. J., MacNeil, M. A., Brown, S. P., Masland, R. H. The diversity of ganglion cells in a mammalian retina. Journal of Neuroscience. 22 (9), 3831-3843 (2002).
- Lukasiewicz, P., Werblin, F. A slowly inactivating potassium current truncates spike activity in ganglion cells of the tiger salamander retina. The Journal of Neuroscience: The Official Journal of the Society for Neuroscience. 8 (12), 4470-4481 (1988).
- Van Rossum, G. Python Reference Manual. , CWI: Centrum voor Wiskunde en Informatica. Amsterdam. (1995).
- Spyder Doc Contributors. Welcome to Spyder's Documentation - Spyder 5 documentation. , Available from: https://docs.spyder-idle.org/current/index.html (2022).
- Rattay, F. Ways to approximate current-distance relations for electrically stimulated fibers. Journal of Theoretical Biology. 125 (3), 339-349 (1987).
- Tsai, D., Morley, J. W., Suaning, G. J., Lovell, N. H. Direct activation and temporal response properties of rabbit retinal ganglion cells following subretinal stimulation. Journal of Neurophysiology. 102 (5), 2982-2993 (2009).
- Tsai, D., Morley, J. W., Suaning, G. J., Lovell, N. H. Frequency-dependent reduction of voltage-gated sodium current modulates retinal ganglion cell response rate to electrical stimulation. Journal of Neural Engineering. 8 (6), 066007(2011).
- Joucla, S., Glière, A., Yvert, B. Current approaches to model extracellular electrical neural microstimulation. Frontiers in Computational Neuroscience. 8, 13(2014).
- OpenFOAM. , Available from: https://www.openfoam.com/ (2022).
- Barba, L., Forsyth, G. CFD Python: The 12 steps to Navier-Stokes equations. Journal of Open Source Education. 1 (9), 21(2018).
访问受限。请登录或开始试用以查看此内容。
重印与许可
