本实验描述了一种可翻译的渐进负荷跑轮抗阻训练小鼠模型。该抗阻训练模型的主要优势在于其完全为自愿进行,从而降低了动物的应激反应以及研究人员的工作负担。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
既往建立的啮齿类动物抗阻运动模型,包括协同肌切除、电刺激、负重攀爬梯以及最近开发的负重雪橇拖拉等方法,均能有效提供促进肌肉肥大的刺激,从而诱导骨骼肌适应性改变。尽管这些模型在骨骼肌研究中已被证明具有重要价值,但它们要么具有侵入性,要么属于非自主运动且劳动强度大。幸运的是,许多品系的啮齿类动物在接触跑轮后会自发进行长距离跑动。啮齿类动物的负重跑轮运行(LWR)模型能够诱导出与人类抗阻训练相似的适应性变化,例如肌肉质量增加、肌纤维肥大以及肌肉蛋白质合成的激活。然而,施加中等跑轮负荷时,要么无法阻止小鼠进行大量跑动(更接近耐力-抗阻联合训练模型),要么由于负荷施加方式的问题导致小鼠几乎完全停止跑动。因此,研究人员开发了一种新型的高负荷跑轮运行模型(HLWR),该模型通过逐步增加外部阻力,使小鼠能够在远高于以往所用负荷的情况下持续跑动。该新型HLWR模型的初步结果显示,在为期9周的训练方案中,其提供的刺激足以诱导显著的肌肉肥大适应性变化。本文详细描述了在小鼠中实施这一简单且低成本的渐进性抗阻运动训练模型的具体操作步骤。
引言
骨骼肌质量约占成年人体质量的40%;因此,终生维持骨骼肌质量至关重要。骨骼肌质量在能量代谢、维持核心体温以及葡萄糖稳态中发挥着重要作用1。骨骼肌的维持依赖于蛋白质合成与蛋白质降解之间的平衡,但目前对驱动这些过程的复杂分子机制仍存在诸多认识空白。为了研究调控肌肉质量维持与增长的分子机制,人类受试者研究模型常采用基于抗阻运动的干预手段,因为机械刺激在调控骨骼肌质量中起着关键作用。尽管人类受试者研究已取得一定成果,但适应性变化所需时间较长,以及对侵入性操作(如肌肉活检)存在的伦理顾虑,限制了可获取数据的数量。虽然抗阻运动的适应性反应在哺乳动物中具有较高的普遍性,但动物模型具有能够精确控制饮食和运动方案的优势,同时允许采集全身各组织样本,如脑、肝、心脏和骨骼肌。
已开发出多种用于啮齿类动物的抗阻训练模型:协同消融2、电刺激3,4、负重攀爬梯子5、负重雪橇拖拽6以及覆盖式深蹲7。显然,如果操作得当,所有这些模型均可有效诱导骨骼肌适应性变化,例如肥大。然而,这些模型的缺点在于大多属于非自主性训练,不符合啮齿类动物的自然行为,且耗时耗力、具有侵入性。
幸运的是,许多小鼠和大鼠品系在能够接触跑轮时会自愿进行长距离奔跑。此外,自由跑轮(FWR)运动模型不需要大量训练、正/负强化或麻醉来强迫动物运动或激活肌肉8,9。奔跑活动的程度在很大程度上取决于小鼠品系、性别、年龄以及个体差异。Lightfoot 等人比较了15种不同小鼠品系的奔跑活动,发现每日奔跑距离范围为2.93 km至7.93 km,其中C57BL/6小鼠的奔跑距离最远,且不受性别影响10。FWR被广泛认为是诱导骨骼肌和心肌耐力适应性的优秀模型11,12,13,14,15,16;然而,将跑轮奔跑应用于抗阻训练模型的研究则相对较少。
可以预见,通过在跑轮上增加阻力(称为负重跑轮训练,LWR),可能增强跑轮运动引起的肌肉肥大效应,从而需要动物付出更大的努力来转动跑轮,以更接近模拟抗阻训练的效果。采用不同的加荷方式,先前的研究表明,在大鼠和小鼠中应用LWR模型,通常可在6至8周内使肢体肌肉质量增加5%–30%17,18,19,20,21。此外,D'hulst等人证明,与自由跑轮训练(FWR)相比,单次LWR训练可使蛋白质合成信号通路的激活程度高出50% 22。目前最常用的施加跑轮阻力的方法是基于摩擦的恒定负荷法,即利用磁力制动器或张力螺栓来施加跑轮阻力12,19,23,24。然而,这种基于摩擦的恒定负荷方法存在一个局限性:当施加中等到较高阻力时,动物无法克服过高的初始阻力以启动跑轮转动,从而导致训练实际上无法进行。更重要的是,目前用于啮齿类动物跑轮实验的多数笼具和跑轮系统价格昂贵,且需要专用设备。
最近,Dungan 等人开发了一种渐进式负重跑轮(progressive weighted-wheel-running, PoWeR)模型,该模型以非对称方式对跑轮施加负荷。 通过 附着于转轮单侧的外部质量。PoWeR模型的不平衡转轮负荷和可变阻力被认为能够促进小鼠持续进行跑轮活动,并促使其进行更接近抗阻训练中“组”和“次”模式的短时负重跑轮运动17尽管平均每日跑动距离为10–12公里,PoWeR模型仍使跖肌湿重和肌纤维横截面积(CSA)分别增加了16%和17%。尽管PoWeR模型具有诸多实际优势,但该低强度跑步(LWR)模型仍存在一些局限性。正如作者所指出的,PoWeR模型属于大运动量 "杂交" 一种反映耐力与抗阻训练相结合模式(即人类的同步训练)的刺激,与更严格的以抗阻训练为基础的模式相比,可能引入干扰效应,从而导致肌肉肥大程度较低或诱导肌肉肥大的机制有所不同25确保在本应为抗阻训练模型的实验中不出现同时性训练效应至关重要。因此,对PoWeR模型进行了改良,建立了LWR模型,采用比以往更高的负荷,以更贴近抗阻训练模型。本文详细介绍了在C57BL/6小鼠中实施的一种简单且低成本的为期9周的渐进性抗阻训练LWR模型。
访问受限。请登录或开始试用以查看此内容。
方案
本研究已获得阿巴拉契亚州立大学机构动物护理和使用委员会的批准(#22-05)。
1. 动物
- 从本单位小鼠繁育中心获取C57BL/6小鼠。
注意:实验开始时使用的是5至8月龄的雄性小鼠。每日跑步活动量在约9至10周龄时达到峰值并趋于平稳。26先前的研究表明,老年小鼠(22-24 个月)也能进行负重跑轮运动27. - 将小鼠单独饲养在带有金属网盖的标准啮齿类动物笼具中,并将笼具置于受控环境(20-24 °C 12小时光照:12小时黑暗循环
- 提供标准啮齿类动物饲料和水 随意摄取.
2. 跑轮装置
- 跑轮装置设置:
注意:所有跑轮实验方案的跑轮组装/设置方式相似,仅在添加1 g或2.5 g负载磁铁时有所不同。- 将一个1 g传感器磁铁粘贴在跑轮外侧中间周缘位置(图1)。
- 仅在跑轮适应期的第一周使用带有单个1 g传感器磁铁的跑轮。
- 负载跑轮训练(LWR;与PoWeR17中的负载方案相同):执行步骤2.1.4–2.1.6。
- LWR的第2周需要2 g负载(见表1)。
- 将两个1 g磁铁并排粘贴在跑轮外周缘上(图2A)。
注意:此处可使用胶带固定磁铁,直至胶水完全干燥;否则磁铁可能被传感器磁铁吸引而导致脱落。 - 在第3、4和6周通过在已有的任一磁铁上方叠加另一个1 g磁铁来增加负载。
注意:无需使用胶水,因为磁铁之间可牢固吸附。例如,在第6周达到6 g负载时,每个位置的磁铁将堆叠为三层(图2B)。 - 高负载跑轮训练(HLWR):执行步骤2.1.8–2.1.11。
注意:HLWR方案需要三组不同的跑轮。准备不同组的跑轮可使研究人员在跑轮彻底清洁和消毒后,将其重新用于其他小鼠(每组数量应由研究人员根据队列/组的大小确定)。 - 第一组跑轮(仅第2周需要)包含一个2.5 g磁铁;将一个2.5 g磁铁粘贴在跑轮外周缘上(参见步骤2.1.5下方的注释)(图3A)。
- 第二组跑轮(仅第3周需要)包含两个2.5 g磁铁;将两个2.5 g磁铁并排粘贴在跑轮外周缘上(参见步骤2.1.5下方的注释)(图3B)。
- 第三组跑轮(第4周及以后需要)包含三个2.5 g磁铁并排排列;将三个2.5 g磁铁并排粘贴在跑轮外周缘上(参见步骤2.1.5下方的注释)(图3C)。
- 在第6周和第8周,通过在已有的任一磁铁上方叠加另一个2.5 g磁铁来增加负载(图3D、E)。

图 1:基础跑轮,其外周中部粘附有一个1 g传感器磁铁。 请点击此处查看此图的放大版本。

图 2:带传感器磁铁和1 g加载磁铁的负重跑轮(LWR)。(A)2 g负载示例,将两个1 g磁铁并排粘贴在跑轮外缘;(B)6 g负载示例,将两个1 g磁铁并排粘贴在跑轮外缘,并额外施加4 g负载。请点击此处查看该图的放大版本。

图3:带传感器磁铁和2.5 g负载磁铁的高负荷跑轮(HLWR)。(A)2.5 g负载示例,一个2.5 g磁铁粘附在跑轮外缘;(B)5 g负载示例,两个2.5 g磁铁并排粘附在跑轮外缘;(C)7.5 g负载示例,三个2.5 g磁铁并排粘附在跑轮外缘;(D)10 g负载示例,三个2.5 g磁铁并排粘附在跑轮外缘,并额外施加2.5 g负载;(E)12.5 g负载示例,三个2.5 g磁铁并排粘附在跑轮外缘,并额外施加5 g负载。请点击此处查看此图的放大版本。
3. 笼具组装
- 使用配备数字码表的笼具组装跑轮,以监测运动时间(h)和行驶距离(km)。平均速度(km/h)通过算术方法计算得出。
- 在组装前,确保将新电池插入码表中。
- 在初次设置码表程序时设定轮子尺寸(参见制造商说明);通过测量跑轮外周长来计算每转距离(例如,本实验所用跑轮类型为 3,580 mm)。
- 将码表传感器放置在笼盖外侧的实心表面上,正对跑轮磁铁传感器所在位置。确保所有码表和传感器组件均置于笼外的实心屏障内,以防小鼠啃咬部件。
- 可使用空移液枪头盒的盖子,在其上切出一个小矩形开口用于安放磁性码表传感器,而盒子主体部分(移除枪头架网格后)用于固定码表和连接线(图 4A)。
- 在实心表面的两个角上钻孔,用于固定磁性码表传感器和跑轮支架,使其位于笼具外侧(图 4A)。
- 将跑轮底座倒置,穿过笼盖上的缝隙,并置于第 3.2 步所述的实心表面之上(图 4B)。
- 使用紧固件将跑轮底座和码表传感器牢固固定在笼具顶部(图 4C、D)。
- 确保传感器磁铁与码表传感器之间的间距不超过 1 cm,以保证能够准确记录跑轮转动(大多数标准码表传感器为双向感应,可在任一旋转方向上记录正向转动)。
- 从笼盖内侧将合适的跑轮(如上所述)安装到跑轮底座上,并将笼盖牢固地盖在笼具上(图 4E、F)。
- 当跑轮悬挂在笼盖下方时,应确保其底部距离笼底至少 2.5 cm。在笼内放置少量垫料,以确保跑轮能自由旋转,同时避免因垫料堆积而阻碍转动。
- 在实验过程中,应按照固定的时间间隔从码表中记录数据,以确保活动监测的准确性。
- 需认识到小鼠为夜行性动物,因此其大部分自然笼内活动(包括跑轮运动)主要发生在光照周期的黑暗时段。

图 4:跑轮笼具组件。(A)安装在实心表面/托盘上的自行车计数器和磁性传感器;(B)倒置的跑轮底座放置在实心表面/托盘和传感器之上(俯视图;注意传感器所在表面/托盘上的两个孔,用于通过硬件将底座固定在笼盖上);(C)已组装硬件的倒置跑轮底座(底视图);(D)已组装硬件的倒置跑轮底座(俯视图);(E)完整的笼具组件(俯视图);以及(F)完整的笼具组件(侧视图)。请点击此处查看此图的放大版本。
4. 运动训练负荷方案
- 将久坐(SED)小鼠单独饲养于笼中,笼内放置一个锁定的跑轮,持续9周,以防止小鼠进行任何跑动。
注意:表1提供了实验设计中所用低强度跑台(LWR,PoWeR)和高强度跑台(HLWR)方案的负荷时间表。 - 如有必要,可降低LWR和HLWR组的负荷,以确保小鼠在整个9周实验期间持续进行运动。
| 周 | ||||||||||
| 1 | 2 | 3 | 4 | 5 | 6 | 7 | 8 | 9 | ||
| LWR (n = 4) | 负荷 (g) | 0.0 | 2.0 | 3.0 | 4.0 | 5.0 | 5.0 | 6.0 | 6.0 | 6.0 |
| %BM | -- | 8% | 11% | 15% | 19% | 19% | 23% | 23% | 23% | |
| HLWR (n =7) | 负荷 (g) | 0.0 | 2.5 | 5.0 | 7.5 | 7.5 | 10.0 | 10.0 | 12.5 | 12.5 |
| %BM | -- | 10% | 19% | 28% | 28% | 38% | 38% | 48% | 48% | |
表1. 负重跑轮实验方案
5. 原位 肌肉功能检测、组织取材与组织分析
- 在为期9周的训练干预后,使用吸入式异氟烷(4%诱导,2%维持)对小鼠进行麻醉,并辅以氧气,确保在整个操作过程中对麻醉深度进行适当监测。
- 执行 原位 对腓肠肌、跖肌、比目鱼肌(GPS)复合体进行肌肉功能测试,以评估等长肌力28通过使用27 G电极针直接刺激坐骨神经,以1-300 Hz范围内11个递增频率建立力-频率曲线,其中强直收缩出现在约100-150 Hz29.
- 肌肉功能测试结束后立即处死小鼠 通过 颈椎脱位处死,并通过摘除心脏确认安乐死。仔细分离跖肌和比目鱼肌,记录湿组织质量。
- 用包埋介质(OCT)包裹每块肌肉样本,并将其固定在软木上。置于液氮冷却的异戊烷中冷冻,随后于 -80 °C 保存。80 °C 直到对肌肉组织切片进行进一步的免疫组织化学(IHC)分析为止10 µm 厚)
- 使用层粘连蛋白免疫荧光法分析肌纤维横截面积。利用自动图像定量平台测量肌纤维横截面积。30.
6. 统计学分析
- 所有数据均以均值 ± 标准差表示。
- 使用统计分析软件进行统计分析,显著性水平设定为 p ≤ 0.05。
- 采用重复测量双因素方差分析(two-way ANOVA)比较跑轮活动和训练量数据。
- 采用单因素方差分析(one-way ANOVA)比较体重、组织质量、横截面积(CSA)和肌肉功能。若发现显著的 F 值,则采用 Fisher LSD 事后检验分析组内差异。
- 计算效应量,并将其解释为:0.01、0.06 和 0.14 分别代表小、中和大的效应量。
访问受限。请登录或开始试用以查看此内容。
结果
本研究中,24只C57BL/6小鼠(实验开始时年龄为6.3 ± 0.7个月)被随机分配至三个处理组之一:久坐组(SED)、负载跑轮组(LWR;与Dungan等人17描述的PoWeR相同)或高负载跑轮组(HLWR),随后各自完成为期9周的实验方案。在适应周(第1周)后,各组在跑步距离或训练量方面均未出现组间或组别与时间的交互效应(图5)。
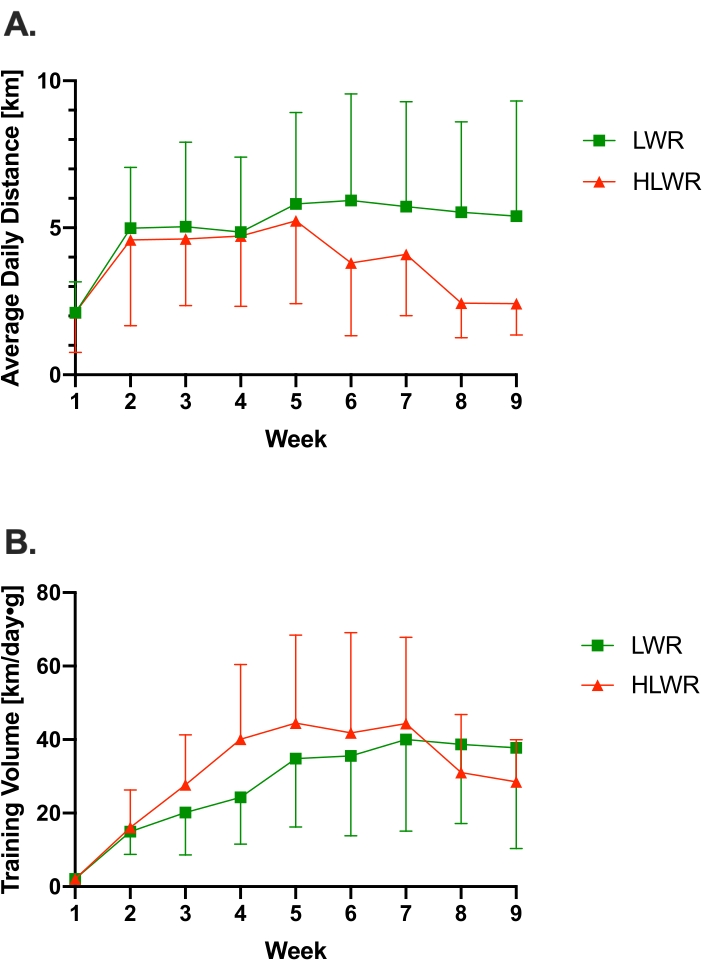
图 5:LWR(绿色实心方块)和 HLWR(红色实心三角形)组的跑...
访问受限。请登录或开始试用以查看此内容。
讨论
现有的啮齿类动物抗阻运动模型在骨骼肌研究中已被证明具有重要价值;然而,许多此类模型具有侵入性、非自主性,且/或耗时耗力。低强度跑轮(LWR)是一种优秀的模型,不仅能够诱导出与其他广泛认可的抗阻运动训练模型相似的肌肉适应性变化,还能为动物提供一种慢性、低应激的运动刺激,同时研究人员所需投入的时间和劳动较少。此外,由于LWR模型对研究人员的直接干预需求极小,因此可轻松地同时对整批小鼠进行短期或长期干预研究的运动训练。然而,施加中等跑轮负荷的方法往往存在不足:要么无法有效限制小鼠长距离奔跑(阻力过小),要么因负荷施加方式导致小鼠几乎完全停止跑动(阻力过大)。Dungan等人(2019)17开发的渐进式负重跑轮(PoWeR)LWR模型可产生显著的肌肉适应性变化,例如肌纤维肥大,但也促使肌肉向更具氧化代谢特性的表型转变。PoWeR作为真正意义上的"基于抗阻"模型的局限性在于,其诱发的是一种较高运动量(距离)和较低负荷(阻力)的刺激,更类似于同时包含抗阻和耐力刺激的混合训练模式。因此,研究人员开发了一种新型的高负荷跑轮运动(HLWR)小鼠模型,该模型在PoWeR模型基础上进行了改进,以...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
我们感谢阿巴拉契亚州立大学研究生学生会、学生研究办公室以及健康与运动科学系为本项目提供的资金支持。此外,我们还要感谢Monique Eckerd和Therin Williams-Frey对动物研究设施日常运营的监督与管理。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1 克圆盘钕磁铁 | Applied Magnets | ND018-6 | 用于所有传感器磁铁以及 1 克增量的轮子负载 |
| 2.5 克圆盘钕磁铁 | Applied Magnets | ND022 | 用于 2.5 克增量的轮子负载 |
| 8-32 x 1" 不锈钢螺丝 | Amazon | https://www.amazon.com/gp/product/B07939RS23/ref=ppx_yo_dt_b_search_asin_title?ie=UTF8&psc=1 | |
| 8-32 翼型螺母 | Amazon | https://www.amazon.com/gp/product/B07YYWW2SB/ref=ppx_yo_dt_b_search_asin_title?ie=UTF8&th=1 | |
| 10 µL 移液器吸头盒(空盒) | Thermo Scientific | 2140 | 我们使用了空的 ART 移液器吸头盒,但任何类似尺寸的盒子或托盘均可替代 |
| 强力液体胶水 | Loctite | ||
| 层粘连蛋白一抗 | Novus Biologicals | NB300-144AF647 | 与 AF647 偶联的一抗;按 1:200 比例溶于含 10% 正常山羊血清的 PBS 中 |
| 锂 3 V 电池 | n/a | CR2032 | |
| M10(3/16" x 1 1/4")不锈钢挡泥板垫圈 | Amazon | https://www.amazon.com/gp/product/B00OHUHEU8/ref=ppx_yo_dt_b_search_asin_title?ie=UTF8&th=1 | |
| MyoVision:自动化图像量化平台 | Wen 等(2017) | v1.0 | https://www.uky.edu/chs/center-for-muscle-biology/myovision |
| 聚碳酸酯啮齿动物笼具(430 mm 长 × 290 mm 宽 × 201 mm 高),配备窄幅不锈钢丝网盖 | Orchid Scientific | 聚碳酸酯大鼠笼 II 型 | https://orchidscientific.com/product/rat-cage/ - 1519974600758-c29bc1c5-6dfa |
| Sigma Sport 509 自行车码表 | Sigma Sport | 无需特定为此型号,但必须具备距离和时间监测功能 | |
| 静音旋转跑轮(迷你型,11.4 厘米) | Kaytee | SKU# 100079369 | https://www.kaytee.com/all-products/small-animal/silent-spinner-wheel |
参考文献
- Frontera, W. R., Ochala, J. Skeletal muscle: A brief review of structure and function. Calcified Tissue International. 96 (3), 183-195 (2015).
- Goldberg, A. L. Protein synthesis during work-induced growth of skeletal muscle. Journal of Cell Biology. 36 (3), 653-658 (1968).
- Baar, K., Esser, K. Phosphorylation of p70S6k correlates with increased skeletal muscle mass following resistance exercise. American Journal of Physiology-Cell Physiology. 276 (1), 120-127 (1999).
- Wong, T. S., Booth, F. W. Skeletal muscle enlargement with weight-lifting exercise by rats. Journal of Applied Physiology. 65 (2), 950-954 (1988).
- Hornberger Jr, T. A., Farrar, R. P. Physiological hypertrophy of the FHL muscle following 8 weeks of progressive resistance exercise in the rat. Canadian Journal of Applied Physiology. 29 (1), 16-31 (2004).
- Zhu, W. G., et al. Weight pulling: A novel mouse model of human progressive resistance exercise. Cells. 10 (9), 2459(2021).
- Tamaki, T., Uchiyama, S., Nakano, S. A weight-lifting exercise model for inducing hypertrophy in the hindlimb muscles of rats. Medicine and Science in Sports and Exercise. 24 (8), 881-886 (1992).
- De Bono, J. P., Adlam, D., Paterson, D. J., Channon, K. M. Novel quantitative phenotypes of exercise training in mouse models. American Journal of Physiology-Regulatory, Integrative and Comparative Physiology. 290 (4), 926-934 (2006).
- Goh, J., Ladiges, W. Voluntary wheel running in mice. Current Protocols in Mouse Biology. 5 (4), 283-290 (2015).
- Lightfoot, J. T., Turner, M. J., Daves, M., Vordermark, A., Kleeberger, S. R. Genetic influence on daily wheel running activity level. Physiological Genomics. 19 (3), 270-276 (2004).
- Allen, D. L., et al. Cardiac and skeletal muscle adaptations to voluntary wheel running in the mouse. Journal of Applied Physiology. 90 (5), 1900-1908 (2001).
- Ishihara, A., et al. Effects of running exercise with increasing loads on tibialis anterior muscle fibres in mice. Experimental Physiology. 87 (2), 113-116 (2002).
- Kurosaka, M., et al. Effects of voluntary wheel running on satellite cells in the rat plantaris muscle. Journal of Sports Science and Medicine. 8 (1), 51-57 (2009).
- Lambert, M. I., Noakes, T. D. Spontaneous running increases VO2max and running performance in rats. Journal of Applied Physiology. 68 (1), 400-403 (1990).
- Rodnick, K. J., Reaven, G. M., Haskell, W. L., Sims, C. R., Mondon, C. E. Variations in running activity and enzymatic adaptations in voluntary running rats. Journal of Applied Physiology. 66 (3), 1250-1257 (1989).
- Sexton, W. L. Vascular adaptations in rat hindlimb skeletal muscle after voluntary running-wheel exercise. Journal of Applied Physiology. 79 (1), 287-296 (1995).
- Dungan, C. M., et al. Elevated myonuclear density during skeletal muscle hypertrophy in response to training is reversed during detraining. American Journal of Physiology-Cell Physiology. 316 (5), 649-654 (2019).
- Ishihara, A., Roy, R. R., Ohira, Y., Ibata, Y., Edgerton, V. R. Hypertrophy of rat plantaris muscle fibers after voluntary running with increasing loads. Journal of Applied Physiology. 84 (6), 2183-2189 (1998).
- Konhilas, J. P., et al. Loaded wheel running and muscle adaptation in the mouse. American Journal of Physiology-Heart and Circulatory Physiology. 289 (1), 455-465 (2005).
- Legerlotz, K., Elliott, B., Guillemin, B., Smith, H. K. Voluntary resistance running wheel activity pattern and skeletal muscle growth in rats: Wheel running activity pattern and muscle growth. Experimental Physiology. 93 (6), 754-762 (2008).
- Mobley, C. B., et al. Progressive resistance-loaded voluntary wheel running increases hypertrophy and differentially affects muscle protein synthesis, ribosome biogenesis, and proteolytic markers in rat muscle. Journal of Animal Physiology and Animal Nutrition. 102 (1), 317-329 (2018).
- D'Hulst, G., Palmer, A. S., Masschelein, E., Bar-Nur, O., De Bock, K. Voluntary resistance running as a model to induce mTOR activation in mouse skeletal muscle. Frontiers in Physiology. 10, 1271(2019).
- Soffe, Z., Radley-Crabb, H. G., McMahon, C., Grounds, M. D., Shavlakadze, T. Effects of loaded voluntary wheel exercise on performance and muscle hypertrophy in young and old male C57Bl/6J mice: Exercise and muscle hypertrophy in old mice. Scandinavian Journal of Medicine and Science in Sports. 26 (2), 172-188 (2016).
- White, Z., et al. Voluntary resistance wheel exercise from mid-life prevents sarcopenia and increases markers of mitochondrial function and autophagy in muscles of old male and female C57BL/6J mice. Skeletal Muscle. 6 (1), 45(2016).
- Murach, K. A., McCarthy, J. J., Peterson, C. A., Dungan, C. M. Making mice mighty: Recent advances in translational models of load-induced muscle hypertrophy. Journal of Applied Physiology. 129 (3), 516-521 (2020).
- Swallow, J. G., Garland, T., Carter, P. A., Zhan, W. -Z., Sieck, G. C. Effects of voluntary activity and genetic selection on aerobic capacity in house mice (Mus domesticus). Journal of Applied Physiology. 84 (1), 69-76 (1998).
- Murach, K. A., et al. Late-life exercise mitigates skeletal muscle epigenetic aging. Aging Cell. 21 (1), 13527(2022).
- Mackay, A. D., Marchant, E. D., Louw, M., Thomson, D. M., Hancock, C. R. Exercise, but not metformin prevents loss of muscle function due to doxorubicin in mice using an in situ method. International Journal of Molecular Sciences. 22 (17), 9163(2021).
- Godwin, J. S., Hodgman, C. F., Needle, A. R., Zwetsloot, K. A., Andrew, R. Whole-body heat shock accelerates recovery from impact- induced skeletal muscle damage in mice. Conditioning Medicine. 2 (4), 184-191 (2020).
- Wen, Y., et al. MyoVision: Software for automated high-content analysis of skeletal muscle immunohistochemistry. Journal of Applied Physiology. 124 (1), 40-51 (2018).
- Manzanares, G., Brito-da-Silva, G., Gandra, P. G. Voluntary wheel running: Patterns and physiological effects in mice. Brazilian Journal of Medical and Biological Research. 52 (1), 7830(2019).
- Bartling, B., et al. Sex-related differences in the wheel-running activity of mice decline with increasing age. Experimental Gerontology. 87, 139-147 (2017).
- Zwetsloot, K. A., Westerkamp, L. M., Holmes, B. F., Gavin, T. P. AMPK regulates basal skeletal muscle capillarization and VEGF expression, but is not necessary for the angiogenic response to exercise: AMPK and the skeletal muscle angiogenic response to exercise. The Journal of Physiology. 586 (24), 6021-6035 (2008).
访问受限。请登录或开始试用以查看此内容。
重印与许可
