Hi-C 3.0 是一种改进的 Hi-C 实验方案,结合使用甲醛和二琥珀酰亚胺基戊二酸酯交联剂,并采用 DpnII 和 DdeI 限制性内切酶混合酶切,以提高染色质相互作用检测的信噪比和分辨率。
本文内容
摘要
摘要
染色体构象捕获技术(3C)用于检测三维染色质相互作用。通常使用甲醛(FA)进行化学交联以固定染色质相互作用,随后通过限制性内切酶消化染色质,并对片段末端进行重新连接,从而将三维(3D)空间上的邻近关系转化为独特的连接产物。最后,在逆转交联、去除蛋白质并分离DNA后,将DNA打断并制备用于高通量测序。在细胞群体中,基因组位点对之间的邻近连接频率反映了它们在三维空间中共定位的频率。
一个测序后的Hi-C文库可提供全基因组范围内所有位点对之间相互作用频率的信息。Hi-C的分辨率和精确度依赖于高效的交联,以维持染色质接触,以及对染色质进行频繁且均一的片段化。本文描述了一种改进的 原位 Hi-C 3.0 协议通过联合使用两种交联剂(甲醛 [FA] 和二琥珀酰基戊二酸酯 [DSG])提高交联效率,随后采用两种限制性内切酶(DpnII 和 DdeI)进行更精细的消化。Hi-C 3.0 是一种单一实验流程,可精确量化基因组在较小尺度上的折叠特征(如染色质环和拓扑关联结构域 [TADs]),以及在全细胞核较大尺度上的特征(如区室结构)。
引言
染色体构象捕获技术自2002年以来已被广泛应用1。从根本上讲,所有构象捕获变体均依赖于固定DNA-蛋白质和蛋白质-蛋白质相互作用,以维持染色质的三维结构。随后进行DNA片段化,通常通过限制性酶切实现,最后将空间上邻近的DNA末端重新连接,从而将空间上接近的基因座转化为唯一的共价DNA序列。最初的3C实验方案采用PCR来检测特定的“一对一”相互作用。后续发展的4C实验可检测“一对所有”相互作用2,而5C技术则可检测“多对多”相互作用3。在引入下一代高通量测序(NGS)技术后,染色体构象捕获技术得以全面成熟,使得利用全基因组Hi-C4以及类似的3C-seq5、TCC6和Micro-C7,8等方法实现“全对全”基因组相互作用的检测成为可能(另见Denker和De Laat的综述9)。
在Hi-C技术中,生物素标记的核苷酸用于在酶切后、连接前标记5′突出端(图1)。这使得可通过链霉亲和素包被的磁珠富集正确酶切并重新连接的片段,从而与GCC10方法相区别。Rao等人11对Hi-C实验流程进行了重要改进,即在完整细胞核内(即in situ)进行酶切和重新连接,以减少非特异性连接产物。此外,用MboI(或DpnII)替代HindIII进行酶切,可减小片段大小,提高Hi-C的分辨率。分辨率的提升使得能够检测到较小尺度的染色质结构,并更精确地定位基因组上的接触位点,例如由环挤压(loop extrusion)形成的CTCF结合位点之间的DNA环状结构11,12。然而,这种高分辨率也带来了一些代价。首先,分辨率提高两倍需要测序读长远超四倍(22)的增长13。其次,片段尺寸减小会增加将未酶切的相邻片段误判为已酶切并重新连接片段的可能性14。如前所述,在Hi-C中,已酶切并重新连接的片段与未酶切片段的区别在于连接位点处存在生物素标记。然而,必须有效去除未连接末端的生物素,以确保仅富集真正的连接位点14,15。
随着下一代测序(NGS)成本的降低,研究染色体折叠的细节变得更加可行。为了减小DNA片段的大小,从而提高分辨率,Hi-C方案可以改进为使用切割频率更高的限制性内切酶16,或使用多种限制性内切酶的组合17,18,19。或者,在Micro-C中使用MNase7,8,在DNase Hi-C中使用DNase20,可通过滴定酶量实现最佳消化效果。
最近一项关于3C方法基本原理的系统性评估表明,采用1%甲醛(FA)进行初次交联,随后用3 mM DSG进行二次交联,可显著提高在各个长度尺度上对染色体折叠特征的检测效果17。此外,使用HindIII酶切的Hi-C方法在检测大规模折叠特征(如区室结构)方面表现最佳,而Micro-C在检测小规模折叠特征(如DNA环)方面更具优势。这些结果促使发展出一种单一的高分辨率“Hi-C 3.0”策略,该策略结合使用FA和DSG交联剂,并随后采用DpnII和DdeI两种限制性内切酶进行双酶切21。Hi-C 3.0提供了一种适用于常规使用的有效策略,因其能够准确检测所有长度尺度上的染色体折叠特征17。本文详细描述了Hi-C 3.0实验操作部分,并展示了测序后可预期的典型结果。
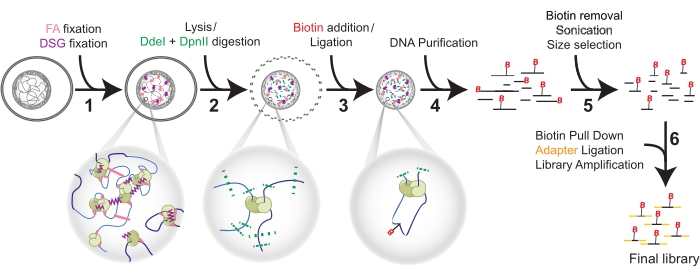
图 1:Hi-C 实验流程的六个步骤。 首先用 FA 固定细胞,然后使用 DSG(1);接着进行细胞裂解,并用 DdeI 和 DpnII 进行双重酶切(2);通过突出末端补平加入生物素,随后连接邻近的平末端(3),之后进行 DNA 纯化(4);在超声打断和片段大小筛选前,去除未连接末端的生物素(5);最后,通过生物素 pull-down 富集片段,进行接头连接并通过 PCR 扩增文库(6)。缩写:FA = 甲醛;DSG = 戊二酰亚胺基戊酸酯;B = 生物素。 请点击此处查看该图的高清版本。
方案
1. 交联固定
- 甲醛固定:从单层细胞开始
- 将细胞接种于适宜培养基中,每150 mm培养皿收获5 × 10⁶个细胞。
注意:用户可选择任何有利于哺乳动物细胞系最佳生长的容器。此外,细胞也可从组织中分离。 - 用连接真空泵的巴斯德移液管吸除150 mm培养皿中的培养基,用约10 mL HBSS洗涤2次。
- 交联前立即在50 mL离心管中配制1% FA交联液:将22.5 mL HBSS与625 µL 37% FA混合,终浓度为1%,轻轻摇动混匀。
注意:使用通风橱;甲醛有毒。 - 向每个15 cm培养皿中加入23.125 mL 1% FA溶液以进行细胞交联。
- 室温孵育10分钟,每2分钟手动轻轻摇动培养皿。
- 加入1.25 mL 2.5 M甘氨酸(终浓度128 mM),轻轻旋转培养皿以淬灭交联反应。
- 室温孵育5分钟,随后置于冰上继续孵育至少15分钟,以彻底终止交联。
- 用细胞刮刀或橡胶刮棒将细胞从培养皿上刮下。
- 用移液管将细胞悬液转移至50 mL锥形离心管中,室温下以1,000 ×g离心10分钟,吸除上清液。
- 用10 mL杜尔贝科磷酸盐缓冲液(DPBS)洗涤细胞沉淀一次,用移液管重悬细胞,然后室温下以1,000 ×g离心10分钟。立即进入DSG交联步骤。
注意:洗涤细胞沉淀时需小心,因细胞沉淀可能较松散,易造成细胞损失。
- 将细胞接种于适宜培养基中,每150 mm培养皿收获5 × 10⁶个细胞。
- 甲醛固定:从悬浮细胞开始
- 将细胞接种于适宜培养基中,每容器收获5 × 10⁶个细胞。
注意:用户可选择任何有利于哺乳动物细胞系最佳生长的容器。 - 收获前立即计数细胞,并将5 × 10⁶个细胞转移至50 mL锥形离心管中。
- 室温下以300 × g离心10分钟,轻柔地形成细胞沉淀。
- 在45 mL HBSS中加入1.25 mL 37% FA,配制1% FA交联液,通过反复倒置混匀。
注意:请一次性加入全部1.25 mL FA,不要分次加入。
注意:甲醛具有高毒性。 - 用移液管反复吹打,将细胞沉淀重悬于上一步配制的46.25 mL 1% FA交联液中。
- 室温下在旋转仪、摇床上孵育恰好10分钟,或每1-2分钟轻柔手动倒置离心管。
- 加入2.5 mL 2.5 M甘氨酸(终浓度128 mM)以淬灭交联反应,通过倒置充分混匀。
- 室温孵育5分钟,随后置于冰上至少15分钟,以完全终止交联。
- 室温下以1,000 × g离心10分钟,沉淀交联后的细胞,吸除上清液。
- 用10 mL DPBS洗涤细胞一次,然后室温下以1,000 × g离心10分钟。用移液管彻底吸除上清液,并立即进入DSG交联步骤。
注意:洗涤细胞沉淀时需小心,因细胞沉淀可能较松散,易造成细胞损失。
- 将细胞接种于适宜培养基中,每容器收获5 × 10⁶个细胞。
- 谷氨酸二琥珀酰亚胺酯(DSG)交联
- 在加入100 µL 300 mM DSG(终浓度3 mM)前,先将细胞沉淀重悬于9.9 mL DPBS中,通过倒置混匀。
注意:DSG对湿气敏感。必须在交联当天新鲜配制300 mM DSG的DMSO溶液。
注意:DSG的DMSO溶液具有高毒性。 - 室温下在旋转仪上交联40分钟。
- 加入1.925 mL 2.5 M甘氨酸(终浓度400 mM),倒置混匀,室温孵育5分钟。
- 室温下以2,000 ×g离心15分钟。
注意:去除松散细胞沉淀的上清液时需小心。 - 将沉淀重悬于1 mL 0.05%牛血清白蛋白(BSA)-DPBS中,并转移至1.7 mL离心管中。
注意:加入BSA有助于减少细胞聚集。 - 4 °C下以2,000 ×g离心15分钟,用移液管吸除上清液。
注意:为避免损失沉淀,应快速且彻底地去除上清液。 - 在液氮中速冻沉淀,储存于-80 °C或立即进入下一步操作。
- 在加入100 µL 300 mM DSG(终浓度3 mM)前,先将细胞沉淀重悬于9.9 mL DPBS中,通过倒置混匀。
2. 染色体构象捕获
- 细胞裂解与染色质消化
- 重悬(用移液器吹打)交联的细胞等分试样(约 5 × 10⁶ 细胞)加入1 mL预冷的裂解缓冲液中(配方见 补充表格 S1) 含有 10 µL 加入蛋白酶抑制剂混合物,在冰上孵育15分钟,然后转移至Dounce匀浆器。
注意:使用前立即向裂解缓冲液中加入蛋白酶抑制剂。 - 在冰上缓慢上下移动研杵A 30次以匀浆细胞,冰上孵育1分钟使细胞冷却,再进行30次研磨。
- 将裂解液转移至1.7 mL 微型离心管中.
注意:保持悬液流动,因为细胞有时会黏附在移液枪头中。 - 将裂解后的悬液在 2,500 × g 室温下孵育5分钟。
- 弃去上清液,轻轻弹击或涡旋振荡湿润的沉淀物以重新悬浮。尽可能彻底移除上清液,获得质地均匀、结块最少的类似酸奶状物质。
- 将沉淀重悬于 500 µL 冰浴预冷的1×限制性缓冲液(由10×母液配制;参见配方) 补充表 S1) 并在 2,500 × g重复此步骤进行第二次洗涤。
注意:1倍限制性缓冲液中的沉淀物比之前裂解缓冲液中的沉淀物更呈颗粒状。 - 将细胞重悬于终体积为 360 µL 加入约 1x 限制性缓冲液,用移液器移取后340 µL 与沉淀物的残留体积有关,该体积取决于细胞大小。
- 放置一旁 18 µL 每份裂解液用于染色质完整性(CI)检测。将CI样品置于 4 °C.
- 添加 38 µL 1% 十二烷基硫酸钠(SDS)加入每个 Hi-C 管中(总体积 380 µL)并用移液器小心混匀,避免产生气泡。
注意:SDS 有毒。 - 将样品在指定条件下孵育 65 °C 静置10分钟以充分打开染色质,期间不得振荡。
- 立即将试管置于冰上,并按照所述方法加入Triton X-100配制消化混合液,以淬灭SDS。 表1.
- 添加 107 µL 将消化混合物加入Hi-C管中(487 µL 总)以在 4 ℃ 下过夜(约 16 小时)消化染色质 37 °C 在热混仪中以间隔振荡方式孵育(例如,900 rpm,振荡30秒,暂停4分钟)。
注意:加入Triton至终浓度1%可终止SDS的作用。
- 重悬(用移液器吹打)交联的细胞等分试样(约 5 × 10⁶ 细胞)加入1 mL预冷的裂解缓冲液中(配方见 补充表格 S1) 含有 10 µL 加入蛋白酶抑制剂混合物,在冰上孵育15分钟,然后转移至Dounce匀浆器。
- DNA末端的生物素化
- 过夜消化后,将样品转移至 65 °C 孵育20分钟以灭活残留的核酸内切酶活性。
- 孵育期间,按如下所示配制填平反应主混合液 表2.
- 孵育后立即将样品置于冰上。
- 暂置一旁 10 µL 每个样本的消化对照(DC),并储存于 4 °C.
- 用移液器或离心方法去除盖子上的冷凝液。向每个样品中加入 58 µL 生物素补平混合液(总样本体积) 535 µL)并轻柔地用移液器吹打,避免产生气泡。
- 将样品在指定条件下孵育 23 °C 在恒温混匀仪中孵育4小时(例如,900 rpm,开启30秒,关闭4分钟)。
- 近端DNA片段的连接
- 按所示制备连接反应混合物 表3 在进行生物素填补反应孵育的同时。
- 添加 665 µL 将连接反应混合物加入每个样本中(总样本体积 1,200 µL)。轻轻吹打混匀。
- 将样品在指定条件下孵育 16 °C 在恒温混匀仪中孵育4小时,间隔振荡(例如,900 rpm,开启30秒,关闭4分钟)。将含有共价交联染色质的样品保存于 4 °C 几天。
- 交联逆转
- 将CI和DC样品的体积调至 50 µL 使用1× Tris低EDTA(TLE;参见文内配方) 补充表 S1).
- 添加 10 µL 加入10 mg/mL蛋白酶K至CI和DC样品中。
- 孵育于 65 °C 在DNA纯化Hi-C样本过程中,可选择对这些对照样本进行30分钟的交联逆转;或 alternatively 以间隔振荡方式过夜孵育(例如,900 rpm,开启30秒,关闭4分钟)。
- 向每个 Hi-C 样本中加入 50 µL 10 mg/mL 蛋白酶K,于 65 °C 至少 2 小时,间隔震荡(例如,900 rpm,开启 30 秒,关闭 4 分钟)。
- 添加另一个 50 µL 加入10 mg/mL蛋白酶K至每个Hi-C管中(总样本体积 1,300 µL)并继续在 65 °C 过夜。储存于 4 °C 直至DNA纯化。
注意:分次进行蛋白酶K孵育可确保蛋白质完全消化。
- DNA 纯化
- 让试管从高温中自然冷却 65 °C 降至室温。
- 将每个样品转移至15 mL离心管中,向每管加入2.6 mL(2倍体积)苯酚:氯仿:异戊醇。
警告:苯酚:氯仿:异戊醇具有强毒性,对皮肤有刺激性,且可能具有致癌性。 - 每管涡旋震荡1分钟,然后将内容物转移至15 mL相锁管中。
- 将样品以最大速度(1,500–3,500 × g)离心5分钟 g在台式离心机中离心。
- 小心地将水相倒入一支35 mL超速离心管中,并加入超纯水至终体积 1,250 µL.
注意:使用适合现有超速离心机的离心管,或将样品分装至多个微量离心管中。 - 加入 1/10th 体积(~125 µL加入3 M醋酸钠3体积,颠倒混匀。
- 向每个样品中加入2.5倍体积(约3.4 mL)的预冷100%乙醇,通过添加预冷100%乙醇平衡离心管,然后充分颠倒混匀。
- 将试管置于干冰中孵育约15分钟(避免凝固)。
- 将离心管在 18,000 × g 30 分钟 4 °C.
注意:对于角转子,请标记离心管中沉淀所在的位置。 - 使用移液器从非沉淀侧完全移除并弃去上清液。
注意:此时沉淀物应已可见,可在离心管上标记其位置,因为在下一步干燥后可能不再明显可见。 - 将样品风干约10分钟,或直至样品明显干燥。
- 将每个沉淀物溶解于 450 µL 用移液器吹打或轻轻摇晃使1×TLE充分混匀,转移至含有3 kDa分子量截留值的0.5 mL离心过滤单元(CFU)中。
- 将菌落形成单位(CFU)在最大速度下离心10分钟,弃去流穿液。用额外的缓冲液冲洗每个超速离心管 450 µL 1× TLE 中并转移至其 CFU 进行另一次洗涤。
注意:以该方式洗涤菌落形成单位(CFU)可在降低盐浓度的同时减少DNA损失。 - 以最大转速离心CFU 10分钟,弃去上清液。
- 添加 80 µL 向柱中加入1× TLE,将柱子转移至新的收集管中,然后以最大速度离心2分钟,以获得约~的最终体积100 µL.
- 添加 1 µL 加入 RnaseA(1 mg/mL;将 10 mg/mL 储液稀释 10 倍)至各样品中,并于 37 °C 在加热块、水浴或恒温混匀仪中孵育至少30分钟。
- RNase 处理后,从样品中移除 37 °C 并储存于 4 °C 直至质量控制步骤。
- 检测染色质质量、酶切消化及样品连接
- 在步骤2.4.5逆转交联后,将CI和DC样品冷却至室温,然后转移至预离心的2 mL相分离锁紧管中。
注意:务必将相位锁定液以最大速度离心2分钟,使内容物沉淀成团。 - 添加 200 µL 酚:氯仿:异戊醇,涡旋混匀1分钟。
- 以最大速度离心试管5分钟。
- 将每个样品的水相转移至新管(约50 µL) 转移至新的 1.7 mL 微离心管中。
- 添加 1 µL RNase A(来自1 mg/mL)并孵育于 37 °C 至少 30 分钟。
- 按照建议将样品加入0.8%琼脂糖凝胶中 表4.
注:质量控制预期结果如图所示 图2. - 通过凝胶电泳结合密度测定法,或使用 Qubit 或 Nanodrop 对 DNA 进行定量。
注意:准确的定量可确保后续实验步骤中加入正确的体积。使用多个已知浓度的标准品绘制标准曲线。
- 在步骤2.4.5逆转交联后,将CI和DC样品冷却至室温,然后转移至预离心的2 mL相分离锁紧管中。
表1:消化试剂。 请点击此处下载该表格。
表2:生物素补平试剂。 *请注意,更换酶可能需要不同的缓冲液和生物素标记的dNTP。 请点击此处下载该表格。
表3:连接反应体系试剂。 缩写:BSA = 牛血清白蛋白。请点击此处下载该表格。
表4:用于质量与大小选择评估的凝胶上样参数。 请点击此处下载该表格。
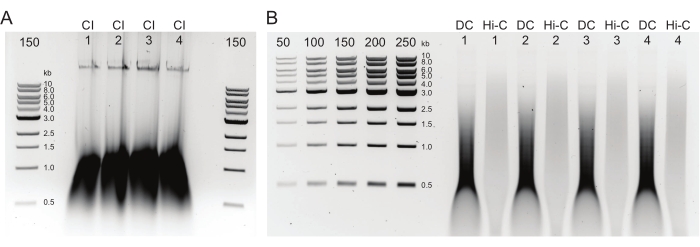
图2:琼脂糖凝胶显示典型的DNA纯化后质量控制结果。(A)CI对照应显示出一条高分子量DNA条带。(B)DC和Hi-C样品显示出不同大小的DNA片段范围。Hi-C样品由于已连接成较大的片段,其分子量应高于DC。标记物的浓度范围可用于生成标准曲线。注意,在本示例中CI样品加载在单独的凝胶上,但建议将所有样品和对照一起加载并电泳运行。缩写:CI = 染色质完整性;DC = 消化对照;Hi-C = 邻近连接。 请点击此处查看该图的放大版本。
3. Hi-C 测序文库的制备
- 去除未连接末端的生物素
- 按照所示方法准备生物素去除反应 表5.
注意:通常情况下, 10 µg 的DNA已足够,但最多可达 30 µg 可以使用。 - 分配 2 x 65 µL 每份样品的等分试样 130 µL 将反应分装至两个PCR管中。
- 转移至热循环仪或PCR仪中,按所述条件孵育 表5.
注意:样品可在此处保存 4 °C (数天至数周),-20 °C (长期保存),或立即进行超声处理。
- 按照所示方法准备生物素去除反应 表5.
- 超声处理
- 将生物素去除步骤的样本重复组合并130 µL 总样本体积)加入到一个 130 µL 用于超声处理的超声破碎管。
- 使用给定参数对样品进行超声处理 表6 以获得小于500 bp的紧密窄分布。
注意:可使用不同类型的超声破碎仪,但为了获得较窄的片段分布(100–500 bp),可能需要优化超声破碎仪的设置参数。
- 使用磁珠进行片段大小筛选
- 将超声处理后的 DNA 从超声仪管中移至 1.7 mL 低吸附管中。
- 将每个样品补至总体积 500 µL 用1×TLE。尽量使体积接近 500 µL因为样品与磁珠混合物的比例对片段大小选择至关重要。
- 添加 400 µL 向每管中加入磁珠混合物,使磁珠混合物体积与样品体积的比例达到0.8。
注意:在此条件下,磁珠可捕获DNA片段 >300 bp,此为上清部分。上清液将含有片段 <300 bp,即为下层片段。 - 将离心管涡旋混匀,并在旋转仪上室温孵育10分钟。对于本步骤及其他片段大小选择比例,需确保样品总体积充分混匀。建议使用某些旋转仪所具备的“不规则模式”,该模式适用于较小体积的样品混合。
- 在室温下于磁性颗粒分离器(MPS)上孵育5分钟。
- 孵育期间,加入 500 µL 磁珠混合物加入到新的 1.7 µL 每个样品使用低吸附离心管。
注意:这些试管将用于后续对较低组分进行大小选择,通过制备磁珠混合物与样本比例为1.1:1的体系。 - 将试管置于MPS上静置5 min。
- 去除珠子上的上清液,并用 150 µL 磁珠混合物的
注意:此步骤通过增加磁珠数量而不增加体积,避免磁珠对 DNA 的饱和。 - 将步骤 3.3.5 中的上清液转移至已标记的试管中,用于收集下层组分(步骤 3.3.8)。
注意: 150 µL 磁珠混合物 + 400 µL 0.8x 磁珠混合液(550 µL 总数)除以 500 µL 初始样品量 = 1.1 倍磁珠混合液与样品的体积比。 - 将下层组分管通过涡旋混合,并在室温下于旋转仪中孵育10分钟。
注意:磁珠将结合DNA片段 >100 bp,最终获得的磁珠结合片段大小为 100–300 bp。 - 将下层液体管置于MPS上静置5分钟(室温)。
- 弃去上清液,短暂离心以尽可能彻底地去除残留上清。
- 用洗涤液洗涤两个组分中的珠子各两次 200 µL 每次加入70%乙醇并置于磁力架上回收磁珠5分钟。
- 离心管在离心机中快速离心后,彻底去除乙醇,并将磁珠在磁力架上进一步干燥。
注意:干燥至酒精完全挥发。沉淀物应呈深巧克力色且无裂纹(约需 10 min)。 - 将两种组分均重悬于 50 µL 加入1× TLE缓冲液,室温孵育10分钟,每隔2分钟轻弹或轻敲离心管以促进混合与洗脱。
- 在 MPS 上将两相的珠子与上清液分离,持续 5 分钟。
- 保留每个样品的上清液。用移液器将上清液转移至1.7 mL低吸附离心管中。
注意:样品可在 4 °C 几天或在 -20 °C 长期地。 - 运行2%琼脂糖凝胶,步骤同 表4 以确定样品的质量和数量。参见 图3 以该凝胶为例。
注意:如果根据经验,超声处理具有高度可重复性,则可跳过此凝胶步骤,直接进行末端修复。建议用户在滴定 PCR 完成前保留上层组分。对于需要大量 PCR 扩增的次优 DNA 量,可从上层组分的材料中进行补救。 - 根据已知 DNA Marker 输入量绘制标准曲线后,直接从凝胶中定量 DNA 含量,或使用 Qubit 或 Nanodrop 进行定量。
- 末端修复
- 按照以下步骤配制末端修复混合液 表7 (每反应量已给出)
- 转移剩余的 46 µL 将下层组分中洗脱的DNA加入PCR管中,并添加 24 µL 所制备的末端修复混合物。按照建议在PCR仪中孵育, 表7.
- 程序完成后,将样品保存于 4 °C 直至下拉。
- 链霉亲和素包被磁珠富集生物素化连接产物
- 根据定量的大小筛选结果(步骤 3.3.19)确定每个文库所需的链霉亲和素包被磁珠量。
注意:这些链霉亲和素包被的磁珠(10 mg/mL 溶液)可结合 20 µg 每毫克磁珠的双链DNA量(= 20 µg / 100 µL 珠粒)。使用 2 µL 每个 1 µg 的Hi-C DNA,但不少于 10 µL. - 将链霉亲和素包被的磁珠混匀,并用移液器将每个文库所需的磁珠体积(根据上一步计算)加入各自的1.7 mL低吸附离心管中。
- 重悬珠子于 400 µL Tween 洗涤缓冲液(TWB;参见配方在 补充表 S1)并在旋转仪上于室温孵育约3分钟(参见步骤3.3.4中的说明).
- 在 MPS 上将磁珠与上清液分离 1 分钟,然后移除上清液。
- 用移液管加入另一份缓冲液洗涤磁珠 400 µL 的TWB。
- 在 MPS 上将珠子与上清液分离 1 分钟,然后移除上清液。
- 添加 400 µL 2× 结合缓冲液(BB)(配方见 补充表 S1)加入珠子中并重悬。此外,添加 330 µL 1× TLE 缓冲液及末端修复反应液(来自步骤 3.4.3)
- 将样品在室温下孵育 15 分钟,同时在旋转仪上混匀。
- 在 MPS 上将珠子与上清液分离 1 分钟,然后移除上清液。
- 添加 400 µL 向珠子中加入1x BB并重悬。
- 在 MPS 上将磁珠与上清液分离 1 分钟,然后移除上清液。
- 添加 100 µL 用1× TLE洗涤珠子。
- 将磁珠与上清液在MPS上分离1分钟,移除上清液。
- 最后,加入 41 µL 用1x TLE重悬珠子。
- 根据定量的大小筛选结果(步骤 3.3.19)确定每个文库所需的链霉亲和素包被磁珠量。
- 加A尾
- 按照以下方法配制A尾添加反应混合液: 表8.
- 将反应液移入PCR管中,按如下条件孵育 表8.
- 从PCR仪中取出PCR管后立即置于冰上,并将其中内容物转移至1.7 mL低吸附离心管中。
- 在 MPS 上将磁珠与上清液分离 1 分钟,弃去上清液。
- 添加 400 µL 1×连接缓冲液,由5× T4 DNA连接酶缓冲液用超纯水稀释而成。
- 在 MPS 上将珠子与上清液分离 1 分钟,然后弃去上清液。
- 加入1×连接缓冲液至终体积 40 µL.
- 退火接头寡核苷酸
- 制备接头寡核苷酸储备液 100 µM (表9).
注意:订购250 nmol经HPLC纯化的寡核苷酸。 - 按照所述在 PCR 管中退火接头 表9.
- 使用PCR仪逐步升高温度 0.5 °C/秒 97.5 °C. 保持在 97.5 °C 2.5 分钟
- 使用PCR扩增仪逐步升高温度 0.1 °C/秒,持续775个循环(达到 20 °C)。将温度保持在 4 °C 直至进一步使用。
- 添加 83 µL 1×退火缓冲液(配方见 补充表 S1) 以稀释接头至 15 µM. 将接头存放在 -20 °C.
- 制备接头寡核苷酸储备液 100 µM (表9).
- 测序接头连接
- 在1.7 mL低吸附离心管中配制接头连接反应体系(表10).
- 室温下连接2小时。
- 在MPS上将磁珠与上清液分离1分钟,弃去上清液。
- 添加 400 µL 将TWB加入珠子中,轻轻上下吹打混匀,然后在室温下于旋转仪上孵育5分钟。在MPS上分离珠子与上清液,并重复此步骤一次。
- 在MPS上将珠子与上清液分离(约1分钟),弃去上清液,然后加入 200 µL 1x BB 的
- 将磁珠与上清液在MPS上分离(约1 min),弃去上清液。
- 添加 200 µL 1× 预扩增缓冲液(由10×储备液配制;配方见 补充表 S1)并转移至新的1.7 mL低吸附离心管中。
- 在MPS上分离磁珠与上清液(约1分钟),弃去上清液。
- 添加 20 µL 加入1×预扩增缓冲液,用移液器吹打混匀。
- 使用时将试管置于冰上,或储存于 4 °C.
- 通过滴定优化PCR循环数
- 设置 30 µL 每个样本的主混合反应次数 表11 (每反应用量如上所示)
- 运行最少的循环次数并取样 5 µL 分装。在进行下一次取样前,对剩余反应液额外运行2-3个循环。 5 µL 分装。重复操作,共收集四份等量样品。
- 使用来自的 PCR 参数 表11 每份等分试样。
- 添加 5 µL 水和 2 µL 每份加入6倍体积的染料 5 µL 样品。在2%的TBE琼脂糖凝胶(配方见 补充表 S1) 加入 25–150 ng 低分子量标准参照物。参见 图4 预期结果。
注意:最终文库PCR扩增[步骤3.10]的最佳循环数为在凝胶上能够观察到可见产物的最低循环数减去一个循环。
- 最终文库PCR扩增
- 设置 12 x 30 µL 扩增每个最终文库以进行测序的反应步骤同上 表11.
- 按照以下程序循环PCR反应: 表11 在确定 PCR 滴定后的循环数(步骤 3.9.3)后。
- PCR 完成后,将重复样本汇集至一个 1.7 mL 低吸附微量离心管中。
- 将离心管置于MPS上,转移上清液至新的1.7 mL低吸附微量离心管中。
- 重悬残留的链霉亲和素包被的微珠于 20 µL 1× 预扩增缓冲液
注意:当此模板被存储时可重复使用 4 °C 数天至数周或长期在 -20 °C.
- 使用磁珠混合物去除引物
- 使用1× TLE缓冲液(配方见 补充表 S1) 调整第 3.10.4 步的体积至恰好 360 µL.
- 向每个样品中加入 360 µL 磁珠混合物,并用移液器上下吹打混匀。
- 在旋转仪上,室温下混匀样品10分钟。
- 在室温下将磁珠与上清液在 MPS 上分离(3–5 分钟)。
- 用洗涤液洗涤磁珠两次 200 µL 每次加入70%乙醇并置于磁力架上回收磁珠5分钟。
- 在离心机中快速离心,彻底吸除乙醇。将磁珠置于MPS上空气中干燥,以进一步蒸发残留乙醇。
注意:沉淀物应呈深巧克力色,且无裂纹(可能需要约10分钟)。 - 添加 30 µL 加入超纯水,重悬以洗脱DNA,在室温下孵育10分钟。每2分钟轻弹管壁以促进混匀。
- 在 MPS 上将珠子与上清液分离 5 分钟。
- 将各样本的上清液收集至新的 1.7 mL 离心管中。
- 运行 1 µL 2% 琼脂糖 TBE(配方见 补充表 S1) 凝胶以获得片段大小分布,并对最终文库进行定量图5).
注意:ClaI 消化仅可作用于 DpnII-DpnII 连接处,作为连接反应的阳性对照,应导致最终文库的片段大小分布更小。最终文库可在 4 °C,长期保存于 -20 °C或立即稀释后送交测序。
表5:去除生物素的试剂及温度 请点击此处下载该表格。
表6:超声处理参数。 请点击此处下载该表格。
表7:末端修复试剂及反应温度。 请点击此处下载该表格。
表8:A尾添加试剂及反应温度。 请点击此处下载该表格。
表9:用于退火的PCR引物及配对末端接头寡核苷酸及其试剂。 缩写:5PHOS = 5' 磷酸。星号表示硫代磷酸化DNA碱基。#将一个带索引的寡核苷酸与通用寡核苷酸组合,退火形成带索引的接头。请点击此处下载该表格。
表10:接头连接试剂。 请点击此处下载该表格。
表11:PCR试剂与循环参数。 请点击此处下载该表格。

图3:琼脂糖凝胶显示典型的片段大小筛选后结果。 展示了四个DpnII-DdeI Hi-C样本(编号1-4)的上清组分和沉淀组分。每个样本的第一泳道为上清组分,来源于0.8x磁珠混合液;第二和第三泳道为来源于1.1x磁珠混合液的沉淀组分的稀释液。请点击此处查看该图的放大版本。
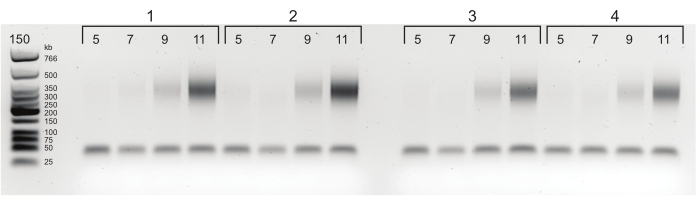
图4:PCR扩增循环数滴定结果的琼脂糖凝胶图。 从PCR扩增5个循环开始,对四个文库的每一个,每隔2个循环(5、7、9和11个循环)取样一次。根据此图,选择6个循环作为每个样本的最佳扩增循环数。 请点击此处查看该图的放大版本。
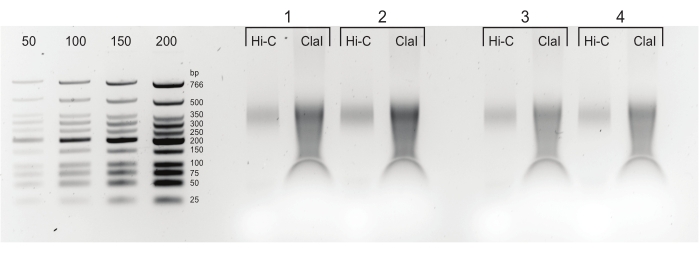
图5:最终PCR产物。 经纯化和片段大小筛选后,将PCR产物(Hi-C)与同一文库经ClaI酶切后的片段(ClaI)并列上样。ClaI酶切片段表明存在目标DpnII-DpnII连接产物。需要注意的是,ClaI不能切割DpnII-DdeI连接位点,因此并非所有连接产物都会因该限制性酶切而出现片段尺寸减小。请点击此处查看该图的放大版本。
结果
本文中的图示数据来自Lafontaine等人先前发表研究的独立重复实验21。在获得高通量测序数据后,使用开放染色质集体(Open2C:https://github.com/open2c)对Hi-C数据进行处理。类似的分析流程可在4D核组项目的数据门户中找到(https://data.4dnucleome.org/resources/data-analysis/hi_c-processing-pipeline)。简而言之,采用Nextflow流程distiller(https://github.com/open2c/distiller-nf)执行以下步骤:(1)将Hi-C分子的序列比对至参考基因组;(2)解析.sam比对文件并生成包含Hi-C配对信息的文件;(3)过滤PCR重复序列;(4)将配对信息聚合成分箱的Hi-C相互作用矩阵。这些以HDF5格式存储的矩阵(称为coolers)可进一步用于:(1)在HiGlass服务器(https://higlass.io/)上可视化;(2)利用“cooltools”工具集中的大量开源计算工具进行分析,该工具集由开放染色质集体维护(https://github.com/open2c/cooltools),用于提取和量化染色质折叠特征,如区室(compartments)、拓扑关联结构域(TADs)和染色质环(loops)。
在将测序读段对(read pairs)比对到参考基因组后,即可通过几个简单的指标立即评估Hi-C3.0文库的质量。首先,对于人类细胞,通常约有50%的测序读段对能够被唯一比对。由于染色体具有高分子聚合物的特性,大多数比对上的读段(约60%–90%)代表染色体内部的相互作用(顺式相互作用,cis),且相互作用频率随基因组距离的增加而迅速衰减(距离依赖性衰减)。距离依赖性衰减在“尺度图”(scaling plot)中可得到最佳可视化呈现,该图展示了接触概率(每条染色体臂)随基因组距离变化的函数关系。我们发现,使用不同的交联剂和酶可改变长距离和短距离范围内的距离依赖性衰减17。当DSG交联与Mnase酶或可产生较小片段的DpnII-DdeI组合联用时,可增强短距离相互作用的检测能力(图6A)。
距离依赖性衰减也可直接从二维相互作用矩阵中观察到:当远离中心对角线时,相互作用的发生频率逐渐降低图6B)。此外,可通过 Hi-C 矩阵和尺度图中偏离全基因组平均距离依赖性衰减的特征,识别出基因组折叠特征,如区室、拓扑关联结构域(TADs)和染色质环。重要的是,除甲醛(FA)外,使用 DSG 进行交联可减少随机连接事件,这类连接由于染色体的聚合物特性而无限制,因而更易发生在染色体之间(in trans)(图6C)。减少随机连接可提高信噪比,尤其对于染色体间相互作用和超长距离的相互作用(>10-50 Mb 的染色体内相互作用。

图6代表性 Hi-C 文库的比对与过滤结果。 (A) 使用不同酶进行消化,按片段长度(上图)和交联剂(FA 或 FA + DSG)类型(下图)排序的接触概率及其导数的缩放图。MNAse(microC)或 DpnII-DdeI(Hi-C 3.0)消化显著增加短程接触(上图),在 FA 基础上添加 DSG 也有类似效果(下图)。B) 图中各列显示了仅使用FA交联后DpnII消化,以及FA+DSG交联后DpnII或DdeI消化的Hi-C热图。白色箭头指示在DSG交联和DdeI消化后“点”信号强度增强,表明DNA环结构的检测效果更佳。各行显示染色体3在不断提高分辨率下的不同区域,与图C对齐:上行:整条染色体3(0–198,295,559 Mb);中行:186–196 Mb;下行:191.0–191.5 Mb。 (C) 所示区域的覆盖度图 A黑色箭头表示仅使用甲醛(FA)交联时的较低覆盖度(%cis reads)。缩写:FA = formaldehyde;DSG = disuccinimidyl glutarate;chr = chromosome。 请点击此处以查看此图的放大版本。
并非所有比对上的读段都有用。第二个质量指标是PCR重复序列的数量。在连接和超声打断后,完全相同的重复读段几乎不可能随机产生。因此,这类读段很可能来源于PCR扩增,需要被过滤掉。当需要过多的PCR循环次数来扩增低复杂度文库时,通常会出现重复序列。一般而言,对于Hi-C文库,最终PCR扩增通常只需要5-8个循环,具体循环数通过滴定PCR确定(见步骤3.9;图4)。然而,即使经过14轮PCR扩增,仍可能获得足够复杂度的文库。
另一类重复序列读段被称为光学重复(optical duplicates),可能出现在使用规则化芯片(如HiSeq4000)的Illumina测序平台上。光学重复的产生原因包括:芯片过度加载,导致较大的簇被误识别为两个独立的簇;或在第一轮PCR扩增后,原始的成对末端分子发生局部重新簇集。由于这两类光学重复均具有局部性特征,因此可通过其在芯片上的位置与PCR重复进行区分。对于文库中具有 >15%的PCR重复序列需要重新制备,含有光学重复序列的文库可在优化上样流程后重新上样。
补充表 S1:缓冲液与溶液。 请点击此处下载该表格。
讨论
细胞操作的关键步骤
尽管可以使用较少的起始细胞数量,但本实验方案已针对每个测序通道(约 4 亿条 reads)使用约 5 × 10⁶ 个细胞进行优化,以确保深度测序后获得足够的文库复杂度。建议在固定前对细胞进行计数。为构建超深度测序文库,我们通常按所需测序深度相应增加测序通道数(及细胞数量)。为实现最佳固定效果,在甲醛(FA)固定前应将含血清的培养基替换为 PBS,并立即加入固定液,避免产生浓度梯度15,22。在收集细胞时,建议优先采用刮取法而非胰酶消化法,因为胰酶处理后细胞由扁平形态转变为球形,可能影响细胞核构象。加入 DSG 后,松散或易聚集的细胞沉淀容易丢失。在此阶段操作细胞时需格外小心,可加入最高至 0.05% 的 BSA 以减少细胞聚团。
对方法的修改
本方案最初使用人源细胞开发17。然而,基于染色体构象捕获技术的经验,该方案应适用于大多数真核细胞。当起始样本量显著较低(约 1 × 10⁶ 个细胞)时,我们建议在裂解和构象捕获步骤 [2.1–2.4] 中使用一半的试剂体积。这样还可使DNA提取步骤 [2.5] 能在台式离心机中使用1.7 mL离心管完成,有助于在低浓度DNA条件下提高沉淀效果。DNA定量结果(步骤 2.6.6)将指导后续操作。若提取的DNA量较少(1–5 µg),建议跳过片段大小选择步骤(步骤 3.3),并通过离心浓缩超滤管(CFU)将体积从130 µL浓缩至约45 µL后,直接进行生物素去除。
本方案专门设计用于在使用甲醛(FA)和二琥珀酰亚胺基戊二酸酯(DSG)交联,并用DpnII和DdeI进行消化后,确保获得高质量的数据。然而,其他交联策略也可能同样有效,例如先使用甲醛(FA)再使用EGS(乙二醇双(琥珀酰亚胺基琥珀酸酯)),该策略也用于ChIP-seq23和ChIA-PET2417。类似地,也可采用不同的酶组合进行消化,例如DpnII与HinfI18,或MboI、MseI与NlaIII19。在调整酶组合时,务必使用能够填补特定5'突出末端的生物素化核苷酸,并为每种酶混合物选择最优化的缓冲液。DpnII附带其专用缓冲液,且酶生产商为DdeI消化推荐了特定缓冲液。但在本方案中,对DpnII与DdeI的双酶消化推荐使用限制性酶切缓冲液(Restriction Buffer),因为该缓冲液可使两种酶的活性均达到100%。
染色体构象捕获技术的故障排除
在染色体构象捕获实验中,交联、消化和重新连接这三个关键步骤均需在凝胶上观察结果之前完成。为了评估这三个步骤的质量并确定问题可能出在哪个环节,需在消化前(CI)和消化后(DC)分别取样,并与连接完成的Hi-C样品一同上样至凝胶(图2)。该凝胶用于评估Hi-C样品的质量,判断是否值得继续后续实验流程。若缺少CI和DC样品,则难以准确定位导致结果不佳的具体步骤。值得注意的是,连接效果不佳可能源于连接反应本身、末端补平步骤的问题,或交联步骤存在问题。为排查交联问题,应确保每个文库使用的细胞数不超过1 × 10⁷个,并使用新鲜的交联试剂以及洁净的细胞(即用PBS洗涤过的细胞)。对于连接步骤,务必保持细胞和连接混合物处于冰上;在16 °C孵育4小时之前立即加入T4 DNA连接酶,并充分混匀。
文库制备问题排查
如果在 PCR 滴定后需要超过 10 个 PCR 循环,或在凝胶上无法观察到 PCR 产物(图 4),有几种方法可以挽救 Hi-C 样本。从 PCR 滴定步骤往回排查,第一个选择是重新尝试 PCR。如果产物仍然不足,可在用 1× TLE 缓冲液洗涤磁珠两次后,再次进行末端 A 加尾和接头连接(步骤 3.6)。完成额外的 A 加尾和接头连接后,可按之前方法继续进行 PCR 滴定。如果仍然没有产物,最后的选择是从步骤 3.3 中重新回收 0.8× 的组分,并从此处继续后续操作。
Hi-C3.0 的局限性与优势
需要认识到,Hi-C 是一种基于细胞群体的方法,用于捕获细胞群体中基因组位点对之间相互作用频率的平均值。虽然某些计算分析方法旨在从群体中解析出多种构象组合25,但原则上,Hi-C 无法识别细胞间的差异。尽管可以进行单细胞 Hi-C26,27,并可通过计算手段进行推断28,但单细胞 Hi-C 并不适合获取超高清分辨率的 3C 信息。Hi-C 的另一个局限性在于其仅能检测成对相互作用。为了检测多点接触相互作用,可采用高频切割酶结合短读长测序(Illumina)16,或利用 PacBio 或 Oxford Nanopore 平台进行长读长测序,开展多点接触 3C29 或 4C30。此外,已有针对姐妹染色单体之间及沿其长度方向接触检测而开发的 Hi-C 衍生技术31,32。
尽管Hi-C19和Micro-C33可用于生成亚千碱基分辨率的互作图谱,但二者均需要大量的测序读长,可能导致成本显著增加。为了在不增加成本的情况下达到相似甚至更高的分辨率,可采用针对特定基因组区域的富集方法(如capture-C34),或针对特定蛋白质相互作用的富集方法(如ChiA-PET35、PLAC-seq36、Hi-ChIP37)。这些富集技术的优点和缺点在于仅对有限数量的相互作用进行采样。通过此类富集手段,Hi-C的全局特性(以及全局标准化的可能性)将丧失。
Hi-C3.0 的重要性与潜在应用
本实验方案旨在实现高分辨率、超深度的染色体构象捕获(3C),同时检测拓扑关联结构域(TADs)和区室等大尺度染色质折叠特征17(图6)。每个 Hi-C 文库起始样本量为每管 5 × 10⁶ 个细胞,此材料通常足以在流动池上对一至两个通道进行测序,获得多达 10 亿条成对末端读长。对于超深度测序,应根据比对上的读段数量和 PCR 重复率准备多管 5 × 10⁶ 个细胞。在最高分辨率(<1 kb)下,染色质成环相互作用主要出现在 CTCF 结合位点之间,但也可检测到启动子-增强子之间的相互作用。有关数据分析的详细说明,请参见 Akgol Oksuz 等人17 的研究。
披露
作者声明无利益冲突。
致谢
我们感谢 Denis Lafontaine 在实验方案开发方面的帮助,以及 Sergey Venev 在生物信息学方面的协助。本工作由美国国立卫生研究院共同基金4D基因组计划向 J.D. 提供的资助支持(U54-DK107980,UM1-HG011536)。J.D. 是霍华德·休斯医学研究所的研究员。
本文遵循霍华德·休斯医学研究所(HHMI)的出版物开放获取政策。HHMI实验室负责人此前已在他们的研究论文中向公众授予了非独占性的CC BY 4.0许可,并向HHMI授予了可再许可的许可。根据这些许可,本文的作者接受稿可在发表后立即以CC BY 4.0许可协议自由获取。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1 kb DNA标准分子量标记 | New England Biolabs | N3232L | |
| 琼脂糖 | Invitrogen | 16500100 | |
| Agencourt AMPure XP 磁珠,60 mL | Beckman Coulter | A63881 | |
| Amicon Ultra-0.5 离心过滤单元(CFU) | EMD Millipore | UFC500396 | |
| 退火缓冲液(5×) | 参见补充材料中的配方 | ||
| ATP 10 mM | ThermoFisher | R0441 | |
| Avanti J-25i 高速制冷超速离心机 | Beckman Coulter | ||
| Beckman 超速离心管 35 mL | Beckman Coulter | 357002 | |
| 结合缓冲液(2×) | 参见补充材料中的配方 | ||
| 生物素-14-dATP 0.4 mM | Invitrogen | 19524-016 | |
| BSA 10 mg/mL | New England Biolabs | B9000S | 由20 mg/mL稀释而来 |
| 细胞刮刀 | Falcon | 353089 | |
| 细胞刮刀 | Corning | 3008 | |
| 50 mL 圆锥形聚丙烯管 | Denville | C1062-P | |
| 15 mL 圆锥形管 | Denville | C1017-P | |
| Covaris 微量管 AFA 纤维带 snap-cap 130 µL | Covaris | 520045/520077 | |
| Covaris 超声破碎仪 | Covaris | E220/E220evolution/M220 | |
| 培养瓶 175 cm2 | Falcon | 353112 | |
| 培养皿 150 mm × 25 mm | Corning | 430599 | |
| dATP 1 mM | Invitrogen | 56172 | |
| dATP 10 mM | Invitrogen | 56172 | |
| dCTP 10 mM | Invitrogen | 56173 | |
| DdeI | New England Biolabs | R0175L | |
| dGTP 10 mM | Invitrogen | 56174 | |
| DMSO | Sigma | D2650-5x10ML | |
| dNTP 混合液 25 mM | Invitrogen | 10297117 | |
| Dounce 匀浆器 | DWK Life Sciences | 8853010002/8853030002 | |
| DPBS | Gibco | 14190-144 | |
| DpnII | New England Biolabs | R0543M | |
| DSG | ThermoScientific | 20593 | |
| dTTP 10 mM | Invitrogen | 56175 | |
| 70% 乙醇 | Fisher | A409-4 | 由100%稀释而来 |
| 溴化乙锭 | Fisher | BP1302-10 | |
| 甲醛(37%) | Fisher | BP531-500 | |
| 上样缓冲液(6×) | New England Biolabs | B7024S | |
| 甘氨酸溶于超纯水 2.5 M | Sigma | G8898-1KG | |
| HBSS | Gibco | 14025-092 | |
| Igepal CA-630 去垢剂 | MP Biomedicals | 198596 | |
| Klenow DNA 聚合酶 5 U/µL | New England Biolabs | M0210L | |
| Klenow 片段 3-->5’ 外切酶缺陷型,5 U/µL | New England Biolabs | M0212L | |
| 连接缓冲液(10×) | New England Biolabs | B7203S | |
| 液氮 | |||
| LoBind 微量离心管 1.7 mL | Eppendorf | 22431021 | |
| 低分子量 DNA 标准分子量标记 | New England Biolabs | N3233L | |
| 裂解缓冲液 | 参见补充材料中的配方 | ||
| 磁性颗粒分离器 | ThermoFisher | 12321D | |
| 微量离心管 1.7 mL | Axygen | MCT-175-C | |
| MyOne 链霉亲和素 C1 磁珠 | Invitrogen | 65001 | |
| NEBuffer 2.1(10×) | New England Biolabs | B7002S | |
| NEBuffer 3.1(10×) | New England Biolabs | B7203S | |
| PBS | Gibco | 70013-032 | |
| PCR(条状)管 | Biorad | TBS0201/ TCS0803 | |
| PCR 扩增仪 | Biorad | T100 | |
| Pfu Ultra II 缓冲液(10×) | Agilent | 随 Pfu Ultra 提供 | |
| PfuUltra II Fusion HS DNA 聚合酶 | Agilent | 600674 | |
| 15 mL 相锁管 | Qiagen | 129065 | |
| 2 mL 相锁管 | Qiagen | 129056 | |
| 苯酚:氯仿:异戊醇 | Invitrogen | 15593-049 | |
| 蛋白酶抑制剂混合液 | ThermoFisher | 78440 | |
| 蛋白酶K溶于超纯水 10 mg/mL | Invitrogen | 25530-031 | |
| 制冷离心机 | Eppendorf | 5810R | |
| 无RNase A、DNase和蛋白酶的RNase A 10 mg/mL | Thermo Scientific | EN0531 | |
| 旋转混合仪 | Argos technologies | EW-04397-40 或摇床平台 | |
| SDS 1% | Fisher | BP13111 | |
| 乙酸钠 pH = 5.2,3 M | Sigma | ||
| Sub-Cell GT 水平电泳系统 | Biorad | 1704401 | |
| T4 DNA 连接酶 1 U/µL | Invitrogen | 100004817 | |
| T4 DNA 聚合酶 | New England Biolabs | M0203L | |
| T4 DNA 聚合酶 | New England Biolabs | M0203L | |
| T4 DNA 聚合酶 3 U/µL | New England Biolabs | M0203L | |
| T4 连接缓冲液(5×) | Invitrogen | Y90001 | |
| T4 多核苷酸激酶 10 U/µL | New England Biolabs | M0201L | |
| 台式离心机 | Eppendorf | 5425 | |
| TBE 缓冲液 | 参见补充材料中的配方 | ||
| Tris 低 EDTA 缓冲液(TLE) | 参见补充材料中的配方 | ||
| 吐温 X-100(10%) | Sigma | 93443 | |
| Truseq 接头寡核苷酸 | Integrated DNA Technologies (IDT) | https://www.idtdna.com/site/order/oligoentry | 250 nmol,HPLC 纯化 |
| 吐温 20 去垢剂 | Fisher | 9005-64-5 | |
| 吐温洗涤缓冲液 | 参见补充材料中的配方 | ||
| 涡旋振荡器 | Scientific Industries | (G560)SI-0236 |
参考文献
- Dekker, J., Rippe, K., Dekker, M., Kleckner, N. Capturing chromosome conformation. Science. 295 (5558), 1306-1311 (2002).
- Simonis, M., et al. Nuclear organization of active and inactive chromatin domains uncovered by chromosome conformation capture-on-chip (4C). Nature Genetics. 38 (11), 1348-1354 (2006).
- Dostie, J., et al. Chromosome Conformation Capture Carbon Copy (5C): a massively parallel solution for mapping interactions between genomic elements. Genome Research. 16 (10), 1299-1309 (2006).
- Lieberman-Aiden, E., et al. Comprehensive mapping of long-range interactions reveals folding principles of the human genome. Science. 326 (5950), 289-293 (2009).
- Stadhouders, R., et al. Multiplexed chromosome conformation capture sequencing for rapid genome-scale high-resolution detection of long-range chromatin interactions. Nature Protocols. 8 (3), 509-524 (2013).
- Kalhor, R., Tjong, H., Jayathilaka, N., Alber, F., Chen, L. Genome architectures revealed by tethered chromosome conformation capture and population-based modeling. Nature Biotechnology. 30 (1), 90-98 (2012).
- Hsieh, T. H., et al. Mapping nucleosome resolution chromosome folding in yeast by micro-C. Cell. 162 (1), 108-119 (2015).
- Hsieh, T. -H. S., Fudenberg, G., Goloborodko, A., Rando, O. J. Micro-C XL: assaying chromosome conformation from the nucleosome to the entire genome. Nature Methods. 13 (12), 1009-1011 (2016).
- Denker, A., de Laat, W. The second decade of 3C technologies: detailed insights into nuclear organization. Genes & Development. 30 (12), 1357-1382 (2016).
- Rodley, C. D., Bertels, F., Jones, B., O’Sullivan, J. M. Global identification of yeast chromosome interactions using Genome conformation capture. Fungal Genetics and Biology. 46 (11), 879-886 (2009).
- Rao, S. S., et al. A 3D map of the human genome at kilobase resolution reveals principles of chromatin looping. Cell. 159 (7), 1665-1680 (2014).
- Alipour, E., Marko, J. F. Self-organization of domain structures by DNA-loop-extruding enzymes. Nucleic Acids Research. 40 (22), 11202-11212 (2012).
- Lajoie, B. R., Dekker, J., Kaplan, N. The Hitchhiker’s guide to Hi-C analysis: Practical guidelines. Methods. 72, 65-75 (2015).
- Belaghzal, H., Dekker, J., Gibcus, J. H. Hi-C 2.0: An optimized Hi-C procedure for high-resolution genome-wide mapping of chromosome conformation. Methods. 123, 56-65 (2017).
- Golloshi, R., Sanders, J. T., McCord, R. P. Iteratively improving Hi-C experiments one step at a time. Methods. 142, 47-58 (2018).
- Darrow, E. M., et al. Deletion of DXZ4 on the human inactive X chromosome alters higher-order genome architecture. Proceedings of the National Academy of Sciences of the United States of America. 113 (31), 4504-4512 (2016).
- Akgol Oksuz, B., et al. Systematic evaluation of chromosome conformation capture assays. Nature Methods. 18 (9), 1046-1055 (2021).
- Ghuryeid, J., et al. Integrating Hi-C links with assembly graphs for chromosome-scale assembly. PLoS Computational Biology. 15 (8), 1007273(2019).
- Gu, H., et al. Fine-mapping of nuclear compartments using ultra-deep Hi-C shows that active promoter and enhancer elements localize in the active A compartment even when adjacent sequences do not. bioRxiv. , (2021).
- Ramani, V., et al. Mapping 3D genome architecture through in situ DNase Hi-C. Nature Protocols. 11 (11), 2104-2121 (2016).
- Lafontaine, D. L., Yang, L., Dekker, J., Gibcus, J. H. Hi-C 3.0: Improved Protocol for Genome-Wide Chromosome Conformation Capture. Current Protocols. 1 (7), 198(2021).
- Belton, J. -M. M., et al. Hi-C: A comprehensive technique to capture the conformation of genomes. Methods. 58 (3), 268-276 (2012).
- Truch, J., Telenius, J., Higgs, D. R., Gibbons, R. J. How to tackle challenging ChIP-Seq, with long-range cross-linking, Using ATRX as an example. Methods in Molecular Biology. 1832, Clifton, N.J. 105-130 (2018).
- Wang, P., et al. In situ chromatin interaction analysis using paired-end tag sequencing. Current Protocols. 1 (8), 174(2021).
- Tjong, H., et al. Population-based 3D genome structure analysis reveals driving forces in spatial genome organization. Proceedings of the National Academy of Sciences of the United States of America. 113 (12), 1663-1672 (2016).
- Nagano, T., et al. Cell-cycle dynamics of chromosomal organization at single-cell resolution. Nature. 547 (7661), 61-67 (2017).
- Ramani, V., et al. Massively multiplex single-cell Hi-C. Nature Methods. 14 (3), 263-266 (2017).
- Meng, L., Wang, C., Shi, Y., Luo, Q. Si-C is a method for inferring super-resolution intact genome structure from single-cell Hi-C data. Nature Communications. 12 (1), 4369(2021).
- Tavares-Cadete, F., Norouzi, D., Dekker, B., Liu, Y., Dekker, J. Multi-contact 3C reveals that the human genome during interphase is largely not entangled. Nature Structural & Molecular Biology. 27 (12), 1105-1114 (2020).
- Vermeulen, C., et al. Multi-contact 4C: long-molecule sequencing of complex proximity ligation products to uncover local cooperative and competitive chromatin topologies. Nature Protocols. 15 (2), 364-397 (2020).
- Oomen, M. E., Hedger, A. K., Watts, J. K., Dekker, J. Detecting chromatin interactions between and along sister chromatids with SisterC. Nature Methods. 17 (10), 1002-1009 (2020).
- Mitter, M., et al. Conformation of sister chromatids in the replicated human genome. Nature. 586 (7827), 139-144 (2020).
- Krietenstein, N., et al. Ultrastructural Details of Mammalian Chromosome Architecture. Molecular Cell. 78 (3), 554-565 (2020).
- Hughes, J. R., et al. Analysis of hundreds of cis-regulatory landscapes at high resolution in a single, high-throughput experiment. Nature Genetics. 46 (2), 205-212 (2014).
- Fullwood, M. J., et al. An oestrogen-receptor-alpha-bound human chromatin interactome. Nature. 462 (7269), 58-64 (2009).
- Fang, R., et al. Mapping of long-range chromatin interactions by proximity ligation-assisted ChIP-seq. Cell Research. 26 (12), 1345-1348 (2016).
- Mumbach, M. R., et al. HiChIP: efficient and sensitive analysis of protein-directed genome architecture. Nature Methods. 13 (11), 919-922 (2016).
重印与许可
