本方案描述了一种通过手工分离成年秀丽隐杆线虫(Caenorhabditis elegans)肠道组织的实验步骤,可用于基因组学、蛋白质组学、微生物组学或其他检测分析。
本文内容
摘要
摘要
仅由20个细胞组成, 秀丽隐杆线虫 肠道 是多种维持生命功能的核心,包括消化、代谢、衰老、免疫以及对环境的应答。肠道微生物群与宿主之间存在着关键的相互作用 秀丽隐杆线虫 宿主与其环境在肠道内交汇,而肠道微生物群也主要集中于此。因此,有必要将肠道组织从线虫其余部分中分离出来,以评估肠道特异性的生物学过程。本方案描述了一种手工解剖成年线虫肠道组织的方法。 秀丽隐杆线虫 肠道。该操作可在荧光标记的线虫品系中进行,以方便操作或用于培训目的。一旦技术熟练,可从任意基因型的非标记线虫中收集肠道。这种显微解剖方法能够同时获取宿主肠道组织和肠道微生物群,对许多微生物组研究具有重要意义。因此,本方案所制备的肠道样本适用于多种下游应用,包括但不限于从肠细胞中提取RNA以及从捕获的微生物群中提取DNA。总体而言,手工解剖 秀丽隐杆线虫 肠道为研究肠道生物学的关键方面提供了一种简单且可靠的方法。
引言
Caenorhabditis elegans 线虫仅有 959 个细胞,且其从卵到卵的生命周期仅为 4 天,是遗传学、基因组学和发育生物学研究的理想模式系统1,2。正向与反向遗传筛选的便捷性、广泛使用的工程化荧光标记、实现核苷酸特异性基因组编辑的能力,以及众多公开可用的社区资源,共同推动了 C. elegans 系统中的重大发现与深入认知。然而,该系统存在一个显著局限:难以获得纯净的细胞、组织或器官群体,因其体积微小、结构脆弱且相互连接。由于纯净的细胞群体对于 RNA-seq、ChIP-seq 和 ATAC-seq 等基因组学检测至关重要,目前已发展出多种方法以获取纯净的 C. elegans 细胞、组织和器官样品。本文介绍一种从成年 C. elegans 线虫中手工解剖出大段肠道的方法。所得样品适用于后续基因组学分析(图 1)。
此处描述的精细组织解剖方法(图2)仅为其中一种途径。其他替代技术——例如分子标记、解离线虫、利用荧光激活细胞分选(FACS)纯化目标细胞类型以及后续分析(post hoc analysis)——也已成功用于研究C. elegans分子生物学中的组织特异性特征。然而,手工解剖相较于这些方法的一个优势在于,可同时分析C. elegans肠道及其所含细菌的特征3,4,5。这使得16S rRNA基因测序成为可能,并有助于在C. elegans体系内开展微生物组研究。但一个重要局限性在于,无法实现肠道细胞的单细胞分离。
分子标记技术仅在特定的目标组织或细胞内为分子添加细胞类型特异性的标签。随后,这些标记分子可从整个线虫样品中分离出来。通过这种方法,利用组织特异性启动子驱动的带标签的多聚腺苷酸结合蛋白或剪接前导序列,已实现组织特异性的转录组分析6,7,8,9,10以及3'非翻译区(3'UTR)定位11,12。类似地,研究人员已采用ChIP-seq和DamID技术开展组织特异性的转录因子谱分析,其中将启动子特异性的转录因子变体与标签或酶融合蛋白进行连接13,14。
FACS 可根据解离后线虫细胞的内在细胞特征和荧光特性,分离出目标细胞类型。该方法已成功获得多种器官8,15,16以及单个神经元细胞类型的组织特异性转录组8,9,15,16,17,18 ,并被用于构建整个 C. elegans 神经系统的基因表达图谱19,20。FACS 及其相关技术——荧光激活细胞核分选(FANS)——还被用于生成细胞特异性的染色质谱型21,22。
最后,可以在单细胞分辨率水平的检测中进行事后分析。在该方法中,所有单个细胞均被检测,在分析阶段确定每个细胞的细胞类型,并选择性地筛选出感兴趣的细胞类型以进行进一步研究。事后分析已成功用于获得秀丽隐杆线虫(C. elegans)胚胎23,24,25,26,27以及L128期线虫发育细胞的高空间和时间分辨率转录组。类似策略也已被用于采用ATAC-seq而非RNA-seq来表征染色质可及性29。
每种方法都有其优势和局限性。对于 C. elegans 肠道而言,可通过解离线虫并利用流式细胞术(FACS)分离肠细胞,该方法在胚胎和幼虫阶段可行30,但在成虫中具有挑战性。这被认为是因为肠道细胞体积大、经历内复制且相互粘附紧密,难以在不损伤的情况下解离。本文所述的手工解剖方法克服了这些困难,能够分离出成虫线虫肠道的大段组织。对同一发育阶段的性腺进行手工解剖已在研究中广泛使用且操作简便。肠道解剖与性腺解剖类似,但较少被采用32。本方案改编自 James McGhee 博士和 Barb Goszczynski 建立的一份更长但未发表的实验流程。该简化版方案借鉴了从早期胚胎中分离卵裂球的技术23,33,34,35。尽管手工解剖不适用于分离 C. elegans 中大多数类型的细胞或组织,但它非常适合从成虫中分离肠道。因此,手工解剖可作为获取肠道特异性细胞样本的其他方法的重要补充。
方案
本研究使用了CL2122线虫。这些线虫来自由美国国立卫生研究院研究基础设施项目资助的秀丽隐杆线虫遗传中心(CGC,参见材料表)(P40 OD010440)。
1. 解剖用线虫的培养
- 按照标准培养流程,在接种有大肠杆菌CL2122的NGM平板上培养大量混合发育阶段的CL2122线虫,用于后续同步化处理 E. coli OP5036,37.
注意:通常需要约 96 小时才能达到产卵能力的最大值。- 在72-96小时期间对线虫进行胚胎制备。胚胎制备完成后,将胚胎置于M9溶液中孵化(参见 表1)培养48小时。这将获得处于L1阶段的同步化线虫群体。
注意:CL2122 线虫携带一种由肠道特异性启动子驱动的整合型转基因-GFP(绿色荧光蛋白) mtl-2 (金属硫蛋白 2) 启动子38该启动子特异性地表达于肠道细胞的细胞质中,可在荧光解剖显微镜下观察肠道。经过训练后,使用者可能无需依赖荧光引导即可操作。
- 在72-96小时期间对线虫进行胚胎制备。胚胎制备完成后,将胚胎置于M9溶液中孵化(参见 表1)培养48小时。这将获得处于L1阶段的同步化线虫群体。
- 在至少两个小型培养皿中接种同步化的L1期线虫。将线虫在含有充足食物的NGM培养基平板上培养,直至其发育至成虫阶段(以出现具备产卵能力的胚胎为标志)。在20 °C条件下,此过程需38–46小时。
- 注意确保在重复样本及不同比较菌株之间收获相同发育阶段的材料。
注意:线虫培养时间的长短取决于菌株、温度、食物来源以及目标发育阶段39其他接近成虫期的阶段也可使用,例如L4期及更晚的成虫期。在规划微生物组实验时,可选用除传统食物来源之外的其他细菌食物来源。E. coli OP50)可用于培养线虫,例如CeMbio菌株4 或一种目标病原体40.
- 注意确保在重复样本及不同比较菌株之间收获相同发育阶段的材料。
2. 储备液和微毛细管移液器的制备
注意:表1 提供了本研究中使用的所有缓冲液和溶液的详细信息。
- 在无核酸酶的锥形管中配制 50 mL 卵盐溶液(又称卵缓冲液)(参见 材料表)。制备完成后,于室温保存。
- 在无核酸酶的锥形管中配制10 mL 100 mM 左旋咪唑储备液。配制完成后,分装成每份500 µL,于−20 °C保存。分装样品可解冻后置于4 °C保存,每次保存不超过1周。
- 在无核酸酶的微量离心管中配制1 mL浓度为20 mg/mL的乙酰化牛血清白蛋白(BSA)储备液。配制完成后,分装成50 µL的单次使用 aliquot,于−20 °C保存。
注意:必须使用乙酰化的BSA,因为只有这种形式的BSA是无核酸酶的。非乙酰化的BSA可能含有大量核酸酶,从而导致样品降解。 - 准备至少各五个50 µm和100 µm的微毛细移液管,具体步骤如下。
- 首先,使用拉针仪将标准玻璃毛细管(长4英寸,外径1.2 mm)拉制成注射针形状(参见 材料表)和条件 "贴壁细胞, 秀丽隐杆线虫, & 果蝇" 来自 Sutter Instruments 移液管食谱41 (条件:加热 = 升温 + 5;拉力 = 100;速度 = 75;延迟 = 90;压力 = 500;2.5 mm × 2.5 mm 方框)。
- 接下来,使用显微拉制仪将微毛细移液管拉制为50 µm(在M5/0.1物镜下,显微拉制仪目镜标尺显示三个刻度标记)或100 µm(相同条件下显示五个刻度标记)的尖端尺寸(参见 材料表)。这些尺寸代表微毛细移液管的估计开口直径(图3).
- 然后,将口吸管连接到微毛细移液管上。
注意:移液管传统上通过口吸移液进行控制,但现代许多安全规程已禁止此方法。因此,用户可通过手指与拇指捏压口吸管路来控制吸液。此外,可在口吸管路系统中安装注射器滤器以提高安全性。
3. 实验准备
- 在无核酸酶的锥形管中配制 5 mL 解剖缓冲液。室温保存。
- 在无核酸酶的微量离心管中配制 1 mL 工作浓度的乙酰化 BSA 溶液。置于冰上保存。
- 在无核酸酶的微量离心管中配制 350 µL 工作浓度的左旋咪唑溶液。每组制备三份(每管适用于约 20 条线虫)。置于冰上保存。
- 在无核酸酶的微量离心管中配制螯合缓冲液(表 1)。按需制备多份(每管适用于约 10 条解剖后的线虫)。置于冰上保存。在手工解剖过程中使用螯合缓冲液可提高 RNA 的质量和产量(图 4)。
- 为每个实验组准备一个含有 500 µL 核酸提取试剂或试剂盒指定提取试剂(参见 材料表)的微量离心管(使用无核酸酶的管子)。置于冰上保存。该管将用于收集最终分离的肠道组织,以用于储存或后续使用。
- 准备一个 M9 浴和一个解剖缓冲液浴。取两个直径为 35 mm 的无菌培养皿,向其中一个加入 2 mL M9 溶液,另一个加入 2 mL 解剖缓冲液。最后,向每个培养皿中加入 100 µL 工作浓度的 BSA 溶液,轻轻旋转混匀。在浴液中加入 BSA 可防止线虫粘附在塑料表面。
- 准备解剖阵列。取一个双孔凹面载玻片(参见 材料表),向第一孔中加入 150 µL 工作浓度的左旋咪唑溶液,再向第二孔中加入 150 µL 解剖缓冲液。最后,向每个孔中加入 20 µL 工作浓度的 BSA 溶液。向每个孔中添加 BSA 可防止线虫粘附在载玻片上。
4. 手工解剖 C. elegans 肠道
- 使用线虫挑针将20条成虫从NGM平板转移至M9缓冲液中(步骤3.6)。此步骤可洗去线虫体表的外部细菌。
- 然后,将全部20条线虫从M9缓冲液转移至解剖缓冲液中(步骤3.6)。这将进一步洗去体外细菌,并使线虫在解剖缓冲液中达到平衡。
- 接下来,将线虫分批(每次10条)从解剖缓冲液中转移至含有左旋咪唑溶液的孔中(步骤3.7)。
注意:左旋咪唑将暂时使蠕虫麻痹。- 一旦线虫运动减缓,迅速将其从左旋咪唑孔转移至含有解剖缓冲液的孔中(步骤 3.7)。注意避免使线虫过度麻痹。
注意:将线虫分批转移至左旋咪唑溶液的数量可根据操作者的熟练程度进行调整。最初挑取进入M9缓冲液以及随后转移至解剖缓冲液中的线虫数量也可根据操作者情况灵活调整。建议准备额外的线虫用于解剖,尤其是在训练阶段,以便操作者在学习和熟悉实验流程过程中有充足的样本可供操作。
- 一旦线虫运动减缓,迅速将其从左旋咪唑孔转移至含有解剖缓冲液的孔中(步骤 3.7)。注意避免使线虫过度麻痹。
- 然后,在开始解剖前,让线虫在解剖缓冲液中稍作移动。
注意:过度麻痹的线虫(即完全不运动的线虫)肠道不易外翻。 - 准备就绪后,在荧光解剖显微镜下使用皮下注射针头(如27 G × 1/2 英寸)解剖线虫(参见 材料表)通过在咽部后方紧邻处做一次切割(图 5Aa)或仅位于直肠前方(图 5Ab)。这将产生肠道的两个大片段:前-中段和中-后段。对剩余的线虫继续按此模式操作,保持从前-中段和中-后段获得的肠片段数量相等,直至获得所需总数的肠道样本。
注意:将皮下注射针头连接至一个空的1 mL注射器筒上,可在手部分离过程中更便于操作。根据操作者的熟练程度和经验,有时可能出现解剖切口后未获得肠段的情况。然而,随着练习,这种情况会明显减少。 - 等待约1分钟,使肠道充分从体内伸出。肠道通常呈环状,并可能附着在部分性腺上图5A)。等待期间,向孔中加入 50 µL 螯合缓冲液,以帮助减少 RNA 降解(图4).
- 等待期间,为进一步促进肠道外翻,可使用连接口吸器的100 µm微毛细移液管,将肠道/线虫反复吸入和推出移液管图5B这也有助于将肠道从性腺中分离。注意避免因操作不慎将肠道完全吸入微毛细移液管中而丢失。
注意:用户可交替使用100 µm和50 µm的微毛细移液管,以分离肠道与身体其余部分及性腺。50 µm微毛细移液管较小的开口直径可能更有利于移除肠道上黏附的组织碎片。传统上,吸管可通过口控移液方式操作,但许多现代安全规程禁止此类操作。因此,用户可通过手指与拇指捏压口吸管路来控制吸力。此外,可在口吸管路系统中安装注射器滤器,以增强安全性。 - 一旦肠道充分外露,使用27 G皮下注射针将其与身体其余部分及任何残留的性腺组织分离。所分离的肠段大小可能因操作者的经验、切割质量以及线虫的麻痹程度而有显著差异。
注意:在整个实验过程中,可轻松监测肠道及肠段的完整性。 通过 它们的GFP荧光。 - 现在,使用微毛细移液管吸取肠段,将其从孔中移出并放入含有核酸分离试剂或试剂盒指定分离试剂的微量离心管中。将分离的肠段置于冰上的试剂中,并对剩余肠段重复此操作。
注意:可在当天将多个肠道样本加入含有核酸分离试剂或其他试剂盒指定分离试剂的微量离心管中。样本需置于冰上保存。若无法在1天内完成所有肠道组织的分离,已分离并保存于核酸分离试剂(可保护核酸完整性)中的样本可于−80°C长期保存,直至继续或完成核酸提取。在此条件下,样本可稳定保存较长时间(即数月至1年),直至准备进行核酸提取。肠道组织可收集至水中或任何试剂盒指定的裂解缓冲液中。然而,在决定肠道组织于冰上(或其他设定温度下)于特定缓冲液中可存放的时长时,需谨慎考虑其对后续实验应用的影响。
5. 从解剖的肠道中分离 RNA
- 通过进行三次冻融-涡旋循环,使保存在核酸分离试剂中的组织样品均质化。操作时可使用37 °C金属浴和液氮(或其他相当的方法)。
- 然后向样品中加入0.2倍体积的苯酚:氯仿:IAA试剂(参见材料表),短暂涡旋。例如,对于起始体积为500 µL的样品,0.2倍体积的氯仿即为100 µL。
- 手动振荡离心管20秒,随后在室温下孵育3分钟。
- 通过离心分离样品各相(10,000 x g,18分钟,4 °C)。
- 小心移取水相并转移至新的无核酸酶微离心管中。
注意:避免吸入或扰动界面层。 - 向水相中加入等体积的100%乙醇,并手动振荡样品20秒。
- 将700 µL样品转移至离心柱中(参见材料表)。然后通过离心使RNA结合至柱上(≥8,000 x g,30秒,室温)。弃去穿流液。如有剩余样品,重复此步骤。
- 向柱中加入350 µL RW1缓冲液(参见材料表)以洗涤样品。随后离心(≥8,000 x g,30秒,室温),弃去穿流液。
- 进行柱上DNA消化。向样品柱中加入80 µL DNase I(溶于RDD缓冲液中,参见材料表)。然后在室温下孵育15分钟。
- 随后向柱中加入350 µL RW1缓冲液洗涤样品。离心(≥8,000 x g,30秒,室温),并将柱转移至新的收集管中。弃去穿流液及旧的收集管。此步骤可去除DNase。
- 向样品柱中加入500 µL RPE缓冲液(参见材料表)。然后离心(≥8,000 x g,30秒,室温),弃去穿流液。重复一次以完成第二次洗涤。
- 再额外离心1分钟以进一步干燥柱膜(≥8,000 x g,1分钟,室温)。接着将样品柱转移至配有盖子的新无核酸酶微离心收集管中。弃去穿流液及旧的收集管。
- 直接向样品柱的膜上加入14 µL无核酸酶水。然后在室温下孵育2分钟。接着离心(≥8,000 x g,1分钟,室温)以洗脱RNA。
- 将样品置于冰上保存。随后使用市售的检测试剂盒评估样品中RNA的质量和浓度(参见材料表)。完成后,将样品储存在−80 °C冰箱中。
注意:RNA在−80 °C条件下通常可稳定保存长达1年而不发生降解。
结果
本方案用于手工分离成年 C. elegans 的大段肠道组织(图2)。每个实验组最终的肠道样本均由等量的前中部和中后部肠道片段组成。然而,根据具体实验需求,样本也可仅包含前部、中部或后部肠道片段。本方案共展示了三个代表性结果:第一个结果展示了肠道成功解剖与分离的效果(图6);第二个结果展示了从分离肠道中提取RNA的结果(图7);第三个结果展示了从分离肠道中进行微生物监测的结果(图8)。
对于第一个结果,图6A 展示了在成年CL2122蠕虫的 图5A 中“a”位点进行初次切口后,被挤出的肠道外观。由于CL2122蠕虫携带肠特异性 mtl-2 启动子驱动的GFP(mtl-2p::GFP),分离的肠道在荧光解剖显微镜下会发出绿色荧光。随后在 图6B 中展示了成功分离的肠段。该肠段无可见污染物,例如性腺或尸体残骸。相比之下,图6C 显示的是未能成功分离的肠道,因其上仍明显附着有性腺和尸体组织。
对于第二个结果,将肠道组织收获至核酸分离试剂中,并于次日采用低起始量总RNA提取方案进行处理(参见材料表)。从前段-中段及中段-后段肠道共收集60个肠道切片,最终可获得约15 ng高质量的总RNA(图7A)。该数量的肠道样本可在一天内轻松获取,也可根据需要分多天收集。与线虫解离和肠道细胞的FACS分离相比,手工解剖获取RNA的效率更高,因为后两种方法需要数十万个肠道细胞才能获得相当数量的总RNA(图7B)。重要的是,手工解剖所获得的RNA产量已完全足以作为商业RNA-seq文库建库试剂盒(如NEBNext Ultra II和NEBNext单细胞/低起始量试剂盒)的起始材料,这些试剂盒最低仅需2 pg RNA即可建库。
第三项结果中,将肠道组织收获至无菌的 ddH₂O 中。20,并于同一天使用商业微生物DNA提取试剂盒进行处理(参见 材料表)。通过广谱细菌检测法,从前段-中段和中段-后段共采集的40个肠道样本切片中,最终获得约0.009 pg的总微生物DNA(参见 材料清单) (图8)。这些数量对于传统定量方法而言过低,必须通过qPCR标准曲线进行外推估算。理想情况下,用户应以肠道的最终总量为目标 >40,因为这会提高检测限,并改善关于试剂污染水平的信噪比边界。
在考虑实验设计时,收集适当的对照样本始终是必要的。对于转录组学实验,合适的实验对照可包括以与肠道相同方式收集的整条线虫样本。然而,在从C. elegans中解剖和分离肠道的过程中,常会观察到部分体壁残余组织和性腺附着在肠道片段上。尽管理想情况下这些污染组织应在储存用于下游实验前从肠道中去除,但额外的实验对照还可包括肠道解剖后剩余的虫体残骸,和/或解剖所得的性腺样本。对于微生物组实验,对照除了以与肠道相同方式制备的整虫样本外,还应包括常规的阳性对照(细菌培养物)和阴性对照(水)。
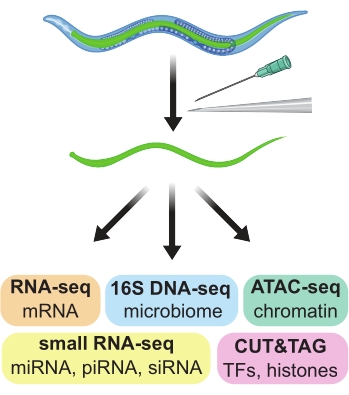
图 1:用于生成组织特异性样本的成年 C. elegans 肠道手工解剖,适用于多种下游组学检测。 请点击此处查看此图的放大版本。
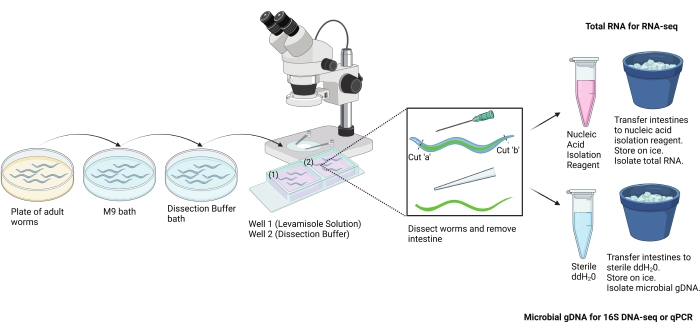
图 2:手工解剖方案示意图。 本方案用于通过手工从成年 C. elegans 中分离出较大部分的肠道组织。分离的肠道可用于多种下游检测。图中展示了将肠道用于 RNA 提取和微生物 DNA 提取的流程。图片由 BioRender.com 制作。 请点击此处查看该图的放大版本。
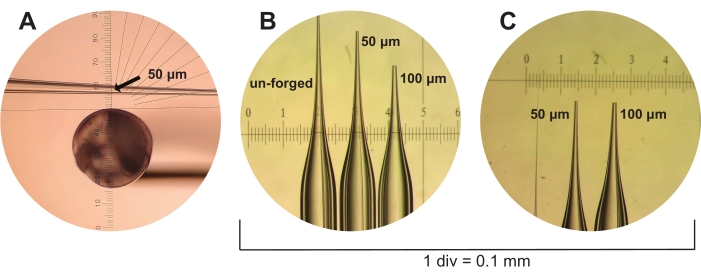
图3:微毛细移液管的制备。(A)通过微拉制仪目镜观察新拉制但未锻尖的微毛细移液管。使用目镜标尺测量内径约为50 µm的微毛细移液管,其内径估计为三个刻度(图中箭头所示)。(B)在解剖显微镜下观察未锻尖的50 µm和100 µm微毛细移液管,并与校准标尺(1格=0.1 mm)并列显示。(C)来自(B)的50 µm和100 µm微毛细移液管从另一个视角再次显示。请点击此处查看该图的放大版本
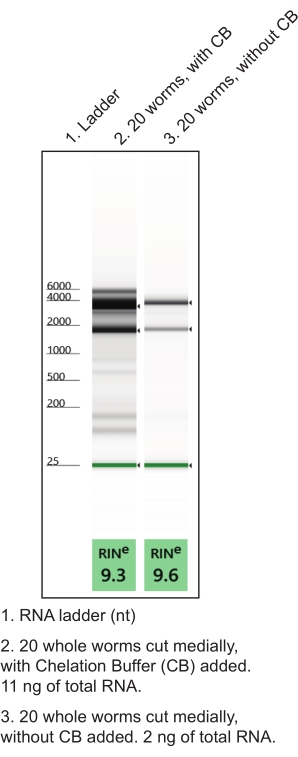
图4:在手工解剖过程中使用螯合缓冲液(CB)以提高RNA得率。 采用低起始量总RNA提取方案,从指定组织中提取RNA样品。图中展示了代表性凝胶电泳结果,用于评估所分离总RNA的质量(RIN,RNA完整性数值)和数量。请点击此处查看该图的放大版本。

图 5:手工解剖步骤。 (A)本方案中所述的解剖步骤在此概述。在(1)中,通过GFP荧光观察线虫的肠道。主要切口位置可在不同线虫之间均匀分布,以确保覆盖肠道全长;或者,可选择“a”或“b”作为主要切口位置,以获得前段-中段或中段-后段肠道片段的特异性制备。在(2)中,肠道已外翻,呈环状。在(3)中,首先将肠道从虫体上切断,同时尽量将其从尸体和性腺组织中分离出来;随后去除仍附着在肠道上的任何残留尸体或性腺组织。在(4)中,一段清洁的肠道已被分离出来,可进行储存。(B)一个关键步骤是利用口吸管末端制作的微毛细移液管,将肠道反复推入和抽出,以清除附着在其上的残余物(如性腺、尸体组织)。比例尺 = 100 µm。 请点击此处查看该图的放大版本。
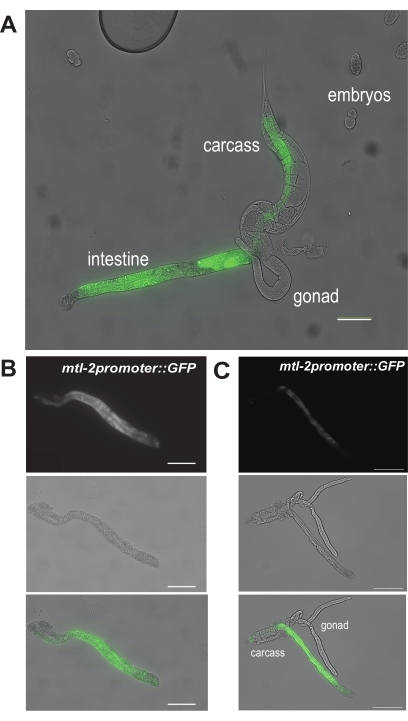
图6:手工解剖步骤的代表性结果。 代表性图像显示(A)线虫肠道的挤出过程。这些为CL2122基因型的线虫,在肠道细胞特异性mtl-2启动子驱动下表达GFP。两张代表性图像分别显示(B)清洁并完全分离的肠道片段,以及(C)含有污染性腺和体壁组织的分离肠道。比例尺 = 100 µm。 请点击此处查看此图的放大版本。
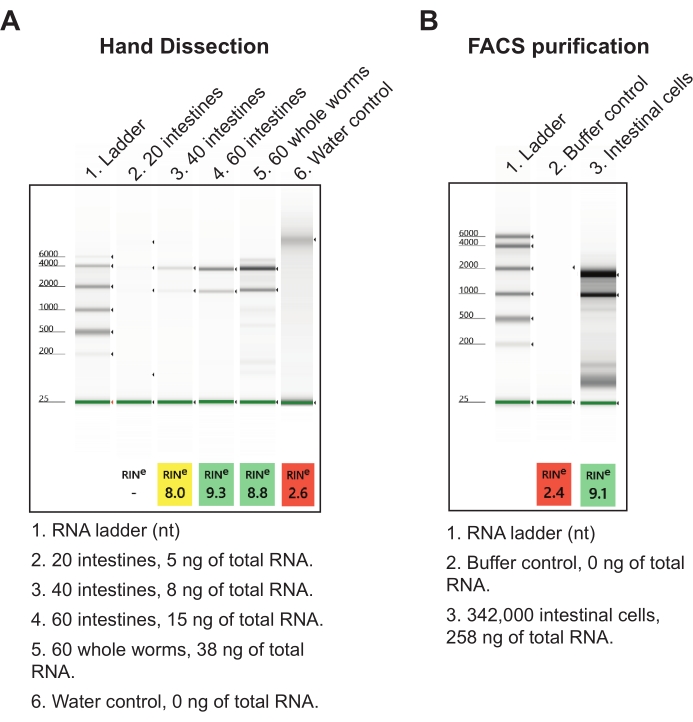
图7:分离肠组织总RNA提取的代表性结果。 (A) 通过琼脂糖凝胶电泳分离RNA样品的代表性图像显示了所提取总RNA的质量(RIN,RNA完整性数)和数量。BL1期线虫肠道细胞中提取的总RNA的代表性凝胶图 通过 为进行比较,展示了荧光激活细胞分选(FACS)的结果。每条肠道取20个细胞时,可推断手工解剖法每条肠道获得的总RNA量高于FACS纯化的肠道细胞。 请点击此处以查看此图的放大版本。
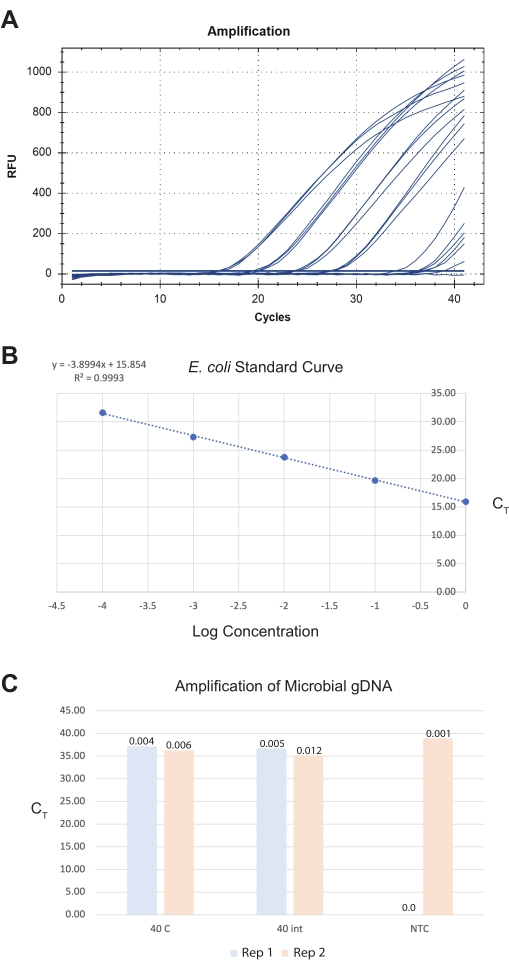
图8:从分离肠段中提取总微生物DNA的代表性结果。 使用商业化的微生物DNA提取试剂盒从肠段、完整线虫及对照样品中提取DNA。采用广谱细菌基因检测方法对样品中的细菌数量进行定量。图中展示了(A)qPCR扩增曲线、(B)用于样品定量的E. coli OP50标准曲线,以及(C)样品检测结果的代表性图像。在(B)中,将E. coli标准品的起始浓度对数值与其CT值作图。在(C)中,两组重复(reps)各40条完整线虫被沿中线切开,40个分离的肠段用于微生物基因组DNA提取。图中同时展示了qPCR实验中的无模板对照(NTC)。Y轴表示样品的CT值。PCR定量得到的DNA量以样品柱状图上方的总皮克(pg)数值表示。请点击此处查看该图的放大版本。
表1:本研究中所用缓冲液和溶液的组成。 请点击此处下载该表格。
讨论
本文介绍了从成年秀丽隐杆线虫(C. elegans)中手工解剖肠道并获得纯净样品以用于后续检测的逐步操作方案。该方案中的关键步骤包括:(1)确保不对线虫过度麻痹;(2)进行精确的解剖切口;(3)制备尺寸合适的微型移液管用于解剖;(4)在最终收获阶段确保健康肠道的快速回收。因此,在将线虫暴露于左旋咪唑溶液时必须格外小心,且需频繁更换皮下注射针头以保证其最大程度的锋利。使用微毛细移液管和口吸装置操作肠道是另一个需要练习的步骤。正确制备的、尺寸适宜的微毛细移液管不仅有助于在解剖过程中分离出较长的肠段,还能显著降低肠道在移液管内丢失的风险。初学者在操作时常会在线虫肠道尚未被喷入分离试剂前,将其遗留在微毛细移液管内壁边缘。通过练习以及使用正确制备的微毛细移液管,可有效解决这一问题。
本文所述方案专为成年蠕虫设计。初步试验表明,该方案在L4期蠕虫及更晚期的成年蠕虫中同样有效。然而,该方案在早期幼虫阶段蠕虫中的有效性尚未得到评估。该方法的一个局限性在于所获得的材料量较少。尽管所得数量足以用于RNA测序和PCR,但可能不足以满足其他检测的需求。因此,使用者需要确定该方案是否能够实际收集到满足特定检测所需的最低样本量。
本实验室常规使用流式细胞分选(FACS)来纯化分离后的肠道细胞30,并结合事后分析方法进行肠道细胞鉴定,以及采用手工解剖方法30,42。当成虫线虫的组织解离和细胞分离效果不佳时,手工解剖法具有适用性广的优势。此外,通过手工解剖样品提取的总RNA在效率和质量方面均较高,这可能是因为组织能够迅速从线虫体内取出,并立即放入核酸提取试剂中,从而减少了RNA降解。手工解剖法的另一优点是成本低、易于掌握,且无需特殊设备。最后,该方法还可用于收获和分离线虫肠道内的共生细菌,从而支持后续的微生物组研究。
本文所述用于从成年 C. elegans 分离肠道的手工解剖方案,是研究 C. elegans 生物学多个方面的有力工具。例如,通过获得纯净的肠道组织,研究人员可深入探究免疫、衰老、代谢与微生物组之间的相互关系。
披露
作者声明无利益冲突。
致谢
我们感谢James McGhee和Barb Goszczynski的开创性工作,他们最初开发了本实验方案所借鉴的肠道解剖方法。本研究工作得到了美国普通医学科学研究所(国家卫生研究院,R35GM124877,授予EON)监管的MIRA(R35)奖以及美国国家科学基金会分子与细胞生物科学部(NSF MCB Div Of Molecular and Cellular Bioscience,奖号#2143849,授予EON)监管的NSF-CAREER奖的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 乙酰化牛血清白蛋白(BSA) | VWR | 97061-420 | 无核酸酶BSA |
| CL2122线虫品系 | CGC(秀丽隐杆线虫遗传中心) | CL2122 | dvIs15 [(pPD30.38) unc-54(vector) + (pCL26) mtl-2::GFP]。CL2120的对照品系。表型明显为野生型。 |
| 二水氯化钙 | Fisher | C79 | 用于配制卵盐溶液 |
| 50 mL 离心管(散装) | Olympus Plastics | 28-108 | 配制溶液所需的无核酸酶锥形管 |
| 15 mL 离心管(散装) | Olympus Plastics | 28-103 | 配制溶液所需的无核酸酶锥形管 |
| 凹面载玻片(双孔) | Electron Microscopy Sciences | 71878-08 | 12片装双孔凹面载玻片 |
| 乙二醇双(2-氨基乙基醚)四乙酸(EGTA) | Millipore Sigma | E3889 | 用于配制螯合缓冲液 |
| 荧光解剖显微镜 | Leica | M205 FCA | 可选设备,可用于荧光标记的秀丽隐杆线虫品系,辅助用户进行手工解剖 |
| N-(2-羟乙基)哌嗪-N′-(2-乙磺酸)、4-(2-羟乙基)哌嗪-1-乙磺酸(HEPES) | Millipore Sigma | H4034 | 用于配制解剖缓冲液 |
| 高灵敏度RNA ScreenTape | Agilent | 5067-5579 | 用于评估总RNA的质量和数量 |
| 高灵敏度RNA ScreenTape Ladder | Agilent | 5067-5581 | 用于评估总RNA的质量和数量 |
| 高灵敏度RNA ScreenTape样本缓冲液 | Agilent | 5067-5580 | 用于评估总RNA的质量和数量 |
| HostZERO微生物DNA试剂盒 | Zymo Research | D4310 | 从线虫肠道/线虫中分离微生物DNA |
| 皮下注射针头(27G × 1/2") | BD Scientific | 305109 | 用于手工解剖肠道 |
| 左旋咪唑(又称(-)-四咪唑盐酸盐) | Millipore Sigma | L9756 | 用于在手工解剖肠道前暂时麻痹线虫 |
| 鲁尔锁通用一次性注射器(1 mL) | BD Scientific | 309628 | 可选。可用于固定皮下注射针头,便于在解剖过程中更方便地操作针头。需移除活塞。 |
| 六水氯化镁 | Fisher | M33 | 用于配制卵盐溶液 |
| 七水硫酸镁 | Sigma-Aldrich | 230391-500G | 用于配制M9缓冲液 |
| MF-900微电极拉制仪 | Narishige | MF-900 | 用于拉制微毛细管移液器。可通过Tritech Research公司购买。 |
| 1.7 mL 微量离心管(透明) | Olympus Plastics | 22-282 | 用于溶液配制和样品储存的无核酸酶微量离心管 |
| 口吸管 | Millipore Sigma | A5177 | 需与微毛细管移液器配合使用,以便吸取解剖后的肠道组织。 |
| 16S泛细菌对照TaqMan探针 | Thermo Fisher | A50137 | 探针编号:Ba04930791_s1。用于通过qPCR检测肠道微生物。 |
| P-1000微移液器拉制仪 | Sutter Instruments | Model P-1000 | 用于在锻造前拉制微毛细管移液器。 |
| 培养皿(35 × 10 mm) | Genesee Scientific - Olympus Plastics | 32-103 | 用于配制M9溶液浴和解剖缓冲液浴,以在解剖前清洗线虫。 |
| 苯酚:氯仿:异戊醇 | Ambion | AM9730 | 用于总RNA的提取 |
| 氯化钾 | Millipore Sigma | 529552 | 用于配制卵盐溶液 |
| 磷酸二氢钾 | Sigma-Aldrich | P0662-500G | 用于配制M9缓冲液 |
| Qubit 3 荧光计 | Invitrogen | Q33216 | 与Qubit RNA HS检测试剂盒配套使用。可用于在Agilent ScreenTape分析前定量RNA。 |
| Qubit RNA HS检测试剂盒 | Invitrogen | Q32852 | 可用于在Agilent ScreenTape分析前定量RNA。 |
| RNasin核糖核酸酶抑制剂 | Promega | N2111 | 广谱抑制常见真核生物RNase |
| 无RNase DNase试剂盒 | Qiagen | 79254 | 在RNA提取过程中用于柱上DNA消化。 |
| RNeasy微量试剂盒 | Qiagen | 74004 | 用于从线虫肠道/线虫中提取总RNA |
| 标准玻璃毛细管 | World Precision Instruments | 1B100F-4 | 外径4英寸、1.2 mm的标准硼硅酸盐玻璃毛细管,用于制作解剖用微毛细管移液器 |
| 氯化钠 | Fisher | S271 | 用于配制卵盐溶液 |
| 七水磷酸氢二钠 | Fisher Scientific | S373-500 | 用于配制M9缓冲液 |
| 注射器滤器(0.2微米SCFA) | Thermo Fisher | 72302520 | 口吸管操作时可选使用。 |
| 4150 TapeStation系统 | Agilent | G2992AA | 与RNA ScreenTape试剂配套使用,用于评估RNA质量和数量 |
| TaqPath BactoPure微生物检测试剂主混合液 | Applied Biosystems | A52699 | 用于qPCR的主混合液 |
| TRIzol试剂 | Thermo Fisher Scientific | 15596026 | 用于核酸的提取与保存。如需要,可用QIAzol(Qiagen;79306)替代。 |
| 线虫挑取针 | NA | NA | 由巴斯德移液管和铂金丝自制而成。详见wormbook。 |
参考文献
- Riddel, D. L., Blumenthal, T., Meyer, B. J., Priess, J. C. elegans II. , Cold Spring Harbor Laboratory Press. Cold Spring Harbor, NY. (1997).
- Corsi, A. K., Wightman, B., Chalfie, M. A transparent window into biology: A primer on Caenorhabditis elegans. Genetics. 200 (2), 387-407 (2015).
- Zhang, F., et al. Natural genetic variation drives microbiome selection in the Caenorhabditis elegans gut. Current Biology. 31 (12), 2603-2618 (2021).
- Dirksen, P., et al. CeMbio - The Caenorhabditis elegans microbiome resource. G3: Genes, Genomes, Genetics. 10 (9), 3025-3039 (2020).
- Zhang, F., et al. Caenorhabditis elegans as a model for microbiome research. Frontiers in Microbiology. 8, 485(2017).
- Roy, P. J., Stuart, J. M., Lund, J., Kim, S. K. Chromosomal clustering of muscle-expressed genes in Caenorhabditis elegans. Nature. 418 (6901), 975-979 (2002).
- Pauli, F., Liu, Y., Kim, Y. A., Chen, P. -J., Kim, S. K. Chromosomal clustering and GATA transcriptional regulation of intestine-expressed genes in C. elegans. Development. 133 (2), 287-295 (2005).
- Spencer, W. C., et al. A spatial and temporal map of C. elegans gene expression. Genome Research. 21 (2), 325-341 (2011).
- Spencer, W. C., et al. Isolation of specific neurons from C. elegans larvae for gene expression profiling. PLoS One. 9 (11), 112102(2014).
- Ma, X., et al. Analysis of C. elegans muscle transcriptome using trans-splicing-based RNA tagging (SRT). Nucleic Acids Research. 44 (21), 156(2016).
- Blazie, S. M., et al. Comparative RNA-Seq analysis reveals pervasive tissue-specific alternative polyadenylation in Caenorhabditis elegans intestine and muscles. BMC Biology. 13 (1), 4(2015).
- Blazie, S. M., et al. Alternative polyadenylation directs tissue-specific miRNA targeting in Caenorhabditis elegans somatic tissues. Genetics. 206 (2), 757-774 (2017).
- Gómez-Saldivar, G., et al. et al.Tissue-specific transcription footprinting using RNA PoI DamID (RAPID) in Caenorhabditis elegans. Genetics. 216 (4), 931-945 (2020).
- Katsanos, D., Barkoulas, M. Targeted DamID in C. elegans reveals a direct role for LIN-22 and NHR-25 in antagonizing the epidermal stem cell fate. Science Advances. 8 (5), 3141(2022).
- Kaletsky, R., et al. The C. elegans adult neuronal IIS/FOXO transcriptome reveals adult phenotype regulators. Nature. 529 (7584), 92-96 (2015).
- Kaletsky, R., et al. Transcriptome analysis of adult Caenorhabditis elegans cells reveals tissue-specific gene and isoform expression. PLoS Genetics. 14 (8), 1007559(2018).
- Mathies, L. D., et al. mRNA profiling reveals significant transcriptional differences between a multipotent progenitor and its differentiated sister. BMC Genomics. 20 (1), 427(2019).
- Liang, X., Calovich-Benne, C., Norris, A. Sensory neuron transcriptomes reveal complex neuron-specific function and regulation of mec-2/ Stomatin splicing. Nucleic Acids Research. 50 (5), 2401-2416 (2021).
- Glenwinkel, L., et al. In silico analysis of the transcriptional regulatory logic of neuronal identity specification throughout the C. elegans nervous system. eLife. 10, 64906(2021).
- Taylor, S. R., et al. Molecular topography of an entire nervous system. Cell. 184 (16), 4329-4347 (2021).
- Charest, J., et al. Combinatorial action of temporally segregated transcription factors. Developmental Cell. 55 (4), 483-499 (2020).
- Steiner, F. A., Talbert, P. B., Kasinathan, S., Deal, R. B., Henikoff, S. Cell-type-specific nuclei purification from whole animals for genome-wide expression and chromatin profiling. Genome Research. 22 (4), 766-777 (2012).
- Tintori, S. C., Nishimura, E. O., Golden, P., Lieb, J. D., Goldstein, B. A transcriptional lineage of the early C. embryo. Developmental Cell. 38 (4), 430-444 (2016).
- Hashimshony, T., Wagner, F., Sher, N., Yanai, I. CEL-Seq: Single-cell RNA-Seq by multiplexed linear amplification. Cell Reports. 2 (3), 666-673 (2012).
- Hashimshony, T., Feder, M., Levin, M., Hall, B. K., Yanai, I. Spatiotemporal transcriptomics reveals the evolutionary history of the endoderm germ layer. Nature. 519 (7542), 219-222 (2015).
- Packer, J. S., et al. A lineage-resolved molecular atlas of C. elegans embryogenesis at single-cell resolution. Science. 365 (6459), 1971(2019).
- Warner, A. D., Gevirtzman, L., Hillier, L. W., Ewing, B., Waterston, R. H. The C. elegans embryonic transcriptome with tissue, time, and alternative splicing resolution. Genome Research. 29 (6), 1036-1045 (2019).
- Cao, J., et al. Comprehensive single-cell transcriptional profiling of a multicellular organism. Science. 357 (6352), 661-667 (2017).
- Durham, T. J., et al. Comprehensive characterization of tissue-specific chromatin accessibility in L2 Caenorhabditis elegans nematodes. Genome Research. 31 (10), 1952-1969 (2021).
- King, D. C., et al. The transcription factor ELT-2 positively and negatively impacts direct target genes to modulate the Caenorhabditis elegans intestinal transcriptome. bioRxiv. , (2021).
- Kocsisova, Z., Mohammad, A., Kornfeld, K., Schedl, T. Cell cycle analysis in the C. elegans germline with the thymidine analog EdU. Journal of Visualized Experiments. (140), e58339(2018).
- Han, S., et al. Mono-unsaturated fatty acids link H3K4me3 modifiers to C. elegans lifespan. Nature. 544 (7649), 185-190 (2017).
- Edgar, L. G., Wolf, N., Wood, W. B. Early transcription in Caenorhabditis elegans embryos. Development. 120 (2), 443-451 (1994).
- Edgar, L. G., Goldstein, B. Culture and manipulation of embryonic cells. Methods in Cell Biology. 107, 151-175 (2012).
- Nishimura, E. O., Zhang, J. C., Werts, A. D., Goldstein, B., Lieb, J. D. Asymmetric transcript discovery by RNA-seq in C. elegans blastomeres identifies neg-1, a gene important for anterior morphogenesis. PLoS Genetics. 11 (4), 1005117(2015).
- Stiernagle, T. Maintenance of C. elegans. WormBook. , 1-11 (2006).
- Porta-de-la-Riva, M., Fontrodona, L., Villanueva, A., Cerón, J. Basic Caenorhabditis elegans methods: Synchronization and observation. Journal of Visualized Experiments. (64), e4019(2012).
- Fay, D. S., Fluet, A., Johnson, C. J., Link, C. D. In vivo aggregation of β-amyloid peptide variants. Journal of Neurochemistry. 71 (4), 1616-1625 (1998).
- Altun, Z. F., Hall, D. H. WormAtas Hermaphrodite Handbook – Introduction to C. elegans Anatomy. WormAtlas. , (2006).
- Tan, M. -W., Mahajan-Miklos, S., Ausubel, F. M. Killing of Caenorhabditis elegans by Pseudomonas aeruginosa used to model mammalian bacterial pathogenesis. Proceedings of the National Academy of Sciences of the United States of America. 96 (2), 715-720 (1999).
- Oesterle, A. Pipette Cookbook 2018: P-97 & P-1000 Micropipette Pullers. Sutter Instrument Company. , Novato, CA. https://www.sutter.com/PDFs/pipette_cookbook.pdf (2018).
- Dineen, A., Nishimura, E. O., Goszczynski, B., Rothman, J. H., McGhee, J. D. Quantitating transcription factor redundancy: The relative roles of the ELT-2 and ELT-7 GATA factors in the C. elegans endoderm. Developmental Biology. 435 (2), 150-161 (2018).
重印与许可
