本文介绍了一种在实验室条件下成功采集并维持健康切叶蚁属(Atta,膜翅目:蚁科)蚁群的实验方案。此外,还详细描述了不同类型的蚁巢结构及其配置,并列举了可能的实验操作流程。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
蚂蚁是地球上生物多样性最丰富的动物类群之一,栖息于多种不同环境。在受控环境中维持蚂蚁群体,有助于更深入地理解其生物学特性,并推动应用研究的发展。这一方法常用于对造成经济损失的物种(例如切叶蚁属 Atta 蚂蚁)进行种群控制研究。这些切叶蚁通过采集树叶来培育其共生真菌,因而被视为农业害虫,广泛分布于美洲大陆。它们具有高度社会性,栖居于结构复杂的地下巢穴中,巢内包含多种功能不同的腔室。在受控环境中维持其群体依赖于一系列日常操作和频繁的护理,本文对此进行了详细描述。首先在繁殖季节(即婚飞期)采集蚁后,并将其单独转移至塑料容器中。由于蚁后死亡率较高,可在婚飞后约6个月进行第二次采集,此时将已形成初期巢穴且共生真菌团发育良好的小型巢群人工挖掘取出,逐个挑选后放入塑料容器中。在实验室中,需每日为已建立的蚁群提供新鲜树叶,并每周清除蚂蚁产生的废弃物及残留的干燥植物材料。随着菌圃不断生长,需根据实验目的将蚁群转移至不同类型容器中。切叶蚁群体被安置于相互连接的容器系统中,以模拟自然界中这些昆虫构建的功能性腔室组织结构。该装置有利于监测废弃物数量、菌圃健康状况以及工蚁和蚁后的行为。在受控条件下饲养蚂蚁群体的最大优势在于便于数据收集和实现更细致的观察。
引言
蚂蚁是一类多样性极高的生物群体,对大多数陆地生态系统具有显著影响1。它们作为高效的种子传播者2,3,4、捕食者5以及生态系统工程师6,7,8,9,10,凸显了其在自然生态系统中的重要性与生态成功。所有蚂蚁物种均被归类为真社会性昆虫;然而,不同物种类群的社会组织存在显著差异,例如劳动分工系统、功能类群、个体间的交流、觅食组织、群体建立以及繁殖过程11。作为高度多样化的类群,蚂蚁利用多种食物资源并演化出特化的取食行为。事实上,农业不仅对人类文明是一次巨大飞跃,对蚂蚁物种而言亦是如此。大约在5500万至6500万年前12,切叶蚁开始培育真菌,并将其纳入几乎唯一的食物来源。它们的特化程度极高,形成了严格、相互依赖且必需的共生关系,即一方无法在没有另一方的情况下存活。
低等真菌种植蚂蚁收集并加工腐烂的叶片等死亡有机物,以培育其共生真菌;而高等真菌种植蚂蚁则采集新鲜植物材料,构成了自然界中最成功的共生系统之一13。这种高度特化的农业技术使它们得以占据新的生态位。高等切叶蚁包括切叶蚁类,这是一个单系群,起源于约19 Ma(15–24 Ma)至18 Ma(14–22 Ma)之间14,15,16,包含四个有效属:Atta Fabricius、Acromyrmex Mayr、Amoimyrmex Cristiano 和 Pseudoatta Gallardo。切叶蚁所实行的切叶农业系统,是由衍生的农业系统进化而来17。大多数此类蚂蚁专一性地利用共生真菌物种 Leucoagaricus gongylophorus Singer18(亦称 Leucocoprinus gongylophorus Heim19),标志着一次重要的进化转变11。这些真菌栽培种通过垂直传播,从原始蚁巢传递给后代,表明其为克隆繁殖20。
值得注意的是,Atta 蚂蚁群体在其生态环境中发展出了极为复杂的组织结构,引起了蚁学家的极大兴趣。其群体数量可达数百万个体,其中大多数为不育的雌性工蚁,表现出显著的多态性,即具有不同的体型和解剖形态。群体根据年龄、生理状态、形态类型、行为以及在巢穴中的专门活动而划分为不同的等级21。工蚁可进一步区分为园艺蚁和护幼蚁、巢内多面手、觅食蚁和挖掘蚁,以及防卫蚁或兵蚁21。这种组织结构使得个体能够协作完成任务,并形成一种自组织系统,从而产生高度有序的集体行为,使其能够高效地应对外界环境扰动22。
种群更替由单个蚁后(即单后制)承担,只要其存活,便构成永久的繁殖型个体22。Atta 蚁后已知寿命可超过20年,并在其整个生命周期中持续产卵23。由于蚁后不可替代,其存活对蚁群的生存至关重要13,20,23,24。然而,在繁殖季节,巢穴中可发现数千只具翅的繁殖雌蚁和雄蚁,但它们均不会留在原始巢穴中,构成一种临时的繁殖型个体22。在 Atta sexdens 蚁群中,大约会产生3,000只繁殖雌蚁和14,000只繁殖雄蚁25。这一现象发生在蚁群达到性成熟时,即自建群约38个月后开始,此后每年重复一次,直至蚁群消亡23,25。新的 Atta 蚁群通过单后独立建群(haplometrosis)方式建立,即由一只蚁后启动新巢。
当环境条件适宜时,繁殖个体将离开地下巢穴,开始婚飞。婚飞发生的时间因地区而异,在巴西境内不同物种的婚飞时间全年均有分布。然而,该事件通常发生在降雨和湿度升高的情况下26,这可能与土壤湿润有利于挖掘活动有关22。通常在婚飞前1至5周,巢穴的入口和通道会被拓宽,以便繁殖个体顺利离开。在离开母巢之前,具翅雌性会从共生真菌中采集并将其一部分储存在口下腔内20,27。交配行为在飞行过程中进行,据估计,在某些物种中,一只蚁后可与三至八只雄蚁交配(即多雄交配)28,从而确保遗传多样性29。随后,蚁后降落至土壤中,倾向于选择无植被或植被稀疏的地点25,在此处脱落翅膀并挖掘其首个巢室。这是蚁后唯一可在巢外被观察到的时期。尽管曾在人工巢穴中观察到临时品级个体,但目前尚不清楚在实验室条件下是否成功发生过交配行为(即婚飞)24。
最初的巢穴建造对应于蚁群最关键的时期,可持续6小时至8小时23,25此时,蚁后会将自己封闭在初始巢室内,几天后便开始产卵。最初的卵由蚁后反刍出的菌丝喂养,标志着蚁群真菌园的开始。第一批幼虫大约在25天后出现。22,且在第一个月即将结束时,菌落会形成一片不断增殖的菌丝垫,其中培育着未成熟个体(卵、幼虫和蛹),而蚁后则在隔离环境中独自培育其最初的后代23卵也是初孵幼虫的食物资源,并被蜂后大量取食13此外,蜂后依靠脂肪体储备以及降解不再需要的飞行肌来维持自身生存。13最初的真菌培养物不会被消耗,因为菌落的存活依赖于其生长发育;在此期间,蚁后会用粪液对培养物进行施肥。13羽化数天后,首批工蜂会打开巢穴入口,开始在巢穴附近区域进行觅食活动13它们将收集的物质作为真菌园的基质,该基质现已成为工蚁的食物。13,22在被添加到真菌培养物之前,工蚁携带的植物材料会被切割成微小碎片,并用粪液润湿13蚂蚁通过操控真菌接种物来促进并调控其生长,从而利用真菌分割挖掘出的大型土壤腔室,这些腔室专门用于培育菌园的环境调控。13,22,25.
婚飞约6个月后,A. sexdens 蚁巢内会形成一个菌圃室和若干通道。切叶蚁在巢穴构建上的高度特化,可作为一种防御天敌和不利环境因素的机制22。已知当巢室开始变干时,切叶蚁会将菌圃分割并转移至湿度较高的巢室中13。因此,尽管挖掘巢穴需要消耗大量能量,但所投入的能量最终会转化为蚁群自身的诸多益处22。除少数例外,Atta 属物种还会建造专门用于存放废弃物的巢室,其中主要包含耗尽养分的菌丝基质和死亡蚂蚁的尸体,将其与其他区域隔离,从而形成一种重要的社会免疫策略30。此外,还有一类特定的工蚁直接处理这些废弃物,以避免污染其他个体。工蚁持续觅食以培育菌圃,而菌圃是蚁群主要的营养来源。然而,在切割植物碎片的过程中,它们也可摄取植物汁液作为补充食物。用于维持菌圃的植物材料经过仔细选择,其选择受到叶片性状和生态系统特性等多种因素的影响13。
切叶蚁获取新鲜植物材料的觅食策略极为复杂,加之成熟蚁群对采集量的需求巨大,导致农业种植者遭受显著经济损失,并威胁森林恢复区域22,31。因此,在从美国南部到阿根廷东北部的大部分分布区域内,这类蚂蚁通常被视为害虫11,13,22,32。由于这些昆虫在生物学上具有一系列适应性特征(例如社会性组织、觅食行为、真菌培育、卫生行为以及复杂的巢穴结构),清除问题蚁群十分困难33。因此,对其种群的控制策略不同于通常针对其他昆虫害虫所采用的方法,主要依赖于带有毒性的诱饵投喂33,34。然而,由于切叶蚁能够识别并拒绝那些对真菌及蚁群个体有害的物质,且仍可能破坏种植田地33,研究人员持续测试新的天然化合物及其他控制手段33,35,36。由于在野外蚁群中难以准确监测实验结果,初步试验通常在受控环境中进行。
因此,必须根据蚂蚁生活方式的异质性,针对特定研究对象调整实验方案,支持在物种水平上开展研究,并将蚁群视为基本操作单元,其中每只蚂蚁都是复杂超个体的一个组成部分11。迄今为止关于Atta属的研究积累,已使得在实验室条件下成功采集和维持蚁群成为可能,并明确了其基本需求和总体运行机制。基于其自然过程,如繁殖、建群和取食行为,已建立一套常规操作流程,可在多种类型的巢穴中实现蚁群的长期饲养。本文描述了一种在实验室中维持切叶蚁的程序化方案,并强调了该系统可用于不同实验目的的广泛科学研究以及科学传播工作。
访问受限。请登录或开始试用以查看此内容。
方案
1. 蚁后采集
- 查阅文献中目标区域 Atta 蚂蚁繁殖季节的时间。婚飞的发生时间、频率及每日发生时段因地区气候条件而异(表1)。尽管婚飞通常发生在春季,但必须针对计划采集的地点获取具体信息37,38,39,40,41,42,43,44,45,46。
- 确定并标记存在 Atta 蚁巢的地点,作为可能的蚁后及新生蚁群采集区域。婚飞期间,蚁后会在蚁巢周围扩散;因此,蚁群数量较多的区域更有可能出现蚁后着陆点,这些地点即为新蚁巢挖掘的起始位置。
- 在 Atta 蚂蚁的繁殖季节,检查先前选定的区域是否出现婚飞迹象。记录婚飞当日的环境条件,例如高温和降雨天气。
- 在先前选定的区域内识别切叶蚁蚁巢,并观察表明有翅生殖蚁即将离巢的外部特征。蚁巢特征包括隧道入口扩大(图1)、工蚁活动流量增加且对潜在捕食者表现出更强攻击性,以及有翅生殖蚁出现在隧道入口处(图1)。注意降雨后高湿度的天气,此类条件通常预示婚飞即将发生。
- 准备带盖的塑料容器,并在底部铺设一层石膏,用于单独存放蚁后。确保容器体积约为 200 mL,底部石膏层高度约为 1 cm,且具有高吸水性以调节湿度。
注:制备石膏基底时,请遵循制造商的说明。 - 准备一个温度恒定为 23 ± 1 °C、相对湿度约为 70% ± 10% 的环境。选择无剧烈活动和人员流动较少的地点,以避免振动和干扰。使用无强烈气味的中性清洁剂,防止干扰蚂蚁行为。
注:环境条件的波动可能导致凝结水或失水,从而影响真菌园的生长。 - 婚飞结束后,采集已开始挖掘蚁巢的无翅蚁后,并小心地将其单独放入预先准备好的带石膏层的塑料容器中。避免用手直接接触蚁后,应使用乳胶手套或昆虫镊子操作。
注:翅的脱落及挖掘土壤的行为表明该生殖雌蚁已完成交配,因此具备建立新蚁群的能力。本文中,蚁后的此次采集也被视为首次采集。 - 将装有蚁后的容器转移至先前选定的受控环境中。运输过程中需格外谨慎,尽量减少扰动,并保持最低限度的温度稳定。
- 采集后约 3 天内不要操作或移动蚁后,以避免造成应激反应。

图1. 扩大后的巢穴入口,可见具翅的繁殖蚁与工蚁。 巢穴入口扩大是指示Atta属蚂蚁发生婚飞现象的特征之一。请点击此处查看该图的放大版本。
2. 蜂王的饲养管理
- 最初,每隔 2 天使用针筒向受体容器中的石膏层添加 2.5 mL 水。
- 不要打开受体容器,应小心用针头刺穿容器盖子,以避免因操作而造成干扰。在此期间可重复使用同一个孔。确保所添加的水不会浸湿石膏层,避免直接浇灌到蚁后、初始真菌团或任何未成熟个体。只要菌圃呈现干燥缺水状态,就应持续对石膏层进行灌溉。
- 采集后两周,检查蚁后是否已反刍真菌。若未见真菌,转移约 2 g 来自成熟蚁群的真菌。如果真菌未正常发育,也应执行此步骤。
注意:进行真菌转移时,需从成熟蚁群中采集健康的真菌,并清除可能附着的所有蚂蚁。操作时使用汤匙、昆虫镊子和乳胶手套处理真菌。 - 出现首批工蚁后,根据蚁群的切叶活动规律,定期提供幼嫩且薄的叶片碎片。确保所提供的叶片健康,且植株未使用过杀虫剂或其他化学物质处理。在早期阶段,叶片碎片长度不应超过 4 cm。
注意:由于首批工蚁开始进行叶片采集,植物材料必须在其出现后才开始提供。投喂频率取决于工蚁将植物材料整合入真菌的速度,通常为每周 2–3 次。也可提供燕麦片和玉米片,但应与叶片交替使用,以防真菌干燥。 - 提供新叶片时,清除蚁群产生的废弃物及干枯的叶片碎片。在操作蚁后时,避免使用香水、润肤露、乳霜或任何具有强烈气味的物质。此外,所有操作过程中均应佩戴乳胶手套。
- 持续观察蚁群的发育情况,当菌圃体积达到容器容量的一半或以上时,将蚁群转移至人工持久性巢穴。
注意:由于每个蚁群的发育速率不同,无法准确预估转移时间。通常情况下,首次采集的蚁群会转移至最大体积为 1 L 的巢穴中,因其菌圃规模较小。
3. 年轻菌落的收集
- 准备容积约为 500 mL 的塑料容器。
- 在婚飞发生约 6 个月后,于先前标记的切叶蚁分布区域,寻找具有颗粒状土壤的塔形土丘(图 1),以识别新生的 Atta 蚁巢(图 2)。
注意:婚飞后约 6 个月,年轻蚁群的巢穴估计在土壤中深度可达 1 m。此时进行采集,有助于提高获得大量稳定且可长期维持的蚁群的成功率。 - 使用园艺锄小心挖掘蚁巢入口,直至找到容纳年轻蚁群的巢室。采集蚁后、菌圃、未成熟个体及年轻工蚁,并将其放入塑料容器中。整个采集过程应尽可能轻柔操作。
注意:自然状态下会同时带入大量土壤,这些土壤应在后续实验室维护过程中逐步清除。 - 将装有蚁群的带盖塑料容器转移至指定的受控环境。运输过程中须格外小心,尽量减少扰动,并保持最低限度的温度恒定。转移后约 3 天内避免对蚁群进行任何操作或移动,以减少应激反应。若室内有频繁活动,可用深色布料覆盖容器。

图 2. 塔状土丘。 典型的塔状巢丘表明存在初生的 Atta sexdens 和 Atta laevigata 蚁群。 请点击此处查看此图的放大版本。
4. 幼年菌落的维持
- 每周提供三次新鲜的嫩叶。
- 确保所提供的叶片健康,且植物未经过杀虫剂或其他化学物质处理。此阶段需保证叶片碎片长度至少为 7 cm。
注意:可交替提供燕麦片和玉米片,但应与叶片轮换使用,以避免菌圃干燥。 - 投喂频率取决于工蚁将植物材料运入菌圃的活跃程度。若切割活动频繁,可增加至每周三次或五次,每天投喂两次。
- 确保所提供的叶片健康,且植物未经过杀虫剂或其他化学物质处理。此阶段需保证叶片碎片长度至少为 7 cm。
- 投喂新叶片时,借助勺子清除菌圃中的废弃物,包括土壤残留物。所有操作过程中需佩戴乳胶手套。操作幼龄菌落时,应避免使用香水、保湿剂、乳霜或任何具有强烈气味的物质。
注意:工蚁会自行将土壤和废弃物与菌圃分离。 - 持续观察菌落发育情况,当菌圃体积达到容器容量的一半或以上时,将菌落转移至人工持久巢穴中。
注意:由于每个菌落的发育速度存在个体差异,无法预估具体的转移时间。

图 3:用于饲养 Atta sexdens 和 Atta laevigata 蚁群的人工巢穴类型。 切叶蚁持久性人工巢穴的示意图:封闭式垂直巢穴结构、封闭式水平巢穴结构以及开放式竞技场巢穴结构。请点击此处查看该图的放大版本。
5. 长效人工巢穴
- 按照下文所述准备一个封闭式垂直巢穴装置(图3 和 图4)。
注意:封闭式巢穴结构应始终使用不同的容器分别作为(1)菌圃室、(2)废物处理室和(3)觅食室。初始设置应包含三个容器,但可根据需要增加容器数量以扩大菌圃规模。巢穴的大小和材质可根据实验目的进行调整,但本文推荐使用透明材料。容器必须无开口,否则蚂蚁会逃逸。如下所述的巢穴类型适用于一般性研究,但由于打开盖子时会造成干扰,导致蚂蚁个体剧烈骚动,因此不推荐用于需要准确收集蚂蚁的实验。然而,由于材料透明,即使菌圃已填满整个容器,仍可定位蚁后及不同蚁型。通常情况下,当菌圃占据垂直容器大部分空间时,可默认幼体位于菌圃中心位置。- 选择一个容积约为 1 L 的透明带盖容器,并在其底部添加一层约 1 cm 厚的高吸水性石膏基底,作为菌圃室。另选两个容积各约为 500 mL 的透明带盖容器,分别用作废物处理室和觅食室。蚂蚁将自行选择各容器的功能,选定后应确保不再互换。
注意:制备石膏基底时,请遵循制造商的说明。 - 对三个容器进行打孔,并用透明管或软管连接。如有必要,可在管口周围使用美纹纸胶带密封,以确保连接紧密,防止蚂蚁逃逸。将装有石膏基底的容器置于中间,另两个容器分别置于两侧。
- 小心地将选定蚁群的菌丝海绵(参见步骤 2.5 和步骤 4.3),连同蚁后、工蚁和幼体一起转移至石膏基底容器中。转移前需确保石膏基底已加水湿润。操作时佩戴乳胶手套。
- 选择一个容积约为 1 L 的透明带盖容器,并在其底部添加一层约 1 cm 厚的高吸水性石膏基底,作为菌圃室。另选两个容积各约为 500 mL 的透明带盖容器,分别用作废物处理室和觅食室。蚂蚁将自行选择各容器的功能,选定后应确保不再互换。
- 按照下文所述准备一个封闭式水平巢穴装置(图3 和 图4)。
注意:水平结构的巢穴便于近距离观察菌圃及工蚁对菌圃的活动。由于菌圃较年轻的区域位于上层,因此可观察到工蚁正在将新提供的基质整合入菌圃的过程。新生菌圃部分的颜色通常与最近提供的资源颜色相似,而较老的部分则通常呈米色。后代个体和蚁后也易于定位,因为在水平容器中,即使菌圃已占据大部分空间,它们通常仍位于菌圃顶部。该结构适用于以行为研究为重点的实验、焦点取样以及科学普及用途,因其能直观展示巢穴内部的组织结构。- 准备一个尺寸约为 31 cm × 21 cm × 4.5 cm 的透明带盖容器,并在其底部添加一层约 1 cm 厚的高吸水性石膏基底,作为菌圃室。另选两个容积各约为 500 mL 的透明带盖容器,分别用作废物处理室和觅食室。蚂蚁将自行选择各容器的功能,选定后应确保不再互换。
注意:制备石膏基底时,请遵循制造商的说明。如有必要,可用美纹纸胶带封闭盖子与容器之间的缝隙,以防止蚂蚁逃逸。 - 对容器进行打孔,并用透明管或软管连接。如有必要,可在管口周围使用美纹纸胶带密封,以确保连接紧密,防止蚂蚁逃逸。将装有石膏基底的容器置于中间,另两个容器分别置于两侧。
- 小心地将选定蚁群的菌丝海绵(参见步骤 2.5 和步骤 4.3),连同蚁后、工蚁和幼体一起转移至石膏基底容器中。转移前需确保石膏基底已加水湿润。操作时佩戴乳胶手套。
- 准备一个尺寸约为 31 cm × 21 cm × 4.5 cm 的透明带盖容器,并在其底部添加一层约 1 cm 厚的高吸水性石膏基底,作为菌圃室。另选两个容积各约为 500 mL 的透明带盖容器,分别用作废物处理室和觅食室。蚂蚁将自行选择各容器的功能,选定后应确保不再互换。
- 按照下文所述准备一个开放式 arena 巢穴装置(图3 和 图5)。
注意:开放式 arena 巢穴可在不造成显著干扰的情况下实现蚂蚁采集,并可用于觅食行为分析。此外,该装置还能真实再现自然界中蚁群的状态,适用于科学普及用途。- 选择一个容积约为 1 L 的透明带盖容器,并在其底部添加一层约 1 cm 厚的高吸水性石膏基底,作为菌圃室。
注意:建议初始使用 1 L 容器,随后根据需要逐步更换为更大容积的容器以扩展菌圃规模,但容器总容积不应超过 5 L。可根据需要添加多个容器。 - 选择一个开放式 arena。arena 的尺寸可根据研究目的进行调整。若选用大型 arena,可将装有菌圃的容器置于其内部(图5);若为小型 arena,则通过透明软管或管道将其与菌圃容器连接(图3)。arena 将同时作为觅食室和废物处理室,因此应确保其空间足够大。
- 用浸有聚四氟乙烯液体的棉签沿 arena 边缘单向涂抹一层,以限制蚂蚁活动范围。操作时佩戴腈手套。
警告:使用聚四氟乙烯液体时,避免吸入和皮肤接触。 - 小心地将选定蚁群的菌丝海绵(参见步骤 2.5 和步骤 4.3),连同蚁后、工蚁和幼体一起转移至石膏基底容器中。转移前需确保石膏基底已加水湿润。操作时佩戴乳胶手套。
- 选择一个容积约为 1 L 的透明带盖容器,并在其底部添加一层约 1 cm 厚的高吸水性石膏基底,作为菌圃室。
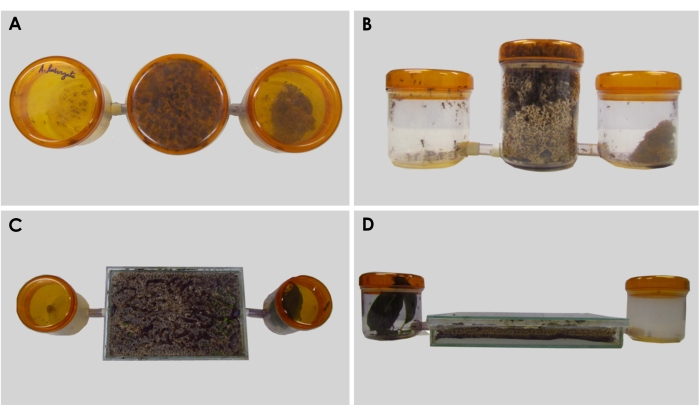
图4:切叶蚁的人工封闭巢穴 Atta sexdens 和 Atta laevigata. 封闭式垂直巢穴装置顶部结构A)和侧视图(B);封闭式水平蜂巢装置顶部(C)和侧面视图(D). 请点击此处以查看此图的放大版本。
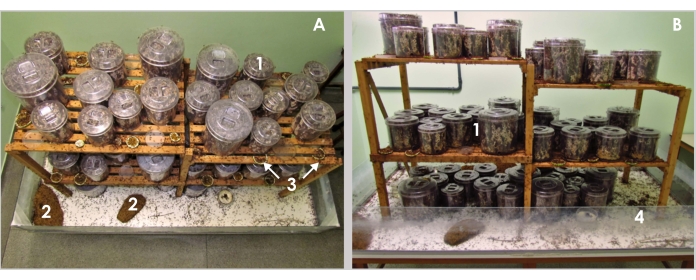
图 5:切叶蚁 Atta sexdens 和 Atta laevigata 的人工开放式巢穴结构。 Atta sexdens 巢穴的俯视图(A)和侧视图(B)。1)菌圃室;2)废弃物;3)橙片;4)带有聚四氟乙烯(PTFE)涂层的玻璃。 请点击此处查看此图的放大版本。
6. 已建立菌落的维持
- 每天为每拥有 1 L 菌圃的蚁群在觅食室中至少提供一片大叶子。若蚂蚁切割活动剧烈,可增加叶子数量。若菌圃干燥,可预先润湿叶子以提供额外湿度。在封闭式巢穴中,投喂操作应迅速完成,以防止蚂蚁逃离觅食室。
注意:此处所用叶子采自桑树(Morus nigra)、芒果(Mangifera indica)、桉树(Eucalyptus sp.)、蒲桃(Syzygium cumini)、木槿(Hibiscus sp.)、铁苋菜(Acalypha wilkesiana)和女贞(Ligustrum lucidum)等植物。- 提供橙子、苹果等水果,以及燕麦片和玉米片,以丰富和补充蚂蚁的饮食。对于觅食活动强烈的大型蚁群,可每日提供燕麦片和玉米片,每周提供一次水果;若非此类情况,则交替提供燕麦片或玉米片与叶子,每周不超过三次,水果每月提供一至两次。根据蚂蚁的觅食活动调整各类食物的投喂量和频率。
- 若上述食物不可获得,可测试蚂蚁对本地树木或灌木的叶子、花朵、果实,或市售蔬菜、谷物及其他谷物片的偏好。避免提供含有防御性化学物质或农药的资源。
- 每两周对所有蚁群的垃圾室内容物进行一次彻底清理,并移除部分工蚁以控制种群数量。若工蚁将健康的菌丝体转移至垃圾室,需确认蚁后不在其中,随后将菌丝体移回菌圃。若垃圾量较大或湿度过高,应每周清理一次。
- 每次投喂新食物时,清除觅食室中未被取食的残留物,并确保该区域始终保持清洁。
- 若工蚁将健康的菌丝体转移至觅食室,可轻扰其位置,保持容器盖敞开,并在觅食室边缘表面涂抹中性滑石粉。此操作仅在菌圃容器仍有足够空间时进行,以便工蚁将菌丝体重新转移回原容器,避免丢失菌丝体或未成熟个体。
- 若需扩大菌圃规模,可增加一个涂有石膏的容器,并将部分菌丝体转移至其中。在菌丝体占据新容器约一半空间前,继续在菌圃室中添加叶子。菌圃的扩展应逐步进行,以免破坏蚁群的生态平衡。若需使用更大的容器,须确保菌丝体已完全占据原有较小容器的空间后再进行转移。不得允许垃圾或干枯叶子在菌圃室内积聚。
- 定期检查容器的石膏基底,随着时间推移,其可能因蚂蚁排泄物、废物搬运及高湿度而变为深褐色并失效;此外,部分蚁群可能主动切割并丢弃该层。出现上述情况时,应将菌圃转移至新的涂石膏容器中。
访问受限。请登录或开始试用以查看此内容。
结果
图解蚂蚁采集流程的流程图见图6。此处展示了采用上述采集、饲养及巢穴设置方案所获得的部分实验结果。

图6:采集切叶蚁蚁群的流程图。 根据本方案,首次采集在婚飞后立即进行。收集已完成脱翅的蚁后,并将其放入带有石膏基底的小型容器中。婚飞6个月后进行第二次采集,收集已开始挖掘土壤并成功启动建巢的蚁后。待蚁群发育后,将其转移至更大的容器中,也可选择转移至不同的巢穴装置中。
访问受限。请登录或开始试用以查看此内容。
讨论
本文所述的叶切蚁群落维持方案在过去三十多年中以明确且可重复的方式开发并应用,使得原本受野外条件限制的研究得以开展。因此,个体及群落水平的健康蚂蚁和蚁群可被用于多个领域的研究,如比较形态学、毒理学51,52、组织学53以及微生物学54,55,56 。在实验室中维持叶切蚁包括本方案所描述的多个步骤,如在适宜的非生物条件下准备场地、采集蚁后和新生蚁群,以及持续的日常护理。
在受控条件下成功饲养切叶蚁需要多个关键步骤。蚁后以及处于早期阶段的蚁群需要特别的照料,遵循文中详述的初始操作程序可确保其存活。例如,必须确定该物种的分布地点以及有翅繁殖蚁开始婚飞的时期。在南美洲,大多数婚飞活动发生在春季(表1
访问受限。请登录或开始试用以查看此内容。
披露
作者声明无利益冲突。
致谢
谨以此文纪念为切叶蚁研究做出巨大贡献的 Mario Autuori(追思)和 Walter Hugo de Andrade Cunha。我们感谢圣保罗州立大学和生物科学研究所的支持。本研究部分由巴西高等教育人员进修协调机构(CAPES)—资助代码 001、国家科学技术发展委员会(CNPq)、圣保罗州研究资助基金会(FAPESP)以及联合国教科文组织圣保罗州立大学发展基金会(Fundunesp)资助。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 昆虫学镊子 | N/A | N/A | N/A |
| 玻璃缸 | N/A | N/A | 钢化玻璃,定制 |
| 软管 | N/A | N/A | 透明,PVC 1/2 英寸 × 2.0 mm |
| 乳胶手套 | Descarpack | 550301 | N/A |
| 丁腈手套 | Descarpack | 433301 | N/A |
| 开放式实验区 | N/A | N/A | 聚丙烯箱 |
| 石膏粉 | N/A | N/A | 建筑用石膏粉,必须具有吸水性 |
| 采集用塑料容器 | Prafesta | Natural Cód.: 8231/Natural Cód.: 8262 | 带盖、透明、聚丙烯材质 |
| 蚁巢用塑料容器 | Prafesta | 已停产 | 聚苯乙烯,密封型 |
| 特氟龙 | Dupont | N/A | 聚四氟乙烯液体(PTFE Dispersion 30) |
参考文献
- Wilson, E. O. The Insect Societies. , Harvard University Press. Cambridge, Massachusetts, USA. (1971).
- Ortiz, D. P., Elizalde, L., Pirk, G. I. Role of ants as dispersers of native and exotic seeds in an understudied dryland. Ecological Entomology. 46 (3), 626-636 (2021).
- Christianini, A. V., Oliveira, P. S. Birds and ants provide complementary seed dispersal in a neotropical savanna. Journal of Ecology. 98 (3), 573-582 (2010).
- Camargo, P. H. S. A., Martins, M. M., Feitosa, R. M., Christianini, A. V. Bird and ant synergy increases the seed dispersal effectiveness of an ornithochoric shrub. Oecologia. 181 (2), 507-518 (2016).
- Sanders, D., van Veen, F. J. F. Ecosystem engineering and predation: the multi-trophic impact of two ant species. Journal of Animal Ecology. 80 (3), 569-576 (2011).
- Swanson, A. C., et al. Welcome to the Atta world: A framework for understanding the effects of leaf-cutter ants on ecosystem functions. Functional Ecology. 33 (8), 1386-1399 (2019).
- Meyer, S. T., et al. Leaf-cutting ants as ecosystem engineers: topsoil and perturbations around Atta cephalotes nests reduce nutrient availability. Ecological Entomology. 38 (5), 497-504 (2013).
- Sosa, B., Brazeiro, A. Positive ecosystem engineering effects of the ant Atta vollenweideri on the shrub Grabowskia duplicata. Journal of Vegetation Science. 21 (3), 597-605 (2010).
- De Almeida, T., et al. Above- and below-ground effects of an ecosystem engineer ant in Mediterranean dry grasslands. Proceedings of the Royal Society B: Biological Sciences. 287 (1935), 20201840(2020).
- Folgarait, P. J. Ant biodiversity and its relationship to ecosystem functioning: a review. Biodiversity & Conservation. 7 (9), 1221-1244 (1998).
- Hölldobler, B., Wilson, E. O. The Ants. , Harvard University Press. (1990).
- Barrera, C. A., Sosa-Calvo, J., Schultz, T. R., Rabeling, C., Bacci, M. Phylogenomic reconstruction reveals new insights into the evolution and biogeography of Atta leaf-cutting ants (Hymenoptera: Formicidae). Systematic Entomology. 47 (1), 13-35 (2021).
- Hölldobler, B., Wilson, E. O. The Leafcutter Ants: Civilization By Instinct. , WW Norton & Company. (2011).
- Branstetter, M. G., et al. Dry habitats were crucibles of domestication in the evolution of agriculture in ants. Proceedings of the Royal Society B: Biological Sciences. 284 (1852), 20170095(2017).
- Solomon, S. E., et al. The molecular phylogenetics of Trachymyrmex Forel ants and their fungal cultivars provide insights into the origin and coevolutionary history of ‘higher-attine’ ant agriculture. Systematic Entomology. 44 (4), 939-956 (2019).
- Cristiano, M. P., Cardoso, D. C., Sandoval-Gómez, V. E., Simões-Gomes, F. C. Amoimyrmex Cristiano, Cardoso & Sandoval, gen. nov. (Hymenoptera: Formicidae): a new genus of leaf-cutting ants revealed by multilocus molecular phylogenetic and morphological analyses. Austral Entomology. 59 (4), 643-676 (2020).
- Schultz, T. R., Brady, S. G. Major evolutionary transitions in ant agriculture. Proceedings of the National Academy of Sciences of the United States of America. 105 (14), 5435-5440 (2008).
- Mueller, U. G., et al. Phylogenetic patterns of ant–fungus associations indicate that farming strategies, not only a superior fungal cultivar, explain the ecological success of leafcutter ants. Molecular Ecology. 27 (10), 2414-2434 (2018).
- Mueller, U. G., et al. Biogeography of mutualistic fungi cultivated by leafcutter ants. Molecular Ecology. 26 (24), 6921-6937 (2017).
- Weber, N. A. The fungus-culturing behavior of ants. American Zoologist. 12 (3), 577-587 (1972).
- Wilson, E. O. Caste and division of labor in leaf-cutter ants (Hymenoptera: Formicidae: Atta). Behavioral Ecology and Sociobiology. 7 (2), 157-165 (1980).
- Della Lucia, T. M. C. Formigas cortadeiras: da bioecologia ao manejo. Viçosa Editora UFV. 421, University of Viçosa Press. Viçosa, Minas Gerais, Brazil. (2011).
- Autuori, M. Contribuição para o conhecimento da saúva (Atta spp). I. Evolução do sauveiro (Atta sex dens rubolpilosa Forel, 1908). Arquivos do Instituto Biologico Saul Paulo. 12, 197-228 (1941).
- Bueno, O. C., Hebling, M. J. A., Schneider, M. O., Pagnocca, F. C. Ocorrência de formas aladas de Atta sexdens rubropilosa Forel (Hymenoptera: Formicidae) em colônias de laboratório. Neotropical Entomology. 31 (3), 469-473 (2002).
- Mariconi, F. A. M. Biologo. As Saúvas. , Ceres Press. Piracicaba, São Paulo, Agronômica. (2021).
- Bento, J. M. S. Condições climáticas para o vôo nupcial e reconhecimento dos indivíduos em Atta sexdens rubropilosa (Hymenoptera: Formicidae). , Viçosa. Minas Gerais, Brazil. Master's dissertation (1993).
- Little, A. E. F., Murakami, T., Mueller, U. G., Currie, C. R. The infrabuccal pellet piles of fungus-growing ants. Naturwissenschaften. 90 (12), 558-562 (2003).
- Kerr, W. E. Acasalamento de rainhas com vários machos em duas espécies da tribo Attini. Revista Brasileira de Biologia. 21, 45-48 (1961).
- Kerr, W. E. Tendências evolutivas na reprodução dos himenópteros sociais. Arquivos do Museu Nacional. 52, (1962).
- Cremer, S., Armitage, S. A. O., Schmid-Hempel, P. Social immunity. Current Biology. 17 (16), 693-702 (2007).
- Hernández, J. V., Jaffé, K. Dano econômico causado por populações de formigas Atta laevigata (F. Smith) em plantações de Pinus caribaea (Mor.) e elementos para o manejo da praga. Anais da Sociedade Entomológica do Brasil. 24 (2), 287-298 (1995).
- Kempf, W. W. Catálogo abreviado das formigas da Região Neotropical Studia Entomologica. antbase.org. 15, 3(1972).
- Della Lucia, T. M. C., Gandra, L. C., Guedes, R. N. C. Managing leaf-cutting ants: peculiarities, trends and challenges. Pest Management Science. 70 (1), 14-23 (2013).
- Boaretto, M. A. C., Forti, L. C. Perspectivas no controle de formigas-cortadeiras. Série Técnica IPEF. 11 (30), 31-46 (1997).
- Folgarait, P. J., Goffré, D. Conidiobolus lunulus, a newly discovered entomophthoralean species, pathogenic and specific to leaf-cutter ants. Journal of Invertebrate Pathology. 186, 107685(2021).
- Cardoso, S. R. S., Rodrigues, A., Forti, L. C., Nagamoto, N. S. Pathogenicity of filamentous fungi towards Atta sexdens rubropilosa (Hymenoptera: Formicidae). International Journal of Tropical Insect Science. 42 (2), 1215-1223 (2022).
- Ichinose, K., Rinaldi, I., Forti, L. C. Winged leaf-cutting ants on nuptial flights used as transport by Attacobius spiders for dispersal. Ecological Entomology. 29 (5), 628-631 (2004).
- Pagnocca, F. C., Rodrigues, A., Nagamoto, N. S., Bacci, M. Yeasts and filamentous fungi carried by the gynes of leaf-cutting ants. Antonie Van Leeuwenhoek. 94 (4), 517-526 (2008).
- Attili-Angelis, D., et al. Novel Phialophora species from leaf-cutting ants (tribe Attini). Fungal Diversity. 65 (1), 65-75 (2014).
- Delabie, J. H. C., do Nascimento, I. C., Mariano, C. S. F. Estratégias de reprodução e dispersão em formigas attines, com exemplos do sul da Bahia. XIX Congresso Brasileiro de Entomologia. , 16-21 (2002).
- Fjerdingstad, E. J., Boomsma, J. J. Variation in size and sperm content of sexuals in the leafcutter ant Atta colombica. Insectes Sociaux. 44 (3), 209-218 (1997).
- Currie, C. R., Mueller, U. G., Malloch, D. The agricultural pathology of ant fungus gardens. Proceedings of the National Academy of Sciences of the United States of America. 96 (14), 7998-8002 (1999).
- Moser, J. C., et al. Eye size and behaviour of day-and night-flying leafcutting ant alates. Journal of Zoology. 264 (1), 69-75 (2004).
- Moreira, S. M., Rodrigues, A., Forti, L. C., Nagamoto, N. S. Absence of the parasite Escovopsis in fungus garden pellets carried by gynes of Atta sexdens. Sociobiology. 62 (1), 34-38 (2015).
- Arcuri, S. L., et al. Yeasts found on an ephemeral reproductive caste of the leaf-cutting ant Atta sexdens rubropilosa. Antonie Van Leeuwenhoek. 106 (3), 475-487 (2014).
- Staab, M., Kleineidam, C. J. Initiation of swarming behavior and synchronization of mating flights in the leaf-cutting ant Atta vollenweideri FOREL, 1893 (Hymenoptera: Formicidae). Myrmecol. News. 19, 93-102 (2014).
- Gálvez, D., Chapuisat, M. Immune priming and pathogen resistance in ant queens. Ecology and Evolution. 4 (10), 1761-1767 (2014).
- Baer, B., Armitage, S. A. O., Boomsma, J. J. Sperm storage induces an immunity cost in ants. Nature. 441 (7095), 872-875 (2006).
- Carlos, A. A. Semioquímicos e comunicação sonora em formigas cortadeiras (Hymenoptera: Formicidae). , Rio Claro, São Paulo, Brazil. Doctoral's thesis (2013).
- do Mundo, M. Veja um FORMIGUEIRO por DENTRO. Boravê. , Available from: https://youtu.be/sN99x_Rjf90 (2021).
- Ortiz, G., Vieira, A. S., Bueno, O. C. Toxicological and morphological comparative studies of insecticides action in leaf-cutting ants. International Journal of Agriculture Innovations and Research. 6 (3), 516-522 (2017).
- Decio, P., Silva-Zacarin, E. C. M., Bueno, F. C., Bueno, O. C. Toxicological and histopathological effects of hydramethylnon on Atta sexdens rubropilosa (Hymenoptera: Formicidae) workers. Micron. 45, 22-31 (2013).
- Vieira, A. S., Morgan, E. D., Drijfhout, F. P., Camargo-Mathias, M. I. Chemical composition of metapleural gland secretions of fungus-growing and non-fungus-growing ants. Journal of Chemical Ecology. 38 (10), 1289-1297 (2012).
- Vieira, A. S., Ramalho, M. O., Martins, C., Martins, V. G., Bueno, O. C. Microbial communities in different tissues of Atta sexdens rubropilosa leaf-cutting ants. Current Microbiology. 74 (10), 1216-1225 (2017).
- Ramalho, M. deO., Martins, C., Morini, M. S. C., Bueno, O. C. What can the bacterial community of Atta sexdens (Linnaeus, 1758) tell us about the habitats in which this ant species evolves. Insects. 11 (6), 332(2020).
- Machado, L. M., et al. Attractivity or repellence: relation between the endophytic fungi of Acalypha, Colocasia and the leaf-cutting ants—Atta sexdens. Advances in Entomology. 9 (2), 85-99 (2021).
- Moreira, A., Forti, L. C., Andrade, A. P., Boaretto, M. A., Lopes, J. Nest architecture of Atta laevigata (F. Smith, 1858) (Hymenoptera: Formicidae). Studies on Neotropical Fauna and Environment. 39 (2), 109-116 (2004).
- Della Lucia, T. M. C., Moreira, D. D. O., Oliveira, M. A., Araújo, M. S. Perda de peso de rainhas de Atta durante a fundação e o estabelecimento das colônias. Revista Brasileira de Biologia. 55 (4), 533-536 (1995).
- Fujihara, R. T., Camargo, R. daS., Forti, L. C. Lipid and energy contents in the bodies of queens of Atta sexdens rubropilosa Forel (Hymenoptera, Formicidae): pre-and post-nuptial flight. Revista Brasileira de Entomologia. 56 (1), 73-75 (2012).
- da Silva Camargo, R., Forti, L. C. Queen lipid content and nest growth in the leaf cutting ant (Atta sexdens rubropilosa) (Hymenoptera: Formicidae). Journal of Natural History. 47, 65-73 (2013).
- Camargo, R. S., Forti, L. C., Fujihara, R. T., Roces, F. Digging effort in leaf-cutting ant queens (Atta sexdens rubropilosa) and its effects on survival and colony growth during the claustral phase. Insectes Sociaux. 58 (1), 17-22 (2011).
- Mota Filho, T. M. M., Garcia, R. D. M., Camargo, R. S., Stefanelli, L. E. P., Forti, L. C. Observations about founding queens (Atta sexdens) and their unusual behavior. International Journal of Agriculture Innovations and Research. 9, 352-357 (2021).
- Barcoto, M. O., Pedrosa, F., Bueno, O. C., Rodrigues, A. Pathogenic nature of Syncephalastrum in Atta sexdens rubropilosa fungus gardens. Pest Management Science. 73 (5), 999-1009 (2017).
- Silva, A., Bacci, M., Pagnocca, F. C., Bueno, O. C., Hebling, M. J. A. Production of polysaccharidases in different carbon sources by Leucoagaricus gongylophorus Möller (Singer), the symbiotic fungus of the leaf-cutting ant Atta sexdens Linnaeus. Curr. Microbiology. 53 (1), 68-71 (2006).
- Majoe, M., Libbrecht, R., Foitzik, S., Nehring, V. Queen loss increases worker survival in leaf-cutting ants under paraquat-induced oxidative stress. Philosophical Transactions of the Royal Society B. 376 (1823), 20190735(2021).
- Della Lucia, T. M. C., Peternelli, E. F. O., Lacerda, F. G., Peternelli, L. A., Moreira, D. D. O. Colony behavior of Atta sexdens rubropilosa (Hymenoptera: Formicidae) in the absence of the queen under laboratory conditions. Behavioural Processes. 64 (1), 49-55 (2003).
- Sales, T. A., Toledo, A. M. O., Zimerer, A., Lopes, J. F. S. Foraging for the fungus: why do Acromyrmex subterraneus (Formicidae) queens need to forage during the nest foundation phase. Ecological Entomology. 46 (6), 1364-1372 (2021).
- Forti, L. C., et al. Do workers from subspecies Acromyrmex subterraneus prepare leaves and toxic baits in similar ways for their fungus garden. Neotropical Entomology. 49 (1), 12-23 (2020).
- Dorigo, A. S., et al. Projeto Primeiros Passos na Ciência: rompendo barreiras sociais e estreitando laços entre a comunidade acadêmica e o ensino médio público. Revista Brasileira de Extensão Universitária. 11 (1), 47-59 (2020).
访问受限。请登录或开始试用以查看此内容。
重印与许可
