本文介绍了一种利用重水(deuterium oxide)和气相色谱-质谱联用技术(GCMS)分析总脂肪酸的经济型定量方法 从头合成 棕色脂肪组织中的脂质生成 体内.
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
方法文章
定量测定 从头合成 利用重水研究棕色脂肪组织中的脂肪酸合成
* These authors contributed equally
本文内容
摘要
摘要
脂肪酸合成是一条复杂且高度耗能的代谢通路,在调控全身代谢稳态及其他生理与病理过程中具有重要的功能作用。与其他关键代谢通路(如葡萄糖代谢)不同,脂肪酸合成功能通常未被常规评估,导致对代谢状态的解读不完整。此外,目前尚缺乏面向领域新手、公开可用的详细实验方案。本文介绍一种经济的定量方法,利用重水(deuterium oxide)结合气相色谱-质谱联用技术(GCMS),用于分析总脂肪酸 从头合成 棕色脂肪组织中的合成 体内该方法可独立于碳源来测量脂肪酸合酶产物的合成,几乎适用于任何小鼠模型中的任何组织以及任何外界干扰条件下的分析。本文提供了气相色谱-质谱联用(GCMS)的样品制备细节及后续计算方法。我们重点分析棕色脂肪,因其具有较高的 从头合成 脂肪酸合成及其在维持代谢稳态中的关键作用
引言
肥胖及相关代谢性疾病是一种危及当代及后代的全球性流行病1,2。尽管常被简化为能量摄入与消耗失衡的结果,但与肥胖相关的代谢紊乱实际上影响着大量由环境和内源性因素调控的代谢通路3。然而,在代谢紊乱动物模型中,仅有少数通路被常规检测。
例如,葡萄糖代谢通常通过葡萄糖耐量试验和胰岛素耐量试验来测定,这可能得益于便携式葡萄糖监测仪使用的简便性4。全身体内葡萄糖和脂质氧化的相对速率也通常基于间接热量测定法测得的呼吸交换比进行估算5,6。然而,代谢的大多数其他方面并未被常规地进行功能性评估,这导致对代谢状态的解释不完整,并可能遗漏潜在的治疗选择。其中一个主要的代谢通路是新生脂质合成(de novo lipogenesis)。
从头脂质生成(de novo lipogenesis, DNL)是指由前体物质合成新的脂肪酸的过程。葡萄糖被认为是参与全身DNL的主要前体7,但其他前体如乙酸盐、果糖、乳酸和支链氨基酸也被证明在特定组织和条件下是重要的碳源8,9,10,11,12。DNL在维持代谢稳态中起关键作用,并对正常发育至关重要13。此外,DNL的异常改变与癌症14,15以及代谢性疾病16,17,18和心血管疾病19,20相关。
从头脂肪酸合成(DNL)途径由核心酶组分ATP柠檬酸裂解酶(ACLY)、乙酰辅酶A羧化酶(ACC1/2)和脂肪酸合酶(FAS)组成,主要生成棕榈酸(一种16碳饱和脂肪酸)。然而,奇数链和支链脂肪酸也可在较低速率下生成9。延长酶和去饱和酶进一步修饰这些脂肪酸,产生多种多样的脂肪酸种类,可用于多种功能(如长期能量储存和调节膜流动性)。
DNL 酶系统表达受少数转录因子调控。迄今为止研究最为充分的包括固醇调节元件结合蛋白(SREBP)家族、碳水化合物反应元件结合蛋白(ChREBP)以及肝X受体(LXR)21,22,23,24,25,26。尽管这些因子在功能上存在明显的重叠,但已有研究报道其在不同细胞类型优势性、生理或病理条件下存在各自独立的调控机制21,22,27,28。
值得注意的是,针对从头脂肪生成(DNL)通路中特定步骤的多种抑制剂已被批准用于临床,或正处于多种疾病的临床前或临床研发阶段,包括肥胖、非酒精性脂肪性肝病/非酒精性脂肪性肝炎(NAFLD/NASH)以及心血管疾病29。这些研究进展凸显了DNL在健康与疾病中的重要意义。
近年来,定量评估方法的应用 从头合成 脂肪酸合成增加30最常用的方法是使用重同位素标记水(D2O),其中重标记的氢在合成过程中直接和间接地掺入酰基链中。 通过 NADPH、乙酰辅酶A和丙二酰辅酶A等DNL底物氢原子的氘交换。尽管该方法正日益受到关注,但目前尚缺乏适用于该领域新手的公开详细实验方案。本文中,我们概述了一种定量评估 从头合成 使用 D 合成 FAS 产物2O 和气相色谱-质谱联用(GCMS),并采用 Lee 等人先前建立的计算方法31该方法用于测量 从头合成 脂肪酸的合成不依赖于碳源,该方法几乎可适用于任何小鼠模型中的任何组织以及任何外界干扰条件下。本文重点分析棕色脂肪组织(BAT),因其具有较高的从头脂肪生成(DNL)水平,并在维持代谢稳态中发挥关键作用。
访问受限。请登录或开始试用以查看此内容。
方案
所有实验均经辛辛那提儿童医院医疗中心机构动物照护与使用委员会批准。
1. D2O的制备
注意:为避免实验误差,需为所有小鼠在整个实验期间准备充足的溶液或饮用水。
- 用于腹腔注射:制备0.9% w/v的生理盐水D2O,通过将每升D中溶解9 g NaCl2O. 通过无热原的过滤器过滤 0.2 µm 过滤除菌。
- 用于饮用2O-水:制备8% v/v D2将80 mL的D与O-富集水混合,作为饮用水使用2O 型血920 mL普通饮用水。普通饮用水可从小鼠饲养设施获取。通过无热原的滤器过滤 0.2 µm 过滤除菌。
2. 温度适应对棕色脂肪组织活性的调节
- 在开始温度适应前两周,将小鼠分笼饲养,每笼两只。将小鼠的饮水更换为水瓶供水,使其适应,并将所有笼盒维持在 22 °C 环境中。
- 在开始温度适应前一周,设置小鼠环境培养箱的相应温度:30 °C 用于热中性环境,22 °C 用于室温,18 °C 用于冷暴露。
- 在温度适应开始时,更换为无环境富集的新笼盒(以避免筑巢),并将笼盒转移至相应温度条件下。
注意:分配至热中性环境的笼盒将在 30 °C 下持续 4 周;分配至室温的笼盒将在 22 °C 下持续 4 周;分配至冷暴露的笼盒将按每周递减的方案逐步降温:第一周 18 °C,第二周 14 °C,第三周 10 °C,第四周 6 °C。 - 每周定期更换所有条件下的脏污笼盒。同时,更换食物和水瓶,使用已在相应温度下预适应至少 24 小时的新瓶和新料。
注意:每周添加食物时需特别注意添加量,尤其是冷暴露组小鼠,其摄食量将显著高于正常条件。食物应自由供应(ad libitum)。
3. D2O 给药
- 向每只动物注射 0.9% w/v 生理盐水-D。2氧原子 35 µL/g 按每公斤体重计算,于组织采集前12小时至3天给药, 通过 使用 1 mL 注射器和 26 G 针头进行腹腔注射。
注意:关于如何选择合适的标记时间,请参阅讨论部分以获取更多信息。 - 将水瓶更换为装有8%体积比D的水瓶。2氧同位素富集饮用水。
4. 血浆和组织的采集、处理与保存
- 实验结束时,采用批准的方法处死小鼠(例如,过量二氧化碳吸入后进行颈椎脱位)。
- 在实施安乐死前,使用加热/冷却垫或其他方法避免温度骤变,以免影响实验结果。按照批准的方法对小鼠实施安乐死,随后立即进行血液和组织采集。
- 使用26 G针头经心脏穿刺采集血液,并收集至含乙二胺四乙酸(EDTA)的采血管中。将血液置于冰上,直至进一步处理。
- 沿小鼠背部中线从胸腔下部至颈部上部切开皮肤,同时将皮肤向上提起,避免损伤皮下组织。肩胛间棕色脂肪组织(BAT)位于肩胛骨之间、一层白色脂肪组织下方,由两个呈金字塔形的叶组成。
- 用预冷的磷酸盐缓冲液(PBS)清洗组织以去除杂质。用纸巾轻拍以除去多余液体,使用分析天平称重后,转移至微量离心管中。
- 立即使用液氮对组织进行速冻。其他部位的棕色脂肪组织也可一并采集。
- 将血液样本在4 °C条件下以10,000 x g 离心10分钟。离心后,小心吸取血浆,避免扰动红细胞沉淀。将血浆转移至新的预冷微量离心管中,并用液氮速冻。
- 将棕色脂肪组织和血浆样本储存于-80 °C,待后续使用。
5. 从脂肪组织中提取脂质
- 提取开始前
- 在玻璃小瓶中用甲醇配制 1 mM 的十六碳烯酸-d31 溶液。这将作为内标脂肪酸。
- 将所需量的氯仿 (CHCl3) 和甲醇 (CH3OH) 在 -80 °C 冰箱或干冰上预冷。
注:可在 CHCl3 中添加浓度为 0.01% w/v (2.5 mg/25 mL) 的抗氧化剂二叔丁基-4-甲基苯酚 (BHT),以防止不饱和脂肪酸中的双键氧化。 - 为每个组织样本预标记微量离心管,并额外标记一个管用于空白提取。
注意:CH3OH 和 CHCl3 具有高度挥发性,吸入有毒。仅在通风橱中使用。
注:不同品牌的微量离心管在背景棕榈酸酯水平以及防止溶剂泄漏的能力方面存在差异。建议首先测试多种类型的离心管,以确保能防止溶剂泄漏且管中污染性棕榈酸酯水平最低。更多讨论请参见 Yao 等人32。
- 将样本从冰箱中取出,置于干冰上。
- 将预标记的微量离心管置于分析天平上,并清零天平。将镊子和手术刀/钢制剃须刀片置于干冰上冷却 10-20 秒。
- 用镊子取出冷冻的组织样本,置于塑料称量舟中。称量舟可置于平整的干冰块或其他预冷表面上。
- 使用手术刀或钢制剃须刀片,切取一小部分组织,重量相当于 5-15 mg。放入微量离心管中并记录精确重量。对每个样本重复此操作。此时样本可储存于冰箱中,或可继续执行以下步骤进行脂质提取。
注:确保手术刀在不同样本间用 70% 乙醇妥善清洁,且每个样本使用新的称量舟。
- 向每个样本中加入 1 µL/mg 的 10 mM 十六碳烯酸-d31(C16:0-d31) 溶液。
注意:由于溶剂的吸入风险,以下步骤 (5.4 至 5.8) 应在通风橱内进行。 - 向每个样本中加入 250 µL CH3OH、250 µL H2O 和 500 µL CHCl3,并放入三颗 5 mm 不锈钢研磨珠。将管置于预冷的研磨机模块中,以 25 Hz 的振动频率混合样本 5 分钟,或遵循制造商针对组织样本推荐的操作指南。使用磁铁移除研磨珠。
- 在 4 °C 下,以 12,000 × g 离心样本 10 分钟。
注:离心后,应观察到清晰的两相分离,上层水相含有极性代谢物,下层有机相含有脂质和脂肪酸。若未见分离,则加入 250 µL H2O 并重复涡旋和离心步骤。 - 使用微量移液器,从每个样本的底层相中吸取固定体积的液体,转移到相应标记的微量离心管中。
- 向剩余样本中加入 500 µL CHCl3,并重复步骤 5.6-5.7。
- 将样本置于氮气流下或置于耐 CHCl3 的冷藏离心真空浓缩仪中,在 4 °C 下直至完全干燥。干燥后的样本可储存于 -20 °C,直至准备进行衍生化。
注:此时也可收集每个样本的上层相,并按照步骤 5.9 进行干燥,以便分析极性代谢物。
6. 脂肪酸甲酯(FAMEs)的制备及气相色谱-质谱分析
- 酸催化酯化与转酯化制备脂肪酸甲酯
警告:由于溶剂具有吸入风险,以下步骤应在通风橱内进行。- 若样本已存放在冷冻柜中,需在氮气下干燥5分钟,以确保无水分残留。
- 使用色谱纯溶剂,移取98 mL无水CH3将OH加入玻璃培养基瓶中。在通风橱中缓慢加入2 mL无水硫酸,配制成2% H2SO4 在 CH3OH。轻轻旋转封闭的瓶子进行混匀。
- 添加 500 µL 2% H2SO4 在 CH3向每个样品中加入OH溶液,并短暂涡旋。
- 在加热块上孵育样品 50 °C 2小时。
- 从加热块中取出样品并加入 100 µL 饱和 NaCl 溶液的 500 µL 向每个样品中加入己烷。
- 在室温下剧烈涡旋振荡样品1分钟。静置样品1分钟;此时应出现两相。
- 将上层相收集到新的微量离心管中(关于微量离心管的适当选择,请参见第5.1.3节中的说明)。
- 为最大化产量,重复步骤 6.1.5–6.1.7,将第二次样品收集至同一标记的试管中。
- 在氮气环境下于室温下干燥样品。
- 将样品重悬于 20 µL/mg 六烷相对于原始组织重量的比例,并立即转移至带有玻璃插件的玻璃GC小瓶中。
注意:转移样品时应迅速操作,以尽量减少蒸发。
- 气相色谱-质谱分析
- 为确定FAME同位素异构体的丰度,将样品注入单四极杆气相色谱-质谱联用仪(GCMS)进行分析。
注意:尽管可使用多种色谱柱类型检测棕榈酸,但以下温度程序是针对一种专为分离脂肪酸顺式/反式异构体而开发的气相色谱-质谱联用(GCMS)色谱柱所建立的,具体细节见下文 材料表该色谱柱长度为50 m,内径为0.25 mm。 - 注射 1 µL 分流/不分流进样口中的样品,在进样口温度为 270 °C,使用氦气作为载气,流速为1 mL/min。对于低丰度脂肪酸,采用不分流进样,总流量为19 mL/min,隔垫吹扫为3 mL/min,在0.75 min时分流出口的吹扫流量为15 mL/min。对于棕榈酸和油酸等高丰度脂肪酸,采用10:1–40:1的分流比。
- 使用以下烘箱参数:初始温度为 80 °C;增加 20 °C/分钟递增至 170 °C;增加 1 °C/分钟递增到 204 °C;增加 20 °C/分钟递增至 250 °C;然后保持在 250 °C 10 分钟。
- 使用以下质谱选择性检测器(MSD)参数:电子轰击电离模式为70 eV,扫描范围为50–400 m/z,扫描速度为1,562 (u/s),扫描频率为4.1 次/秒。使用一根传输线,温度设为 280 °C,一种离子源位于 230 °C,以及一个四极杆 150 °C.
注:也可使用其他色谱柱,但程序升温条件会有所不同。 - 样品进样顺序:随机化样品的进样顺序,并在序列开始时至少注入两到三个正己烷空白样,序列中每五个样品后各注入两到三个正己烷空白样,序列结束时再注入两到三个正己烷空白样。
- 使用仪器配套软件,或免费开源软件(如 Metabolite-Detector)33,以将离子整合到 表1 每种脂肪酸甲酯
注意:我们已标出覆盖 M1-M5 同位素异构体的离子 表1 我们已发现该标记时间窗口涵盖了氘掺入量。然而,如果需要,可能需扩大该窗口。 从头合成 通量显著更高和/或使用了更长的标记时间。 - 利用每个整合离子的丰度生成质量同位素体分布,其中离子强度可转换为相对丰度,使得质量同位素体分布的总和等于一。请参见示例电子表格中的 补充文件.
注意:为了准确测定氘掺入量,必须对天然同位素丰度进行校正,以消除自然界中存在的其他同位素(如¹³C、¹⁵N、¹⁸O等)的影响。 13C, 15N,以及 2H. 此步骤通过应用 Fernandez 等人所述的校正矩阵来完成。34,35,且不能通过从标记代谢物的MID中减去未标记代谢物的MID来实现。实践中,我们推荐使用诸如fluxfix等免费软件36,polyMID37,或 IsoCor38 将原始数据转化为分数型质谱峰(fractional MIDs),并提供了脂肪酸合酶(FAS)甲酯化产物同位素校正的计算公式 表1. - 为确定存在的棕榈酸盐含量,请使用以下公式:
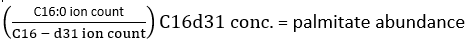
其中离子计数指所有棕榈酸同位素异构体积分的总和 表1 和 C16:0-d31 指内标十六碳烯酸-d31内标物与内源性棕榈酸形成分离的色谱峰。其他脂肪酸的相对丰度也可测定,但需使用脂肪酸特异性的同位素内标物(其质荷比位移需大于D所引起的位移)。2O结合)或外标标准曲线可能需要用于完全定量。使用空白提取样品确定背景棕榈酸含量,并从最终的组织数值中减去该值。 - 根据以下公式计算棕榈酸的摩尔富集度(ME):

其中 Mi 是棕榈酸同位素异构体的归一化分数丰度,n 是可能的棕榈酸同位素异构体的数量。例如,对于具有以下分数分布的棕榈酸分子:M1 = 0.25,M2 = 0.08,M3 = 0.02,其 ME 为:(0.025×1) + (0.08×2) + (0.02×3) = 0.245(参见 补充文件).
- 为确定FAME同位素异构体的丰度,将样品注入单四极杆气相色谱-质谱联用仪(GCMS)进行分析。
7. 通过丙酮氘交换法测定血浆样本以确定体内水的富集度
- 反应
- 配制10种体积分数从0%至9%的重水(氘代水)标准品。
- 配制5% v/v的丙酮/乙腈溶液,每份样品(包括步骤5.1.1中的标准品)预留4 µL。
- 在已标记的防泄漏微量离心管中,分别加入10 µL各血浆样品或标准品、4 µL 10 M NaOH 和 4 µL 5%丙酮/乙腈溶液。每个样品设三个重复。
- 用移液器轻轻混匀样品,室温孵育过夜。
- 萃取
- 孵育结束后,向每个样品中加入450–550 mg Na2SO4。
- 在通风橱中,向每根离心管中加入600 µL CHCl3,剧烈涡旋15秒。
- 以300 × g离心2分钟。
- 在通风橱中,将每份样品的上清液分别取三个80 µL等分试样,转移至带有玻璃插管并已标记的玻璃GCMS小瓶中,盖紧瓶盖。
- GCMS分析
- 在色谱柱(30 m,0.25 mm内径,Agilent DB-35MS)上分离样品,并在连接的质谱仪上进行分析。
- 在不分流/分流进样口进样1 µL,分流比为40:1,氦气流速为1 mL/min,进样口温度为270 °C。
- 采用以下程序升温参数:初始温度60 °C,以20 °C/min升至100 °C,再以50 °C/min升至220 °C,然后在220 °C保持1分钟。
- 采用以下质谱选择性检测器(MSD)参数:电子轰击电离模式(70 eV),监测m/z为58和59的离子。传输线温度为280 °C,离子源温度为230 °C,四极杆温度为150 °C。
注:也可使用其他低流失、键合、交联、中等极性的色谱柱,但程序升温参数需相应调整。
- 设置液体进样器程序,起始为CHCl3清洗,随后为样品的随机进样序列,每六份样品后插入额外的CHCl3清洗步骤。
注:若自动进样器使用丙酮作为针头清洗液,应更换为CHCl3或正己烷,并连续注入多个CHCl3空白样品,直至色谱图中不再出现丙酮的干扰峰。 - 采用该方法时,丙酮峰在约1.25分钟处洗脱。积分数据后,按照步骤6.2.6–6.2.7计算丙酮富集的分数丰度,并根据表1中所示,调整分析包含m/z 58–60的峰。
- 利用标准品绘制标准曲线,根据丙酮的分数富集度确定待测样品的体水富集百分比(p)。
- 在色谱柱(30 m,0.25 mm内径,Agilent DB-35MS)上分离样品,并在连接的质谱仪上进行分析。
8. 体内 从头合成 脂质生成计算
- 使用以下公式计算每个样本中由脂肪酸合酶(FAS)直接合成的新生脂肪酸(FNS)所占比例(即棕榈酸、奇数碳链脂肪酸和mmBCFA):
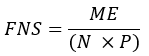
其中 ME 为棕榈酸分子的平均摩尔富集度(步骤 6.2.9),p 为相应血浆样本中水的氘富集度(步骤 7.3.4),N 为棕榈酸上可被氘取代的可交换氢原子数目。 - 使用以下由 Lee 等人建立的公式确定 N 值31:
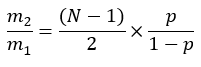
- 通过以下方式确定新生脂肪酸的摩尔量(MNS):
MNS = FNS × 总脂肪酸含量(nmol/mg 组织)。
注意:例如,若测得棕榈酸的摩尔富集度(ME)为 0.245,体内水的氘富集度(p)为 0.045,计算得到的 N 值为 22,则棕榈酸的分数合成率为 0.247。若组织中棕榈酸的含量为 2 mmol/mg,则新生棕榈酸的摩尔量为 0.494 mmol/mg(参见 补充文件)。
访问受限。请登录或开始试用以查看此内容。
结果
根据 D2在步骤1所述的O剂量下,我们通常发现体内水的富集度范围为2.5%至6%,且体内水中的氘基线富集水平在1小时内迅速达到,并在整个研究期间保持稳定。 通过 8% 富集饮用水(图1)。连续稳态的体水富集是第6步计算中所采用的假设,因此我们建议在新的实验模型中对体水富集的动力学进行实验验证。
我们发现,其数量 从头合成 在室温下,相对于热中性条件下的棕色脂肪组织(BAT),合成脂肪酸的含量增加图2)。在热中性环境和室温下饲养3天后,小鼠棕色脂肪组织(BAT)中棕榈酸盐的同位素异构体质量分布2O 给药在室温下显示出更高的 M1 和 M2 氘代富集度图 2A)。这种低温富集现象不仅发生在棕榈酸盐中,也广泛存在于棕色脂肪组织(BAT)中的多种脂肪酸中。图2B)。在室温下,...
访问受限。请登录或开始试用以查看此内容。
讨论
理解复杂代谢通路之间的平衡与相互作用是揭示代谢相关疾病生物学基础不可或缺的一步。本文展示了一种无创且低成本的方法,用于检测代谢变化 从头合成 脂肪酸合成。该方法改编自先前已发表的方法,这些方法开发了用于估算的计算方式 从头合成 基于脂肪酸氘富集率的合成通量31 以及利用氘代丙酮交换法测定D的相对百分比2体液中的氧39近年来,我们采用此处所述方法,研究了脂肪组织库、脑、肝脏及肿瘤中多种脂肪酸合成的变化。9,22,40该方案包含若干关键步骤和可调整的环节,这些环节涉及整体实验设计以及本方法所采用的分析方法和计算方式。计算的替代方法 从头合成 稳定同位素示踪剂用于脂肪酸合成的研究也广泛应用,其中包括由Hellerstein等人开发的替代性质量同位素异构体分布分析(MIDA)方法。
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何披露事项。
致谢
我们感谢Sanchez-Gurmaches和Wallace实验室成员的宝贵讨论。本工作获得了美国心脏协会(18CDA34080527授予JSG,19POST34380545授予RM)、美国国立卫生研究院(NIH R21OD031907授予JSG)、辛辛那提儿童医院医疗中心(CCHMC)董事会奖、CCHMC儿科基因组学中心奖以及CCHMC孟德尔基因组学中心的资助。 & 治疗学奖。本工作部分由辛辛那提消化系统疾病研究中心核心设施 NIH P30 DK078392 项目资助。本内容仅由作者负责,不代表美国国立卫生研究院的官方观点。RT 和 MW 获都柏林大学学院 Ad Astra 博士后奖学金支持。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 4 mL 玻璃小瓶 | Fisher Scientific | 14-955-334 | |
| 0.2 µm 滤膜 | Olympus Plastic | 25-244 | |
| 26G 带针头注射器 | BD | 309597 | |
| 丙酮 | Merck | 34850 | |
| 乙腈 | Merck | 900667 | |
| 带隔垫的蓝色 GC 螺口盖 | Agilent | 5190-1599 | |
| 离心机 | Eppendorf | 5424R | |
| 氯仿 | Sigma | 366927 | |
| 重水 | Sigma | 151882 | |
| 二叔丁基-4-甲基苯酚 (BHT) Select FAME 气相色谱柱 | Merck | B1378 | |
| 二叔丁基-4-甲基苯酚 (BHT) Select FAME 气相色谱柱 | Agilent | CP7419 | |
| EDTA 采血管 | Sarstedt | 411395105 | |
| 乙醇 | Merck | 51976 | |
| 十六碳烯-d31 酸 | Larodan | 71-1631 | |
| 正己烷 | Merck | 34859 | |
| 甲醇 | Merck | 34860 | |
| 微量离心管 | Olympus Plastic | 24-282 | |
| 小鼠环境控制舱 | Caron | Caron 7001-33 | |
| 氯化钾 | Fisher Bioreagents | BP366-500 | |
| 磷酸钾 | MP Biomedicals | 194727 | |
| SafeLock 微量离心管 | Eppendorf | 30120086 | |
| 螺口棕色 GC 小瓶 | Agilent | 5182-0716 | |
| 氯化钠 | Fisher Bioreagents | BP358-212 | |
| 氢氧化钠 | Merck | S5881 | |
| 磷酸氢二钠 | Fisher Bioreagents | BP332-500 | |
| 硫酸钠 | Merck | 239313 | |
| 硫酸 | Merck | 258105 | |
| 小瓶内插管 | Agilent | 5183-2088 |
参考文献
- The Lancet, Diabetes Endocrinology. Childhood obesity: a growing pandemic. The Lancet. Diabetes & Endocrinology. 10 (1), 1(2022).
- Gonzalez-Muniesa, P., et al. Obesity. Nature Reviews Disease Primers. 3, 17034(2017).
- Müller, T. D., Blüher, M., Tschöp, M. H., DiMarchi, R. D. Anti-obesity drug discovery: advances and challenges. Nature Reviews Drug Discovery. 21 (3), 201-223 (2021).
- Virtue, S., Vidal-Puig, A. GTTs and ITTs in mice: simple tests, complex answers. Nature Metabolism. 3 (7), 883-886 (2021).
- Müller, T. D., Klingenspor, M., Tschöp, M. H. Revisiting energy expenditure: how to correct mouse metabolic rate for body mass. Nature Metabolism. 3 (9), 1134-1136 (2021).
- Virtue, S., Lelliott, C. J., Vidal-Puig, A. What is the most appropriate covariate in ANCOVA when analysing metabolic rate. Nature Metabolism. 3 (12), 1585(2021).
- Hellerstein, M. K. De novo lipogenesis in humans: metabolic and regulatory aspects. European Journal of Clinical Nutrition. 53 Suppl 1, S53-S65 (1999).
- Zhao, S., et al. Dietary fructose feeds hepatic lipogenesis via microbiota-derived acetate. Nature. 579 (7800), 586-591 (2020).
- Wallace, M., et al. Enzyme promiscuity drives branched-chain fatty acid synthesis in adipose tissues. Nature Chemical Biology. 14 (11), 1021-1031 (2018).
- Zhao, S., et al. ATP-citrate lyase controls a glucose-to-acetate metabolic switch. Cell Reports. 17 (4), 1037-1052 (2016).
- Green, C. R., et al. Branched-chain amino acid catabolism fuels adipocyte differentiation and lipogenesis. Nature Chemical Biology. 12 (1), 15-21 (2016).
- Zhang, Z., et al. Serine catabolism generates liver NADPH and supports hepatic lipogenesis. Nature Metabolism. 3 (12), 1608-1620 (2021).
- Chirala, S. S., et al. Fatty acid synthesis is essential in embryonic development: fatty acid synthase null mutants and most of the heterozygotes die in utero. Proceedings of the National Academy of Sciences. 100 (11), 6358-6363 (2003).
- Icard, P., et al. ATP citrate lyase: A central metabolic enzyme in cancer. Cancer Letters. 471, 125-134 (2020).
- Fhu, C. W., Ali, A. Fatty acid synthase: an emerging target in cancer. Molecules. 25 (17), 3935(2020).
- Lawitz, E. J., et al. Acetyl-CoA carboxylase inhibitor GS-0976 for 12 weeks reduces hepatic de novo lipogenesis and steatosis in patients with nonalcoholic steatohepatitis. Clinical Gastroenterology and Hepatology. 16 (12), 1983e3-1991e3 (2018).
- Smith, G. I., et al. Insulin resistance drives hepatic de novo lipogenesis in nonalcoholic fatty liver disease. The Journal of Clinical Investigation. 130 (3), 1453-1460 (2020).
- Imamura, F., et al. Fatty acids in the de novo lipogenesis pathway and incidence of type 2 diabetes: A pooled analysis of prospective cohort studies. PLoS Medicine. 17 (6), e1003102(2020).
- Lai, H. T. M., et al. Serial plasma phospholipid fatty acids in the de novo lipogenesis pathway and total mortality, cause-specific mortality, and cardiovascular diseases in the cardiovascular health study. Journal of the American Heart Association. 8 (22), e012881(2019).
- Ference, B. A., et al. Mendelian randomization study of ACLY and cardiovascular disease. The New England Journal of Medicine. 380 (11), 1033-1042 (2019).
- Herman, M. A., et al. A novel ChREBP isoform in adipose tissue regulates systemic glucose metabolism. Nature. 484 (7394), 333-338 (2012).
- Sanchez-Gurmaches, J., et al. Brown fat AKT2 Is a cold-induced kinase that stimulates ChREBP-mediated de novo lipogenesis to optimize fuel storage and thermogenesis. Cell Metabolism. 27 (1), 195e6-209e6 (2018).
- Wang, X., et al. Nuclear protein that binds sterol regulatory element of low density lipoprotein receptor promoter. II. Purification and characterization. The Journal of Biological Chemistry. 268 (19), 14497-14504 (1993).
- Briggs, M. R., Yokoyama, C., Wang, X., Brown, M. S., Goldstein, J. L. Nuclear protein that binds sterol regulatory element of low density lipoprotein receptor promoter. I. Identification of the protein and delineation of its target nucleotide sequence. The Journal of Biological Chemistry. 268 (19), 14490-14496 (1993).
- Yokoyama, C., et al. SREBP-1, a basic-helix-loop-helix-leucine zipper protein that controls transcription of the low density lipoprotein receptor gene. Cell. 75 (1), 187-197 (1993).
- Chen, G., Liang, G., Ou, J., Goldstein, J. L., Brown, M. S. Central role for liver X receptor in insulin-mediated activation of Srebp-1c transcription and stimulation of fatty acid synthesis in liver. Proceedings of the National Academy of Sciences. 101 (31), 11245-11250 (2004).
- Denechaud, P. D., et al. ChREBP, but not LXRs, is required for the induction of glucose-regulated genes in mouse liver. The Journal of Clinical Investigation. 118 (3), 956-964 (2008).
- Crewe, C., et al. SREBP-regulated adipocyte lipogenesis is dependent on substrate availability and redox modulation of mTORC1. JCI Insight. 5 (15), e129397(2019).
- Batchuluun, B., Pinkosky, S. L., Steinberg, G. R. Lipogenesis inhibitors: therapeutic opportunities and challenges. Nature Reviews Drug Discovery. 21 (4), 283-305 (2022).
- Wallace, M., Metallo, C. M. Tracing insights into de novo lipogenesis in liver and adipose tissues. Seminars in Cell & Developmental Biology. 108, 65-71 (2020).
- Lee, W. N., et al. In vivo measurement of fatty acids and cholesterol synthesis using D2O and mass isotopomer analysis. The American Journal of Physiology. 266 (5 Pt 1), E699-E708 (1994).
- Yao, C. H., Liu, G. Y., Yang, K., Gross, R. W., Patti, G. J. Inaccurate quantitation of palmitate in metabolomics and isotope tracer studies due to plastics. Metabolomics. 12, 143(2016).
- Hiller, K., et al. MetaboliteDetector: comprehensive analysis tool for targeted and nontargeted GC/MS based metabolome analysis. Analytical Chemistry. 81 (9), 3429-3439 (2009).
- Fernandez, C. A., Des Rosiers, C., Previs, S. F., David, F., Brunengraber, H. Correction of 13C mass isotopomer distributions for natural stable isotope abundance. Journal of Mass Spectrometry. 31 (3), 255-262 (1996).
- Midani, F. S., Wynn, M. L., Schnell, S. The importance of accurately correcting for the natural abundance of stable isotopes. Analytical Biochemistry. 520, 27-43 (2017).
- Trefely, S., Ashwell, P., Snyder, N. W. FluxFix: automatic isotopologue normalization for metabolic tracer analysis. BMC Bioinformatics. 17 (1), 485(2016).
- Jeong, H., et al. Correcting for naturally occurring mass isotopologue abundances in stable-isotope tracing experiments with PolyMID. Metabolites. 11 (5), 310(2021).
- Millard, P., et al. IsoCor: isotope correction for high-resolution MS labeling experiments. Bioinformatics. 35 (21), 4484-4487 (2019).
- Brunengraber, D. Z., et al. Influence of diet on the modeling of adipose tissue triglycerides during growth. American Journal of Physiology. Endocrinology and Metabolsim. 285 (4), E917-E925 (2003).
- Svensson, R. U., et al. Inhibition of acetyl-CoA carboxylase suppresses fatty acid synthesis and tumor growth of non-small-cell lung cancer in preclinical models. Nature Medicine. 22 (10), 1108-1119 (2016).
- Hellerstein, M. K., Neese, R. A. Mass isotopomer distribution analysis: a technique for measuring biosynthesis and turnover of polymers. The American Journal of Physiology. 263 (5 Pt 1), E988-E1001 (1992).
- Hellerstein, M. K., Neese, R. A. Mass isotopomer distribution analysis at eight years: theoretical, analytic, and experimental considerations. The American Journal of Physiology. 276 (6), E1146-E1170 (1999).
- Kelleher, J. K., Masterson, T. M. Model equations for condensation biosynthesis using stable isotopes and radioisotopes. The American Journal of Physiology. 262 (1 Pt 1), E118-E125 (1992).
- Kelleher, J. K., Nickol, G. B. Isotopomer spectral analysis: utilizing nonlinear models in isotopic flux studies. Methods in Enzymology. 561, 303-330 (2015).
- Argus, J. P., et al. Development and application of FASA, a model for quantifying fatty acid metabolism using stable isotope labeling. Cell Reports. 25 (10), 2919.e8-2934.e8 (2018).
- Guilherme, A., et al. Control of adipocyte thermogenesis and lipogenesis through β3-adrenergic and thyroid hormone signal integration. Cell Reports. 31 (5), 107598(2020).
- Guilherme, A., et al. Neuronal modulation of brown adipose activity through perturbation of white adipocyte lipogenesis. Molecular Metabolism. 16, 116-125 (2018).
- Guilherme, A., et al. Adipocyte lipid synthesis coupled to neuronal control of thermogenic programming. Molecular Metabolism. 6 (8), 781-796 (2017).
- Lodhi, I. J., et al. Inhibiting adipose tissue lipogenesis reprograms thermogenesis and PPARgamma activation to decrease diet-induced obesity. Cell Metabolism. 16 (2), 189-201 (2012).
- McCormack, J. G., Denton, R. M. Evidence that fatty acid synthesis in the interscapular brown adipose tissue of cold-adapted rats is increased in vivo by insulin by mechanisms involving parallel activation of pyruvate dehydrogenase and acetyl-coenzyme A carboxylase. The Biochemistry Journal. 166 (3), 627-630 (1977).
- Trayhurn, P. Fatty acid synthesis in vivo in brown adipose tissue, liver and white adipose tissue of the cold-acclimated rat. FEBS Letters. 104 (1), 13-16 (1979).
- Negron, S. G., Ercan-Sencicek, A. G., Freed, J., Walters, M., Lin, Z. Both proliferation and lipogenesis of brown adipocytes contribute to postnatal brown adipose tissue growth in mice. Science Reports. 10 (1), 20335(2020).
- Schlein, C., et al. Endogenous fatty acid synthesis drives brown adipose tissue involution. Cell Reports. 34 (2), 108624(2021).
- Mottillo, E. P., et al. Coupling of lipolysis and de novo lipogenesis in brown, beige, and white adipose tissues during chronic beta3-adrenergic receptor activation. Journal of Lipid Research. 55 (11), 2276-2286 (2014).
- Adlanmerini, M., et al. Circadian lipid synthesis in brown fat maintains murine body temperature during chronic cold. Proceedings of the National Academy of Sciences. 116 (37), 18691-18699 (2019).
- Yu, X. X., Lewin, D. A., Forrest, W., Adams, S. H. Cold elicits the simultaneous induction of fatty acid synthesis and beta-oxidation in murine brown adipose tissue: prediction from differential gene expression and confirmation in vivo. FASEB Journal. 16 (2), 155-168 (2002).
- Kushner, D. J., Baker, A., Dunstall, T. G. Pharmacological uses and perspectives of heavy water and deuterated compounds. Canadian Journal of Physiology and Pharmacology. 77 (2), 79-88 (1999).
- Diraison, F., Pachiaudi, C., Beylot, M. Measuring lipogenesis and cholesterol synthesis in humans with deuterated water: use of simple gas chromatographic/mass spectrometric techniques. Journal of Mass Spectrometry. 32 (1), 81-86 (1997).
- Yang, D., et al. Assay of low deuterium enrichment of water by isotopic exchange with [U-13C3]acetone and gas chromatography-mass spectrometry. Analytical Biochemistry. 258 (2), 315-321 (1998).
- Fu, X., et al. Measurement of lipogenic flux by deuterium resolved mass spectrometry. Nature Communications. 12 (1), 3756(2021).
- Shah, V., Herath, K., Previs, S. F., Hubbard, B. K., Roddy, T. P. Headspace analyses of acetone: a rapid method for measuring the 2H-labeling of water. Analytical Biochemistry. 404 (2), 235-237 (2010).
- Argus, J. P., Yu, A. K., Wang, E. S., Williams, K. J., Bensinger, S. J. An optimized method for measuring fatty acids and cholesterol in stable isotope-labeled cells. Journal of Lipid Research. 58 (2), 460-468 (2017).
- Belew, G. D., Jones, J. G. De novo lipogenesis in non-alcoholic fatty liver disease: Quantification with stable isotope tracers. European Journal of Clinical Investigation. 52 (3), e13733(2022).
- Zhang, Z., Chen, L., Liu, L., Su, X., Rabinowitz, J. D. Chemical basis for deuterium labeling of fat and NADPH. Journal of the American Chemical Society. 139 (41), 14368-14371 (2017).
- Belew, G. D., et al. Transfer of glucose hydrogens via acetyl-CoA, malonyl-CoA, and NADPH to fatty acids during de novo lipogenesis. Journal of Lipid Research. 60 (12), 2050-2056 (2019).
- Diraison, F., Pachiaudi, C., Beylot, M. In vivo measurement of plasma cholesterol and fatty acid synthesis with deuterated water: determination of the average number of deuterium atoms incorporated. Metabolism. 45 (7), 817-821 (1996).
- Ajie, H. O., et al. In vivo study of the biosynthesis of long-chain fatty acids using deuterated water. The American Journal of Physiology. 269 (2 Pt 1), E247-E252 (1995).
- Schloerb, P. R., Friis-Hansen, B. J., Edelman, I. S., Solomon, A. K., Moore, F. D. The measurement of total body water in the human subject by deuterium oxide dilution; with a consideration of the dynamics of deuterium distribution. The Journal of Clinical Investigation. 29 (10), 1296-1310 (1950).
访问受限。请登录或开始试用以查看此内容。
重印与许可
